Modell wird geladen
Dieses Gerät kann das 3D-Modell nicht anzeigen. Die Schritte des Rundgangs unten lassen sich als Text lesen.
1 / 11 84 Basenpaare DNA, maßstäblich Dieser Abschnitt ist etwa 29 nm lang. Die Balken darunter geben den Maßstab an: Eine Windung umfasst in Lösung 10,5 Basenpaare (3,57 nm), während Lehrbücher auf 10 Basenpaare und 3,4 nm runden. Die Sequenz ist für das Modell erfunden.
Ziehen zum Drehen. Mausrad oder zwei Finger zum Zoomen.
Rundgang Teile Steuerung
01 84 Basenpaare DNA, maßstäblich Dieser Abschnitt ist etwa 29 nm lang. Die Balken darunter geben den Maßstab an: Eine Windung umfasst in Lösung 10,5 Basenpaare (3,57 nm), während Lehrbücher auf 10 Basenpaare und 3,4 nm runden. Die Sequenz ist für das Modell erfunden.
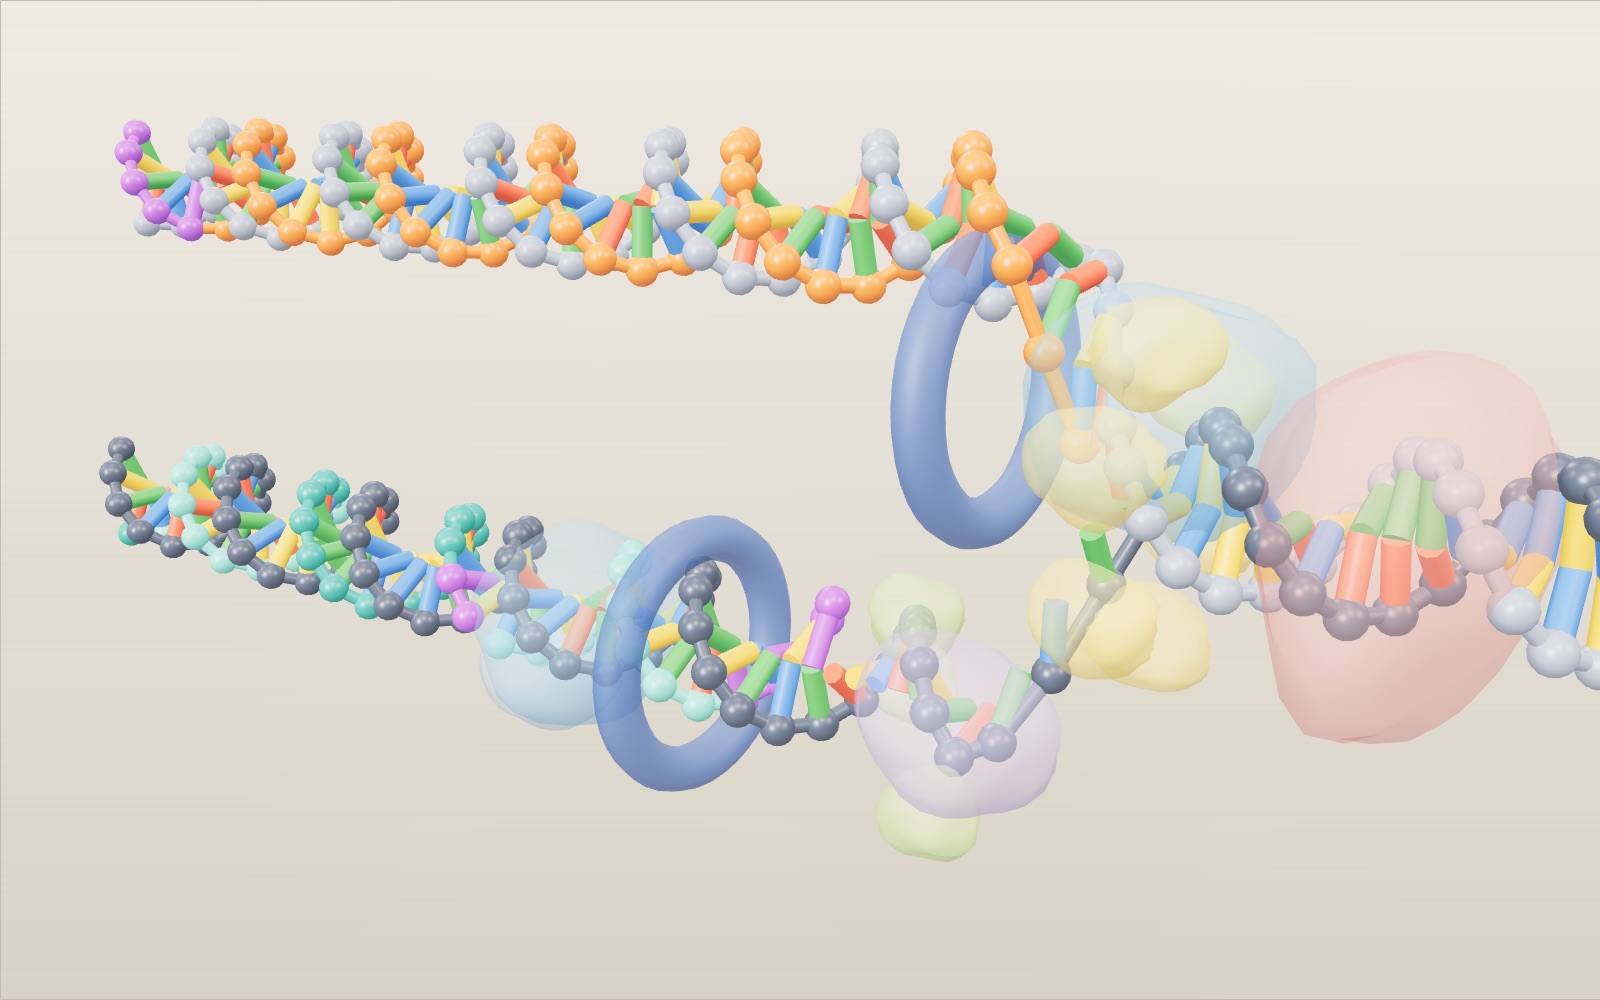
02 Helikase öffnet eine Gabel Der Helikasering zieht die Stränge auseinander, und die DNA teilt sich zu einem Y, der Replikationsgabel. Davor baut eine Topoisomerase die Verdrillung ab; dahinter verhindern kleine Bindungsproteine (grün), dass die Einzelstränge sich wieder schließen.
03 Jedes neue Stück beginnt mit RNA Die DNA-Polymerase kann nur an einem vorhandenen 3′-Ende anfügen. Die Primase umgeht dies, indem sie einen kurzen RNA-Primer, die violetten Kugeln, auf die Folgestrangmatrize schreibt.
04 Der Leitstrang wächst zusammenhängend Auf der oberen Matrize bewegt sich die Polymerase in dieselbe Richtung wie die Gabel und verlängert daher von einem Primer aus denselben Strang (orange). Basenfarben sind hier ausgeschaltet, um den neuen Strang zu zeigen.
05 Der Folgestrang entsteht in Stücken Der untere neue Strang muss von der Gabel weg wachsen. Die Polymerase baut ein Okazaki-Fragment rückwärts bis zum vorherigen auf, löst sich und beginnt am nächsten Primer erneut; so entsteht eine Reihe von Stücken.
06 Primer entfernt, Brüche geschlossen Die DNA-Polymerase I ersetzt jeden RNA-Primer durch DNA, ausgehend vom dahinterliegenden Fragment. Eine fehlende Bindung bleibt, ein Einzelstrangbruch, den DNA-Ligase schließt. Beobachten Sie den steigenden Okazaki-Zähler verbundener Fragmente.
07 Eine falsche Base zurücknehmen Hier hat die Polymerase ein G gegenüber einem T eingesetzt. Sie hält an, geht ein Nukleotid zurück, schneidet die falsche Base heraus und setzt die richtige ein. Schalten Sie „Korrekturlesen“ aus: Die falsche Base bleibt, während die Gabel vorauseilt.
08 Die Helikase selbst ziehen Ziehen Sie den gelben Helikasering entlang der Helix. Die Gabel öffnet sich so schnell, wie Sie ziehen, und „Geschwindigkeit“ folgt Ihrer Hand. Rückwärtsziehen bewirkt nichts: Eine Helikase bewegt sich mithilfe von ATP-Energie nur in eine Richtung.
09 Schnellere Gabel, längere Fragmente Die Primase beginnt in regelmäßigen Abständen einen neuen Primer, daher hängt die Länge jedes Okazaki-Fragments davon ab, wie weit die Gabel dazwischen gewandert ist. Im Modell kommt alle 2,8 Sekunden ein Primer: 14 nt bei 5 bp/s, 36 nt bei 13 bp/s und 8 nt bei 3 bp/s. In E. coli beginnt alle 1 bis 2 Sekunden ein neues Fragment.
10 Sie sind die Polymerase Drücken Sie „Nächste Base paaren“. Eine weiße Kugel markiert die nächste freie Stelle am Leitstrang, ein roter Ring die Matrizenbase. Wählen Sie ihren Partner: A für T, G für C. Bei eingeschaltetem „Korrekturlesen“ wird eine falsche Wahl wieder herausgeschnitten, ausgeschaltet bleibt die Fehlpaarung.
11 Zwei Kopien, jeweils zur Hälfte alt Nach dem Vorbeiziehen der Gabel gibt es zwei Doppelhelices. Jede enthält einen alten grauen und einen neuen farbigen Strang. Meselson und Stahl zeigten dies 1958 mit schwerem Stickstoff, wie die Röhrchen in der Ecke skizzieren.
Elterliche DNA Die beiden alten Stränge, dunkel- und hellgrau. Vor der Gabel sind sie noch umeinander gewunden, 2 nm breit, mit einer Windung alle 10,5 Basenpaare. Hinter der Gabel landet jeder in einer anderen Kopie. Basenpaare A paart sich mit T und C mit G, ein Paar alle 0,34 nm. Farben: A grün, T rot, G gelb, C blau, U (in RNA) violett. Schalten Sie „Basenpaarfarben“ aus, um stattdessen nach Strängen einzufärben. Topoisomerase Arbeitet an der Doppelhelix vor der Gabel. Das Öffnen der Stränge verdrillt die DNA davor stärker; Topoisomerase baut die Spannung ab, indem sie einen Strang schneidet und wieder verschließt. Helikase Löst die Wasserstoffbrücken zwischen den Basen und zieht die Stränge mit Energie aus ATP auseinander. Als Ring an der Stelle gezeichnet, an der sich die Stränge trennen. Einzelstrangbindende Proteine Kleine Proteine (grün), die freie Einzelstränge nahe der Gabel bedecken, damit sie sich vor dem Kopieren nicht wieder paaren. Sie sammeln sich auf der am längsten wartenden Folgestrangmatrize. Primase Eine RNA-Polymerase, die einen kurzen RNA-Primer auf die Matrize schreibt. DNA-Polymerase kann keinen Strang allein beginnen; sie braucht das freie 3′-Ende des Primers. RNA-Primer Kurze RNA-Stücke (violette Kugeln). Einer beginnt den Leitstrang; jedes Okazaki-Fragment am Folgestrang braucht einen eigenen. Echte Primer haben etwa 5 bis 10 Nukleotide, hier sind es 5. DNA-Polymerase und Klemme Zwei Polymerasen (blau), eine an jedem neuen Strang, jeweils durch eine ringförmige Gleitklemme an der DNA gehalten. Sie fügen Nukleotide nur an ein 3′-Ende an, sodass jeder neue Strang von 5′ nach 3′ wächst. Leitstrang Der neue Strang (orange), dessen 5′-nach-3′-Richtung zur Gabel weist. Er entsteht zusammenhängend von einem einzigen Primer aus und hält mit der Helikase Schritt. Folgestrang, Okazaki-Fragmente Der andere neue Strang (türkis, zwei Farbtöne). Seine 5′-nach-3′-Richtung weist von der Gabel weg, weshalb er rückwärts in Stücken entsteht. Modellfragmente haben 14 Nukleotide, echte etwa 1200 in Bakterien und 200 in Eukaryoten. DNA-Polymerase I In Bakterien entfernt dieses Enzym jeden RNA-Primer und füllt die Lücke mit DNA, ausgehend von der DNA des nächsten Fragments. In Eukaryoten übernehmen RNase H und andere Enzyme diese Aufgabe. DNA-Ligase Verschließt den Einzelstrangbruch zwischen zwei DNA-Stücken durch Bildung der letzten Phosphodiesterbindung. Ein Aufblitzen markiert jeden Verschluss, und die Fragmente werden zu einem Strang. Fehlpaarung Eine falsche Base, die die Polymerase eingesetzt hat. Bei eingeschaltetem „Korrekturlesen“ hält die Polymerase an, schneidet sie mit ihrer 3′-nach-5′-Exonuklease heraus und setzt die richtige ein. Ausgeschaltet bleibt die Fehlpaarung (Ring).