그림 43원리관
ATP 합성효소의 원리
미토콘드리아 속 ATP 합성효소의 회전자는 1초에 약 100바퀴 돌고, 한 바퀴마다 ATP를 세 개씩 내놓습니다.
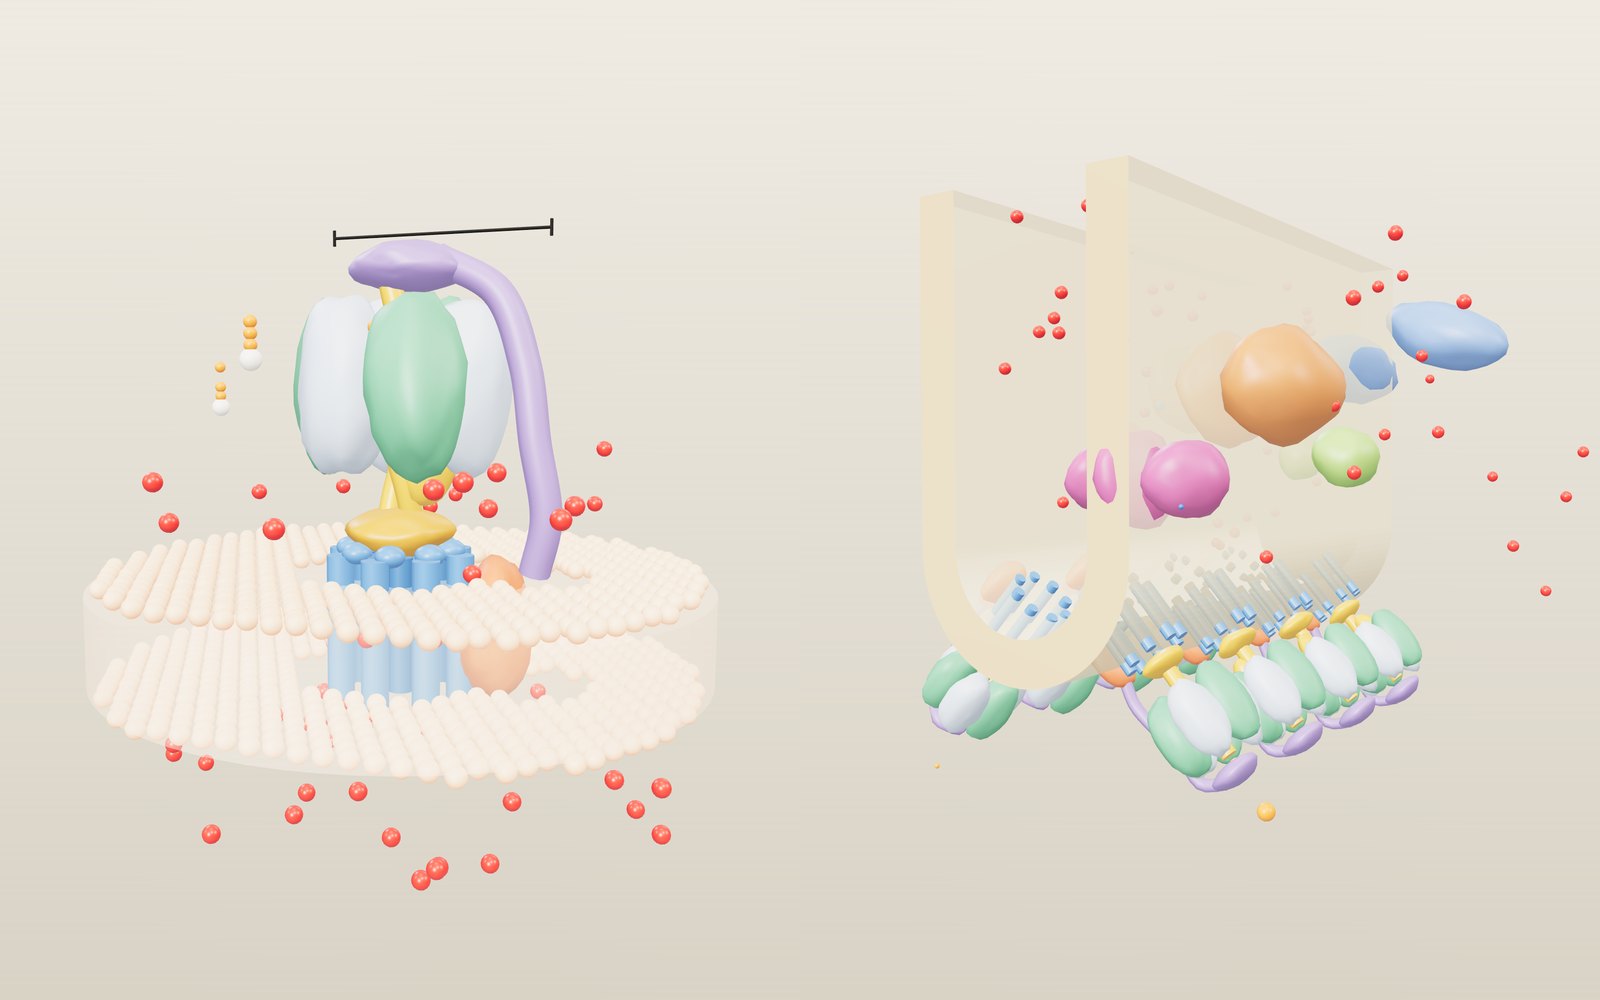
이 기기에서는 3D를 띄울 수 없습니다. 아래 안내 단계를 글로 볼 수 있습니다.
1 / 17 막에 박힌 기계미토콘드리아 내막에 박힌 ATP 합성효소를 단순하게 그린 모형입니다. 위쪽 머리의 지름이 10 nm이고, 그 위 막대가 축척입니다. 실제로 잰 표면이 아니라 매끈한 덩어리로 그렸습니다. 무대 아래 막대로 장면 다섯 개를 더 열 수 있습니다.
끌어서 돌리고, 휠이나 두 손가락으로 확대하세요.
세포 속 ATP는 어디서 올까요?
근육도, 신경도, DNA를 복사하는 효소도 모두 같은 연료를 씁니다. 아데노신 삼인산, ATP입니다. 세 번째 인산을 떼어 내면 나오는 에너지로 일을 하고, 다시 붙이면 다음에 또 쓸 수 있습니다. 쓰는 양은 엄청납니다. 노벨위원회에 따르면 어른은 쉬고 있을 때도 하루에 몸무게의 절반쯤 되는 ATP를 쓰고 다시 만들며, 힘든 일을 하면 1톤 가까이 됩니다. 세포는 ATP를 조금만 쌓아 두기 때문에 쓰는 만큼 바로 다시 만들어야 합니다.
그 일을 대부분 맡는 효소가 ATP 합성효소입니다. 미토콘드리아 내막, 세균의 세포막, 엽록체의 틸라코이드 막에 박혀 있습니다. 단백질로서는 드물게 돌면서 일하는 기계이기도 합니다. 이 전시는 분자 크기로 단순하게 만든 ATP 합성효소에서 시작해 다섯 곳을 더 찾아갑니다. 호흡 사슬이 있는 미토콘드리아 막의 주름, 빛을 받는 엽록체 막, 헤엄치는 세균, 비슷한 펌프가 ATP로 도는 리소좀, 그리고 회전자가 도는 모습을 처음 보여 준 1997년 실험의 유리판입니다. 무대 아래 막대로 여섯 장면을 오갈 수 있습니다.
막으로 만든 댐
에너지가 음식에서 곧바로 오지는 않습니다. 호흡은 음식에서 나온 전자를 막 단백질의 사슬을 따라 넘기고, 이 사슬은 그 에너지로 양성자를 기질(미토콘드리아 안쪽)에서 두 막 사이의 좁은 공간으로 퍼냅니다. 양성자가 한쪽에 쌓이면 막을 사이에 두고 농도와 전하의 차이가 생기는데, 이 둘을 합쳐 양성자 구동력이라고 부릅니다.
피터 미첼은 1961년에 이 화학삼투설을 내놓았고, 1978년에 노벨 화학상을 받았습니다. 세포가 에너지를 댐처럼 저장한다는 생각입니다. 높이 차이가 있으면 물은 내려가려 합니다. ATP 합성효소는 그 댐의 터빈입니다. 양성자는 이 효소를 통해서만 기질로 돌아갈 수 있고, 지나가면서 회전자를 돌립니다.
모형에서 양성자는 빨간 구슬입니다. 막 전위와 pH 차이 두 슬라이더가 양성자가 얼마나 세게 밀고 들어오는지를 정합니다. 어느 쪽이든 움직이면 막 아래 구슬 무리가 늘거나 줄고, 회전자는 빨라지거나 느려지고, 멈추거나 거꾸로 돕니다.
양성자 구동력을 계산하는 법
기질 밖의 양성자는 두 가지 이유로 안쪽으로 밀립니다. 기질이 바깥보다 음전하를 띠고, 양성자가 적어 pH가 높기 때문입니다. 미첼은 이 둘을 합친 힘을 밀리볼트 단위의 숫자 하나, 양성자 구동력 Δp로 적었습니다.
Δp = Δψ − 59 × ΔpH
Δψ는 기질의 전위에서 바깥의 전위를 뺀 값이고, ΔpH는 기질의 pH에서 바깥의 pH를 뺀 값입니다. 일하는 미토콘드리아에서는 Δψ가 음수, ΔpH가 양수여서 두 항 모두 Δp를 더 음수로 만들고, 음수가 클수록 양성자가 세게 밀고 들어옵니다. 59는 pH 1단위를 밀리볼트로 바꾸는 값입니다. ln 10 × RT/F를 계산하면 25 °C에서 59.16 mV, 체온인 37 °C에서 61.5 mV가 나옵니다. 모형은 59를 씁니다.
슬라이더의 처음 값은 Δψ −150 mV, ΔpH 0.80이어서 Δp = −150 − 59 × 0.80 = −197 mV입니다. 슬라이더를 움직일 때마다 판독 칸이 이 식을 다시 적어 보여 줍니다. 브랜드와 니콜스는 세포 속 미토콘드리아의 막 전위가 보통 150~180 mV라고 정리합니다. 미토콘드리아에서는 미는 힘의 대부분이 전기적인 차이입니다. 엽록체에서는 반대여서, 빛이 강할 때 대부분이 틸라코이드 막 양쪽의 pH 차이로 저장됩니다.
효소에게 중요한 것은 양성자 하나가 가져오는 에너지입니다. 양성자 1몰이 197 mV를 건너면 F × Δp = 96,485 × 0.197 ≈ 19 kJ이 나옵니다. 전시의 나머지 부분은 이 숫자로 계속 돌아옵니다.
막 속 부분, Fo
효소는 역사적인 이름이 붙은 두 부분으로 나뉩니다. 막 속에 있는 Fo는 올리고마이신 민감 인자(oligomycin-sensitive factor)에서 온 이름이고, 기질 쪽으로 튀어나온 손잡이 같은 F1은 인자 1(factor 1)입니다. 에프라임 래커 연구진이 1960년에 미토콘드리아에서 효소 전체를 분리했습니다.
Fo에서 움직이는 부분은 똑같은 작은 단백질이 고리로 모인 c 고리입니다. c 소단위마다 나선 두 개가 머리핀처럼 접혀 있고, 바깥 나선의 중간쯤에 산성 곁사슬이 있습니다(미토콘드리아에서는 글루탐산, 모형의 짙은 구슬). 고리 옆에는 돌지 않는 a 소단위가 있습니다. a 소단위는 양성자에게 반쪽짜리 통로 두 개를 내줍니다. 하나는 바깥 공간으로, 다른 하나는 기질로 열려 있습니다.
비결은 전하를 띤 곁사슬이 기름 같은 막 속을 향할 수 없다는 데 있습니다. c 소단위는 양성자가 글루탐산에 올라타 전하를 없앤 뒤에야 a 소단위에서 벗어나 돌 수 있습니다. 그래서 양성자는 첫 번째 반쪽 통로로 들어와 c 소단위에 실려 고리를 한 바퀴 돌고, 두 번째 반쪽 통로로 기질에 내립니다. 바깥에 양성자가 더 많으니 한쪽에서 더 자주 올라타고, 고리는 한 방향으로 돕니다. 포고리엘로프 연구진은 c15 고리의 결정 구조로, 이 자리가 지질을 향할 때는 닫혀 잠겨 있다가 a 소단위 앞에서만 열리는 모습을 보였습니다. 모형에서 고리 위의 구슬은 한 바퀴를 도는 중인 양성자입니다.
ATP를 만드는 부분, F1
F1은 소단위 여섯 개가 고리를 이룬 것입니다. α 셋과 β 셋이 귤 조각처럼 번갈아 있습니다. 노지 연구진은 이것을 반지름 약 5 nm의 통으로 설명했고, 그래서 모형의 머리를 지름 10 nm로 그렸습니다. 머리 위 막대가 그 10 nm입니다.
ATP를 만드는 것은 β 소단위뿐입니다. 가운데로는 주로 γ 소단위로 된 중심축이 지나가는데, 회전하는 부분의 반지름은 약 1 nm에 불과합니다. 축의 발은 c 고리에 붙어 있어 고리와 함께 돕니다. 반대편에서는 긴 말초 줄기가 a 소단위에서 F1 꼭대기의 덮개까지 이어져 α3β3 머리를 붙잡습니다. 이 팔이 없으면 머리가 축과 함께 돌아 버려 안에서 아무것도 바뀌지 않습니다.
γ 소단위는 대칭이 아닙니다. 한쪽이 불룩해서, 돌면서 β 소단위를 하나씩 눌러 모양을 바꿉니다. 머리 단면을 켜면 머리 가운데 여러분 쪽 절반이 사라져, 불룩한 부분이 지나가는 모습을 볼 수 있습니다.
세 자리가 번갈아 일합니다
폴 보이어는 수십 년 동안 동위원소 실험을 하며 이 효소의 특이한 점을 찾았습니다. 효소 안에서 ADP와 인산을 잇는 데는 에너지가 거의 들지 않았습니다. 에너지는 ADP와 인산을 충분히 단단히 붙잡는 데, 그리고 무엇보다 다 만든 ATP를 놓아주는 데 들었습니다. 그는 세 β 자리가 번갈아 세 상태를 거친다고 제안했습니다.
- 열림(O): 자리가 비어 있거나 막 ATP를 내보내는 중입니다.
- 느슨함(L): ADP와 인산이 느슨하게 붙습니다.
- 단단함(T): 자리가 닫히고 ADP와 인산이 ATP가 됩니다.
축이 120° 돌 때마다 모든 자리가 한 단계씩 넘어갑니다. 단단한 자리는 열려 ATP를 내보내고, 느슨한 자리는 닫히고, 열린 자리는 새 ADP와 인산을 받습니다. 보이어는 이것을 결합 변화 메커니즘이라 불렀고, 축이 돈다고 제안했습니다. β 자리 상태 색을 켜면 세 β 소단위가 열림은 옅은 색, 느슨함은 노란색, 단단함은 빨간색으로 바뀌고, 판독 칸에도 같은 상태가 글자로 나옵니다. 위에서 내려다보는 안내 단계에서는 ADP(흰 구슬과 주황 구슬)와 따로 온 인산이 ATP 하나가 되어 날아가는 모습을 따라갈 수 있습니다.
존 워커는 같은 효소를 구조에서부터 풀었습니다. 얀 피터 에이브럼스, 앤드루 레슬리와 함께 1994년에 소 심장의 F1 결정 구조를 2.8 Å으로 밝혔습니다. 세 β 소단위는 정말로 모양이 서로 달랐고 서로 다른 뉴클레오타이드를 붙들고 있었으며, 가운데에 비대칭인 γ가 있었습니다. 구조가 보이어의 메커니즘과 맞아떨어졌습니다. 보이어와 워커는 1997년 노벨 화학상의 절반을 나눠 받았고, 나머지 절반은 ATP로 도는 또 다른 막 효소인 나트륨-칼륨 펌프를 찾은 옌스 스코우가 받았습니다. 노벨위원회는 쉬는 동안 만든 ATP의 약 3분의 1을 이 펌프 하나가 쓴다고 적었습니다.
회전자가 멈추는 곳
회전자는 애초에 왜 앞으로 돌까요? 에너지를 세어 보면 알 수 있습니다. 한 바퀴를 돌면 양성자 n개가 막을 건너고(n은 c 소단위 수) ATP 3개가 생깁니다. 그러니 ATP 하나는 양성자 n/3개만큼의 에너지를 받습니다.
ATP 하나에 들어오는 에너지 = (n/3) × F × Δp
세포 안에서 ATP 하나를 만드는 데도 정해진 값이 듭니다. 인산화 전위라 하고 ΔGp로 적습니다. ATP, ADP, 인산이 얼마나 있느냐에 따라 달라지는데, 모형은 45 kJ/mol에서 시작하고 ATP 하나의 값 슬라이더로 바꿀 수 있습니다. 들어오는 에너지가 값보다 크면 회전자는 앞으로 돌며 ATP를 만듭니다. 작으면 ATP가 이겨 회전자를 거꾸로 밉니다. 둘이 같아지는 곳에서 회전자가 멈춥니다.
멈추는 Δp = 3 × ΔGp / (n × F)
소의 고리(n = 8)에서 50 kJ/mol이면 3 × 50,000 / (8 × 96,485) = 0.194 V로, 194 mV입니다. 45 kJ/mol이면 175 mV입니다. 판독 칸의 그래프는 고른 고리와 값에서 모형의 회전 속도를 Δp에 따라 그리고, 멈추는 점에 점선을, 지금 슬라이더 값에 점을 찍습니다. 조작 탭 아래의 표는 c8부터 c15까지 모든 고리 크기에 같은 계산을 합니다.
여기서 두 가지를 알 수 있습니다. 큰 고리일수록 낮은 기울기에서 멈춥니다. 한 바퀴에 양성자를 8개가 아니라 15개 가져오니, c15는 같은 45 kJ/mol을 93 mV에서 맞춥니다. 또 이 효소는 양쪽으로 돌 수 있습니다. 어느 쪽으로 돌지는 효소 안의 무엇이 정하는 것이 아니라 두 에너지의 균형이 정합니다. 모형의 속도 규칙(멈추는 점을 지나는 매끈한 곡선)은 그림을 위해 지어낸 것이지만, 멈추는 점의 위치는 계산한 값입니다.
거꾸로 돌 때
기울기를 멈추는 점보다 낮추거나 ATP 하나의 값을 올리면 판독 칸이 「ATP를 쓰며 양성자를 퍼냄」으로 바뀝니다. 이제는 머리에 ATP가 붙어 쪼개지고, 축이 120°씩 끊어 반대로 돕니다. c 고리는 양성자를 기질에서 막 바깥으로 퍼냅니다. 쓴 ATP 숫자가 올라갑니다.
건강한 미토콘드리아에서는 호흡 사슬이 기울기를 높게 유지하니 이런 일이 드뭅니다. 하지만 산소가 떨어지는 등 기울기가 무너지면, ATP 합성효소가 거꾸로 돌아 세포의 ATP를 몇 분 만에 다 써 버릴 수도 있습니다. 미토콘드리아는 이를 막는 브레이크를 갖고 있습니다. IF1이라는 작은 단백질입니다. 카베손 연구진은 2003년에 IF1이 F1의 α-β 사이 한 곳에 끼어들어 γ에 닿는 구조를 보였습니다. 모형에서 억제제를 IF1로 고르고 기울기를 낮추면, 회전자가 거꾸로 도는 대신 멈추고 나선이 붙잡는 동안 빛납니다.
세균은 거꾸로 도는 쪽을 쓸모 있게 씁니다. 산소가 없으면 대장균은 발효로 ATP를 만들고, ATP 합성효소를 거꾸로 돌려 양성자 기울기를 유지합니다. 편모를 돌리고 양분을 막 안으로 들이는 데 이 기울기가 필요하기 때문입니다. 세균 장면에서 산소를 끄면 이 모습을 볼 수 있습니다. 처음부터 거꾸로 돌도록 만들어진 친척도 있는데, V형 펌프 장면에 나옵니다.
효소를 멈추는 약과 독
이 효소 하나에 너무 많은 것이 걸려 있어서, 자연과 사람이 만든 여러 분자가 이 효소를 노립니다. 억제제 조작에서 다섯 가지를 볼 수 있습니다.
- 올리고마이신은 Fo라는 이름의 유래입니다. 시머스키 연구진은 2012년에 효모 c10 고리에 붙은 올리고마이신 구조를 풀었습니다. 고리 바깥면의 c 소단위 두 개 사이에 자리 잡고 양성자를 나르는 글루탐산을 덮어서, 양성자가 올라타지 못해 회전자가 멈춥니다. 붙는 자리의 아미노산은 효모와 사람이 같습니다. 실험실에서는 이 약으로 호흡 가운데 얼마가 ATP로 가고 얼마가 새는지를 잽니다.
- DCCD(다이사이클로헥실카보다이이미드)는 같은 카복실기와 반응해 영영 막아 버립니다. 포고리엘로프 연구진은 DCCD가 붙은 c15 고리로 양성자 자리가 열리고 닫히는 방식을 보였습니다. 모형에서는 글루탐산 구슬이 초록색으로 바뀝니다.
- 베다퀼린은 결핵약입니다. 안드리스 연구진이 2005년에 결핵균을 죽이는 화합물로 찾았고, 내성 돌연변이는 ATP 합성효소의 양성자 나르는 부분에서 생겼습니다. 2015년 프라이스 연구진은 미코박테리아 c9 고리에 붙은 구조를 풀었습니다. 약이 이온 자리를 덮어 고리가 양성자를 나르지 못합니다. 이들은 베다퀼린을 다제내성 결핵 치료제로 40년 만에 승인된 첫 약이라고 소개합니다. 2024년 연구는 이 약이 사람 효소의 c 고리에도 비슷한 자리에 붙을 수 있음을 보였습니다.
- DNP(2,4-다이나이트로페놀)는 효소를 건드리지 않습니다. 양성자를 지질 사이로 직접 날라 기울기를 무너뜨리므로, 음식이 ATP를 만들지 못하고 열로 탑니다. 1933년에는 다이어트 약으로 팔렸지만 위험할 만큼 체온을 올리며, 2011년 검토 논문은 발표된 사망만 62건으로 셌습니다. 모형에서는 양성자가 막을 곧장 가로지르고 회전자가 멈춥니다. 갈색지방은 UCP1이라는 자기 단백질로 같은 일을 조절하며 해서 몸을 데웁니다.
- IF1은 세포 자신의 브레이크로, 앞에서 본 대로 거꾸로 도는 쪽만 막습니다.
크기가 다른 고리들
c 고리의 크기가 ATP 하나의 값을 정합니다. 소단위가 n개면 ATP 하나에 양성자 n/3개가 듭니다. 와트 연구진은 2010년에 소 심장 미토콘드리아에서 c 소단위 8개를 찾았고, c 소단위 서열이 거의 모든 척추동물에서 같으니 척추동물은 거의 틀림없이 ATP 하나에 양성자 2.7개를 쓴다고 지적했습니다. 곰팡이, 세균, 엽록체는 9~15개짜리 고리를 씁니다. 조작 탭 아래 표에 고리 13개와 그것을 보여 주는 구조가 있습니다.
| 생물 | 고리 | ATP당 H⁺ | 구조 |
|---|---|---|---|
| 소 심장 미토콘드리아 | c8 | 2.67 | PDB 2XND |
| 미코박테륨 플레이 | c9 | 3.00 | PDB 4V1F |
| 효모 | c10 | 3.33 | PDB 1QO1 |
| 대장균 | c10 | 3.33 | PDB 5T4O |
| 일리오박터 타르타리쿠스 (Na⁺) | c11 | 3.67 | PDB 1YCE |
| 바실루스 슈도피르무스 OF4 | c13 | 4.33 | PDB 2X2V |
| 시금치 엽록체 | c14 | 4.67 | PDB 2W5J |
| 스피룰리나 | c15 | 5.00 | PDB 2WIE |
그럼 왜 모두 가장 작은 고리를 쓰지 않을까요? 작은 고리는 ATP를 싸게 만들지만 멈추는 점에 이르려면 기울기가 커야 합니다. 큰 고리는 약한 힘으로도 돌지만 양성자를 더 씁니다. 바실루스 슈도피르무스 OF4는 세포 밖에 양성자가 드문 알칼리성 물에 살며, c13 고리가 양성자 하나를 붙잡힌 물 분자와 나눠 가집니다. 일리오박터 타르타리쿠스는 한발 더 나아가 양성자 대신 나트륨 이온을 나릅니다. 볼마르 연구진은 시금치 c14 고리의 이온 자리 간격이 10.6~10.8 Å으로 일리오박터 c11 고리와 같다는 것을 찾았습니다. 소단위가 많은 고리는 그만큼 둘레가 넓을 뿐입니다.
효소 장면에서 c 고리 크기를 바꾸면 멈추는 점과 ATP 하나의 값이 함께 움직입니다. 고리 슬라이더는 잰 생물이 있는 크기에 그 이름을 붙입니다. c12는 표에 없습니다.
미토콘드리아 속
미토콘드리아 장면을 열어 보세요. 미토콘드리아 내막은 크리스타라는 주름으로 접혀 있고, 장면은 그 주름 하나를 앞쪽을 잘라 보여 줍니다. 주름 바깥은 기질입니다. 주름 안쪽은 두 막 사이의 공간과 이어진 좁은 공간이며, 퍼낸 양성자가 여기 모입니다.
주름 옆면의 복합체 넷이 음식의 전자를 산소까지 넘깁니다.
- 복합체 I은 NADH에서 전자 두 개를 받아 막 안을 돌아다니는 작은 운반체 유비퀴논에 넘깁니다. 세포에서 가장 큰 효소 가운데 하나로, 주, 비노스쿠마르, 허스트가 2016년에 소의 효소에서 소단위 45개를 모두 자리 잡았습니다. 전자 두 개마다 양성자 4개를 퍼냅니다.
- 복합체 II는 숙신산의 전자를 같은 유비퀴논에 넘기지만 양성자는 퍼내지 않습니다. 시트르산 회로의 일부이기도 합니다.
- 복합체 III, 사이토크롬 bc1은 유비퀴놀의 전자를 사이토크롬 c로 넘기며, 전자 두 개마다 바깥쪽에 양성자 4개를 내놓습니다.
- 복합체 IV, 사이토크롬 c 산화효소는 전자를 산소에 넘겨 물을 만들고 양성자 2개를 더 퍼냅니다.
그래서 NADH의 전자 두 개는 양성자 10개를, 숙신산의 전자 두 개는 6개만 옮깁니다. 와트 연구진은 이 숫자로 수율을 계산했습니다. c8 고리로 ATP 하나를 만드는 데 양성자 8/3 = 2.67개가 들고, 그 ATP를 미토콘드리아 밖으로 내보내는 데 하나가 더 듭니다. ATP와 ADP를 맞바꾸는 운반체와 인산을 들이는 운반체를 합쳐 양성자 하나만큼입니다. 그래서 ATP 하나를 내보내는 데 양성자 3.67개입니다.
- NADH: 10 / 3.67 = 산소 원자 하나에 ATP 2.7개
- 숙신산: 6 / 3.67 = 산소 원자 하나에 ATP 1.6개
이것이 P/O 비입니다. 힝클이 측정값을 모은 총설에서는 약 2.5와 1.5로, 일부 양성자가 효소를 거치지 않고 막을 새어 돌아오기 때문에 조금 낮습니다. 판독 칸은 계산한 비와, 모형이 돌면서 센 비를 함께 보여 줍니다. 연료를 숙신산으로 바꾸면 둘 다 떨어집니다.
이 장면의 ATP 합성효소는 주름 능선에 쌍으로 앉아 있습니다. 데이비스 연구진은 효모 미토콘드리아를 전자 극저온 단층촬영으로 보고, 쌍이 86° 벌어진 V자를 이루어 능선을 따라 줄지어 있다는 것을 찾았습니다. 쌍을 만들지 못하는 효모에는 제대로 된 크리스타가 없고, 풍선처럼 부푼 것만 있거나 아예 없었습니다. 궈, 뷸러, 루빈스타인의 Fo 쌍 원자 모형은 쌍이 막을 휘는 방식을 보여 줍니다. 모형에서는 능선을 따라 V자 넷이 있고, 각자 자기 회전자를 돌립니다.
이 장면은 작은 양성자 회로를 돌립니다. 호흡 사슬은 기울기가 낮을 때 빨리 퍼내고 높아지면 느려지며(호흡 조절), ATP 합성효소와 약간의 누출이 양성자를 들여보냅니다. 여기서도 억제제를 골라 보세요. 올리고마이신은 ATP 합성효소를 멈추게 하므로 기울기가 오르고 호흡이 거의 멈춥니다. DNP는 구멍을 내므로 기울기가 떨어지고, 호흡은 내달리고, 연료는 열이 됩니다. 이때 판독 칸에는 효소가 ATP를 쓰며 거꾸로 도는 것으로 나오는데, 짝풀린 미토콘드리아는 IF1이 막지 않으면 실제로 그렇게 합니다. 산소를 끄면 사슬 전체가 멈춥니다.
엽록체 속
엽록체 장면은 틸라코이드 막의 한 조각입니다. 위가 스트로마, 아래가 루멘(틸라코이드 안쪽)입니다. 여기서는 에너지가 음식이 아니라 빛에서 오지만 효소는 같은 종류이고, 머리는 스트로마 쪽을 향합니다.
- 광계 II는 빛을 받아 물에서 전자를 빼냅니다. 우메나 연구진의 1.9 Å 구조에서 이 일이 일어나는 Mn₄CaO₅ 덩어리가 보입니다. 물 분자 두 개에서 O₂ 하나, 전자 네 개, 양성자 네 개가 나와 루멘에 풀립니다.
- 플라스토퀴논이 전자를 막 속으로 날라 사이토크롬 b6f에 넘기고, b6f는 양성자를 루멘으로 더 옮깁니다.
- 루멘의 작은 구리 단백질 플라스토사이아닌이 전자를 광계 I에 넘기고, 광계 I은 빛을 한 번 더 받아 전자를 페레독신과 NADP⁺로 올립니다. 스트로마에서 NADPH가 생깁니다.
크레이머와 에번스는 이 선형 전자 전달에서 O₂ 하나마다 양성자 12개가 루멘으로 가고 NADPH 2개가 생긴다고 셉니다. 엽록체 효소는 c14 고리여서 ATP 하나에 양성자 14/3 = 4.67개가 들고, 양성자 12개로 ATP 12 × 3 / 14 = 2.57개를 만듭니다. NADPH 하나에 ATP 1.29개인데, 캘빈 회로는 NADPH 2개마다 ATP 3개, NADPH 하나에 1.5개를 씁니다. 모자란 만큼은 광계 I 둘레를 도는 순환 전자 전달처럼 NADPH 없이 양성자만 퍼내는 다른 길이 채웁니다. 판독 칸은 두 비를 보여 주고, 고리를 바꾸면 다시 계산합니다.
루멘은 산성이 됩니다. 다키자와 연구진은 살아 있는 애기장대 잎에서 루멘 pH를 약한 빛에서 약 7.5, 빛이 강하고 CO₂가 적을 때 약 5.7로 추정했습니다. 판독 칸의 그래프는 빛이 바뀔 때 루멘 pH를 따라갑니다. 모형은 스트로마를 pH 8로 고정하고 기울기의 70 %를 ΔpH로 저장하는데, 둘 다 모형에서 정한 값입니다.
빛을 0으로 내려 보세요. 잠시 뒤 판독 칸에 γ 스위치가 효소를 잠갔다고 나옵니다. 하안 연구진이 2018년에 푼 엽록체 효소 전체 구조(소단위 26개)에는 γ 안에 산화환원 스위치 역할을 하는 β-머리핀이 있어 어두울 때 회전을 막습니다.
엽록체 효소는 고전 실험의 주인공이기도 합니다. 1966년 앙드레 야겐도르프와 어니스트 우리베는 시금치 틸라코이드를 산에 담갔다가 ADP와 인산이 든 알칼리성 용액으로 옮겨, 어둠 속에서 ATP를 얻었습니다. 미첼의 생각대로 pH 차이만으로 충분했습니다.
세균과 편모
세균에게는 미토콘드리아가 없습니다. 호흡 사슬이 세포막 자체에 있어서 양성자를 안팎 두 막 사이의 얇은 공간인 주변세포질로 퍼냅니다. 세균 장면은 뒤쪽 오른편에 길이 약 2 µm의 대장균을, 앞쪽에 그 내막의 한 조각을 세포보다 약 50배 크게 그려 보여 줍니다.
그 조각에서 두 기계가 같은 기울기를 씁니다. 하나는 ATP 합성효소입니다. 필링게임 연구진은 2001년에 대장균이 c10 고리를 쓴다는 것을 보였고, 솝티 연구진의 저온 전자현미경 구조에는 소단위 10개와, 뻗어서 효소를 막을 수 있는 ε 소단위가 보입니다. 다른 하나는 편모 모터입니다. 하워드 버그는 이 모터를 지름 약 45 nm에 약 20가지 부품으로 된 것으로 설명합니다. 여기서는 ATP 합성효소와 같은 축척으로 그렸더니 네 배 넘게 넓습니다. 가장자리를 둘러싼 고정자들을 지나는 양성자가 회전자를 돌리며, 마이스터, 로, 버그는 양성자 흐름이 모터 속도에 비례한다는 것을 보였습니다.
ATP 합성효소와 달리 이 모터는 명령에 따라 방향을 바꿉니다. CheY라는 단백질이 인산을 달면 모터 아래쪽 C 고리에 붙어 회전을 반시계에서 시계 방향으로 바꿉니다. 대장균에서 반시계로 돌면 섬유가 다발로 감겨 세균이 헤엄치고, 시계로 돌면 다발이 풀려 세균이 구르다가 새 방향으로 나아갑니다. 편모 시계 방향을 켜 보세요. 분홍 CheY 구슬이 붙고, 섬유가 흩어지고, 세균이 구릅니다.
산소를 꺼 보세요. 호흡이 멈추고 기울기가 c10 고리의 멈추는 점 아래로 떨어지면, ATP 합성효소가 발효로 얻은 ATP를 써서 거꾸로 돌며 양성자를 퍼내 모터를 계속 돌립니다. 기울기는 조금 낮은 곳에서 자리를 잡고, 세균은 더 느리게 계속 헤엄칩니다.
거꾸로 돌도록 만든 펌프
ATP 합성효소의 친척 가운데는 ATP를 쓰는 것이 본업인 것도 있습니다. 액포형이라고도 하는 V형 ATP가수분해효소는 세포 속 칸으로 양성자를 퍼넣어 산성으로 만듭니다. 세포의 소화 주머니인 리소좀은 안쪽을 pH 4.5~5로 유지하는데, 그래야 리소좀 효소가 일합니다. 민델의 총설에 따르면 펌프 혼자서는 해낼 수 없습니다. 양성자가 들어가면 전하가 쌓이므로 다른 이온도 함께 움직여야 합니다. 염소-양성자 교환체 ClC-7이 그 답의 일부이며, 장면에서 펌프 옆에 보입니다.
V형 펌프 장면은 리소좀 막 조각 위의 펌프 둘과, 뒤쪽에 작게 그린 리소좀 전체를 보여 줍니다. 리소좀의 색은 안쪽 pH를 따라 바뀝니다. 부품은 낯익습니다. A 소단위 셋과 B 소단위 셋(β와 α에 해당)으로 된 머리, 가운데 회전자, 막 속의 고리가 있습니다. 다른 점도 눈에 보입니다. 자오, 벤레크비르, 루빈스타인의 효모 효소 저온 전자현미경 구조에는 말초 줄기가 하나가 아니라 셋이고, 고리는 한 종류가 아닌 프로테오리피드로 이루어져 있습니다. 마자브자파리 연구진은 나중에 이것들이 c8, c′, c″임을 밝혔습니다. 무라타 연구진은 엔테로코쿠스 히라이의 나트륨 펌프에서 소단위 10개짜리 회전자를 풀었습니다.
V형 효소에는 F형에 없는 스위치도 있습니다. 두 부분이 떨어질 수 있습니다. 효모를 포도당 없이 굶기면 V1 머리가 Vo 고리에서 떨어지고 펌프가 멈춥니다. 마자브자파리 연구진은 바로 이 성질로 떨어진 Vo 고리를 얻어 원자 모형을 만들었습니다. 굶기기: V1 분리를 켜면 머리가 들려 떨어지고, 루멘은 천천히 중성 쪽으로 돌아갑니다.
도는 모습을 보다
1997년까지 회전은 추론일 뿐이었습니다. 노지 히로유키, 야스다 료헤이, 요시다 마사스케, 기노시타 가즈히코는 F1을 β 소단위 쪽으로 유리 표면에 거꾸로 붙이고, γ 소단위에 형광 액틴 섬유를 달고 ATP를 넣었습니다. 현미경 아래에서 섬유는 100바퀴 넘게 돌았고, 막 쪽에서 보면 언제나 반시계 방향이었습니다. F1 하나로는 ATP를 만들지 못합니다. ATP를 주면 그것을 분해하며 합성할 때와 반대 방향으로 축을 돌립니다.
회전 실험 장면은 이 실험을 다시 만든 것입니다. 큰 화면은 현미경이 본 모습입니다. 유리와, 한쪽 끝을 축으로 도는 초록 섬유가 보입니다. 옆의 작은 그림은 F1 자체를 약 50배 크게 그린 것으로, 고정된 머리 안에서 γ가 돕니다.
섬유가 정해진 속도로 도는 것은 아닙니다. 모터는 약 40 pN·nm의 토크로 밀고, 물은 섬유를 붙잡습니다. 한쪽 끝을 축으로 도는 막대의 저항은 길이의 세제곱에 따라 커집니다.
저항 = (4π/3) η L³ / (ln(L / 2r) − 0.447)
η는 물의 점성, r은 섬유의 반지름입니다. 1 µm 섬유는 1초에 약 6.3바퀴, 2 µm 섬유는 1초에 한 바퀴도 못 돕니다. 액틴 길이를 바꾸면 판독 칸이 다시 계산하며, 「표지의 저항」이라고 나오면 효소가 아니라 섬유가 속도를 정한다는 뜻입니다.
뒤의 연구는 더 작은 표지를 썼습니다. 야스다 연구진은 1998년에 ATP가 적을 때 섬유가 ATP 하나에 120°씩 끊어 움직이고, 한 걸음의 일이 부하가 달라도 거의 같으며 ATP 하나를 가수분해할 때의 자유 에너지와 비슷하다는 것을 찾았습니다. 2001년에는 모터를 거의 느리게 하지 않을 만큼 가벼운 40 nm 금 알갱이로 한 걸음을 약 90°와 30°의 작은 걸음으로 나누었고, ATP가 넉넉할 때 1초에 약 130바퀴를 쟀습니다. 사카키 연구진은 ATP가 2 mM, 60 nM, 2 nM일 때 모두 약 40 pN·nm의 같은 토크와, 2 × 10⁷ /M/s의 결합 속도를 찾았습니다.
모형은 이 숫자를 씁니다. ATP 하나가 붙기까지 평균 1 / (kon × [ATP])의 무작위 시간을 기다리고, 그다음 표지가 토크로 끌 수 있는 만큼 빠르게 120°를 돕니다. ATP 농도를 0.2 µM 근처로 낮추면 기다림이 도는 시간보다 길어져 섬유가 뜀뛰기를 하고, 그래프에 계단이 그려집니다. 금 알갱이를 고르면 알갱이가 모터를 거의 늦추지 않아 걸음이 또렷해지고, 판독 칸에는 ATP 결합이 속도를 정한다고 나오며 따라가 볼 수 있게 재생 속도가 느려집니다.
마지막 단계는 실험을 거꾸로 돌리는 것이었습니다. 이토 연구진은 2004년에 γ에 자석 알갱이를 달고 전자석으로 거꾸로 돌렸고, 용액에서 ATP가 나왔습니다. 롱들레 연구진은 F1 하나씩을 몇 펨토리터 크기의 방에 가두고, 작은 ε 소단위가 있으면 억지로 돌린 회전의 최대 77 %가 ATP가 된다는 것을 찾았습니다. 자석 알갱이를 고르고 자석으로 거꾸로를 켜면 코일이 차례로 빛나고, 알갱이가 시계 방향으로 돌며 120°마다 만든 ATP가 하나씩 늘어납니다.
숫자로 확인하기
c 소단위 하나는 한 바퀴에 양성자 하나를 나르고, 한 바퀴에 ATP 3개가 생깁니다. 그래서 ATP 하나에 드는 양성자 수는 c 소단위 수를 3으로 나눈 값입니다. 소의 고리는 8 ÷ 3 = 2.67, 효모와 대장균은 10 ÷ 3 = 3.33, 시금치는 14 ÷ 3 = 4.67, 스피룰리나는 15 ÷ 3 = 5.00입니다.
와트 연구진은 미토콘드리아의 회전 속도를 1초에 약 100바퀴로 제시합니다. 한 바퀴에 ATP 3개이니 효소 하나가 1초에 ATP 약 300개를 만들고, c 소단위가 8개이니 1초에 양성자 약 800개가 지나갑니다. 모형은 구슬을 따라갈 수 있게 약 100배 느린 1초에 최대 1.2바퀴로 돕니다.
노지 연구진은 약 40 pN·nm의 토크를 쟀습니다. 120° 한 걸음은 2π/3 라디안이므로 한 걸음의 일은 약 40 × 2.09 ≈ 84 pN·nm로, 8.4 × 10⁻²⁰ J입니다. ATP 하나는 50 kJ/mol일 때 50,000 / (6.022 × 10²³) ≈ 8.3 × 10⁻²⁰ J, 83 pN·nm를 가집니다. 두 숫자가 거의 같습니다. 야스다 연구진이 보고한 대로 모터는 화학 에너지를 거의 다 일로 바꿉니다. 회전 실험 판독 칸이 둘을 보여 주고, ATP 에너지는 ATP 하나의 값 슬라이더를 따라갑니다.
멈추는 점은 같은 계산을 거꾸로 한 것입니다. 50 kJ/mol에서 c8 고리는 (8/3) × 96,485 × Δp = 50,000 J이어야 하므로 Δp = 0.194 V입니다. c14 고리는 0.111 V, c10 고리는 0.155 V에서 균형을 이룹니다.
하루치 ATP
사람은 하루에 ATP를 얼마나 만들까요? 조작 탭 아래 실험 칸에 작은 계산기가 있습니다. 산소에서 시작합니다. 운동 검사에서 쓰는 쉬는 상태의 기준인 1 MET은 1분에 체중 1 kg당 산소 3.5 mL이므로, 70 kg인 어른은 쉴 때 1분에 약 245 mL를 들이마십니다. 하루면 245 × 1440 = 352,800 mL, 352.8 L이고, 1몰에 22.414 L(산소 섭취량을 적는 기준인 0 °C, 1기압의 기체 부피)로 나누면 O₂ 약 15.7 mol, 산소 원자로는 31.5 mol입니다.
P/O 비 2.5로 계산하면 ATP 31.5 × 2.5 ≈ 79 mol이 나옵니다. ATP는 1몰에 507.18 g이므로 79 mol은 약 40 kg, 몸무게의 절반을 조금 넘습니다. 몸무게의 절반쯤이라는 노벨위원회의 숫자와 맞습니다. 힘든 일을 하면 산소 섭취량이 몇 배로 늘고 하루치 ATP도 따라 늘어납니다. 계산기는 거꾸로도 셉니다. P/O 비 2.5에서 70 kg인 사람의 하루치 ATP가 몸무게와 같아지려면 1분에 산소 약 430 mL가 필요합니다.
효소는 몇 개나 있어야 할까요? 79 mol은 4.7 × 10²⁵개입니다. 1초에 300개를 만드는 효소 하나는 하루에 2.6 × 10⁷개를 만들므로, 몸에는 쉬지 않고 도는 효소가 약 1.8 × 10¹⁸개 필요합니다. 이 모두가 회전율입니다. 몸은 어느 순간에나 ATP를 조금만 갖고 있고 그것을 거듭 다시 만듭니다.
효소가 고장 나면
양성자가 지나가는 고정자 부분인 a 소단위는 미토콘드리아 자신의 DNA에 있는 유전자 MT-ATP6로 만듭니다. 미국 국립의학도서관의 MedlinePlus Genetics는 이 유전자의 변이로 생기는 질환을 정리합니다. 보통 영아기나 이른 아동기에 시작하는 진행성 뇌 질환인 리 증후군 환자의 약 10 %에서 MT-ATP6 변이가 발견되며, 가장 흔한 것은 T8993G로 적는 염기 하나의 변화입니다. 같은 변이가 NARP(신경병증, 운동실조, 망막색소변성)라는 더 가벼운 질환을 일으키기도 합니다. 세포마다 미토콘드리아가 많은데, 증상의 무게는 변이를 가진 미토콘드리아의 비율을 따르는 경향이 있습니다. NARP에서는 보통 70~90 %, 리 증후군에서는 90 % 넘게입니다.
라이 연구진이 2023년에 푼 사람 효소 구조에 질환 돌연변이를 표시해 보니, 대부분이 소단위끼리 닿는 곳에 있어 기계 전체를 약하게 만들 수 있었습니다. 이 전시는 의학 자료가 아닙니다. 건강에 관한 질문은 의사에게 물어보세요.
모형에서 뺀 것
- 모양은 소단위가 있는 자리에 놓은 매끈한 덩어리입니다. 표에 적은 PDB 구조에서 잰 실제 단백질 표면이 아닙니다.
- 속도 규칙은 모형을 위해 지어낸 것으로, 계산한 멈추는 점을 지나는 매끈한 곡선입니다. 실제 효소의 힘과 속도 관계는 더 복잡하고, 실제 회전자는 약 100배 빠릅니다.
- 합성할 때 모형은 양성자 하나에 한 칸씩 작게 끊어 돕니다. 거꾸로 돌 때는 F1에서 잰 120° 걸음을 보여 주지만 90°와 30° 작은 걸음은 없으며, 이것은 회전 실험의 금 알갱이에서만 나옵니다.
- 머피 연구진은 120° 한 걸음의 처음 30°쯤은 F1 머리도 유연한 경첩 위에서 회전자와 함께 돈다는 것을 찾았습니다. 모형은 머리를 고정해 두었습니다.
- 축 아래쪽의 작은 소단위들은 한 덩어리로 그렸고, 다른 장면의 ATP 합성효소들은 단순한 모양 하나를 함께 씁니다.
- 미토콘드리아, 엽록체, 세균 장면의 양성자 회로와 V형 펌프 장면의 pH 곡선은 속도를 지어낸 것입니다. 비율(양성자 10개와 6개, O₂ 하나에 양성자 12개, ATP 하나에 n/3개)은 출처에서 가져왔습니다.
짧은 역사
- 1929: 카를 로만이 ATP를 발견합니다. 알렉산더 토드가 1948년에 합성합니다.
- 1939~1941: 프리츠 리프만이 ATP가 세포 곳곳으로 에너지를 나른다는 것을 보입니다.
- 1957: 옌스 스코우가 나트륨-칼륨 펌프를 보고합니다.
- 1960: 에프라임 래커 연구진이 미토콘드리아에서 효소를 분리합니다.
- 1961: 피터 미첼이 화학삼투설을 내놓습니다. 1978년 노벨상.
- 1966: 야겐도르프와 우리베가 산성 물로 어둠 속에서 ATP를 만듭니다.
- 1974: 래커와 슈퇴케니우스가 인공 소포에서 빛으로 ATP를 만듭니다.
- 1994: 에이브럼스, 레슬리, 루터, 워커가 F1 구조를 밝힙니다.
- 1997: 노지 연구진이 축이 도는 것을 봅니다. 보이어, 워커, 스코우가 노벨 화학상을 나눠 받습니다.
- 2001: 야스다 연구진이 90°와 30° 작은 걸음을 나눠 봅니다.
- 2004: 이토 연구진이 자석으로 F1을 돌려 ATP를 만듭니다.
- 2010: 와트 연구진이 포유류의 c8 고리를 찾습니다.
- 2015~2023: 저온 전자현미경이 소, 효모, 세균, 엽록체, 사람의 효소 전체를 회전 상태별로 보여 줍니다.
자주 묻는 질문
ATP 합성효소는 왜 돌아야 할까요?
세 β 자리는 정해진 순서로 모양을 바꿔야 하고, 에너지는 몇 나노미터 떨어진 막 속의 양성자에서 옵니다. 도는 축이 에너지를 한곳에서 다른 곳으로 옮기며 세 자리를 차례로 움직입니다.
ATP 하나를 만드는 데 양성자가 몇 개 필요할까요?
c 고리의 크기에 달려 있습니다. c 소단위 수를 3으로 나누면 됩니다. 소와 거의 틀림없이 사람의 미토콘드리아처럼 c 소단위가 8개면 약 2.7개입니다. 곰팡이, 세균, 엽록체의 915개짜리 고리는 35개가 듭니다. ATP를 미토콘드리아 밖으로 내보내는 데 양성자가 하나쯤 더 듭니다.
양성자 구동력이 무엇인가요?
막을 사이에 두고 양성자를 미는 힘을 밀리볼트로 적은 것입니다. Δp = Δψ − 59 × ΔpH로, 전기적 차이에 pH 차이를 밀리볼트로 바꿔 더합니다. 미토콘드리아에서는 약 200 mV이고 대부분이 전기적 차이입니다.
왜 pH 1에 59밀리볼트인가요?
양성자 농도가 열 배 차이(pH 1단위) 나면 ln 10 × RT/F만큼의 전압과 같은 에너지를 가집니다. 25 °C에서 59.16 mV, 37 °C에서 61.5 mV입니다.
ATP 합성효소는 거꾸로 돌 수 있나요?
네. 기울기가 약하거나 ATP가 넉넉하면 ATP가 F1을 돌리고, 축은 반대로 돌며 c 고리가 양성자를 막 너머로 퍼냅니다. 1997년 회전 실험의 F1이 이렇게 돌았습니다. 미토콘드리아는 억제 단백질 IF1로 이를 막고, 세균은 산소가 없을 때 이것으로 기울기를 지킵니다.
회전자는 어디서 멈추나요?
양성자 n/3개가 가져오는 에너지가 ATP 하나의 값과 같아지는 곳입니다. Δp = 3 × ΔGp / (n × F)이며, c8에서 50 kJ/mol이면 194 mV입니다.
왜 생물마다 고리 크기가 다를까요?
작은 고리는 ATP 하나를 적은 양성자로 만들지만 강한 기울기가 필요하고, 큰 고리는 약한 기울기로도 돌지만 양성자를 더 씁니다. 생물은 자기가 유지할 수 있는 기울기에 고리를 맞춘 것으로 보입니다. 척추동물은 c8, 엽록체는 c14, 알칼리성 물에 사는 세균은 c13을 씁니다.
ATP 합성효소는 얼마나 큰가요?
F1 머리는 지름이 약 10 nm, 그 안의 γ 회전자는 약 2 nm입니다. 세균의 편모 모터는 약 45 nm입니다. 모형의 c 고리, a 소단위, 말초 줄기는 그 머리에 맞춰 그린 것이며 크기는 그림을 위한 추정입니다.
얼마나 빨리 돌까요?
와트 연구진에 따르면 미토콘드리아에서 1초에 약 100바퀴입니다. F1을 따로 떼어 ATP를 넉넉히 주면, 야스다의 2001년 실험에서 1초에 약 130바퀴까지 돌았습니다.
몸은 하루에 ATP를 얼마나 만들까요?
노벨위원회에 따르면 쉴 때 몸무게의 절반쯤입니다. 산소 섭취로 계산하면 70 kg인 어른이 1분에 245 mL, P/O 비 2.5일 때 약 79 mol, 40 kg입니다.
DNP는 무엇을 하고, 왜 위험한가요?
DNP는 양성자를 ATP 합성효소를 거치지 않고 막 너머로 날라서, 음식의 에너지를 열로 바꿉니다. 1930년대에 다이어트 약으로 팔렸지만 생명을 위협할 만큼 체온을 올리며, 2011년 검토 논문은 발표된 사망만 62건으로 셌습니다.
결핵약은 ATP 합성효소에 어떻게 듣나요?
베다퀼린은 미코박테리아 효소의 c 고리에 붙어 이온 자리를 덮습니다. 고리가 양성자를 나르지 못하니 효소가 멈춥니다.
V형 ATP가수분해효소는 무엇인가요?
ATP로 돌도록 만들어진 ATP 합성효소의 친척입니다. 리소좀 같은 칸에 양성자를 퍼넣어 산성으로 만듭니다. 말초 줄기가 셋이고, 두 부분이 떨어지면 꺼집니다.
ATP 합성효소로 노벨상을 받은 사람은 누구인가요?
폴 보이어와 존 워커가 1997년 노벨 화학상의 절반을 나눠 받았습니다. 보이어는 결합 변화 메커니즘으로, 워커는 그것을 확인한 구조로 받았습니다. 나머지 절반은 나트륨-칼륨 펌프를 찾은 옌스 스코우가 받았습니다. 피터 미첼은 화학삼투설로 1978년에 상을 받았습니다.
편모 모터는 ATP 합성효소와 같은 집안인가요?
둘 다 막을 건너는 이온 흐름으로 도는 회전 모터지만, 서로 다른 단백질로 만들어졌습니다. 편모 모터가 지름 약 45 nm로 훨씬 크고, 방향을 바꿀 수 있습니다.
용어
- ATP: 아데노신 삼인산. 세포가 화학 에너지를 나를 때 쓰는 분자입니다.
- 양성자 구동력(Δp): 막을 사이에 두고 양성자를 미는 힘. Δψ − 59 × ΔpH, 단위는 밀리볼트입니다.
- 막 전위(Δψ): 막 양쪽의 전기적 차이입니다.
- 인산화 전위(ΔGp): 세포 안의 조건에서 ATP 하나를 만드는 데 드는 에너지입니다.
- Fo: ATP 합성효소의 막 속 부분. c 고리, a 소단위, 말초 줄기의 아랫부분으로 이루어집니다.
- F1: ATP를 만드는 부분. 중심축을 둘러싼 α 소단위 셋과 β 소단위 셋입니다.
- c 고리: 양성자가 지나가며 돌리는 c 소단위의 고리입니다.
- 중심축: γ 소단위와 그 발. c 고리에 붙어 F1 안에서 돕니다.
- 말초 줄기: 도는 축에 맞서 F1을 붙잡아 두는 팔입니다.
- 결합 변화 메커니즘: 세 β 자리가 열림, 느슨함, 단단함 상태를 번갈아 거친다는 보이어의 모형입니다.
- P/O 비: 호흡이 쓰는 산소 원자 하나당 만드는 ATP 수입니다.
- 크리스타: 미토콘드리아 내막의 주름입니다.
- 틸라코이드: 명반응이 일어나는 엽록체 안의 막 주머니입니다.
- 짝풀림제: ATP를 만들지 않고 양성자를 막 너머로 돌려보내는 분자입니다.
- V형 ATP가수분해효소: ATP로 도는 회전식 양성자 펌프로, ATP 합성효소의 친척입니다.
- CheY: 인산을 달면 편모 모터를 시계 방향으로 바꾸는 신호 단백질입니다.
출처
- NobelPrize.org, Press release: The Nobel Prize in Chemistry 1997 (half body weight of ATP per day, almost a ton in hard work, Lohmann 1929, Lipmann 1939 to 1941, Todd 1948, Racker 1960, Fo and F1 names, Mitchell 1961 and 1978, binding change mechanism, Na⁺,K⁺-ATPase uses a third of ATP at rest). https://www.nobelprize.org/prizes/chemistry/1997/press-release/ (checked 18 October 2026)
- NobelPrize.org, The Nobel Prize in Chemistry 1978, summary. https://www.nobelprize.org/prizes/chemistry/1978/summary/ (checked 18 October 2026)
- Mitchell P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature 191, 144 (1961). https://doi.org/10.1038/191144a0 (checked 18 October 2026)
- Boyer PD. The ATP synthase, a splendid molecular machine. Annual Review of Biochemistry 66, 717 (1997). https://doi.org/10.1146/annurev.biochem.66.1.717 (checked 18 October 2026)
- Abrahams JP, Leslie AGW, Lutter R, Walker JE. Structure at 2.8 Å resolution of F1-ATPase from bovine heart mitochondria. Nature 370, 621 (1994), PDB 1BMF. https://doi.org/10.1038/370621a0 (checked 18 October 2026)
- Noji H, Yasuda R, Yoshida M, Kinosita K. Direct observation of the rotation of F1-ATPase. Nature 386, 299 (1997) (rotor radius about 1 nm, barrel radius about 5 nm, anticlockwise from the membrane side). https://doi.org/10.1038/386299a0 (checked 18 October 2026)
- Yasuda R, Noji H, Kinosita K, Yoshida M. F1-ATPase is a highly efficient molecular motor that rotates with discrete 120° steps. Cell 93, 1117 (1998) (work per step close to the free energy of one ATP). https://doi.org/10.1016/S0092-8674(00)81456-7 (checked 18 October 2026)
- Yasuda R, Noji H, Yoshida M, Kinosita K, Itoh H. Resolution of distinct rotational substeps by submillisecond kinetic analysis of F1-ATPase. Nature 410, 898 (2001) (90° and 30° substeps, about 130 revolutions per second). https://doi.org/10.1038/35073513 (checked 18 October 2026)
- Sakaki N et al. One rotary mechanism for F1-ATPase over ATP concentrations from millimolar down to nanomolar. Biophysical Journal 88, 2047 (2005) (torque about 40 pN·nm, binding rate 2 × 10⁷ per M per s). https://doi.org/10.1529/biophysj.104.054668 (checked 18 October 2026)
- Itoh H et al. Mechanically driven ATP synthesis by F1-ATPase. Nature 427, 465 (2004). https://doi.org/10.1038/nature02212 (checked 18 October 2026)
- Rondelez Y et al. Highly coupled ATP synthesis by F1-ATPase single molecules. Nature 433, 773 (2005) (up to 77 %). https://doi.org/10.1038/nature03277 (checked 18 October 2026)
- Watt IN, Montgomery MG, Runswick MJ, Leslie AGW, Walker JE. Bioenergetic cost of making an adenosine triphosphate molecule in animal mitochondria. PNAS 107, 16823 (2010), PDB 2XND (c8 ring, 2.7 protons per ATP, about 100 turns per second, 10 and 6 protons per two electrons, 3.7 protons per ATP delivered, P/O 2.7 and 1.6). https://doi.org/10.1073/pnas.1011099107 (checked 18 October 2026)
- Hinkle PC. P/O ratios of mitochondrial oxidative phosphorylation. Biochimica et Biophysica Acta 1706, 1 (2005). https://doi.org/10.1016/j.bbabio.2004.09.004 (checked 18 October 2026)
- Brand MD, Nicholls DG. Assessing mitochondrial dysfunction in cells. Biochemical Journal 435, 297 (2011) (membrane potential 150 to 180 mV, oligomycin and proton leak). https://doi.org/10.1042/BJ20110162 (checked 18 October 2026)
- Stock D, Leslie AGW, Walker JE. Molecular architecture of the rotary motor in ATP synthase. Science 286, 1700 (1999), PDB 1QO1. https://doi.org/10.1126/science.286.5445.1700 (checked 18 October 2026)
- Seelert H et al. Proton-powered turbine of a plant motor. Nature 405, 418 (2000). https://doi.org/10.1038/35013148 (checked 18 October 2026)
- Vollmar M et al. Structure of the c14 rotor ring of the proton translocating chloroplast ATP synthase. Journal of Biological Chemistry 284, 18228 (2009), PDB 2W5J. https://doi.org/10.1074/jbc.M109.006916 (checked 18 October 2026)
- Pogoryelov D et al. The c15 ring of the Spirulina platensis F-ATP synthase. EMBO Reports 6, 1040 (2005). https://doi.org/10.1038/sj.embor.7400517 (checked 18 October 2026)
- Pogoryelov D et al. High-resolution structure of the rotor ring of a proton-dependent ATP synthase. Nature Structural & Molecular Biology 16, 1068 (2009), PDB 2WIE. https://doi.org/10.1038/nsmb.1678 (checked 18 October 2026)
- Pogoryelov D et al. Microscopic rotary mechanism of ion translocation in the Fo complex of ATP synthases. Nature Chemical Biology 6, 891 (2010), PDB 2XQU. https://doi.org/10.1038/nchembio.457 (checked 18 October 2026)
- Meier T et al. Structure of the rotor ring of F-type Na⁺-ATPase from Ilyobacter tartaricus. Science 308, 659 (2005), PDB 1YCE. https://doi.org/10.1126/science.1111199 (checked 18 October 2026)
- Preiss L et al. A new type of proton coordination in an F1Fo-ATP synthase rotor ring. PLoS Biology 8, e1000443 (2010), PDB 2X2V. https://doi.org/10.1371/journal.pbio.1000443 (checked 18 October 2026)
- Jiang W, Hermolin J, Fillingame RH. The preferred stoichiometry of c subunits in the rotary motor sector of Escherichia coli ATP synthase is 10. PNAS 98, 4966 (2001). https://doi.org/10.1073/pnas.081424898 (checked 18 October 2026)
- Sobti M et al. Cryo-EM structures of the autoinhibited E. coli ATP synthase in three rotational states. eLife 5, e21598 (2016), PDB 5T4O. https://doi.org/10.7554/eLife.21598 (checked 18 October 2026)
- Symersky J et al. Oligomycin frames a common drug-binding site in the ATP synthase. PNAS 109, 13961 (2012), PDB 4F4S. https://doi.org/10.1073/pnas.1207912109 (checked 18 October 2026)
- Andries K et al. A diarylquinoline drug active on the ATP synthase of Mycobacterium tuberculosis. Science 307, 223 (2005). https://doi.org/10.1126/science.1106753 (checked 18 October 2026)
- Preiss L et al. Structure of the mycobacterial ATP synthase Fo rotor ring in complex with the anti-TB drug bedaquiline. Science Advances 1, e1500106 (2015), PDB 4V1F. https://doi.org/10.1126/sciadv.1500106 (checked 18 October 2026)
- Zhang Y et al. Inhibition of M. tuberculosis and human ATP synthase by BDQ and TBAJ-587. Nature 631, 409 (2024), PDB 8KHF. https://doi.org/10.1038/s41586-024-07605-8 (checked 18 October 2026)
- Cabezón E et al. The structure of bovine F1-ATPase in complex with its regulatory protein IF1. Nature Structural Biology 10, 744 (2003), PDB 1OHH. https://doi.org/10.1038/nsb966 (checked 18 October 2026)
- Grundlingh J et al. 2,4-Dinitrophenol (DNP): a weight loss agent with significant acute toxicity and risk of death. Journal of Medical Toxicology 7, 205 (2011). https://doi.org/10.1007/s13181-011-0162-6 (checked 18 October 2026)
- Cannon B, Nedergaard J. Brown adipose tissue: function and physiological significance. Physiological Reviews 84, 277 (2004). https://doi.org/10.1152/physrev.00015.2003 (checked 18 October 2026)
- Zhu J, Vinothkumar KR, Hirst J. Structure of mammalian respiratory complex I. Nature 536, 354 (2016), PDB 5LDW. https://doi.org/10.1038/nature19095 (checked 18 October 2026)
- Davies KM et al. Structure of the yeast F1Fo-ATP synthase dimer and its role in shaping the mitochondrial cristae. PNAS 109, 13602 (2012). https://doi.org/10.1073/pnas.1204593109 (checked 18 October 2026)
- Guo H, Bueler SA, Rubinstein JL. Atomic model for the dimeric FO region of mitochondrial ATP synthase. Science 358, 936 (2017), PDB 6B2Z. https://doi.org/10.1126/science.aao4815 (checked 18 October 2026)
- Murphy BJ et al. Rotary substates of mitochondrial ATP synthase reveal the basis of flexible F1-Fo coupling. Science 364, eaaw9128 (2019), PDB 6RD4. https://doi.org/10.1126/science.aaw9128 (checked 18 October 2026)
- Umena Y et al. Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å. Nature 473, 55 (2011), PDB 3WU2. https://doi.org/10.1038/nature09913 (checked 18 October 2026)
- Kramer DM, Evans JR. The importance of energy balance in improving photosynthetic productivity. Plant Physiology 155, 70 (2011) (12 protons per O₂, 2.57 ATP, 1.29 ATP per NADPH). https://doi.org/10.1104/pp.110.166652 (checked 18 October 2026)
- Takizawa K et al. The thylakoid proton motive force in vivo. Biochimica et Biophysica Acta 1767, 1233 (2007) (lumen pH about 7.5 to about 5.7). https://doi.org/10.1016/j.bbabio.2007.07.006 (checked 18 October 2026)
- Hahn A et al. Structure, mechanism, and regulation of the chloroplast ATP synthase. Science 360, eaat4318 (2018), PDB 6FKF (26 subunits, redox switch in γ). https://doi.org/10.1126/science.aat4318 (checked 18 October 2026)
- Jagendorf AT, Uribe E. ATP formation caused by acid-base transition of spinach chloroplasts. PNAS 55, 170 (1966). https://doi.org/10.1073/pnas.55.1.170 (checked 18 October 2026)
- Racker E, Stoeckenius W. Reconstitution of purple membrane vesicles catalyzing light-driven proton uptake and adenosine triphosphate formation. Journal of Biological Chemistry 249, 662 (1974). https://doi.org/10.1016/S0021-9258(19)43080-9 (checked 18 October 2026)
- Mindell JA. Lysosomal acidification mechanisms. Annual Review of Physiology 74, 69 (2012) (pH 4.5 to 5, counter-ion, ClC-7). https://doi.org/10.1146/annurev-physiol-012110-142317 (checked 18 October 2026)
- Zhao J, Benlekbir S, Rubinstein JL. Electron cryomicroscopy observation of rotational states in a eukaryotic V-ATPase. Nature 521, 241 (2015), PDB 3J9T. https://doi.org/10.1038/nature14365 (checked 18 October 2026)
- Mazhab-Jafari MT et al. Atomic model for the membrane-embedded VO motor of a eukaryotic V-ATPase. Nature 539, 118 (2016), PDB 5TJ5. https://doi.org/10.1038/nature19828 (checked 18 October 2026)
- Murata T et al. Structure of the rotor of the V-type Na⁺-ATPase from Enterococcus hirae. Science 308, 654 (2005), PDB 2BL2. https://doi.org/10.1126/science.1110064 (checked 18 October 2026)
- Berg HC. The rotary motor of bacterial flagella. Annual Review of Biochemistry 72, 19 (2003) (about 45 nm, about 20 kinds of parts). https://doi.org/10.1146/annurev.biochem.72.121801.161737 (checked 18 October 2026)
- Meister M, Lowe G, Berg HC. The proton flux through the bacterial flagellar motor. Cell 49, 643 (1987). https://doi.org/10.1016/0092-8674(87)90540-X (checked 18 October 2026)
- Minamino T, Kinoshita M, Namba K. Directional switching mechanism of the bacterial flagellar motor. Computational and Structural Biotechnology Journal 17, 1075 (2019) (CheY-P binds the C ring, CCW to CW, tumbling). https://pmc.ncbi.nlm.nih.gov/articles/PMC6700473/ (checked 16 October 2026)
- Lai Y et al. Structure of the human ATP synthase. Molecular Cell 83, 2137 (2023), PDB 8H9S. https://doi.org/10.1016/j.molcel.2023.04.029 (checked 18 October 2026)
- MedlinePlus Genetics, U.S. National Library of Medicine. MT-ATP6 gene (Leigh syndrome about 10 %, T8993G, NARP, 70 to 90 % and over 90 %). https://medlineplus.gov/genetics/gene/mt-atp6/ (checked 18 October 2026)
- Jetté M, Sidney K, Blümchen G. Metabolic equivalents (METS) in exercise testing, exercise prescription, and evaluation of functional capacity. Clinical Cardiology 13, 555 (1990) (one MET = 3.5 mL O₂ per kg per minute). https://doi.org/10.1002/clc.4960130809 (checked 18 October 2026)
- PubChem, National Center for Biotechnology Information. Adenosine triphosphate, CID 5957 (molar mass 507.18 g/mol). https://pubchem.ncbi.nlm.nih.gov/compound/5957 (checked 18 October 2026)
- RCSB PDB-101, Molecule of the Month: ATP Synthase. https://pdb101.rcsb.org/motm/72 (checked 16 October 2026)
함께 보면 좋은 전시
크리스퍼 유전자 가위 원리(CRISPR-Cas9)
가이드 RNA가 읽는 DNA는 20글자뿐인데, 대개 그것만으로 사람 유전체 염기쌍 30억 개 가운데 한 자리를 골라냅니다.
세포 속을 걷기: 동물 세포, 식물 세포, 세균
세포를 100만 배로 키우면 미토콘드리아는 소파만 하고 대장균 한 마리는 길이 2 m이며, 소포를 끄는 키네신은 초속 0.8 m로 걷습니다.
DNA 복제 과정: 선도 가닥과 오카자키 절편을 3D로
DNA 중합효소는 가닥의 한쪽 끝에만 뉴클레오타이드를 붙일 수 있어서, 복제 포크마다 새 가닥 하나는 한 줄로 이어 자라고 다른 하나는 짧은 조각으로 자랍니다.
신경 신호가 전해지는 원리
신경세포는 평소 −70 mV에 머물다가 자극이 막 전위를 −55 mV 근처까지 끌어올리면 언제나 같은 크기의 활동전위를 내보냅니다.
자이언트 세쿼이아 숲: 세상에서 가장 큰 나무 아래를 걷다
높이 83.8 m, 나이 약 2,200년인 제너럴 셔먼 나무 밑동에 서서 올려다본 뒤, 줄기를 올라 그 높이의 물이 얼마나 세게 당겨지는지 봅니다.
공룡 크기 비교로 보는 실제 크기 선사 동물 172종
첫 공룡부터 티라노사우루스까지, 선사 시대 동물 172종을 실제 크기로 시대 순서대로 세운 600 m 공원입니다.