그림 59원리관
DNA 복제 과정: 선도 가닥과 오카자키 절편을 3D로
DNA 중합효소는 가닥의 한쪽 끝에만 뉴클레오타이드를 붙일 수 있어서, 복제 포크마다 새 가닥 하나는 한 줄로 이어 자라고 다른 하나는 짧은 조각으로 자랍니다.
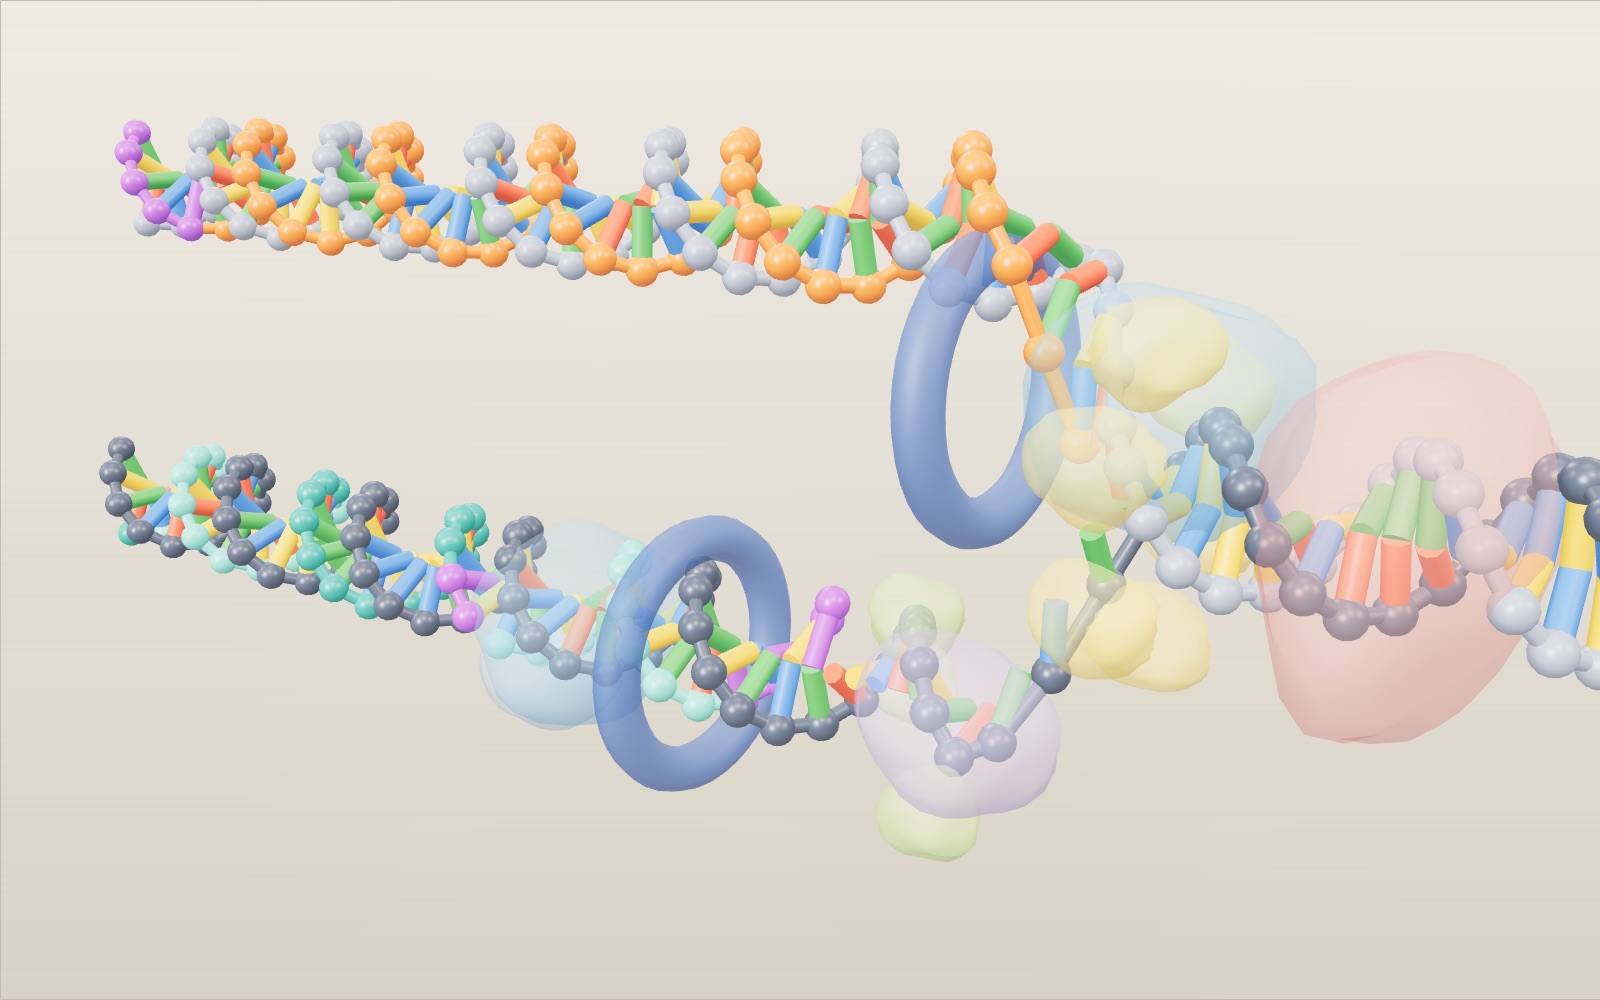
이 기기에서는 3D를 띄울 수 없습니다. 아래 안내 단계를 글로 볼 수 있습니다.
1 / 11 실제 비율로 그린 DNA 84 염기쌍길이 약 29 nm인 DNA입니다. 아래 막대가 축척으로, 용액 속 DNA는 염기쌍 10.5개(3.57 nm)마다 한 바퀴 돌고 교과서는 이를 10개, 3.4 nm로 반올림해 씁니다. 서열은 모형을 위해 지어낸 것입니다.
끌어서 돌리고, 휠이나 두 손가락으로 확대하세요.
세포는 나뉘기 전에 DNA를 어떻게 복사할까요?
DNA 복제 과정은 Y자로 갈라지며 움직이는 포크에서 몇 단계로 일어납니다. 헬리케이스가 이중나선을 지퍼처럼 열고 프라이메이스가 짧은 RNA 프라이머를 놓습니다. DNA 중합효소는 3′ 끝에만 뉴클레오타이드를 붙일 수 있어서 선도 가닥은 한 줄로 자라고 지연 가닥은 뒤쪽으로 오카자키 절편(조각)을 만들며 자랍니다. 그다음 DNA 중합효소 I과 리가아제가 프라이머를 DNA로 바꾸고 틈을 잇습니다. 사람 포크는 초당 50100 뉴클레오타이드를 복제하고, 사람 세포는 염기쌍 64억 개를 약 810시간의 S기 동안 복제합니다.
손에 난 상처가 아무는 것은 피부 세포가 분열하기 때문입니다. 새로 생긴 세포마다 DNA 한 벌이 온전히 있어야 하므로, 사람 세포는 둘로 나뉘기 전에 염기쌍 약 60억 개를 복사해야 합니다. 이 일은 Y자 모양으로 갈라지며 움직이는 자리, 복제 포크에 모인 단백질들이 맡습니다. 이들은 나선을 풀고, 새 가닥을 시작하고, 염기를 하나씩 붙여 나가고, 자기 실수를 잡아내고, 남겨 둔 조각을 이어야 합니다.
이 전시는 복제 포크 하나를 분자 크기로 만들어 보여 줍니다. 무대에는 염기쌍 84개짜리 DNA가 놓여 있습니다. 헬리케이스가 이것을 열면 프라이메이스가 짧은 RNA 출발점을 놓고, DNA 중합효소 두 개가 새 가닥을 만들고, DNA 중합효소 I과 DNA 리가아제가 지연 가닥을 정리합니다. 마지막에는 이중나선 두 개가 서로 멀어집니다. 첫 장면은 헬리케이스가 나선을 여는 바로 옆에서 시작합니다. 노란 헬리케이스 고리를 끌어 포크를 직접 당기고, 다음 염기 짝 맞추기를 눌러 중합효소처럼 염기를 넣고, 효소를 눌러 하는 일을 읽어 보세요. 진행 막대로 과정을 앞뒤로 옮길 수 있고, 속도 막대로 빠르기와 함께 오카자키 조각의 길이를 바꿀 수 있고, 교정 스위치로 중합효소가 검사를 멈추면 어떻게 되는지 볼 수 있습니다. 수치는 OpenStax 생물학 교과서, 네이처 에듀케이션, 미국 국립인간게놈연구소(NHGRI), 그리고 1958년 메셀슨과 스탈의 논문에서 가져왔고, 출처는 글 끝에 있습니다.
모형 크기로 본 이중나선
DNA는 두 가닥이 서로 감긴 분자입니다. 가닥마다 당과 인산이 사슬을 이루고, 당 하나에 염기 A, C, G, T 중 하나가 붙어 있습니다. 한 가닥의 A는 맞은편의 T와, C는 G와 짝을 짓습니다. 이 규칙 덕분에 복사가 가능합니다. 두 가닥을 떼어 놓아도 한 가닥에 짝 가닥을 다시 만드는 데 필요한 정보가 모두 들어 있기 때문입니다. 모형에서 A는 초록, T는 빨강, G는 노랑, C는 파랑입니다. RNA는 T 대신 U를 쓰고, U는 보라로 칠했습니다.
이웃한 염기쌍 사이는 0.34 nm이고 나선의 폭은 2 nm입니다. 교과서는 흔히 나선이 염기쌍 10개, 길이로는 3.4 nm마다 한 바퀴 돈다고 적습니다. 이 값은 DNA 섬유를 찍은 X선 사진에서 나왔습니다. 세포 안처럼 용액에 녹아 있는 DNA는 조금 느슨하게 감겨 있어서, 1979년 제임스 왕은 한 바퀴에 염기쌍 10.4개를 측정했고 지금은 10.5개를 흔히 씁니다. 모형은 10.5개를 썼으므로 한 바퀴는 10.5 × 0.34 = 3.57 nm입니다. 모형 아래 막대 두 개가 이 둘을 나란히 보여 줍니다. 하나는 모형의 한 바퀴이고, 다른 하나는 비교용인 교과서의 3.4 nm입니다. 모형 전체 길이는 84 × 0.34 = 28.6 nm입니다.
두 가닥은 서로 반대 방향으로 놓여 있습니다. 화학자들은 당의 탄소 원자에 번호를 붙이고, 그 번호를 따서 가닥의 두 끝을 5′ 끝과 3′ 끝이라고 부릅니다. 왼쪽에서 오른쪽으로 5′→3′인 가닥은 오른쪽에서 왼쪽으로 5′→3′인 가닥과 짝을 짓습니다. 이렇게 반대로 놓인 구조가 포크에서 벌어지는 일 대부분을 정합니다.
나선을 열고 열린 채로 두는 단백질
DNA를 여는 효소는 헬리케이스입니다. 짝지은 염기 사이의 수소결합을 끊는데, 여기에 ATP의 에너지를 씁니다. 헬리케이스가 지나간 자리에서 이중나선은 외가닥 두 개로 갈라지고, 그 모양이 복제 포크입니다. 모형에서 헬리케이스는 가닥이 갈라지는 지점에 놓인 노란 고리이고, 포크가 나아가면 함께 움직입니다.
꼬인 두 가닥을 떼어 내면 부작용이 생깁니다. 꼰 밧줄의 한쪽 끝에서 가닥을 벌리면 앞쪽이 더 꼬이며 엉키듯, 포크 앞의 DNA가 더 단단히 감깁니다. OpenStax는 토포아이소머레이스가 포크 앞에서 나선에 잠깐 틈을 냈다가 다시 이어 이 과도한 꼬임을 막는다고 설명합니다. 모형에서는 아직 열리지 않은 DNA 위, 헬리케이스보다 몇 바퀴 앞에 있는 분홍색 덩어리입니다.
열린 외가닥은 그대로 두면 다시 짝을 지어 버립니다. 단일가닥 결합 단백질이 외가닥을 덮어 중합효소가 올 때까지 떼어 놓습니다. 모형에서는 작은 연두색 덩어리입니다. 이 단백질이 어디에 모이는지 보세요. 거의 모두 아래쪽 주형에 붙어 있는데, 그 가닥이 복사되기까지 가장 오래 기다리기 때문입니다. 왜 그런지는 조금 뒤에 나옵니다.
중합효소에게 프라이머가 필요한 이유
DNA 중합효소는 주형의 맞은편 염기에 맞춰 뉴클레오타이드를 하나씩 붙입니다. 새 결합을 만드는 에너지는 들어오는 뉴클레오타이드 자신이 가져옵니다. 뉴클레오타이드가 인산기 세 개를 단 형태로 들어오기 때문입니다. 그런데 이 효소에는 엄격한 제약이 두 가지 있습니다. 가닥의 3′ 끝에만 붙일 수 있고, 붙일 가닥이 이미 있어야 합니다. 아무것도 없는 데서 시작하지 못합니다.
시작 문제는 프라이메이스가 풉니다. 프라이메이스는 RNA 중합효소이고, RNA 중합효소는 짝 가닥 없이도 새 사슬을 시작할 수 있습니다. 프라이메이스는 주형에 맞는 짧은 RNA를 씁니다. OpenStax에 따르면 길이는 5~10 뉴클레오타이드쯤입니다. 이 프라이머가 DNA 중합효소에게 이어 붙일 3′ 끝을 줍니다. 모형의 프라이머는 5 뉴클레오타이드이고 보라색 구슬로 그렸습니다. 맨 왼쪽의 프라이머 하나가 위쪽 새 가닥을 시작합니다. 아래쪽 새 가닥은 프라이머를 계속 새로 받아야 합니다.
한 방향으로만 붙이면 두 가닥에 생기는 일
중합효소는 3′ 끝에만 붙일 수 있으므로 새 가닥은 언제나 5′에서 3′ 쪽으로 자랍니다. 이제 두 주형을 보세요. 위쪽 주형에서는 새 가닥의 5′→3′ 방향이 포크 쪽을 향합니다. 중합효소는 헬리케이스를 따라가며 드러나는 주형마다 같은 가닥에 계속 붙여 나갈 수 있습니다. 이렇게 끊김 없이 자라는 가닥이 선도 가닥이고, 모형에서는 주황색이며 프라이머 하나에서 시작합니다.
아래쪽 주형에서는 새 가닥이 반대쪽, 그러니까 포크에서 멀어지는 쪽으로 자라야 합니다. 포크가 열리면 새 주형은 중합효소 앞이 아니라 뒤에서 드러납니다. 그것을 복사하는 방법은 포크 가까이에서 새 조각을 시작해 앞서 만든 조각에 닿을 때까지 거꾸로 만드는 것뿐입니다. 이 조각 하나하나가 오카자키 조각이고, 조각으로 만든 가닥이 지연 가닥입니다. 모형에서는 청록색이고, 이웃한 조각은 두 가지 색조로 번갈아 칠했습니다.
조작 탭에서 염기쌍 색을 끄면 이 차이가 또렷해집니다. 옛 가닥은 회색이 되고 두 종류의 새 가닥은 제 색을 유지합니다. 선도 가닥은 긴 주황색 줄 하나이고, 지연 가닥은 오른쪽 끝마다 보라색 프라이머가 달린 짧은 청록색 조각의 줄입니다.
지연 가닥의 오카자키 조각
지연 가닥에서는 같은 순서가 되풀이됩니다. 프라이메이스가 포크 가까이에 프라이머를 놓습니다. 고리 모양의 미끄럼 죔쇠로 DNA에 붙어 있는 지연 가닥 중합효소가 그 프라이머를 포크 반대쪽으로 늘이다가 앞 조각에 닿으면 멈춥니다. 그다음 떨어져 나와 다음 프라이머로 옮겨 갑니다. 모형에서는 두 번째 중합효소와 짙은 파란 고리가 조각 하나를 끝낼 때마다 포크 쪽으로 되돌아가는 모습을 볼 수 있습니다.
실제 조각은 모형의 14 뉴클레오타이드보다 훨씬 깁니다. 발라크리슈난과 밤바라의 총설에 따르면 오카자키 조각은 세균에서 약 1,200 뉴클레오타이드, 진핵세포에서는 약 200개뿐이며, 진핵세포에서는 그 길이가 뉴클레오솜 간격을 따릅니다. 모형은 조각 여러 개가 한 화면에 들어오도록 길이를 줄였습니다. 화면 왼쪽 위 표의 오카자키 줄은 두 숫자를 셉니다. 시작된 조각 수와 이웃 조각에 이어진 조각 수입니다.
프라이머를 DNA로 바꾸고 틈을 잇기
다 만든 조각에도 한쪽 끝에는 RNA가 남아 있는데, 새 DNA 가닥에 RNA가 섞여 있으면 안 됩니다. 세균에서는 DNA 중합효소 I이 핵산 분해 기능으로 프라이머를 하나씩 떼어 내고, 뒤쪽 조각의 DNA를 출발점 삼아 그 빈자리를 DNA로 채웁니다. 진핵세포는 방법이 조금 다릅니다. 중합효소 δ가 프라이머를 플랩으로 밀어내면 플랩 엔도뉴클레이스 1(FEN1)이 잘라 냅니다. RNase H도 프라이머 제거에 관여할 수 있지만, RNase H와 FEN1은 서로 다른 효소입니다. 모형은 세균의 방식을 보여 주며, 옅은 파란 효소가 보라색 구슬을 청록색으로 바꿔 나갑니다.
바꾸고 나면 두 DNA 조각이 끝과 끝을 맞대고 있지만 아직 이어지지는 않았습니다. 인산다이에스터 결합 하나가 빠져 있는데, 이 틈을 닉이라고 부릅니다. DNA 리가아제가 한 조각의 3′ 끝과 다음 조각의 5′ 끝 사이에 그 결합을 만듭니다. 모형에서는 주황색 리가아제가 틈 위에 잠시 머물고, 고리가 번쩍인 뒤 뼈대가 이어집니다. 그때 이어진 조각 수가 하나 올라갑니다.
중합효소가 잘못 넣은 염기를 되돌리는 방법
중합효소도 가끔 엉뚱한 염기를 넣습니다. 네이처 에듀케이션은 그 비율을 뉴클레오타이드 10만 개에 1개 정도로 적습니다. 잘못 들어간 염기는 나선 안에서 어색하게 놓이고, 그 3′ 끝도 다음 뉴클레오타이드를 붙이기에 맞지 않는 자리에 있게 됩니다. 중합효소는 이것을 알아채고 한 칸 물러나, 3′→5′ 핵산 분해 기능으로 잘못된 뉴클레오타이드를 잘라 내고 맞는 것을 넣습니다. 이것이 교정입니다. OpenStax는 중합효소가 다음 염기를 붙이기 전에 방금 붙인 염기를 읽는다고 설명합니다.
모형에는 선도 가닥에 일부러 넣은 실수가 두 군데 있습니다. G 맞은편의 T, 그리고 T 맞은편의 G입니다. 둘 다 네이처 에듀케이션이 설명하는 워블 짝짓기의 예입니다. 교정이 켜져 있으면 중합효소가 두 자리에서 매번 멈춥니다. 잘못된 염기가 자홍색으로 바뀌고, 바깥으로 젖혀졌다가 사라지고, 맞는 염기로 바뀝니다. 중합효소가 멈춘 동안 헬리케이스도 기다리므로 포크가 뒤처집니다. 교정을 끄고 같은 구간을 재생해 보세요. 포크가 그 자리에 더 일찍 도착하고 오카자키 수도 앞서가지만, 잘못된 염기 두 개는 자홍색 고리를 두른 채 새 가닥에 남고, 표에는 남은 개수가 나옵니다.
숫자로 확인하기
모형의 기본 속도는 초당 염기쌍 5개입니다. OpenStax는 사람의 복제 포크가 초당 50100 뉴클레오타이드를 진행한다고 적고, 네이처 에듀케이션은 약 40개라고 적습니다. 그러니 모형은 실제 사람 포크보다 1020배쯤 느리게 돕니다. 세균의 포크는 훨씬 빠릅니다. 대장균은 염기쌍 460만 개짜리 염색체를 포크 두 개로 약 42분에 복사하는데, 이는 포크 하나가 초당 약 1,000 뉴클레오타이드를 진행하는 셈입니다.
포크 하나로 사람 유전체 전체를 복사할 수 있을까요? 초당 50개라면 60억 염기쌍에 6,000,000,000 ÷ 50 = 1억 2천만 초, 거의 4년이 걸립니다. 세포는 포크를 한꺼번에 많이 열어서 이 문제를 피합니다. OpenStax에 따르면 사람 유전체에는 복제 원점이 최대 10만 개까지 있습니다. NHGRI는 사람 세포 하나를 복사하는 데 순수하게 복사하는 시간만 몇 시간이 걸린다고 설명합니다.
실수도 같은 식으로 계산해 볼 수 있습니다. 염기쌍 60억 개를 복사하려면 주형 염기마다 맞은편에 하나씩, 새 뉴클레오타이드 약 120억 개를 깔아야 합니다. 10만 개에 1개꼴로 틀리면 검사 전에 분열 한 번마다 잘못된 염기가 약 12만 개 생깁니다. 교정이 그중 약 99%를 고치므로 1,200개쯤이 남고, 복제가 끝난 뒤의 불일치 복구가 그 수를 더 줄입니다. 모형의 실수 2개는 염기쌍 84개에 비하면 실제보다 터무니없이 많은데, 고치는 장면을 보여 주려고 넣은 것입니다.
모형에서 뺀 것
모형은 포크 하나만 보여 줍니다. 실제 복제는 복제 원점에서 시작해 거품 모양으로 열리고, 그 양쪽 끝에서 포크 두 개가 서로 멀어집니다. 대장균의 두 포크는 원형 염색체를 반대 방향으로 진행하다가 만나며, 각각 원의 약 절반을 복사합니다. 모형의 조각과 프라이머는 짧게 줄였고, 실수도 정해진 두 자리에만 넣었습니다.
단백질은 측정한 모양이 아니라 부드러운 덩어리로 그렸고, DNA가 보이도록 반투명하게 했습니다. 놓인 자리는 교과서 그림을 따랐습니다. 토포아이소머레이스는 포크 앞에, 단일가닥 결합 단백질은 드러난 주형 위에, 미끄럼 죔쇠 고리는 새 이중나선마다 중합효소 옆에 있습니다. 새 가닥을 하나씩 따라가기 쉽도록 두 중합효소는 따로 떨어진 덩어리로 그렸습니다. 맨 왼쪽 선도 가닥의 프라이머도 그대로 두었는데, 그것을 치울 반대쪽 포크가 화면 왼쪽 밖에 있기 때문입니다.
단백질 이름은 세균을 따랐습니다(주된 복사는 DNA 중합효소 III, 프라이머 교체는 DNA 중합효소 I). 진핵세포는 같은 단계에 다른 효소를 씁니다. 선도 가닥은 중합효소 ε, 지연 가닥은 중합효소 δ, 죔쇠는 PCNA이며, 프라이머 처리에는 FEN1과 RNase H 등이 관여합니다. 진핵세포는 포크가 지나갈 때 히스톤을 떼었다가 다시 붙여야 하는데, OpenStax는 이것이 진핵세포의 복제가 느린 까닭 가운데 하나라고 설명합니다.
무대의 숫자 몇 가지는 모형 값입니다. 조각 길이는 속도에 프라이머 간격 2.8초(화면 시간)를 곱한 값이고 7~36 뉴클레오타이드 사이로 묶어 두어, 5 bp/초에서 14 nt가 됩니다. 손으로 염기를 하나 넣으면 포크가 염기쌍 하나만큼 나아가고 미리 넣어 둔 실수 두 개는 건너뛰므로, 틀린 염기는 내가 고른 것뿐입니다. 무대 아래 계산기는 복제 시작점이 고르게 놓여 한꺼번에 켜지고 포크가 멈추지 않는다고 보며, 70 kg 어른의 세포 교체 수를 몸무게에 비례해 늘리거나 줄입니다.
새 이중나선이 옛 가닥 하나를 간직한다는 것을 알아낸 실험
1953년 제임스 왓슨과 프랜시스 크릭은 이중나선 구조를 발표하면서, 염기 짝짓기 규칙이 복사 방법을 암시한다고 적었습니다. 복사 방식에 대해서는 세 가지 생각이 있었습니다. 반보존적 복제에서는 새 이중나선마다 옛 가닥 하나와 새 가닥 하나가 들어 있습니다. 보존적 복제에서는 옛 이중나선이 통째로 남고 그 옆에 완전히 새로운 이중나선이 생깁니다. 분산적 복제에서는 옛 DNA와 새 DNA가 두 가닥 모두에 조각조각 섞입니다.
캘리포니아 공과대학의 매슈 메셀슨과 프랭클린 스탈은 1958년 이 셋을 시험했습니다. 대장균을 무거운 동위원소 질소-15 동위원소만 들어 있는 배지에서 여러 세대 키운 다음, 보통의 질소-14 배지로 옮기고 세포가 분열할 때마다 시료를 얻었습니다. 염화세슘 밀도 기울기에서 DNA를 원심분리하면 DNA는 자기 밀도와 같은 높이에 모이므로, 무거운 DNA와 가벼운 DNA가 서로 다른 띠를 만듭니다. 옮기기 전에는 무거운 띠 하나가 있었습니다. 한 세대 뒤에는 무거운 쪽과 가벼운 쪽의 한가운데에 띠 하나가 생겼고, 이것으로 보존적 복제가 제외됐습니다. 두 세대 뒤에는 중간 띠와 가벼운 띠 두 개가 생겼고, 이것으로 분산적 복제도 제외됐습니다. 새 이중나선은 저마다 옛 가닥 하나를 간직하고 있었던 것입니다. 조작 탭에서 메셀슨·스탈 실험을 켜면 표에 이 시험관 세 개가 나옵니다.
지연 가닥의 조각은 오카자키 레이지와 동료들이 찾았습니다. 이들은 1968년, 새로 만들어진 DNA가 처음에는 짧은 조각으로 나타났다가 나중에 긴 가닥으로 이어진다고 보고했습니다. 효소 자체는 그보다 앞서 시험관에서 연구됐습니다. 아서 콘버그와 세베로 오초아는 노벨 위원회의 표현으로 "리보핵산과 디옥시리보핵산의 생물학적 합성 메커니즘을 발견한 공로"로 1959년 노벨 생리의학상을 함께 받았습니다.
몇 개의 포크가 사람 유전체를 몇 시간에 복사할까요?
포크 속도는 단위 시간에 주형을 따라 진행한 길이이지, 세포 안 모든 중합효소의 생산량을 합친 값이 아닙니다. 세균의 포크 속도를 일정한 1,000 nt/s로 가정하면 두 포크는 부모 염색체를 초당 2,000 염기쌍씩 덮습니다. 4,600,000 bp 염색체에는 4,600,000 ÷ 2,000 = 2,300초, 약 38분이 걸립니다. 교과서의 약 42분과는 입력값을 반올림한 정도에서 들어맞습니다. 이것이 세균의 세포 분열 간격을 예측한 계산은 아닙니다. 생장 조건이 좋으면 세균은 이전 복제가 끝나기 전에 다음 복제를 시작할 수 있습니다.
사람의 경우에는 반수체 유전체를 반올림해 3,200,000,000 bp로 놓고, 등간격으로 놓인 복제 원점 10,000개가 동시에 작동한다고 가정합니다. 원점마다 50 nt/s인 포크 두 개가 출발하면 포크는 20,000개이고, 전체 진행량은 1,000,000 bp/s입니다. 유전체 길이를 이 속도로 나누면 3,200초, 약 53분입니다. 원점 사이 평균 간격은 320,000 bp이며, 각 포크는 이웃 포크를 만날 때까지 그 절반만 진행합니다. 160,000 ÷ 50으로도 같은 답이 나옵니다.
이상적인 조건으로 계산한 이 시간은 실제 사람 세포가 복제에 쓰는 몇 시간보다 짧습니다. 원점이 모두 동시에 작동하지 않고, 염색체 부위마다 복제 시점이 다르며, 포크는 염색질 등 여러 장애물을 만납니다. 같은 가정에서 동시에 작동하는 원점이 2,000개뿐이면 16,000초, 약 4.4시간이 나옵니다. 이 원점 수는 계산을 위한 가정이며 특정 조직의 측정값이 아닙니다. 잠재적인 복제 원점 개수만 세어서는 S기의 길이를 정할 수 없는 이유입니다.
사람의 체세포 대부분은 염색체를 두 벌 가집니다. 같은 반올림 기준으로 복사량은 반수체의 3,200,000,000 bp가 아니라 6,400,000,000 bp입니다. DNA 양과 작동하는 원점 수가 함께 두 배가 되면 이상적인 완료 시간은 그대로입니다. 앞의 60억이라는 값은 이배체를 더 거칠게 어림한 값이지, 염기쌍을 세는 규칙이 달라진 것이 아닙니다.
잘못 넣은 뉴클레오타이드가 돌연변이로 남기까지
잘못 넣은 염기, 교정을 빠져나간 불일치, 복구 뒤에도 남는 돌연변이는 서로 다른 수입니다. Fijalkowska 등의 총설은 세균의 사례로 처음 삽입 오류 약 10⁻⁵, 교정 뒤 빠져나가는 비율 약 10⁻², 불일치 복구 뒤 빠져나가는 비율 약 10⁻³을 제시합니다. 곱하면 복제 한 차례에서 복사한 염기당 오류 약 10⁻¹⁰이 됩니다. 불일치 종류와 주변 서열에 따라 달라지는 어림값이지 모든 중합효소에 적용되는 상수는 아닙니다.
계산 연습에는 앞의 이배체 유전체 어림값인 60억 bp를 그대로 씁니다. 부모 가닥 둘을 복사하면 새 뉴클레오타이드는 약 120억 개 들어갑니다. 10⁻⁵이면 초기 오류가 120,000개이고, 교정 뒤 10⁻⁷이면 1,200개입니다. 최종 비율이 10⁻⁹라면 복제 산물 전체에서 기대하는 오류는 12개이고, 10⁻¹⁰이면 1.2개입니다. 소수인 기대값은 여러 분열의 평균을 나타냅니다. 세포 하나에 바뀐 염기가 소수 개 존재한다는 뜻이 아닙니다. 10⁻⁵에서 10⁻⁹ 또는 10⁻¹⁰으로 줄어드는 전 과정을 교정 하나가 해내는 것은 아닙니다.
이 예시를 사람의 세포 분열마다 정확히 그만큼의 돌연변이가 생긴다는 주장으로 바꾸면 안 됩니다. 불일치에는 아직 두 가닥의 상충하는 정보가 남아 있습니다. 복구가 이를 없앨 수도 있고, 다음 복제가 바뀐 서열을 후손에 확정할 수도 있습니다. 복제 산물은 딸세포로 나뉘기도 합니다. DNA 손상, 세포 종류, 효소마다 다른 정확도도 관측되는 돌연변이 수에 영향을 줍니다. 화면의 고정된 오류 두 개는 교정 순서를 시험하기 위한 것이지 돌연변이율의 분포가 아닙니다. 다시 재생해도 다른 세포를 표본으로 뽑는 것은 아닙니다.
끝까지 처리해야 할 조각은 몇 개일까요?
조각 길이는 복사해야 할 DNA 양을 바꾸지 않으면서 처리할 일을 바꿉니다. 총설의 세균 조각 길이 약 1,200 nt를 쓰면 4,600,000 bp 원형 염색체에서 지연 가닥으로 만드는 조각 수는 대략 4,600,000 ÷ 1,200, 약 3,800개입니다. 왜 염색체 길이의 두 배를 나누지 않을까요? 포크마다 새 가닥 둘 중 하나가 지연 가닥입니다. 두 포크를 합쳐도 불연속적으로 합성하는 길이는 염색체 하나 분량에 가깝고, 새 가닥 둘을 합친 양이 아닙니다.
이배체 사람 유전체를 6,400,000,000 bp, 평균 조각을 200 nt로 잡으면 같은 계산은 32,000,000개입니다. 끝부분의 효과와 부위별 차이 때문에 정확한 개수는 아닙니다. 그래도 프라이머 제거와 연결이 드물게 하는 마무리가 아님을 보여 줍니다. 세포는 S기 한 번에 수백만 곳의 연결부를 처리해야 합니다. 진핵세포의 짧은 조각은 뉴클레오솜 배치와 관련되며, 사람 중합효소가 200 뉴클레오타이드만 합성하면 모든 활성을 잃는다는 뜻은 아닙니다.
전시는 조각을 14 nt, 프라이머를 5 nt로 줄였습니다. 따라서 프라이머가 조각에서 차지하는 비율이 실제 사례보다 훨씬 큽니다. 화면에서 보라색 구슬의 비율을 보고 염색체에 들어가는 RNA 양을 추정하면 안 됩니다. 대신 사건의 순서를 확인할 수 있습니다. 프라이머가 출발점을 주고, DNA가 프라이머를 대체한 뒤, 리가아제가 남은 뼈대의 닉을 닫습니다. 리가아제 혼자 주형을 읽어 길게 빠진 DNA를 채우지는 못합니다.
염색체 끝과 PCR은 서로 다른 문제를 풉니다
보통의 지연 가닥에서는 프라이머를 제거했을 때 이웃 조각이 연장할 수 있는 3′ 끝을 제공합니다. 선형 염색체 끝에서는 이 배치가 더 이어지지 못합니다. 텔로미어는 염색체 끝에 반복 DNA와 보호 단백질이 모인 부분입니다. 텔로머레이스가 활성인 세포에서는 이 효소가 자기 RNA를 주형으로 DNA 끝을 늘이고, 다른 복제 장치가 상보적인 DNA를 만들 수 있습니다. 텔로머레이스는 유전체 전체를 복사하지 않으며 염색체 양 끝을 접착하듯 붙이지도 않습니다. 전시의 포크는 내부 구간이므로 마지막에 두 나선이 벌어지는 장면은 텔로미어 단축을 재현한 것이 아닙니다.
텔로미어 소실도 분열 횟수를 세어 사람의 나이를 알려 주는 정확한 시계는 아닙니다. NHGRI는 단축과 함께 일부 분열하는 세포에서 반복 서열이 보충되는 과정을 설명합니다. 이 과정은 세포마다 다릅니다. 말단 복제 문제를 설명했다는 것이 텔로머레이스를 늘리는 처치가 안전한 노화 방지법이라는 근거는 아닙니다.
PCR은 세포 밖에서 선택한 DNA 구간을 복사합니다. NHGRI의 설명처럼 열로 주형 두 가닥을 떼고, 반복되는 온도 주기에서 열에 견디는 중합효소가 새 DNA를 만듭니다. 표준 PCR 반응에서는 공급한 DNA 프라이머가 표적의 경계를 정합니다. 이동하는 포크에서 프라이메이스가 RNA 프라이머를 계속 만드는 방식이 아닙니다. 가열은 헬리케이스의 가닥 분리 역할을 대신하지만 세포 복제 장치의 모든 일을 대신하지는 않습니다.
매번 정확히 두 배가 된다고 가정하면 20주기 뒤에는 출발한 이중가닥 주형 하나에서 2²⁰ = 1,048,576개의 사본이 나옵니다. 이론상의 증식 계산이지 실험실에서 보장되는 수율은 아닙니다. 시약이 부족해지고 증폭 효율도 완전하지 않습니다. PCR은 고른 표적을 증폭하지, 세포의 모든 염색체를 자동으로 복제하지 않습니다. 전시의 속도 조작은 PCR의 온도 주기를 나타내지 않습니다.
포크를 당기고 염기 짝을 직접 맞춰 보기
헬리케이스 고리는 복제 기계 전체의 손잡이입니다. 고리를 나선을 따라 끌면 당긴 만큼 정확히 포크가 열립니다. 부모 가닥이 갈라지고, 결합 단백질이 드러난 주형에 붙고, 중합효소가 뒤따라옵니다. 속도 막대는 손을 따라가므로 빨리 당기면 최고값인 20 bp/초까지 올라갑니다. 반대로 끌면 아무 일도 일어나지 않습니다. 실제 헬리케이스는 ATP 에너지로 한 가닥을 따라 한 방향으로만 가고, 반대 방향은 같은 시작점에서 출발한 두 번째 포크가 맡습니다.
다음 염기 짝 맞추기를 누르면 내가 선도 가닥의 중합효소가 됩니다. 포크가 멈추고, 흰 구슬이 새 가닥의 다음 빈자리를, 빨간 고리가 그 맞은편 주형 염기를 가리킵니다. 단추 네 개에는 A, T, G, C가 있습니다. A는 T와, G는 C와 짝짓는 규칙대로 고르면 가닥이 염기쌍 하나만큼 자랍니다. 틀리게 고르면 잠깐 그대로 붙었다가, 교정이 켜져 있으면 중합효소가 한 칸 물러나 그것을 잘라 내고 맞는 염기를 넣습니다. 3′→5′ 핵산 분해 기능이 하는 일과 같습니다. 교정이 꺼져 있으면 틀린 염기가 고리 표시와 함께 남고, 사본에 잘못된 짝이 생깁니다.
실제 중합효소는 글자를 읽고 고르지 않습니다. 들어오는 뉴클레오타이드가 활성 자리에서 맞는 짝의 모양에 들어맞아야 하고, 틀린 짝은 잘 맞지 않아 훨씬 느리게 붙습니다. 그래도 교정 전에는 10만 번에 1번쯤 틀리므로, 20개를 연달아 맞혔다고 믿을 만한 복사기라는 증거가 되지는 않습니다. 짝 맞추기는 자동 진행도 넘겨받습니다. 고르는 동안 시계가 멈추고, 24번과 54번 자리에 미리 넣어 둔 실수는 건너뜁니다.
무대의 단백질이나 이름표를 누르면 하는 일이 나옵니다. 카드는 부품 목록을 짧게 옮긴 것이어서, 포크 앞의 토포아이소머레이스, 지연 가닥 주형 위의 프라이메이스, 죔쇠를 낀 중합효소 두 개, DNA 중합효소 I, 리가아제를 무대를 떠나지 않고 만날 수 있습니다.
포크가 빠르면 조각이 길어지는 이유
프라이메이스는 DNA의 정해진 자리에서 프라이머를 시작하지 않습니다. 대장균에서는 용액에서 다가와 헬리케이스를 만나 프라이머를 쓰고 떠나는데, 투구와 마리안스는 1996년에 이 만남이 12초마다 한 번쯤 일어나며 조각의 길이를 정한다는 것을 보였습니다. 그동안 포크는 초당 약 1,000 뉴클레오타이드를 갑니다. 12초마다 조각 하나, 초당 1,000 뉴클레오타이드이면 조각은 1,000~2,000 뉴클레오타이드가 되고, 세균에서 잰 약 1,200과 맞습니다.
모형은 이 생각을 더 느린 시계로 따릅니다. 화면 시간 2.8초마다 새 프라이머가 시작되므로 조각 길이는 속도에 2.8을 곱한 값입니다. 기본값 5 bp/초에서는 14 nt이고 84 염기쌍에 조각 6개가 생깁니다. 13 bp/초 이상에서는 36 nt짜리 2개만 들어가고, 3 bp/초에서는 8 nt짜리가 12개입니다. 3 bp/초보다 느리면 5 nt 프라이머 뒤에 DNA가 들어갈 자리가 남도록 가장 짧은 조각을 7 nt로 둡니다. 진행 중에 속도를 바꾸면 지연 가닥 전체가 처음부터 새 속도로 달린 것처럼 다시 그려집니다.
어떤 속도에서도 바뀌지 않는 규칙이 있습니다. 조각마다 RNA로 시작해 앞 조각에 닿아 끝나고, 이음마다 DNA 중합효소 I과 리가아제가 필요합니다. 그래서 느린 포크에서 짧은 조각이 많이 생기면 치울 프라이머와 이을 틈도 많아집니다. 진핵세포의 조각은 약 200 뉴클레오타이드로 더 짧은데, 뉴클레오솜 간격을 따르기 때문입니다. 사람 세포는 S기마다 이런 조각을 수천만 개 마무리합니다.
사람 세포는 DNA를 복제하는 데 얼마나 걸릴까요?
사람 몸세포에는 염기쌍 약 64억 개, 32억 개짜리 두 벌이 있습니다. 포크 하나가 초당 50 뉴클레오타이드로 가면 6,400,000,000 ÷ 50 = 1억 2,800만 초, 약 4년이 걸립니다. 시작점 하나에서 포크 두 개가 나가면 절반인 약 2년입니다. 무대 아래 계산기는 시작점 하나에서 출발해, 한꺼번에 켜지는 시작점 수를 OpenStax가 사람 유전체에 대해 드는 최대값인 100,000개까지 늘려 볼 수 있습니다.
초당 50 뉴클레오타이드라면 시작점 2,223개(포크 4,446개)로 8시간 안에 끝나고, 초당 100이면 그 절반인 1,112개면 됩니다. 시작점이 10,000개이면 50 nt/초에서 이상적인 시간은 107분으로 줄어듭니다. 쿠퍼의 세포생물학 교과서는 24시간마다 나뉘는 사람 세포의 S기를 약 8시간으로, OpenStax는 약 10시간으로 적습니다. 실제 세포는 계산보다 많은 시작점을 씁니다. 시작점이 S기 내내 차례로 켜지고, 포크는 손상되었거나 빽빽하게 감긴 DNA에서 멈추기 때문입니다.
세균은 염색체가 짧고 포크가 빨라 시작점 하나로 충분합니다. 초당 1,000 뉴클레오타이드 포크 두 개는 대장균의 460만 염기쌍을 4,600,000 ÷ 2,000 = 2,300초, 약 38분에 복제하며 교과서 값 42분에 가깝습니다. 초파리 초기 배아는 반대쪽 끝입니다. 세포 주기 한 번이 약 8분이어서 DNA를 촘촘히 놓인 시작점들에서 복제해야 합니다.
내 몸은 하루에 DNA를 얼마나 복제할까요?
센더와 밀로는 2021년에 어른 몸이 사람 세포 약 30조 개 가운데 하루 약 3,300억 개를 새것으로 바꾸고, 그중 90 % 가까이가 혈액 세포라고 추정했습니다. 새 세포마다 DNA 사본이 하나씩 들어 있으므로, 하루에 적어도 그만큼 유전체가 복제됩니다. 사본 하나는 염기쌍 64억 개이고, 염기쌍당 0.34 nm로 치면 DNA 약 2.2 m입니다.
70 kg 어른으로 곱하면 2.2 m짜리 사본 3,300억 개는 하루 약 7억 1,800만 km로, 지구에서 태양까지 1억 4,960만 km의 4.8배, 1초에 약 8,300 km입니다. 무대 아래 계산기는 넣은 몸무게에 비례해 세포 수를 바꿉니다. 60 kg이면 하루 복제량은 약 6억 1,600만 km입니다. 대략적인 모형 값입니다. 세포 교체는 사람과 나이에 따라 다르고, 적혈구는 자라면서 핵을 잃으며, 어떤 새 세포는 최종 자리와 다른 곳에서 DNA를 복제한 줄기세포에서 나옵니다.
이 합계는 복제가 얼마나 정확해야 하는지 보여 줍니다. 최종 오류율이 10억 개에 1개쯤이어도 사본마다 몇 개의 변화가 생기고, 대부분은 단백질을 바꾸지 않는 DNA에 떨어집니다. 복구, 세포 자멸, 면역계가 잘못된 세포를 많이 없앱니다.
왓슨과 크릭부터 포크의 시계까지, 짧은 역사
왓슨과 크릭은 1953년 이중나선 논문 끝에서 염기의 짝짓기가 복제 방식을 떠올리게 한다고 적었습니다. 1956년 아서 콘버그 연구진은 대장균의 효소 DNA 중합효소 I로 시험관에서 DNA를 만들었고, 이 연구로 1959년 노벨 생리의학상을 함께 받았습니다. 1958년 메셀슨과 스탈은 무거운 질소로 새 이중나선마다 옛 가닥 하나가 남는다는 것을 보였습니다. 1963년 존 케언스는 복제 중인 대장균 염색체 전체를 사진으로 찍었습니다. 길이 약 1 mm의 고리 하나에 움직이는 포크가 있었습니다.
다음은 지연 가닥의 조각이었습니다. 1967년 여러 연구실이 DNA 리가아제를 찾았고, 마틴 겔러트는 대장균 추출물이 람다 DNA의 끝을 이어 고리로 만든다는 것을 보였습니다. 1968년 오카자키 레이지·쓰네코와 동료들은 새 DNA를 몇 초 동안만 표지해, 그것이 처음에는 짧은 조각이었다가 나중에 이어진다는 것을 찾았습니다. 1969년 폴라 드루시아와 존 케언스는 중합효소 I이 거의 없는데도 DNA를 복제하는 돌연변이를 찾았고, 주된 효소인 중합효소 III이 따로 있다는 것을 가리켰습니다.
그 뒤의 연구가 무대 위 기계의 나머지를 설명했습니다. 왓슨은 1972년 선형 DNA의 끝 문제를 설명했고, 겔러트 연구진은 1976년 DNA 자이레이스를, 그라이더와 블랙번은 1985년 텔로머레이스를 찾았습니다. 1992년 쿠리얀 연구진은 DNA를 감싸는 고리인 미끄럼 죔쇠의 구조를 풀었습니다. 캐리 멀리스는 1993년 PCR로 화학상을 함께 받았고, 1996년 투구와 마리안스의 오카자키 조각 시계가 뒤따랐으며, 2015년 린달, 모드리치, 산자르가 DNA 복구로 화학상을 함께 받았습니다. 무대 아래 도감에 각 연구의 카드와 원 논문이 있습니다.
화면에서 확인할 것
복제 중간에 멈추고 조작 탭에서 염기쌍 색을 끕니다. 이어진 주황색 선도 가닥을 찾은 뒤 청록색 지연 가닥 조각 위의 보라색 프라이머를 찾습니다. 방향 표시로 새 가닥을 5′에서 3′으로 따라갑니다. 중합효소 하나는 포크 쪽으로, 다른 하나는 반대쪽으로 일하지만 새 가닥이 자라는 화학적 방향은 같아야 합니다. 지연 가닥이라고 3′에서 5′으로 합성되는 것은 아닙니다.
그다음 속도를 그대로 두고 교정을 켠 경우와 끈 경우에 같은 구간을 재생합니다. 중합효소가 멈출 때 자홍색 오류 표시와 복제·오카자키 표의 값을 비교합니다. 이렇게 하면 미리 정해 둔 교정 지연의 효과만 비교할 수 있습니다. 두 실행 사이에 속도를 바꾸면 애니메이션 시계도 달라지므로 공정한 비교가 아닙니다. 교정을 끈 재생이 빠르다고 실제 세포가 복구를 끄면 이득을 얻는다는 증거가 되지는 않습니다.
마지막으로 메셀슨·스탈 실험을 켜고 세대별 시험관을 비교합니다. 한 세대 뒤 중간 띠는 보존적 모형을 제외하지만 그것만으로 분산적 복제를 제외하지는 못합니다. 두 번째 세대가 둘을 구분합니다. 하나의 띠가 점점 가벼운 쪽으로 이동하는 대신 혼성 띠와 가벼운 띠가 따로 나옵니다. 질소-15는 밀도 표지로 쓰는 안정 동위원소이지 방사성 추적자가 아닙니다. 시험관은 DNA 밀도를 나타내며 새 염기의 색을 나타내지 않습니다. 애니메이션은 포크의 작동을 설명하고, 시험관 실험은 부모 물질이 딸 분자에 어떻게 분배되는지를 시험합니다.
그다음 헬리케이스를 빠르게, 또 느리게 당겨 매번 포크가 끝까지 가게 두고, 오카자키 칸에서 지연 가닥 조각 수를 세어 보세요. 먼저 조각 수 맞히기에서 예상해 두면 좋습니다. 끝으로 교정을 켜고 끈 채 손으로 염기를 맞춰 보고 교정 칸을 비교하세요. 앞의 경우 틀린 염기는 되돌려지고, 뒤의 경우 남은 수로 세어집니다.
자주 묻는 질문
DNA 중합효소는 왜 두 가닥을 모두 이어서 만들지 못하나요?
중합효소는 3′ 끝에만 뉴클레오타이드를 붙일 수 있어서 새 가닥은 언제나 5′→3′ 방향으로 자랍니다. 두 주형은 서로 반대 방향이므로, 열리는 포크 쪽으로 자랄 수 있는 새 가닥은 하나뿐입니다. 다른 하나는 포크에서 멀어지는 쪽으로 조각조각 만들어야 합니다.
선도 가닥과 지연 가닥은 어떻게 다른가요?
선도 가닥은 프라이머 하나에서 시작해 한 줄로 만들어지고 헬리케이스를 뒤따릅니다. 지연 가닥은 저마다 프라이머를 가진 짧은 오카자키 조각으로 만들어지고, 나중에 DNA 리가아제가 조각을 잇습니다.
프라이머는 왜 RNA로 만드나요?
DNA 중합효소는 새 사슬을 시작하지 못하지만, RNA 중합효소인 프라이메이스는 시작할 수 있습니다. 짧은 RNA가 DNA 중합효소에게 이어 붙일 3′ 끝을 줍니다. 이 RNA는 나중에 떼어 내고 DNA로 바꿉니다.
DNA 중합효소는 얼마나 자주 틀리나요?
네이처 에듀케이션은 합성 중에 뉴클레오타이드 10만 개에 1개 정도가 틀린다고 적습니다. 교정이 그중 약 99%를 고치고, 복제가 끝난 뒤의 불일치 복구가 더 잡아냅니다.
DNA는 얼마나 빨리 복사되나요?
OpenStax에 따르면 대장균에서는 포크 하나가 초당 약 1,000 뉴클레오타이드를 진행합니다. 사람 세포에 대해서는 OpenStax가 초당 50~100개, 네이처 에듀케이션이 약 40개로 적습니다. 대신 포크 여러 개가 한꺼번에 일합니다.
반보존적 복제란 무엇인가요?
새로 생긴 이중나선 두 개가 저마다 원래 분자의 가닥 하나와 새로 만든 가닥 하나로 이루어진다는 뜻입니다. 1958년 메셀슨과 스탈이 무거운 질소와 가벼운 질소로 이것을 보였습니다.
염색체 끝에서는 어떤 일이 생기나요?
선형 염색체에서는 지연 가닥의 마지막 프라이머를 DNA로 바꿀 수 없어서, 분열할 때마다 끝이 조금씩 짧아질 수 있습니다. 자기 RNA 주형을 가진 효소인 텔로머레이스가, 이 효소가 활성인 세포에서 끝에 TTAGGG 반복을 덧붙입니다.
지연 가닥은 화학적으로 반대 방향으로 자라나요?
아닙니다. 새 가닥은 둘 다 5′→3′으로 자랍니다. 불연속적인 가닥이 포크에서 멀어지는 쪽으로 조각마다 자랄 뿐, 합성의 화학적 방향이 뒤집히지는 않습니다.
최종 오류율은 교정만으로 설명되나요?
아닙니다. 염기 선택, 교정, 불일치 복구가 각각 오류를 줄입니다. 세균의 약 10⁻⁵에서 10⁻¹⁰이라는 예에는 이 과정이 모두 들어갑니다. 사람 세포의 보편적인 돌연변이 개수를 뜻하지 않습니다.
질소-15는 방사성인가요?
아닙니다. 안정한 질소 동위원소입니다. 메셀슨과 스탈은 방사성 붕괴를 검출한 것이 아니라 DNA 밀도 차이를 추적했습니다.
PCR은 화면의 포크와 같은가요?
둘 다 주형과 중합효소를 쓰지만, 표준 PCR은 가열로 가닥을 떼고 공급한 DNA 프라이머로 표적을 고릅니다. 모형은 헬리케이스가 여는 세포 내 포크에서 RNA 프라이머와 지연 가닥 처리를 보여 줍니다.
오카자키 조각은 왜 길이가 제각각인가요?
길이는 포크가 얼마나 빨리 가는지에 비해 프라이메이스가 얼마나 자주 새 프라이머를 시작하는지에 달려 있습니다. 대장균에서는 프라이메이스가 12초마다 헬리케이스를 만나고 포크는 초당 약 1,000 뉴클레오타이드를 가므로 조각은 1,0002,000 뉴클레오타이드가 됩니다. 진핵세포의 조각은 약 200입니다. 무대에서는 속도를 높일수록 조각이 길어지고 적어집니다.
내 몸은 하루에 DNA를 얼마나 복제하나요?
어른 몸에서는 하루에 세포 약 3,300억 개가 바뀌고, 새 세포마다 염기쌍 약 64억 개, DNA 약 2.2 m의 사본이 필요합니다. 합하면 하루 수억 km로, 지구에서 태양까지 거리의 몇 배입니다. 무대 아래 계산기가 내 몸무게로 대략 계산해 줍니다.
용어
- 복제 포크: 이중나선이 열리며 복사되는 Y자 모양의 자리.
- 헬리케이스: 염기쌍 사이 수소결합을 끊어 두 가닥을 떼어 내는 효소.
- 토포아이소머레이스: DNA를 잘랐다 다시 이어 포크 앞의 과도한 꼬임을 푸는 효소.
- 단일가닥 결합 단백질(SSB): 외가닥 DNA를 덮어 다시 나선이 되지 않게 하는 단백질.
- 프라이메이스: 프라이머를 만드는 RNA 중합효소.
- 프라이머: DNA 중합효소에게 출발할 3′ 끝을 주는 짧은 RNA 가닥.
- 선도 가닥: 포크 쪽으로 끊김 없이 만들어지는 새 가닥.
- 지연 가닥: 포크 반대쪽으로 조각조각 만들어지는 새 가닥.
- 오카자키 조각: 지연 가닥을 이루는 짧은 조각 하나.
- 미끄럼 죔쇠: DNA 중합효소를 DNA에 붙잡아 두는 고리 모양 단백질(진핵세포에서는 PCNA).
- DNA 리가아제: 인산다이에스터 결합을 만들어 틈(닉)을 잇는 효소.
- 교정: 중합효소가 3′→5′ 핵산 분해 기능으로 잘못 붙인 뉴클레오타이드를 떼어 내는 일.
- 반보존적 복제: 새 이중나선마다 옛 가닥 하나가 남는 복제 방식.
출처
OpenStax, Biology 2e, 14.2 DNA Structure and Sequencing(염기쌍당 0.34 nm, 폭 2 nm, 한 바퀴 3.4 nm·염기쌍 10개). https://openstax.org/books/biology-2e/pages/14-2-dna-structure-and-sequencing (2026년 10월 16일 확인)
OpenStax, Biology 2e, 14.3 Basics of DNA Replication(메셀슨·스탈 실험, 반보존적 복제). https://openstax.org/books/biology-2e/pages/14-3-basics-of-dna-replication (2026년 10월 16일 확인)
OpenStax, Biology 2e, 14.4 DNA Replication in Prokaryotes(헬리케이스, SSB, 토포아이소머레이스, 5~10 뉴클레오타이드 프라이머, 미끄럼 죔쇠, DNA 중합효소 I과 리가아제, 대장균 460만 염기쌍 약 42분, 초당 1,000 뉴클레오타이드). https://openstax.org/books/biology-2e/pages/14-4-dna-replication-in-prokaryotes (2026년 10월 16일 확인)
OpenStax, Biology 2e, 14.5 DNA Replication in Eukaryotes(60억 염기쌍, 복제 원점 최대 10만 개, 초당 50~100 뉴클레오타이드, 중합효소 ε·δ, PCNA, RNase H, 텔로머레이스). https://openstax.org/books/biology-2e/pages/14-5-dna-replication-in-eukaryotes (2026년 10월 16일 확인)
OpenStax, Biology 2e, 14.6 DNA Repair(3′ 핵산 분해 기능에 의한 교정, 불일치 복구). https://openstax.org/books/biology-2e/pages/14-6-dna-repair (2026년 10월 16일 확인)
Nature Education, Scitable: Major Molecular Events of DNA Replication(진핵세포 초당 약 40 뉴클레오타이드, Okazaki 외 1968). https://www.nature.com/scitable/topicpage/major-molecular-events-of-dna-replication-413/ (2026년 10월 16일 확인)
Balakrishnan, L., Bambara, R. A., Okazaki fragment metabolism, Cold Spring Harbor Perspectives in Biology 5, a010173 (2013)(오카자키 조각 세균 약 1,200, 진핵세포 약 200 뉴클레오타이드). https://pmc.ncbi.nlm.nih.gov/articles/PMC3552508/ (2026년 10월 16일 확인)
Nature Education, Scitable: DNA Replication and Causes of Mutation(뉴클레오타이드 10만 개에 약 1개 오류, 교정이 약 99% 수정, 워블 짝짓기). https://www.nature.com/scitable/topicpage/dna-replication-and-causes-of-mutation-409/ (2026년 10월 16일 확인)
Nature Education, Scitable: Semi-Conservative DNA Replication: Meselson and Stahl(세 가지 모형과 1958년 실험). https://www.nature.com/scitable/topicpage/semi-conservative-dna-replication-meselson-and-stahl-421/ (2026년 10월 16일 확인)
Meselson, M., Stahl, F. W., The replication of DNA in Escherichia coli, Proceedings of the National Academy of Sciences 44, 671~682 (1958). https://pmc.ncbi.nlm.nih.gov/articles/PMC528642/ (2026년 10월 16일 확인)
Wang, J. C., Helical repeat of DNA in solution, Proceedings of the National Academy of Sciences 76, 200~203 (1979)(한 바퀴 10.4 ± 0.1 염기쌍). https://pmc.ncbi.nlm.nih.gov/articles/PMC382905/ (2026년 10월 16일 확인)
미국 국립인간게놈연구소(NHGRI), Talking Glossary: DNA Replication(사람 세포 하나의 복사에 몇 시간). https://www.genome.gov/genetics-glossary/DNA-Replication (2026년 10월 16일 확인)
NobelPrize.org, The Nobel Prize in Physiology or Medicine 1959(세베로 오초아, 아서 콘버그). https://www.nobelprize.org/prizes/medicine/1959/summary/ (2026년 10월 16일 확인)
Fijalkowska, I. J., Schaaper, R. M., Jonczyk, P., DNA replication fidelity in Escherichia coli: a multi-DNA polymerase affair, FEMS Microbiology Reviews 36, 1105~1121 (2012)(삽입 선택·교정·불일치 복구의 단계별 기여). https://pmc.ncbi.nlm.nih.gov/articles/PMC3391330/ (2026년 10월 22일 확인)
National Human Genome Research Institute, Telomere(염색체 말단 보호, 단축, 일부 세포의 텔로머레이스). https://www.genome.gov/genetics-glossary/Telomere (2026년 10월 22일 확인)
National Human Genome Research Institute, Polymerase Chain Reaction Fact Sheet(가열 분리, Taq 중합효소, 반복 복사 주기). https://www.genome.gov/about-genomics/fact-sheets/Polymerase-Chain-Reaction-Fact-Sheet (2026년 10월 22일 확인)
Tougu, K. and Marians, K. J., The interaction between helicase and primase sets the replication fork clock, Journal of Biological Chemistry 271, 21398 to 21405 (1996) (대장균에서 1~2초마다 오카자키 조각 하나). https://doi.org/10.1074/jbc.271.35.21398 (2026년 10월 27일 확인)
Sender, R. and Milo, R., The distribution of cellular turnover in the human body, Nature Medicine 27, 45 to 48 (2021) (하루 약 3,300억 개 세포 교체, 90 % 가까이가 혈액 세포). https://doi.org/10.1038/s41591-020-01182-9 (2026년 10월 27일 확인)
Sender, R., Fuchs, S. and Milo, R., Revised estimates for the number of human and bacteria cells in the body, PLoS Biology 14, e1002533 (2016) (70 kg 기준 남성의 사람 세포 약 30조 개). https://doi.org/10.1371/journal.pbio.1002533 (2026년 10월 27일 확인)
Cooper, G. M., The Cell: A Molecular Approach, 2nd edition, The Eukaryotic Cell Cycle (24시간 사람 세포 주기 가운데 S기 약 8시간). https://www.ncbi.nlm.nih.gov/books/NBK9876/ (2026년 10월 27일 확인)
OpenStax, Biology 2e, 10.3 Control of the Cell Cycle (빨리 나뉘는 사람 세포의 S기 약 10시간, 초파리 배아 세포 주기 약 8분). https://openstax.org/books/biology-2e/pages/10-3-control-of-the-cell-cycle (2026년 10월 27일 확인)
Watson, J. D. and Crick, F. H. C., Molecular structure of nucleic acids, Nature 171, 737 to 738 (1953). https://www.nature.com/articles/171737a0 (2026년 10월 27일 확인)
Cairns, J., The bacterial chromosome and its manner of replication as seen by autoradiography, Journal of Molecular Biology 6, 208 to 213 (1963). https://doi.org/10.1016/S0022-2836(63)80070-4 (2026년 10월 27일 확인)
Gellert, M., Formation of covalent circles of lambda DNA by E. coli extracts, Proceedings of the National Academy of Sciences 57, 148 to 155 (1967). https://doi.org/10.1073/pnas.57.1.148 (2026년 10월 27일 확인)
Okazaki, R. and colleagues, Mechanism of DNA chain growth, I, Proceedings of the National Academy of Sciences 59, 598 to 605 (1968). https://doi.org/10.1073/pnas.59.2.598 (2026년 10월 27일 확인)
De Lucia, P. and Cairns, J., Isolation of an E. coli strain with a mutation affecting DNA polymerase, Nature 224, 1164 to 1166 (1969). https://doi.org/10.1038/2241164a0 (2026년 10월 27일 확인)
Watson, J. D., Origin of concatemeric T7 DNA, Nature New Biology 239, 197 to 201 (1972). https://doi.org/10.1038/newbio239197a0 (2026년 10월 27일 확인)
Gellert, M., Mizuuchi, K., O'Dea, M. H. and Nash, H. A., DNA gyrase: an enzyme that introduces superhelical turns into DNA, Proceedings of the National Academy of Sciences 73, 3872 to 3876 (1976). https://doi.org/10.1073/pnas.73.11.3872 (2026년 10월 27일 확인)
Greider, C. W. and Blackburn, E. H., Identification of a specific telomere terminal transferase activity in Tetrahymena extracts, Cell 43, 405 to 413 (1985). https://doi.org/10.1016/0092-8674(85)90170-9 (2026년 10월 27일 확인)
Kong, X.-P., Onrust, R., O'Donnell, M. and Kuriyan, J., Three-dimensional structure of the beta subunit of E. coli DNA polymerase III holoenzyme: a sliding DNA clamp, Cell 69, 425 to 437 (1992). https://doi.org/10.1016/0092-8674(92)90445-I (2026년 10월 27일 확인)
NobelPrize.org, The Nobel Prize in Chemistry 1993 (캐리 멀리스, PCR)과 2015(린달·모드리치·산자르, DNA 복구). https://www.nobelprize.org/prizes/chemistry/2015/summary/ (2026년 10월 27일 확인)
함께 보면 좋은 전시
크리스퍼 유전자 가위 원리(CRISPR-Cas9)
가이드 RNA가 읽는 DNA는 20글자뿐인데, 대개 그것만으로 사람 유전체 염기쌍 30억 개 가운데 한 자리를 골라냅니다.
ATP 합성효소의 원리
미토콘드리아 속 ATP 합성효소의 회전자는 1초에 약 100바퀴 돌고, 한 바퀴마다 ATP를 세 개씩 내놓습니다.
세포 속을 걷기: 동물 세포, 식물 세포, 세균
세포를 100만 배로 키우면 미토콘드리아는 소파만 하고 대장균 한 마리는 길이 2 m이며, 소포를 끄는 키네신은 초속 0.8 m로 걷습니다.
신경 신호가 전해지는 원리
신경세포는 평소 −70 mV에 머물다가 자극이 막 전위를 −55 mV 근처까지 끌어올리면 언제나 같은 크기의 활동전위를 내보냅니다.
자이언트 세쿼이아 숲: 세상에서 가장 큰 나무 아래를 걷다
높이 83.8 m, 나이 약 2,200년인 제너럴 셔먼 나무 밑동에 서서 올려다본 뒤, 줄기를 올라 그 높이의 물이 얼마나 세게 당겨지는지 봅니다.
공룡 크기 비교로 보는 실제 크기 선사 동물 172종
첫 공룡부터 티라노사우루스까지, 선사 시대 동물 172종을 실제 크기로 시대 순서대로 세운 600 m 공원입니다.