그림 66원리관
신경 신호가 전해지는 원리
신경세포는 평소 −70 mV에 머물다가 자극이 막 전위를 −55 mV 근처까지 끌어올리면 언제나 같은 크기의 활동전위를 내보냅니다.
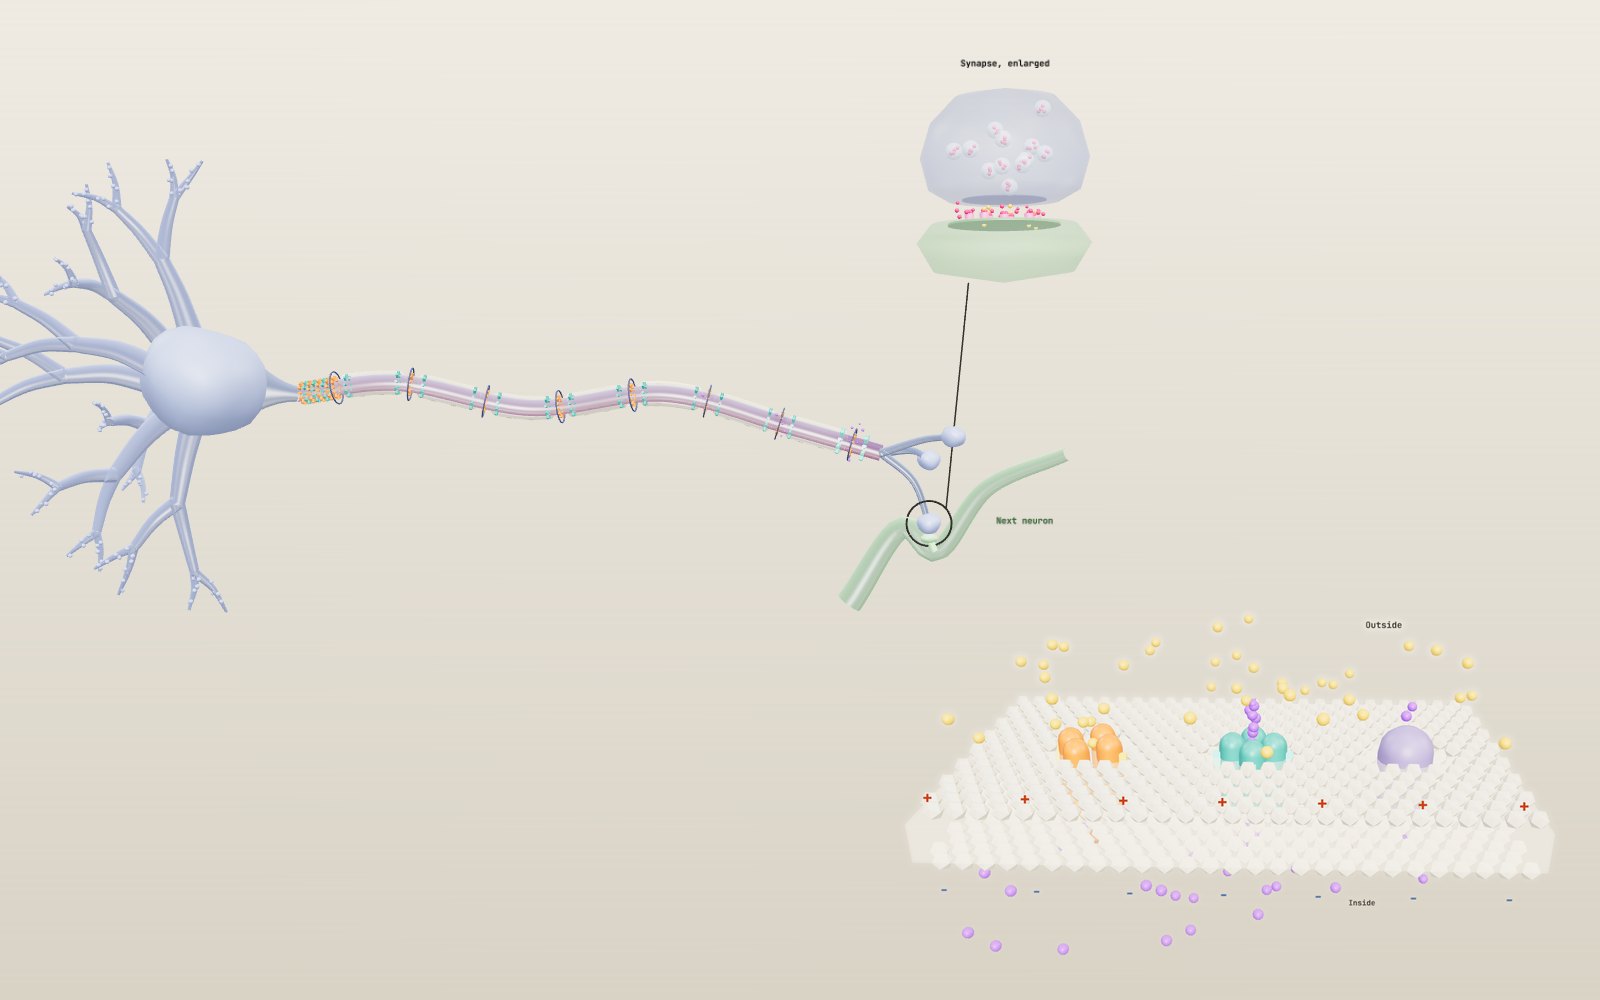
이 기기에서는 3D를 띄울 수 없습니다. 아래 안내 단계를 글로 볼 수 있습니다.
1 / 28 뉴런 하나를 처음부터 끝까지신호는 왼쪽 가지돌기로 들어와 오른쪽 축삭 말단으로 나갑니다. 축삭은 짧게 줄이고 실제보다 훨씬 굵게 그렸습니다. 구석의 그래프는 축삭 둔덕의 막 전위를 보여 줍니다. 모형 아래 막대를 누르면 장면 일곱 개가 더 열립니다.
끌어서 돌리고, 휠이나 두 손가락으로 확대하세요.
발가락을 찧으면 왜 아픔이 조금 늦게 올까요
문턱에 발가락을 찧으면 부딪힌 느낌이 먼저 오고, 아픔은 한 박자 늦게 옵니다. 두 소식 모두 같은 다리의 신경섬유를 타고 척수와 뇌로 올라가는데, 그 섬유의 생김새가 달라서 도착 시각이 어긋납니다. 미국 워싱턴 대학교 에릭 처들러의 「어린이를 위한 신경과학」 자료에 따르면 아픔을 나르는 가는 섬유는 시속 약 2.2마일(약 1 m/s)로 사람이 걷는 것보다 느리고, 촉감을 나르는 굵은 섬유는 비행기 속도에 가깝습니다.
그 차이 밑에는 모든 신경세포가 똑같이 쓰는 방법이 하나 있습니다. 뉴런은 안쪽을 늘 음전하로 유지하다가, 충분히 센 입력이 들어오면 약 2 ms 동안 그 전하를 뒤집고, 그 뒤집힘을 축삭을 따라 넘겨줍니다. 축삭 끝에서는 전기 신호가 화학 신호로 바뀌어 다음 세포로 건너갑니다.
전시는 뉴런 하나를 3D로 보여 주며 시작합니다. 입력의 세기를 바꾸고, 축삭의 말이집을 벗기고, 축삭 굵기를 바꾸고, 시냅스 하나를 확대해서 볼 수 있습니다. 모형 아래 막대를 누르면 장면 일곱 개가 더 있습니다. 하나는 이온 통로를 확대하고, 1940년대 실험처럼 막 전위를 한 값에 붙잡아 둡니다. 하나는 말이집 섬유와 맨 축삭을 1 m 경주시킵니다. 다른 장면들은 신경전달물질 다섯 가지가 일하는 모습을 보여 주고, 무릎 반사를 두드림에서 발차기까지 재고, 흥분성·억제성 입력을 더하고, 뉴런 여덟 종류를 나란히 세웁니다. 마지막은 접시에 놓인 오징어 거대 축삭입니다. 앨런 호지킨과 앤드루 헉슬리가 1952년에 발표한 방정식이 실시간으로 돌고, 전류와 온도와 독소 두 가지의 양을 바꿀 수 있습니다. 조작 탭 아래에는 직접 해 보는 과제 여덟 개와 이 분야 역사에서 고른 사례 51개가 있습니다.
소금물로 만든 전지
뉴런은 소금물이 든 주머니가 성분이 다른 소금물 속에 잠겨 있는 모양입니다. 안에는 칼륨이 많고 나트륨이 적으며, 바깥은 그 반대입니다. OpenStax 생물학 교과서는 나트륨이 바깥 145 mM, 안 12 mM이고, 칼륨이 바깥 4 mM, 안 155 mM이라는 대표값을 듭니다. 이 차이는 나트륨-칼륨 펌프가 지킵니다. 펌프는 ATP 한 분자를 쓸 때마다 나트륨 이온 셋을 밖으로 내보내고 칼륨 이온 둘을 안으로 들입니다.
막 자체는 이온을 통과시키지 않습니다. 이온은 통로 단백질로만 지나가는데, 쉬고 있을 때 열려 있는 통로는 대부분 칼륨 통로입니다. 칼륨은 농도 차이를 따라 밖으로 새어 나가며 양전하를 하나씩 들고 나가고, 그렇게 남은 음전하가 나머지 칼륨을 붙잡을 때까지 이어집니다. 세포 안과 밖에 전극을 하나씩 꽂아 재면 그 결과가 약 −70 mV로 나옵니다. 이것이 휴지 막 전위입니다. OpenStax는 정확한 값이 뉴런의 종류와 동물 종에 따라 다르다고 덧붙이지만, 교과서 대부분과 이 모형은 −70 mV를 씁니다.
전시에서 파란 막은 쉬고 있는 막입니다. 구석의 그래프는 축삭 둔덕의 막 전위를 그리는데, 자극 세기를 0에 두면 −70 선 위에서 평평하게 이어집니다.
통로 안을 들여다보면
이온은 단백질을 통해서만 막을 건넙니다. 이온 통로 장면은 인지질 이중층 한 조각에 박힌 단백질 세 개를 확대합니다. 하얀 구슬은 지질의 머리 부분입니다. 두 겹 사이에는 기름진 층이 있어서 이온이 혼자서는 건너지 못합니다.
주황색 단백질은 전압 개폐 나트륨 통로입니다. 긴 사슬 하나가 접혀서 가운데 구멍 둘레에 비슷한 영역 네 개를 이룹니다. 교토의 누마 쇼사쿠 연구진이 1984년 전기뱀장어 나트륨 통로의 유전자를 읽어 밝힌 구조입니다. 영역마다 노란 막대로 그린 전압 감지기가 있어서, 세포 안쪽이 덜 음전하가 되면 바깥으로 움직입니다. 안쪽에는 사슬에 매달린 빨간 공으로 그린 고리가 있습니다. 통로가 열리고 약 1 ms가 지나면 이 고리가 구멍으로 들어가 막습니다. 막 전위가 휴지 전위 가까이 돌아오고 고리가 다시 빠져나올 때까지 통로는 다시 열리지 못합니다.
청록색 단백질은 전압 개폐 칼륨 통로로, 따로 떨어진 소단위 네 개가 구멍을 둘러쌉니다. 감지기가 더 느리게 움직여서 나트륨 통로보다 늦게 열리고, 빠르게 막는 고리는 없습니다. 1998년 로더릭 매키넌 연구진은 세균 칼륨 통로의 구조를 풀고, 산소 원자가 늘어선 좁은 거름 부위가 칼륨은 통과시키고 더 작은 나트륨은 돌려보내는 방법을 보였습니다. 이 연구로 2003년 노벨 화학상을 공동 수상했습니다.
오른쪽의 보라색 단백질은 나트륨-칼륨 펌프입니다. 옌스 스코우가 1957년 게 신경에서, 나트륨과 칼륨이 함께 있을 때만 ATP를 쪼개는 효소로 찾아냈고, 1997년 노벨 화학상을 공동 수상했습니다. ATP 하나마다 나트륨 이온 3개를 내보내고 칼륨 이온 2개를 들입니다. 펌프는 통로에 비해 느리고, 활동전위를 만들지도 않습니다. 몇 분, 몇 시간에 걸쳐 농도 차이를 지키는 것이 그 일입니다.
전압을 붙잡아 두는 방법
이 장면은 호지킨과 헉슬리가 쓴 전압 고정을 돌립니다. 증폭기가 막 전위를 재고, 그 값을 정한 자리에 붙잡아 두는 데 필요한 만큼 전류를 넣습니다. 넣어 준 전류는 통로로 흐르는 전류와 크기가 같고 방향이 반대입니다. 그래서 스스로 불어나는 빠른 사건을 한 조각씩 잴 수 있게 됩니다.
고정 순서는 막을 −65 mV에 3 ms 동안 두었다가, 고정 전압 값으로 12 ms 동안 올리고, 다시 돌아옵니다. 기본값인 −10 mV 계단에서 그래프에는 전류 두 개가 나옵니다. 나트륨 전류(주황, 양전하가 안으로 들어오므로 아래로 그림)는 0.7 ms 뒤 약 1,430 µA/cm²로 가장 커졌다가, 전압이 그대로인데도 사라집니다. 칼륨 전류(청록, 위로)는 천천히 올라가서 계단이 끝날 때도 약 1,430 µA/cm²로 흐르고 있습니다. 판독의 백분율은 모형에서 각 통로가 열린 비율로, 나트륨은 m³h, 칼륨은 n⁴입니다.
+50 mV로 올리면 나트륨 전류가 사라집니다. 오징어 모형에서 +50 mV가 나트륨의 평형 전위라서 통로가 열려도 나트륨이 알짜로 움직이지 않기 때문입니다. +60 mV로 올리면 전류가 뒤집혀 바깥으로 흐릅니다. 호지킨과 헉슬리는 바로 이런 뒤집힘으로 어느 이온이 어느 전류를 나르는지 증명했습니다. TTX와 TEA 조작 막대는 통로를 종류별로 일부 막아서 두 곡선을 따로 바꿉니다.
입력은 축삭 둔덕에서 더해집니다
가지돌기는 신호를 받는 쪽입니다. 다른 뉴런이 내놓은 신경전달물질이 가지돌기의 통로를 열면 양전하가 조금 들어오고, 그 자리의 막이 덜 음전하가 됩니다. 이런 등급 전위는 작고, 퍼지면서 약해집니다. 대신 여러 개가 함께 도착하면 더해집니다. OpenStax는 이를 가중(summation)이라 부르고, 더해지는 곳이 축삭 둔덕이라고 설명합니다. 축삭 둔덕은 세포체에서 축삭이 시작되는 원뿔 모양 부분이고, 바로 뒤에 축삭 시작 부위가 이어집니다. 이 구간에는 전압 개폐 나트륨 통로가 빽빽해서 방아쇠 구역이라고도 부릅니다.
자극 세기를 +10 mV로 두고 노란 구슬이 가지돌기를 따라 내려오는 모습을 보세요. 입력이 한 번 들어올 때마다 축삭 둔덕이 −60 mV까지 올라갔다가 다시 가라앉고, 축삭으로는 아무것도 넘어가지 않습니다.
공간과 시간으로 더해집니다
실제 뉴런은 입력을 하나씩 받지 않습니다. 대뇌겉질의 피라미드 세포는 가지돌기에 시냅스 수천 개가 있고, 그중 일부는 흥분시키고 일부는 억제합니다. 입력 합산 장면에는 가지돌기에 흥분성 시냅스 여섯 개(초록)가 있고, 방아쇠 부위 바로 옆 세포체에 억제성 시냅스 하나(빨강)가 있습니다. 방아쇠 부위는 활동전위가 시작되는 축삭의 첫 구간입니다.
모형에서 흥분성 입력 하나는 최고 4 mV를 더하고, 약 1 ms 만에 오른 뒤 시간 상수 15 ms로 줄어듭니다. 역치는 휴지 전위 −70 mV보다 15 mV 위로, 뉴런 장면과 같습니다. 입력 셋이 함께 오면 −58 mV까지 올라가고 실패합니다. 넷이 함께 오면 −54 mV에 닿아 방아쇠 부위가 발화합니다. 서로 다른 곳의 입력이 함께 도착해 더해지는 것, 이것이 공간 가중입니다.
이번에는 입력을 벌려 봅니다. 입력 간격은 한 입력과 다음 입력 사이의 시간입니다. 입력 넷이 2 ms씩 벌어지면 마지막 입력이 도착할 때 첫 입력은 벌써 줄어들기 시작해서, 최고값이 −55.7 mV로 아슬아슬하게 모자랍니다. 입력이 여덟이면 4.5 ms 간격까지 벌려도 발화합니다. 이것이 시간 가중이고, 입력의 수만큼 입력의 때도 중요한 까닭입니다.
억제는 합을 바꿉니다. 입력 다섯이 함께 오면 −50 mV까지 가지만, 같은 순간 6 mV 이상의 억제성 입력이 오면 세포는 역치 아래에 머뭅니다. 뇌에서 빠른 억제는 대부분 GABA가 염화 이온 통로를 열어서 일어나고, 억제성 시냅스는 세포체나 그 근처에 있는 경우가 많아서 가지돌기 전체에서 오는 입력을 상쇄합니다. 존 에클스는 척수 운동 뉴런에서 이런 억제성 전위를 기록했고, 1963년 호지킨, 헉슬리와 함께 노벨상을 받았습니다.
입력 하나에 4 mV는 몇 개만으로 발화하도록 고른 모형 값입니다. 겉질 뉴런의 시냅스 하나는 보통 세포체를 1 mV에도 훨씬 못 미치게 움직이므로, 실제 세포에는 가까운 때에 도착하는 입력 수십 개가 필요합니다.
역치와 실무율
전압 개폐 나트륨 통로는 막 전위가 약 −55 mV에 이르면 열립니다. 이 값이 역치입니다. 통로 몇 개가 열리면 나트륨이 밀려 들어와 막이 더 탈분극하고, 그러면 통로가 더 열립니다. 이 되먹임이 걷잡을 수 없이 이어져 막 전위가 0을 지나 약 +30 mV까지 치솟습니다.
다시 내려오는 데에는 두 가지가 작용합니다. 나트륨 통로에는 문이 하나 더 있어서 1 ms도 안 되어 스스로 닫히고, 들어오던 나트륨이 멈춥니다. 같은 무렵 반응이 느린 전압 개폐 칼륨 통로가 열려 칼륨이 빠져나갑니다. 막 전위는 떨어지면서 칼륨 통로가 늦게 닫히는 탓에 잠깐 −70 mV 아래로 내려갔다가 제자리를 찾습니다. OpenStax에 따르면 이 모든 일이 약 2 ms 안에 끝납니다.
역치에 못 미치면 이 과정은 전혀 일어나지 않고, 역치에 닿으면 매번 같은 높이로 끝까지 일어납니다. 자극 세기를 +15에서 +30 mV 사이로 움직이면 그래프의 활동전위는 일찍 시작하지만 꼭대기 높이는 꿈쩍하지 않습니다. 이것을 실무율(all-or-none)이라고 합니다. 자극이 세다고 활동전위가 커지지는 않습니다. 실제 뉴런에서는 대신 더 자주 발화하고, 모형도 슬라이더를 올릴수록 조금 더 자주 발화합니다.
오징어 축삭과 1952년의 방정식
1936년 동물학자 J. Z. 영은 오징어 외투막을 따라 지나가는 관이, 혈관으로 여겨지던 것과 달리 지름이 최대 약 1 mm에 이르는 신경섬유 하나라는 것을 보였습니다. 이 섬유는 오징어가 물을 뿜어 달아나게 하고, 안에 전선을 밀어 넣을 수 있을 만큼 굵습니다. 1939년 호지킨과 헉슬리는 플리머스 연구소에서 실제로 그렇게 해서, 축삭 안에서 막 전위를 처음 기록했습니다. 활동전위는 율리우스 베른슈타인의 막 이론이 예측한 대로 0에서 멈추지 않고, 0을 수십 mV 넘어섰습니다.
전쟁이 끝난 뒤 두 사람은 축삭 안에 은선을 꿰어 축삭 전체가 막 한 조각처럼 움직이게 하고 전압 고정을 걸었습니다. 전압마다 나트륨 전류와 칼륨 전류가 어떻게 켜지고 꺼지는지 재어, 1952년 방정식으로 정리했습니다. m, h, n이라는 문 세 개가 전압에 따라 정해지는 속도로 열리고 닫힙니다. 나트륨 전도도는 120 mS/cm²에 m³h를 곱한 값, 칼륨은 36 mS/cm²에 n⁴를 곱한 값이고, 0.3 mS/cm²의 작은 누설이 회로를 마무리합니다. 속도 상수는 6.3 °C에서 쟀고, 논문은 10 °C마다 3배씩 바꿉니다.
오징어 축삭 실험 장면은 이 방정식을 눈앞에서 돌립니다. 판독의 회색 곡선은 전선이 40 ms 동안 기록한 막 전위입니다. 접시 속 축삭은 같은 방정식이 예측하는 속도로 활동전위가 지나가면서 색이 바뀝니다.
방정식이 하는 일
6.3 °C에서 모형은 −65 mV에서 쉬고, 그때 문은 m = 0.053, h = 0.596, n = 0.318입니다. 1 ms 펄스로 발화시키려면 6.9 µA/cm²가 필요합니다. 그보다 약하면 막 전위가 조금 올랐다가 가라앉습니다. 7 µA/cm²에서는 활동전위가 펄스 시작 후 약 5 ms 만에 늦게 나오고 최고값이 +35 mV 근처입니다. 20 µA/cm²에서는 1.3 ms 만에 나오고 +41 mV 근처까지 오르며, 전류를 다시 두 배로 올려도 1 mV도 더 오르지 않습니다. 역치보다 한참 위에서는 높이가 거의 바뀌지 않습니다. 역치 바로 위에서는 방정식이 조금 작은 활동전위를 내는데, 교과서의 실무율 규칙이 뭉뚱그려 넘기는 부분입니다. 활동전위 뒤에는 막 전위가 약 −76 mV까지 내려가 칼륨 평형 전위 −77 mV에 가까워집니다. 칼륨 문이 아직 열려 있기 때문입니다.
둘째 펄스 간격은 펄스를 한 번 더 넣습니다. 20 µA/cm² 펄스 두 개에서는 둘째 펄스가 첫째보다 10.6 ms 안에 오면 실패합니다. 전류를 40 µA/cm²로 두 배 올리면 7.8 ms 간격으로도 충분합니다. 이것이 상대 불응기입니다. 회복하는 동안에는 더 센 자극이 막을 더 일찍 발화시킬 수 있습니다. 처음 몇 ms 안에는 어떤 펄스로도 발화하지 않는데, 이것이 절대 불응기입니다.
계속 자극은 펄스 대신 150 ms 동안 이어지는 계단 전류를 넣습니다. 약 6.3 µA/cm²부터 축삭이 거듭 발화합니다. 10 µA/cm²에서는 69 Hz, 20 µA/cm²에서는 87 Hz, 50 µA/cm²에서는 118 Hz입니다. 신경세포가 세기를 빈도로 바꾸는 방식이고, 1926년 에드거 에이드리언이 감각 섬유에서 들은 신호 방식입니다.
온도는 세 문을 한꺼번에 빠르게 합니다. 18.5 °C에서는 문이 3.8배 빨리 움직이고, 활동전위는 좁아지고 낮아져 +33 mV 근처가 최고값이며, 1 ms 펄스의 역치는 8.9 µA/cm²로 올라갑니다. 25 °C에서는 최고값이 약 +19 mV에 그치고, 약 28 °C부터는 20 µA/cm² 펄스로 아예 발화하지 않습니다. 나트륨 비활성화와 칼륨 활성화가 나트륨 활성화를 따라잡아, 활동전위가 자라기 전에 꺾이기 때문입니다.
얼마나 빨리 가는가
1952년 논문의 다섯째 부분은 한 걸음 더 나아갔습니다. 잰 섬유 반지름 238 µm와 축삭 안 액체의 비저항 35.4 Ω cm를 써서 축삭을 따라 이동하는 활동전위를 풀었고, 18.5 °C에서 18.8 m/s를 얻었습니다. 같은 축삭에서 잰 값은 21.2 m/s였습니다. 헉슬리는 이 계산을 손잡이를 돌리는 기계식 계산기로 했습니다.
같은 계산을 다른 방법으로 되풀이해 보았습니다. 6 cm 축삭을 짧은 조각으로 나누고 케이블 전체를 시간에 따라 한 걸음씩 진행시킵니다. 조각 길이가 0.5 mm이면 18.7 m/s, 0.25 mm이면 18.73 m/s로 자리를 잡아 논문 값과 0.5%도 차이 나지 않습니다. 6.3 °C에서는 같은 케이블이 12.3 m/s로 전도합니다. 실험 장면은 이렇게 계산한 속도로 축삭에 색을 입힙니다.
독소 두 가지
복어 독인 테트로도톡신(TTX)은 전압 개폐 나트륨 통로의 바깥 입구에 박혀 통로를 막습니다. 나라하시 도시오 연구진은 1964년 바닷가재 거대 축삭에서 TTX가 나트륨 전류만 없애고 칼륨 전류는 그대로 둔다는 것을 보였습니다. 모형에서 20 µA/cm² 펄스는 나트륨 통로의 71%가 막혀도 발화하고, 그보다 많이 막히면 실패합니다. 100%에서는 펄스가 막을 밀어 올렸다가 내려놓을 뿐이고, 축삭을 따라가는 물결이 사라집니다.
테트라에틸암모늄(TEA)은 칼륨 통로를 막습니다. 모형에서 절반을 막으면, 막을 단단히 끌어내리는 힘이 없어서 펄스 한 번에 활동전위가 세 번 연달아 나옵니다. 90%를 막으면 휴지 전위가 올라가서 나트륨 통로가 비활성화된 채로 머물고, 아무것도 발화하지 않습니다. 두 독소는 생리학자가 쓰는 도구로서만 보여 줍니다. 위험한 물질이며, 이 전시는 약이나 치료에 관해서는 아무것도 말하지 않습니다.
신호가 한쪽으로만 가는 까닭
축삭 둔덕에서 활동전위가 생기면 양전하가 축삭 안쪽을 따라 밀려갑니다. 그 전하가 바로 옆 막을 역치까지 끌어올리면 그곳의 나트륨 통로가 열리고, 그 막이 이어서 발화합니다. 방금 발화한 뒤쪽 막은 나트륨 통로가 아직 닫혀 잠겨 있어서 곧바로 다시 발화하지 못합니다. 이 시간을 절대 불응기라고 하며, 그래서 활동전위는 말단 쪽으로만 가고 세포체 쪽으로 되돌아오지 않습니다.
말이집이 없는 축삭에서는 막의 모든 곳이 이 일을 차례로 해야 합니다. 그래서 신호는 끊김 없는 물결이 되고, 느립니다. 조작 탭에서 말이집을 끄면 호박색 띠가 축삭을 따라 기어가는 모습이 보입니다.
말이집과 랑비에 결절
척추동물의 빠른 축삭은 대부분 말이집에 싸여 있습니다. 말이집은 아교세포의 막을 여러 겹 감은 것입니다. 뇌와 척수 바깥의 신경에서는 슈반세포 하나가 축삭의 한 구간을 감싸고, 뇌와 척수 안에서는 희소돌기아교세포 하나가 여러 갈래를 뻗어 여러 축삭을 감쌉니다. 말이집은 절연체 노릇을 해서, 전류가 막 밖으로 새지 않고 축삭 안쪽을 따라 멀리 퍼지게 합니다.
말이집은 이어져 있지 않습니다. 감싼 마디 사이사이에 길이 약 1 µm의 틈이 있는데, 이것이 랑비에 결절이고 전압 개폐 나트륨 통로가 모여 있는 자리입니다. 한 결절에서 생긴 활동전위가 절연된 구간을 지나 다음 결절을 역치까지 끌어올리면, 활동전위가 그 결절에서 새로 만들어집니다. 결절에서 결절로 건너뛰는 것처럼 보여서 도약 전도라고 하고, 영어 이름 saltatory도 라틴어 「뛰다」에서 왔습니다. 모형에서는 결절이 차례로 빛나고, 그 사이 구간은 희미하게만 밝아집니다.
효과는 큽니다. 퍼브스 등의 『신경과학』은 말이집 없는 축삭의 전도 속도를 약 0.5~10 m/s, 말이집 축삭은 최대 150 m/s로 듭니다. 굵기도 중요합니다. 축삭이 굵으면 안쪽 저항이 작아 전하가 더 멀리 퍼집니다. 축삭 지름을 바꾸면 구석의 속도도 따라 바뀌어, 굵을수록 빠르고 가늘수록 느립니다.
빨리 가는 두 가지 방법
말이집 경주 장면은 축삭 두 개를 1 m 나란히 놓습니다. 둘 다 10 µm에서 시작합니다. 말이집 섬유는 17.5 ms 만에, 맨 축삭은 316 ms 만에 도착해 18배 차이가 납니다. 위쪽 섬유의 빛은 결절에서 결절로 건너뜁니다. 말이집은 12마디만 그렸지만, 10 µm 섬유라면 1 m에 약 1,000마디가 있고, 한 마디는 약 1 mm이며 약 18 µs에 건넙니다.
동물은 속도 문제에 두 가지 답을 찾았습니다. 척추동물은 빠른 축삭을 말이집으로 감쌉니다. 오징어를 비롯한 많은 무척추동물은 대신 축삭을 굵게 만듭니다. 굵은 축삭은 안쪽 저항이 작아서 전류가 더 멀리 퍼지기 때문입니다. 맨 축삭 지름을 호지킨과 헉슬리 축삭 크기인 476 µm로 올리면, 모형의 제곱근 규칙으로 21.8 m/s가 나와 두 사람이 잰 21.2 m/s와 가깝습니다. 옆의 말이집 섬유보다 50배쯤 굵은데도 여전히 3배 가까이 느립니다. 말이집 섬유는 지름 약 4 µm만으로 21 m/s에 이르니, 단면적이 1만 배 넘게 작습니다. 사람의 신경 하나에 빠른 섬유 수천 개가 들어갈 수 있는 까닭 가운데 하나입니다.
지금까지 잰 것 중 가장 빠른 섬유는 자기만의 말이집을 가진 무척추동물에게 있습니다. 쉬커(Ke Xu)와 데라카와 스스무는 보리새우 무리의 거대 섬유를 정리했는데, 그 전도 속도는 200 m/s가 넘습니다. 이 말이집은 축삭과의 사이에 넓은 틈을 남기고, 보통 결절 대신 작은 창이 나 있습니다.
말이집 손상을 켜면 섬유 가운데 한 구간에서 말이집이 사라집니다. 모형은 그 구간을 맨 축삭으로 다뤄서 신호가 거기서 느려지고 늦게 도착합니다. 실제 신경에서는 나트륨 통로가 드문 드러난 막으로 전류가 새어 나가 신호가 아예 끊기기도 합니다. 면역계가 말이집을 공격하는 병, 예를 들어 뇌와 척수의 다발경화증이나 말초신경의 길랭-바레 증후군에서는 이런 식으로 전도가 느려지거나 막힙니다. 장면은 원리만 보여 줍니다. 미국 국립보건원 소속 NINDS가 두 질환의 환자용 정보를 제공합니다.
숫자로 확인하기
휴지 전위는 칼륨의 평형 전위에 가깝고, 그 값은 네른스트 식으로 안팎 농도에서 바로 구할 수 있습니다.
E = (RT / zF) × ln(바깥 농도 / 안 농도)
체온 37 °C에서 RT/F는 26.73 mV이고, 농도가 열 배 차이 날 때마다 61.54 mV가 됩니다. 칼륨은 61.54 × log₁₀(4/155) = −97.7 mV입니다. 나트륨은 61.54 × log₁₀(145/12) = +66.6 mV입니다. 음전하를 띤 염화 이온은 같은 방식으로 −90.9 mV가 나옵니다.
−70 mV가 이 값들 사이에 있는 까닭은 쉬고 있는 막도 나트륨을 조금은 들여보내기 때문입니다. 골드만 식은 이온마다 막을 지나가는 쉬움을 가중치로 줍니다. 나트륨이 칼륨의 20분의 1 정도로 지나간다고 하면(염화 이온은 빼고) −70.2 mV가 나옵니다. 그 비를 100분의 1로 줄이면 −89.5 mV로 내려가고, 10분의 1로 키우면 −57.0 mV로 올라갑니다. 활동전위 꼭대기 +30 mV가 나트륨의 +66.6 mV에 한참 못 미치는 것은 거기까지 가기 전에 나트륨 통로가 잠기고 칼륨 통로가 열리기 때문입니다.
전도 속도에는 규칙 두 개를 썼습니다. 말이집 섬유는 지름 1 µm마다 약 5.7 m/s로, 워싱턴 대학교(세인트루이스) 신경근육질환센터 자료의 경험식입니다. 말이집 없는 축삭은 지름 1 µm에서 가는 통증 섬유와 같은 1 m/s로 두고, 지름의 제곱근에 비례해 빨라지게 했습니다. 지름 10 µm에서는 말이집이 있으면 57 m/s, 없으면 3.16 m/s로 18배 차이입니다. 축삭 1 m를 지나는 데 앞의 경우 17.5 ms, 뒤의 경우 316 ms가 걸립니다. 지름 20 µm 말이집 섬유는 114 m/s이고, 슬라이더 전체 범위에서 값이 교과서 범위 안에 머뭅니다.
같은 자료는 말이집 마디 길이를 축삭 지름의 약 100배로 듭니다. 지름 10 µm 섬유라면 약 1 mm이고, 57 m/s로 가면 결절 사이가 17.5 µs입니다. 자료가 제시한 약 25 µs와 같은 크기입니다. 모형의 역치는 입력이 15 mV를 더할 때 닿습니다. +20 mV는 0.42 ms 만에, +30 mV는 0.23 ms 만에 역치를 넘습니다. 이 숫자들은 모두 수치 계산으로도 확인한 값입니다.
시냅스에서 전기가 화학으로 바뀝니다
축삭 끝에서 신호는 다음 세포까지 틈을 건너야 합니다. 활동전위가 말단 가지 끝의 부푼 단추에 닿으면 전압 개폐 칼슘 통로가 열려 칼슘이 들어옵니다. 칼슘은 막에 붙어 있던 시냅스 소포를 막과 합치게 하고, 소포 속 신경전달물질이 시냅스 틈으로 쏟아집니다. 신경전달물질은 틈을 건너 다음 뉴런의 수용체 단백질에 붙습니다. 수용체 가운데 상당수는 그 자체가 이온 통로라서, 물질이 붙으면 열리고 양이온이 들어가 그 세포를 역치 쪽으로 밀어 줍니다. 그다음 신경전달물질은 분해되거나, 흩어지거나, 펌프로 다시 거둬들여지고, 시냅스는 다음 신호를 받을 준비를 마칩니다.
OpenStax는 활동전위가 도착하고 건너편 통로가 열리기까지 약 1 ms가 걸린다고 설명합니다. 모형의 확대 장면에서 칼슘은 초록, 신경전달물질은 분홍이고, 수용체는 물질이 붙어 있는 동안 빛납니다.
신경전달물질 다섯 가지
시냅스 장면은 시냅스 하나를 소포와 틈과 수용체가 무대를 채울 만큼 확대합니다. 전달물질은 잘 알려진 신경전달물질 다섯 가지를 오가며, 물질마다 수용체와 반응과 틈을 치우는 방법이 달라집니다.
- 글루탐산은 뇌의 주된 빠른 흥분성 전달물질입니다. 수용체 대부분이 이온 통로(AMPA, NMDA 수용체)라서 1 ms 안에 양이온을 들여보내고, 빠른 흥분성 시냅스후전위(EPSP)를 만듭니다. 수송체가, 그중 많은 수는 별아교세포에 있는 수송체가, 틈에서 거둬들입니다.
- GABA는 주된 억제성 전달물질입니다. GABA-A 수용체는 염화 이온 통로이고, 반응은 세포를 역치에서 멀어지게 하는 억제성 시냅스후전위(IPSP)입니다. GABA는 글루탐산으로 만들고 자기 수송체가 치웁니다.
- 아세틸콜린은 운동 뉴런의 신호를 니코틴성 수용체(이온 통로)를 통해 골격근에 넘깁니다. 통째로 다시 흡수되지 않습니다. 틈 안의 아세틸콜린에스테라아제가 쪼개고, 콜린을 다시 씁니다. 1921년 오토 뢰비가 개구리 심장 두 개로 한 실험이 신경이 화학물질을 내놓는다는 것을 처음 보였고, 그 물질이 아세틸콜린으로 밝혀졌습니다.
- 도파민은 G단백질과 짝지은 수용체(D1~D5)를 통해서만 작용합니다. 반응은 늦게 시작하고, 작고, 오래가며, 주로 표적 세포가 다른 입력에 답하는 방식을 바꿉니다. 중간뇌의 뉴런이 선조체와 대뇌겉질로 보내고, 도파민 수송체가 치웁니다.
- 세로토닌은 솔기핵 뉴런이 트립토판으로 만들고, 그 뉴런은 뇌 대부분에 닿습니다. 수용체는 거의 모두 G단백질과 짝지어 있고, 이온 통로인 5-HT3 수용체만 예외입니다. 세로토닌 수송체가 치웁니다.
재흡수를 끄면 수송체가 멈춥니다. 그러면 분자가 틈에 더 오래 머물고 반응도 길게 늘어납니다. 어떤 약은 수송체를 늦춰서 바로 이 단계에 작용합니다. 장면은 원리만 보여 줍니다.
틈은 약 20 nm라서 건너는 데 µs 단위면 됩니다. 약 1 ms인 시냅스 지연은 대부분 칼슘이 들어오고 소포가 막과 합쳐지는 데 쓰입니다. 버나드 카츠와 호세 델 카스티요는 1954년 개구리 신경근 접합부에서 전달물질이 일정한 크기의 꾸러미로 나온다는 것을 보였고, 이 꾸러미는 나중에 소포 하나와 맞아떨어졌습니다. 카츠는 1970년 노르아드레날린을 전달물질로 밝힌 울프 폰 오일러, 그리고 노르아드레날린이 방출된 뒤 신경 말단으로 다시 흡수된다는 것을 보인 줄리어스 액슬로드와 함께 노벨상을 받았습니다.
무릎 반사, 시간을 재면
의사가 무릎뼈 아래를 두드리면 허벅지 근육이 한순간 늘어납니다. 근육 안의 늘어남 감지기인 근방추가 발화하고, 신호는 굵은 감각 섬유(Ia 섬유)를 타고 뒤뿌리를 지나 척수로 들어갑니다. 거기서 섬유마다 같은 근육의 운동 뉴런에 바로 시냅스를 만들고, 운동 뉴런의 축삭이 명령을 곧장 다시 내려보냅니다. 근육이 오그라들고 다리가 튀어 오릅니다. 경로에 시냅스가 하나뿐이라서 이렇게 빠릅니다. 같은 때 감각 섬유의 곁가지는 억제성 사이뉴런을 흥분시켜 허벅지 뒤쪽 근육을 풀어 줍니다. 찰스 셰링턴이 상반 억제라고 부르는 이 짜임새를 풀어냈고 시냅스라는 낱말을 만들었습니다. 1932년 에이드리언과 함께 노벨상을 받았습니다.
무릎 반사 장면은 이 왕복을 잽니다. 모형은 근육에서 척수까지 편도 경로를 키의 일정 비율로 잡습니다. 무릎은 키의 0.29로, 그 운동 뉴런은 척수 L3·L4 마디에 있습니다. 종아리는 0.52로, S1 마디가 맡습니다. 신호는 들어갈 때 65 m/s, 나올 때 55 m/s로, 굵은 말이집 섬유의 범위 안에 있는 값입니다. 여기에 근방추, 척수 안 시냅스, 신경근 접합부에서 1 ms씩 세 번 지연을 더합니다. 키 175 cm인 사람이라면 편도 0.51 m, 들어가는 데 7.8 ms, 나오는 데 9.2 ms, 모두 20.0 ms입니다.
측정값과 맞습니다. 노팅엄 대학교의 헬렌 비커리와 폴 스미스는 젊은 성인 28명의 허벅지에 표면 전극을 붙여 무릎 반사를 기록했고, 여성 17 ms, 남성 21 ms를 얻었습니다. 암스테르담의 C. J. 프레인스 연구진은 건강한 사람 102명의 무릎·발목 반사를 재어, 지연이 키와 함께 길어진다는 것을 찾았습니다. 상관계수는 무릎 0.70, 발목 0.72였습니다. 한 사람 안에서는 두드릴 때마다 지연이 거의 바뀌지 않았습니다.
두드릴 곳을 발목으로 바꿔 보세요. 종아리에서 오는 길은 거의 두 배라서, 175 cm에서 모형은 33.5 ms를 냅니다. 워싱턴 대학교(세인트루이스) 신경근육질환센터는 가자미근 H 반사를 약 30 ms로 듭니다. H 반사는 근방추 대신 신경에서 신호를 시작하는, 발목 반사의 전기 버전입니다. 키를 140 cm에서 200 cm로 바꾸면 무릎 반사는 16.6 ms에서 22.5 ms로 늘어납니다.
이 과정에는 뇌가 끼어들지 않습니다. 그래서 무릎 반사는 일부러 하는 어떤 반응보다 빠릅니다. 마음먹고 하는 반응에는 수백 ms가 걸리고, 반응 속도 전시에서 내 반응 시간을 잴 수 있습니다.
뉴런의 여러 모양
산티아고 라몬 이 카할은 카밀로 골지의 은 염색법으로 물들인 뉴런을 수십 년 동안 그리며, 뉴런이 저마다 알아볼 수 있는 모양을 가진 따로 떨어진 세포라는 것을 보였습니다. 뉴런 종류 장면은 그중 여덟 가지를 세웁니다. 가지 뻗은 모양을 비교할 수 있게 모두 같은 높이로 그렸고, 실제 크기는 판독에 나옵니다.
- 피라미드 세포는 대뇌겉질의 주된 흥분성 뉴런입니다. 긴 꼭대기 가지돌기가 표면 쪽으로 올라가 술로 끝나고, 바닥 가지돌기가 아래 둘레로 퍼집니다. 글루탐산을 내놓습니다.
- 푸르키네 세포는 소뇌에 있고, 가지돌기를 납작한 부채로 펼칩니다. 평행섬유가 부채를 직각으로 가로지르는데, 리처드 내퍼와 로버트 하비는 쥐의 푸르키네 세포 하나에서 평행섬유 시냅스를 약 17만 5,000개 셌습니다. 억제성이고, 축삭을 소뇌 깊은핵으로 보냅니다.
- 운동 뉴런은 척수에 있고, 세포체가 크고, 가지돌기가 길며, 굵은 말이집 축삭이 1 m 떨어진 근육까지 가기도 합니다.
- 망막 양극세포는 막대·원뿔세포 쪽으로 가지 하나, 신경절세포 쪽으로 가지 하나를 냅니다. 대부분의 유형은 활동전위 대신 등급 전위를 넘기고, 망막에는 10가지가 넘는 유형이 있습니다.
- 소뇌 과립세포는 가장 작은 뉴런 가운데 하나로, 짧은 갈퀴 모양 가지돌기 네 개가 있고, 축삭은 위로 올라가 평행섬유 두 갈래로 나뉩니다. 프레데리쿠 아제베두 연구진은 사람 뇌의 뉴런을 약 860억 개로 셌고, 그중 약 5분의 4가 소뇌에 있으며 대부분 과립세포입니다.
- 뒤뿌리신경절 감각 뉴런은 거짓홑극 세포입니다. 세포체에서 줄기 하나가 나와 갈라져, 한 갈래는 피부나 근육으로, 다른 갈래는 척수로 들어갑니다. 신호는 세포체를 거치지 않고 갈림목을 지나갈 수 있습니다.
- 샹들리에 세포는 대뇌겉질의 억제성 사이뉴런입니다. 단추가 촛대처럼 짧은 세로 줄로 서 있고, 페테르 쇼모지는 1977년 그 줄이 저마다 피라미드 세포 축삭의 시작 부위에 붙는다는 것을 보였습니다. 활동전위가 시작되는 바로 그 자리입니다.
- 중간 가시 뉴런은 선조체 세포의 대부분을 차지합니다. 억제성이고 가시로 빽빽이 덮여 있으며, 대뇌겉질의 글루탐산과 중간뇌의 도파민을 함께 받습니다.
장면의 모양은 단순하게 그린 것입니다. 조지메이슨 대학교 조르조 아스콜리 연구진이 시작한 NeuroMorpho.Org는 여러 연구실이 현미경 사진에서 따라 그린 실제 뉴런의 재구성을 모아 두는 곳으로, 실제 모양을 자세히 비교하려면 이곳을 보면 됩니다.
모형에서 단순하게 만든 부분
그림은 실제 비율이 아닙니다. 축삭은 실제보다 훨씬 짧고 굵게 그렸고, 시냅스는 따로 크게 확대했습니다. 1 ms가 화면에서 0.5초가 되도록 시간을 늦췄습니다. 화면 속 활동전위가 움직이는 속도의 비율도 실제와 다릅니다. 말이집 축삭은 같은 축삭에서 말이집을 벗긴 것보다 18배 빠른데, 반 분씩 기다리지 않도록 모형에서는 그 차이를 줄였습니다. 대신 판독에는 늘 실제 값이 나옵니다.
뉴런 장면의 활동전위 모양은 교과서 값 −70, −55, +30 mV를 지나도록 그린 곡선이고, 통로 동역학을 시뮬레이션한 것이 아닙니다. 실제 동역학은 오징어 축삭 실험에서 돌고, 그 숫자는 오징어 축삭 자신의 온도에서 나온 값이라 휴지 전위가 −65 mV, 최고값이 +40 mV 근처입니다. 포유류 뉴런은 통로 종류가 더 많고 활동전위가 더 짧습니다.
다른 장면들도 단순하게 만들었습니다. 이온 통로는 알려진 구조를 따랐지만 매끈한 덩어리로 그렸고, 펌프는 실제보다 훨씬 느리게 돕니다. 경주 장면은 속도에 경험식 두 개를 쓰고 결절 사이를 12마디만 그렸습니다. 시냅스 장면의 반응은 모형 모양입니다. 반사 모형은 경로 길이를 키의 일정 비율로 잡고, 근육이 전기 신호를 받은 뒤 움직이기 시작하는 데 걸리는 시간은 넣지 않았습니다. 입력 합산 장면의 입력 하나는 실제보다 훨씬 셉니다. 뉴런 종류는 같은 크기로 그렸습니다.
이 전시는 신경세포가 일하는 원리를 일반적으로 설명합니다. 의학적 조언이 아닙니다.
이 원리를 밝힌 사람들
루이지 갈바니는 1780년대 금속 고리로 개구리 다리를 움찔하게 하며 동물 전기를 주장했습니다. 1850년 헤르만 폰 헬름홀츠는 개구리 신경의 속도를 약 27 m/s로 재어, 신경 신호가 전선 속 전기가 아니라는 것을 보였습니다. 율리우스 베른슈타인은 1902년 쉬고 있는 막이 칼륨을 통과시킨다고 제안했습니다.
카할과 골지는 신경계 구조에 관한 연구로 1906년 노벨상을 함께 받았습니다. 셰링턴과 에이드리언은 1932년 상을 나눠 받았는데, 셰링턴은 반사와 시냅스, 에이드리언은 실무율 활동전위와 빈도 부호화가 업적이었습니다. 헨리 데일과 오토 뢰비는 화학적 전달로 1936년 상을 받았습니다. 조지프 얼랭어와 허버트 개서는 굵은 섬유가 더 빨리 전도한다는 것을 보여 1944년에 수상했습니다. 1939년 다사키 이치지가, 1949년 앤드루 헉슬리와 로베르트 슈템플리가 말이집 섬유의 흥분이 결절 사이를 건너뛴다는 것을 보였습니다.
앨런 호지킨과 앤드루 헉슬리는 오징어 거대 축삭에서 나트륨 전류와 칼륨 전류를 재고 1952년 방정식으로 정리했습니다. 두 사람은 중추신경계의 시냅스를 연구한 존 에클스와 함께 1963년 노벨 생리의학상을 받았습니다. 수상 이유는 신경세포막에서 흥분과 억제가 일어나는 이온 기전을 밝힌 것이었습니다.
그 뒤의 연구는 방정식 뒤에 숨은 분자를 찾았습니다. 에르빈 네어와 베르트 자크만은 1976년 가는 유리 피펫을 근육 세포에 붙여 통로 하나를 지나는 전류를 기록했고, 1991년 상을 받았습니다. 1980년대와 1990년대에는 통로의 유전자와 구조가 차례로 밝혀졌습니다. 아르비드 칼손, 폴 그린가드, 에릭 캔델은 신경세포 사이의 신호 전달에 관한 연구로 2000년 상을 받았고, 여기에는 칼손의 도파민 연구가 들어 있습니다.
자주 묻는 질문
활동전위란 무엇인가요?
뉴런 막을 가로지르는 전압이 약 −70 mV에서 약 +30 mV로 잠깐 뒤집혔다가 돌아오는 현상으로, 약 2 ms 걸립니다. 축삭 둔덕에서 시작해 축삭을 따라 말단까지 전해집니다.
쉬고 있는 뉴런의 안쪽은 왜 음전하인가요?
쉬고 있는 막은 나트륨보다 칼륨을 훨씬 잘 통과시킵니다. 칼륨이 농도 차이를 따라 빠져나가면서 안쪽에 음전하를 남기고, 나트륨-칼륨 펌프가 농도 차이가 줄어들지 않게 지킵니다.
활동전위 크기가 늘 같다면 센 자극은 어떻게 전하나요?
더 자주 발화해서 전합니다. 센 입력은 역치에 더 빨리 닿고 다음 활동전위도 더 일찍 시작하게 하므로, 하나하나의 높이는 같아도 발화 빈도에 세기가 담깁니다.
신경 신호는 얼마나 빠른가요?
말이집과 굵기에 따라 다릅니다. 퍼브스 등의 『신경과학』에 따르면 말이집 없는 축삭은 약 0.5~10 m/s, 말이집 축삭은 최대 약 150 m/s입니다. 가장 가는 통증 섬유는 약 1 m/s입니다.
말이집은 어떤 일을 하나요?
축삭을 절연해서 활동전위를 랑비에 결절에서만 새로 만들면 되게 합니다. 그래서 전도가 훨씬 빨라지고, 통로와 펌프가 결절에 모여 있으니 에너지도 아낍니다. 다발경화증 같은 탈수초 질환에서는 전류가 새어 나가 전도가 느려집니다.
신호는 왜 거꾸로 가지 않나요?
활동전위가 지나간 뒤쪽 막은 나트륨 통로가 잠깐 잠겨 다시 열리지 못합니다. 이 불응기 때문에 활동전위는 방향을 돌리지 못하고 세포체에서 말단 쪽으로만 나아갑니다.
시냅스를 건너는 데 얼마나 걸리나요?
화학 시냅스에서는 칼슘 유입, 소포 융합, 틈을 건너는 확산, 수용체 열림까지 약 1 ms 걸립니다. 두 세포가 통로로 직접 이어진 전기 시냅스에서는 거의 순간적으로 전달됩니다.
휴지 전위는 언제나 −70 mV인가요?
아닙니다. 뉴런의 종류와 동물 종에 따라 다르고, 교과서는 −70 mV를 대표값으로 씁니다. 역치 약 −55 mV, 꼭대기 +30~+40 mV도 대표값입니다.
호지킨과 헉슬리는 정확히 무엇을 밝혔나요?
활동전위가 서로 다른 두 전류로 이루어진다는 것입니다. 먼저 나트륨이 들어오고, 이어서 칼륨이 나갑니다. 두 사람은 각 전류가 전압과 시간에 따라 어떻게 켜지고 꺼지는지 재고, 오징어 축삭에서 활동전위의 모양, 역치, 불응기, 전도 속도를 재현하는 방정식을 썼습니다.
전압 고정이란 무엇인가요?
필요한 만큼 전류를 넣어서 막 전위를 정한 값에 붙잡아 두는 증폭기입니다. 넣어 준 전류가 통로를 지나는 전류와 같으므로 그 전류를 잴 수 있습니다. 이온 통로 장면이 고정 순서를 돌립니다.
오징어 축삭은 왜 그렇게 굵은가요?
거대 축삭은 오징어가 물을 뿜어 달아나는 동작을 일으키고, 굵은 축삭은 안쪽 저항이 작아서 더 빨리 전도합니다. 0.5 mm 축삭은 말이집 없이 약 21 m/s에 이르는데, 척추동물은 지름 약 4 µm의 말이집 섬유로 같은 속도를 냅니다.
무릎 반사는 왜 그렇게 빠른가요?
감각 섬유와 운동 뉴런 사이에 시냅스가 하나뿐이고, 두 섬유 모두 굵은 말이집 섬유이기 때문입니다. 뇌는 끼어들지 않습니다. 젊은 성인에서 전체 왕복은 약 17~21 ms이고, 키가 크면 더 깁니다.
흥분성 시냅스와 억제성 시냅스는 무엇이 다른가요?
흥분성 시냅스는 보통 양이온을 들여보내 다음 세포를 역치 쪽으로 밉니다. 억제성 시냅스는 보통 염화 이온을 들여보내 역치에서 멀어지게 붙잡습니다. 방아쇠 부위는 모든 입력을 더한 값이 역치에 닿을 때만 발화합니다.
TTX 같은 독소는 신경에 무슨 일을 하나요?
테트로도톡신은 전압 개폐 나트륨 통로를 막아서 활동전위가 생기지도, 전해지지도 못하게 합니다. 이 전시는 통로의 원리를 설명하려고 모형에서 그 효과를 보여 줍니다. 중독이나 치료에 관한 정보가 아닙니다.
용어
- 막 전위: 세포막 바깥을 기준으로 잰 안쪽의 전압입니다.
- 휴지 전위: 신호를 보내지 않는 뉴런의 일정한 막 전위로, 약 −70 mV입니다.
- 역치: 전압 개폐 나트륨 통로가 열려 활동전위가 시작되는 막 전위로, 약 −55 mV입니다.
- 탈분극: 막 안쪽이 덜 음전하가 되는 변화입니다.
- 재분극: 활동전위 뒤에 휴지 전위 쪽으로 돌아가는 변화입니다.
- 과분극: 활동전위 직후처럼 휴지 전위보다 더 내려가는 변화입니다.
- 불응기: 활동전위 직후 다시 발화하지 못하거나, 더 센 자극이 있어야 발화하는 시간입니다.
- 축삭 둔덕과 축삭 시작 부위: 축삭이 세포체를 떠나는 방아쇠 구역입니다.
- 말이집: 축삭을 감싼 아교세포 막의 절연층입니다.
- 랑비에 결절: 말이집 사이의 짧은 틈으로, 활동전위가 여기서 새로 만들어집니다.
- 도약 전도: 말이집 축삭에서 활동전위가 결절에서 결절로 건너뛰며 전해지는 방식입니다.
- 시냅스 소포: 신경전달물질을 담은 작은 막 주머니입니다.
- 네른스트 식: 이온 한 가지가 막 안팎에서 균형을 이루는 전압을 구하는 식입니다.
- 전압 고정: 막을 정한 전압에 붙잡아 두고 통로를 지나는 전류를 재는 방법.
- 문 변수(m, h, n): 호지킨-헉슬리 모형에서 나트륨 활성화 문, 나트륨 비활성화 문, 칼륨 문이 열린 비율.
- 공간 가중: 서로 다른 곳의 입력이 함께 도착해 더해지는 것.
- 시간 가중: 한곳의 입력이 짧은 간격으로 이어 도착해 더해지는 것.
- EPSP와 IPSP: 흥분성·억제성 시냅스후전위. 세포를 역치 쪽으로 밀거나 역치에서 멀어지게 하는 작은 변화.
- 이온통로형 수용체: 그 자체가 이온 통로인 수용체.
- 대사성 수용체: 세포 안의 G단백질을 통해 작용하는 수용체.
- 재흡수: 수송체 단백질이 틈에서 전달물질을 치우는 것.
- 근방추: 근육 안의 늘어남 감지기.
- 반사궁: 감지기에서 척수를 거쳐 근육까지 이어지며 반사를 만드는 경로.
- 상반 억제: 반사가 일어나는 동안 억제성 사이뉴런을 통해 맞은편 근육이 풀리는 것.
출처
- OpenStax, Anatomy and Physiology 2e, 12.4 The Action Potential (휴지 −70 mV, 역치 −55 mV, 꼭대기 +30 mV, 약 2 ms, 나트륨 통로의 불활성화 문, 불응기, 도약 전도). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-4-the-action-potential (2026년 10월 16일 확인)
- OpenStax, Biology 2e, 35.2 How Neurons Communicate (표 35.1 이온 농도, −70 mV는 뉴런과 종에 따라 다름, 꼭대기 약 +40 mV, 결절 약 1 µm, 펌프 Na⁺ 3개 밖으로·K⁺ 2개 안으로, 시냅스 지연 약 1 ms, 다발경화증). https://openstax.org/books/biology-2e/pages/35-2-how-neurons-communicate (2026년 10월 16일 확인)
- OpenStax, Anatomy and Physiology 2e, 12.2 Nervous Tissue (축삭 둔덕, 축삭 시작 부위와 방아쇠 구역, 시냅스 끝 단추, 슈반세포와 희소돌기아교세포). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-2-nervous-tissue (2026년 10월 16일 확인)
- OpenStax, Anatomy and Physiology 2e, 12.5 Communication Between Neurons (칼슘과 소포 융합, 시냅스 틈, 축삭 둔덕에서의 가중). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-5-communication-between-neurons (2026년 10월 16일 확인)
- Purves D 외, Neuroscience 2판, Increased Conduction Velocity as a Result of Myelination, NCBI Bookshelf (말이집 없음 0.5~10 m/s, 말이집 최대 150 m/s, 도약 전도). https://www.ncbi.nlm.nih.gov/books/NBK10921/ (2026년 10월 16일 확인)
- Chudler EH, Neuroscience for Kids, Conduction Velocity, 워싱턴 대학교 (섬유 종류, C 섬유 시속 약 2.2마일). https://faculty.washington.edu/chudler/cv.html (2026년 10월 16일 확인)
- 워싱턴 대학교(세인트루이스) 신경근육질환센터, Peripheral axons: characteristics (속도 약 5.7 × 지름, g-비율 0.6~0.7, 마디 길이 약 100 × 지름, 결절 사이 약 25 µs). https://neuromuscular.wustl.edu/nother/axon.htm (2026년 10월 16일 확인)
- Hodgkin AL, Huxley AF. A quantitative description of membrane current and its application to conduction and excitation in nerve. Journal of Physiology 117, 500 (1952). https://pmc.ncbi.nlm.nih.gov/articles/PMC1392413/ (2026년 10월 16일 확인)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1963, summary (에클스, 호지킨, 헉슬리). https://www.nobelprize.org/prizes/medicine/1963/summary/ (2026년 10월 16일 확인)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1936, summary (데일, 뢰비, 화학적 전달). https://www.nobelprize.org/prizes/medicine/1936/summary/ (2026년 10월 16일 확인)
- Hodgkin AL, Huxley AF. Action potentials recorded from inside a nerve fibre. Nature 144, 710 (1939). doi:10.1038/144710a0 (2026년 10월 18일 확인)
- Young JZ. Structure of nerve fibres and synapses in some invertebrates. Cold Spring Harbor Symposia on Quantitative Biology 4, 1 (1936). doi:10.1101/SQB.1936.004.01.001 (2026년 10월 18일 확인)
- Narahashi T, Moore JW, Scott WR. Tetrodotoxin blockage of sodium conductance increase in lobster giant axons. Journal of General Physiology 47, 965 (1964). doi:10.1085/jgp.47.5.965 (2026년 10월 18일 확인)
- Noda M et al. Primary structure of Electrophorus electricus sodium channel deduced from cDNA sequence. Nature 312, 121 (1984). doi:10.1038/312121a0 (2026년 10월 18일 확인)
- Doyle DA et al. The structure of the potassium channel: molecular basis of K⁺ conduction and selectivity. Science 280, 69 (1998). doi:10.1126/science.280.5360.69 (2026년 10월 18일 확인)
- Skou JC. The influence of some cations on an adenosine triphosphatase from peripheral nerves. Biochimica et Biophysica Acta 23, 394 (1957). doi:10.1016/0006-3002(57)90343-8 (2026년 10월 18일 확인)
- Neher E, Sakmann B. Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature 260, 799 (1976). doi:10.1038/260799a0 (2026년 10월 18일 확인)
- del Castillo J, Katz B. Quantal components of the end-plate potential. Journal of Physiology 124, 560 (1954). doi:10.1113/jphysiol.1954.sp005129 (2026년 10월 18일 확인)
- Adrian ED, Zotterman Y. The impulses produced by sensory nerve-endings, part 2. Journal of Physiology 61, 151 (1926). doi:10.1113/jphysiol.1926.sp002281 (2026년 10월 18일 확인)
- Tasaki I. The electro-saltatory transmission of the nerve impulse and the effect of narcosis upon the nerve fiber. American Journal of Physiology 127, 211 (1939). doi:10.1152/ajplegacy.1939.127.2.211 (2026년 10월 18일 확인)
- Huxley AF, Stämpfli R. Evidence for saltatory conduction in peripheral myelinated nerve fibres. Journal of Physiology 108, 315 (1949). doi:10.1113/jphysiol.1949.sp004335 (2026년 10월 18일 확인)
- Hursh JB. Conduction velocity and diameter of nerve fibers. American Journal of Physiology 127, 131 (1939). doi:10.1152/ajplegacy.1939.127.1.131 (2026년 10월 18일 확인)
- Xu K, Terakawa S. Fenestration nodes and the wide submyelinic space form the basis for the unusually fast impulse conduction of shrimp myelinated axons. Journal of Experimental Biology 202, 1979 (1999). doi:10.1242/jeb.202.15.1979 (2026년 10월 18일 확인)
- Vickery HSF, Smith PA. Surface electromyography reveals males have a slower patellar reflex than females. Journal of Electromyography and Kinesiology 22, 990 (2012). doi:10.1016/j.jelekin.2012.06.001 (2026년 10월 18일 확인)
- Frijns CJM, Laman DM, van Duijn MAJ, van Duijn H. Normal values of patellar and ankle tendon reflex latencies. Clinical Neurology and Neurosurgery 99, 31 (1997). doi:10.1016/s0303-8467(96)00593-8 (2026년 10월 18일 확인)
- Washington University Neuromuscular Disease Center, Tendon reflexes (H reflex latency about 30 ms, rises with height). https://neuromuscular.wustl.edu/mother/reflex.html (2026년 10월 18일 확인)
- Napper RMA, Harvey RJ. Number of parallel fiber synapses on an individual Purkinje cell in the cerebellum of the rat. Journal of Comparative Neurology 274, 168 (1988). doi:10.1002/cne.902740204 (2026년 10월 18일 확인)
- Azevedo FAC et al. Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513, 532 (2009). doi:10.1002/cne.21974 (2026년 10월 18일 확인)
- Spruston N. Pyramidal neurons: dendritic structure and synaptic integration. Nature Reviews Neuroscience 9, 206 (2008). doi:10.1038/nrn2286 (2026년 10월 18일 확인)
- Euler T et al. Retinal bipolar cells: elementary building blocks of vision. Nature Reviews Neuroscience 15, 507 (2014). doi:10.1038/nrn3783 (2026년 10월 18일 확인)
- Somogyi P. A specific axo-axonal interneuron in the visual cortex of the rat. Brain Research 136, 345 (1977). doi:10.1016/0006-8993(77)90808-3 (2026년 10월 18일 확인)
- Gerfen CR, Surmeier DJ. Modulation of striatal projection systems by dopamine. Annual Review of Neuroscience 34, 441 (2011). doi:10.1146/annurev-neuro-061010-113641 (2026년 10월 18일 확인)
- Ascoli GA, Donohue DE, Halavi M. NeuroMorpho.Org: a central resource for neuronal morphologies. Journal of Neuroscience 27, 9247 (2007). doi:10.1523/JNEUROSCI.2055-07.2007 (2026년 10월 18일 확인)
- Korn H, Faber DS. The Mauthner cell half a century later. Neuron 47, 13 (2005). doi:10.1016/j.neuron.2005.05.019 (2026년 10월 18일 확인)
- Piccolino M. Animal electricity and the birth of electrophysiology: the legacy of Luigi Galvani. Brain Research Bulletin 46, 381 (1998). doi:10.1016/S0361-9230(98)00026-4 (2026년 10월 18일 확인)
- Schmidgen H. Of frogs and men: the origins of psychophysiological time experiments, 1850 to 1865. Endeavour 26, 142 (2002). doi:10.1016/S0160-9327(02)01466-7 (2026년 10월 18일 확인)
- Seyfarth EA. Julius Bernstein (1839 to 1917): pioneer neurobiologist and biophysicist. Biological Cybernetics 94, 2 (2006). doi:10.1007/s00422-005-0031-y (2026년 10월 18일 확인)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1906, 1932, 1944, 1970, 1991 and 2000, and in Chemistry 1997 and 2003, summaries. https://www.nobelprize.org/prizes/medicine/1991/summary/ (2026년 10월 18일 확인)
- National Institute of Neurological Disorders and Stroke (NINDS), Multiple sclerosis; Guillain-Barré syndrome; Myasthenia gravis; Parkinson's disease; Amyotrophic lateral sclerosis. https://www.ninds.nih.gov/health-information/disorders/multiple-sclerosis (2026년 10월 18일 확인)
함께 보면 좋은 전시
심장이 뛰는 법
심장은 한 번 뛸 때마다 피를 약 70 mL씩 내보내고, 쉬고 있을 때의 빠르기로 하루에 10만 8천 번쯤 이 일을 되풀이합니다.
크리스퍼 유전자 가위 원리(CRISPR-Cas9)
가이드 RNA가 읽는 DNA는 20글자뿐인데, 대개 그것만으로 사람 유전체 염기쌍 30억 개 가운데 한 자리를 골라냅니다.
ATP 합성효소의 원리
미토콘드리아 속 ATP 합성효소의 회전자는 1초에 약 100바퀴 돌고, 한 바퀴마다 ATP를 세 개씩 내놓습니다.
세포 속을 걷기: 동물 세포, 식물 세포, 세균
세포를 100만 배로 키우면 미토콘드리아는 소파만 하고 대장균 한 마리는 길이 2 m이며, 소포를 끄는 키네신은 초속 0.8 m로 걷습니다.
심폐소생술, AED, 하임리히법, 소화기 사용법 따라 하기
분당 100~120회, 약 5 cm 깊이로 누릅니다. 2024년 국내에서 목격자가 이렇게 했을 때 생존율은 2.36배였습니다.
반응 속도 테스트: 내 반응 속도는 몇 ms 일까
화면의 빛은 눈에 거의 바로 닿지만 손가락은 5분의 1초쯤 뒤에야 움직입니다. 그 시간의 대부분은 머릿속에서 지나갑니다.