그림 86감각관
박쥐는 소리로 어떻게 볼까: 반향정위의 원리
1 m 앞 나방의 메아리는 1,000분의 6초도 안 되어 박쥐에게 돌아오고, 박쥐는 바로 그 지연 시간으로 거리를 압니다.
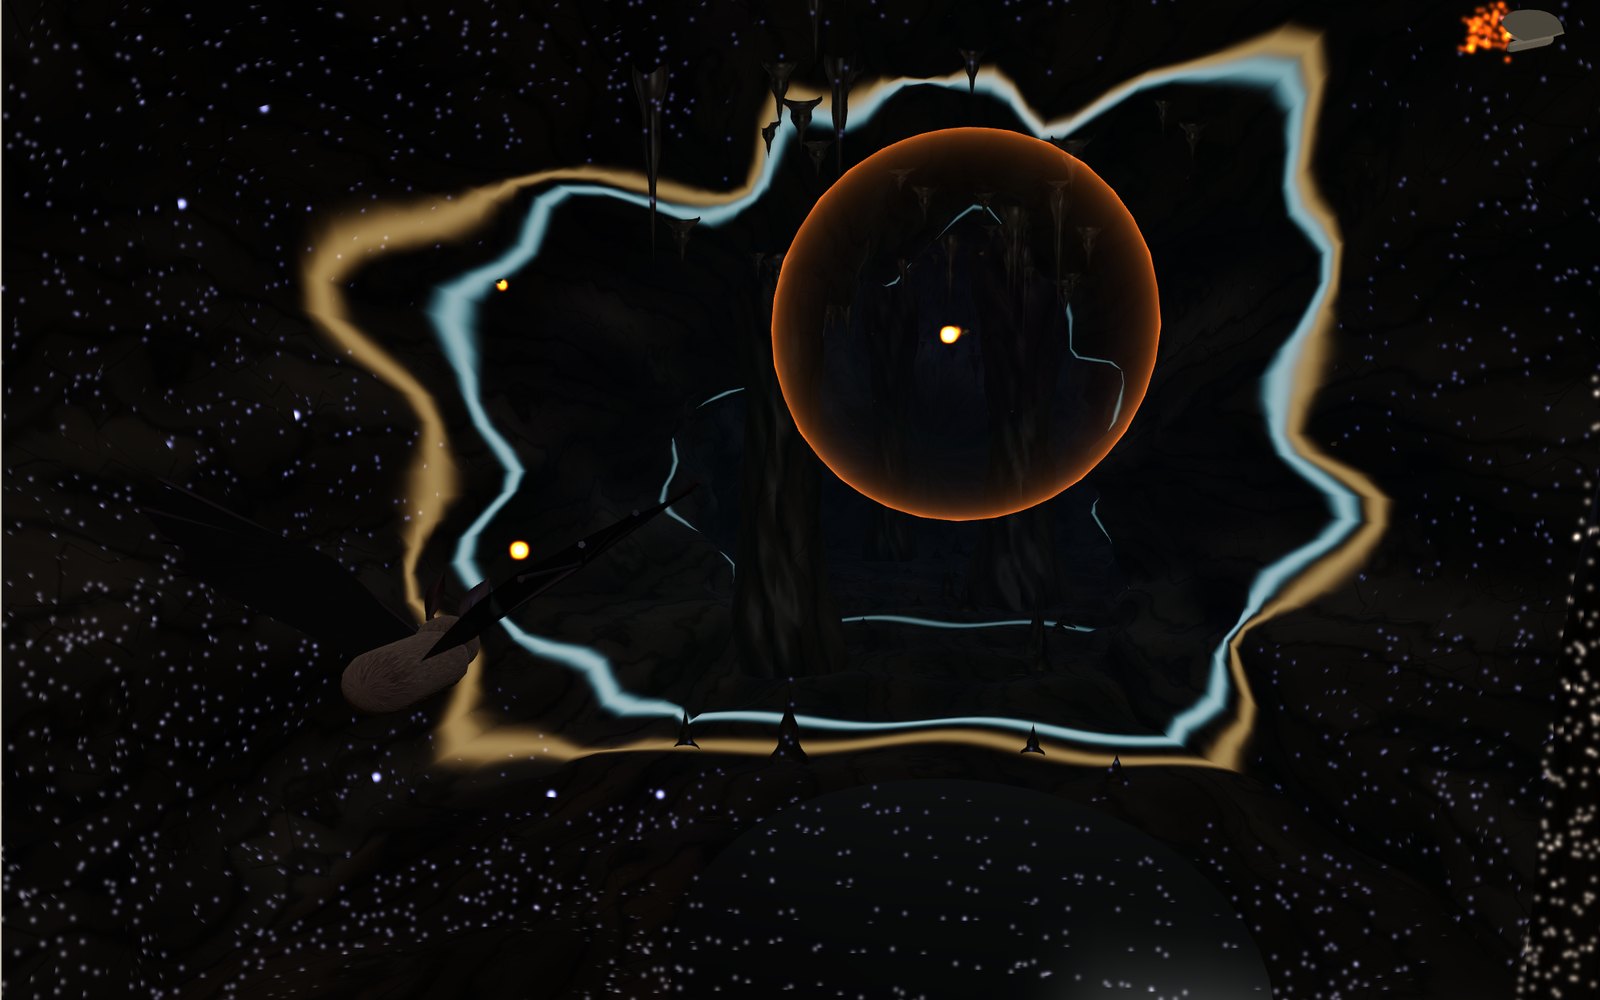
이 기기에서는 3D를 띄울 수 없습니다. 아래 안내 단계를 글로 볼 수 있습니다.
1 / 10 빛이 없는 동굴이 동굴에는 빛이 하나도 없습니다. 박쥐가 한 번 울었고, 밝은 껍질이 초속 343 m로 퍼지는 소리입니다. 「소리 내기」를 눌러 다시 울게 하거나 이 순서를 따라가 보세요.
끌어서 돌리고, 휠이나 두 손가락으로 확대하세요.
깜깜한 복도에서 손뼉 한 번
길고 텅 빈 복도에서 눈을 감고 손뼉을 한 번 쳐 보면, 손뼉 소리 뒤에 희미한 메아리가 조금 늦게 들리고 맞은편 벽이 얼마나 먼지 어렴풋이 느껴집니다. 박쥐는 이 일을 1분에 수백 번, 사람 귀에는 너무 높은 소리로 합니다. 그 솜씨로 빛 하나 없는 어둠 속에서 날아가는 나방을 잡습니다.
이것을 반향정위라고 합니다. 소리를 내보내고 돌아오는 소리를 들은 다음, 그 메아리로 물체가 어디에 있고 어떤 모양인지 알아내는 방법입니다. 이 전시에서는 빛이 전혀 없는 석회암 동굴에 들어갑니다. 큰갈색박쥐가 울면 그 소리가 동굴 안에 퍼지고, 벽과 기둥과 종유석과 곤충에 부딪혀 되돌아오는 모습을 볼 수 있습니다. 메아리가 박쥐에게 도착하면 빛나는 점이 하나 생깁니다. 몇 초가 지나면 점들이 모여 동굴의 그림이 되고, 박쥐가 가진 그림은 그것 하나뿐입니다.
무대 쓰는 법
「소리 내기」를 누르면 박쥐가 한 번 웁니다. 밝은 껍질이 소리의 앞면이고, 박쥐가 겨눈 쪽일수록 밝게 그립니다. 껍질이 단단한 것에 닿으면 그곳에서 주황색 껍질이 되돌아오기 시작하고, 메아리가 박쥐에게 닿으면 메아리 지도에 점이 찍힙니다. 따뜻한 색 점은 가깝고, 파란 점은 멀고, 주황색 점은 나방입니다. 점은 「메아리 기억」 슬라이더에 정한 시간이 지나면 흐려집니다.
무대 아래 버튼은 느린 화면의 배수를 정합니다. 공기 중 소리는 1초에 343미터를 가기 때문에, 그대로 두면 울음 하나와 그 메아리가 눈에 보이기도 전에 끝나 버립니다. 100배 느리게 하면 울음이 초속 약 3.4 m로 기어갑니다. 「나방 사냥」을 누르면 박쥐가 가장 가까운 나방을 실제 비행 속도로 쫓고(화면은 10배 느리게), 가까워질수록 울음 빈도가 저절로 올라갑니다.
「조작」 칸에서는 박쥐 종을 바꾸고, 사냥 단계를 손으로 정하고, 자동으로 우는 것을 멈추고, 소리를 켜고, 나방 메아리의 도플러 이동을 보이고, 나방이 소나를 방해하게 하고, 손전등을 켜고, 소나 빔을 보일 수 있습니다. 조작 아래의 메아리 계산기는 거리와 온도와 주파수를 넣으면 이 글의 계산을 그대로 해 줍니다. 무대 아래에는 메아리로 물체를 찾는 동물과 기계 34가지를 모아 두었습니다.
지연 시간에서 거리로
반향정위의 중심 규칙은 짧습니다. 소리는 정해진 속도로 갑니다. 울음을 보내고 t만큼 지나 메아리가 돌아왔다면 소리는 대상까지 갔다가 돌아온 것이므로, 대상까지의 거리는 다음과 같습니다.
거리 = 음속 × t ÷ 2
건조한 공기에서 음속은 온도에 따라 달라집니다. 켈빈 온도를 T라 할 때 1.4 × 287.05 × T의 제곱근입니다. 20 °C에서는 초속 343.2 m, 0 °C에서는 331.3 m/s, 기온이 30 °C인 여름밤에는 349.0 m/s입니다. 차가운 동굴의 박쥐와 따뜻한 풀밭 위의 박쥐는 서로 약 5퍼센트 다른 자를 쓰는 셈입니다.
343.2 m/s로 계산한 메아리 지연은 다음과 같습니다.
| 거리 | 메아리 지연 |
|---|---|
| 10 cm | 0.58 ms |
| 1 m | 5.83 ms |
| 3 m | 17.48 ms |
| 5 m | 29.14 ms |
| 10 m | 58.27 ms |
| 20 m | 116.54 ms |
박쥐 앞 10미터의 기둥은 약 1,000분의 58초 뒤에 대답하고, 3미터 떨어진 나방은 약 1,000분의 17초 뒤에 대답합니다. 지연이 1마이크로초 다르면 거리는 0.17 mm밖에 다르지 않습니다. 박쥐가 이만큼 잘게 시간을 쓰지는 못하지만, 1970년대 제임스 사이먼스의 실험에서 훈련받은 큰갈색박쥐는 메아리 지연만으로 두 표적 가운데 어느 쪽이 가까운지 알아냈습니다.
무대의 시간은 실제와 같습니다. 점 하나하나는 그 메아리가 도착할 순간에, 느린 화면 배수만큼 늘려서 찍힙니다. 울음이 굴 끝까지 가는 것을 지켜보면 먼 곳의 점이 가장 늦게 켜집니다.
울음이 그렇게 높은 까닭
박쥐 울음은 대부분 사람이 들을 수 있는 한계인 약 20 kHz보다 높은 초음파입니다. 무대의 큰갈색박쥐는 몇 밀리초 동안 약 50 kHz에서 25 kHz로 훑어 내려갑니다. 커먼 피피스트렐은 45 kHz 근처가 가장 세고, 관박쥐는 82 kHz 근처의 한 음을 길게 냅니다.
까닭은 파동의 크기에 있습니다. 파장은 음속을 주파수로 나눈 값입니다. 10 kHz에서는 34 mm, 35 kHz에서는 약 10 mm, 82 kHz에서는 약 4 mm입니다. 파장보다 훨씬 작은 물체는 파동을 거의 흩뜨리지 못해서 돌려보내는 소리가 아주 적습니다. 작은 공에서 오는 메아리는 크기와 파장의 비의 네제곱에 거의 비례해 줄어듭니다. 모기는 몸길이가 몇 밀리미터입니다. 모기에게서 센 메아리를 얻으려면 박쥐도 파장이 몇 밀리미터인 소리를 내야 합니다.
높은 주파수에는 대가가 있습니다. 공기는 소리를 흡수하고, 높은 주파수일수록 훨씬 많이 흡수합니다. 공기 중 흡수의 표준식(ISO 9613-1)으로 20 °C, 습도 50퍼센트에서 계산하면 1 m당 10 kHz는 약 0.16 dB, 20 kHz는 0.52 dB, 35 kHz는 1.13 dB, 82 kHz는 2.67 dB, 100 kHz는 3.28 dB를 잃습니다. 메아리는 이 값을 갈 때 한 번, 올 때 한 번, 두 번 치릅니다. 100 kHz에서는 5미터 떨어진 표적이 공기 때문에만 33 dB를 잃습니다.
「박쥐」 슬라이더를 큰갈색박쥐에서 관박쥐로 돌리고 메아리 지도를 보세요. 높은 음은 더 또렷하지만 짧은 지도를 그립니다. 9~12 kHz로 우는 점박이박쥐로 바꾸면 지도가 굴 깊숙이까지 닿지만 점이 모두 더 흐릿해집니다.
얼마나 크게, 얼마나 멀리
박쥐는 시끄럽습니다. 아네마리 수를리케와 엘리자베트 칼코가 파나마에서 야외 녹음을 해 보니, 탁 트인 곳에서 사냥하는 박쥐의 음원 세기는 박쥐 앞 10 cm에서 잰 값으로 122~134 dB SPL이었습니다. 물 위에서 사냥하는 두 종은 평균 약 137 dB, 최대 140 dB 넘게 나왔습니다. 우리가 그 소리를 하나도 듣지 못하는 것은 오로지 너무 높아서입니다.
그만큼 커야 합니다. 사방으로 퍼지는 소리는 거리가 두 배가 될 때마다 6 dB씩 약해집니다. 메아리는 돌아오는 길에 또 퍼지므로 왕복으로는 거리가 두 배가 될 때마다 12 dB를 잃습니다. 게다가 나방은 자기에게 닿은 소리 가운데 아주 작은 부분만 돌려보냅니다. 무대의 모형은 소나 방정식을 씁니다.
메아리 세기 = 음원 세기 − 40 log₁₀(r ÷ 0.1 m) − 2 × 흡수 × r + 표적 세기
10 cm에서 120 dB인 울음, 나방의 표적 세기 −30 dB, 들을 수 있는 한계 20 dB로 두면, 모형의 박쥐는 35 kHz에서 약 3.5 m, 50 kHz에서 3.1 m, 82 kHz에서 2.6 m까지 나방을 듣습니다. 바위벽은 훨씬 많이 돌려보내서 35 kHz로도 약 8 m까지 들립니다. 모형의 숫자이지만 야외에서 보이는 모습과 맞습니다. 먹이는 몇 미터 안에서, 벽이나 나무는 그 몇 배 거리에서 찾습니다. 수를리케와 칼코는 가장 크게 우는 박쥐가 가장 높은 주파수를 쓴다는 것도 알아챘는데, 그 덕에 감지 거리가 다른 박쥐들과 비슷하게 맞춰지는 것으로 보입니다.
무대 숫자판의 「나방 감지 거리」 줄이 지금 고른 박쥐의 이 모형 거리입니다. 나방은 그 거리 안에 들어와야 메아리 지도에 주황색으로 나타납니다.
탐색, 접근, 마지막 버즈
1960년 무렵 도널드 그리핀과 동료들은 곤충을 사냥하는 박쥐를 녹음해서 울음이 규칙적으로 바뀐다는 것을 알아냈습니다. 탐색 중인 큰갈색박쥐는 1초에 약 10번, 한 번에 몇 밀리초씩 웁니다. 이 단계에서는 날갯짓 한 번에 한 번 우는 박쥐가 많아서 날갯짓과 숨과 울음이 한 박자를 이룹니다. 곤충을 찾아내면 접근 단계로 넘어가 울음이 짧아지고 잦아집니다. 마지막 몇백 밀리초에는 울음이 1초에 160번을 넘고 길이는 1밀리초보다 한참 짧아지는데, 이것이 마지막 버즈입니다.
까닭의 한 부분은 단순한 시간 계산입니다. 박쥐는 대개 관심 있는 메아리가 돌아온 뒤에 다음 울음을 내서, 메아리와 울음이 겹치지 않게 합니다. 5미터에서 오는 메아리는 29 ms가 걸리므로 1초에 많아야 약 34번 울 수 있습니다. 1미터면 5.8 ms라서 172번, 50 cm면 343번까지 가능합니다. 먹이가 가까울수록 더 자주 울 수 있고, 그만큼 나방이 어디로 움직였는지 더 자주 알게 됩니다.
그것이 전부는 아닙니다. 2011년 코언 엘레만스와 동료들은 박쥐 후두에 포유류에서 가장 빠른 축에 드는 아주 빠른 근육이 있고, 최고 울음 빈도를 정하는 것은 메아리 겹침만이 아니라 이 근육이 얼마나 빨리 움직이느냐라는 것을 밝혔습니다. 「사냥 단계」 슬라이더를 「마지막 버즈」에 두면 껍질이 박쥐에게서 쏟아져 나와 서로 겹겹이 포개집니다.
어느 방향인가: 두 귀
거리는 시간에서 나오고, 방향은 두 귀를 견주어 얻습니다. 오른쪽에서 온 메아리는 왼쪽 귀보다 오른쪽 귀에 조금 먼저 닿고, 머리가 먼 쪽 귀를 가리기 때문에 소리도 조금 더 큽니다. 모형에서 두 귀 사이는 약 1.6 cm라서, 바로 옆에서 온 메아리의 시간 차가 가장 크고 약 47마이크로초입니다. 정면에서 10도 비낀 메아리는 약 8마이크로초 차이가 납니다. 숫자판에 나방에 대한 이 시간 차가 나옵니다.
위아래는 더 어렵습니다. 두 귀의 높이가 같기 때문입니다. 여기서는 바깥귀의 모양이 돕습니다. 귓구멍 앞의 작은 돌기인 귀구슬이 귓속에서 따로 작은 메아리를 만들고, 그 작은 메아리의 시간이 소리가 위에서 왔는지 아래에서 왔는지에 따라 달라집니다. 박쥐는 울음과 울음 사이에 머리와 귀도 움직여서, 울 때마다 조금 다른 각도에서 장면을 듣습니다. 무대의 박쥐도 울 때마다 고개를 조금씩 돌리고, 그래서 지도가 채워집니다.
도플러: 나방이 다가오는가
박쥐가 벽을 향해 날면 울음의 마루 하나하나가 앞의 것보다 조금 더 가까이에서 출발하므로, 벽에는 조금 높은 주파수가 닿습니다. 벽이 그 소리를 아직도 다가오는 박쥐에게 돌려보내면 주파수가 또 한 번 올라갑니다. 정지한 표적을 향해 속도 v로 나는 박쥐에게 메아리는 다음 주파수로 돌아옵니다.
f × (c + v) ÷ (c − v)
초속 4 m로 날 때 82 kHz 울음은 약 83.9 kHz로, 거의 2 kHz 높아져 돌아옵니다. 표적도 움직이면 그 속도도 같은 방식으로 더해집니다. 「도플러 이동」을 켜면 숫자판에 나방 메아리의 주파수와 그것이 울음과 얼마나 다른지가 나옵니다.
관박쥐는 이 현상을 가장 잘 씁니다. 관박쥐의 울음은 길고 거의 한 음이며, 청각에는 메아리 주파수 근처에 아주 예민하게 맞춰진 좁은 대역이 있습니다. 이 대역을 청각 중심와라고 부르기도 합니다. 관박쥐는 앞으로 날면서 울음을 꼭 필요한 만큼 낮춰, 도플러로 올라간 메아리가 그 대역에 떨어지게 합니다. 초속 4 m로 날 때는 약 80.1 kHz로 울어서 메아리가 82 kHz 근처로 돌아오게 합니다. 고른 한 음을 배경으로 곤충의 날갯짓은 메아리의 높이와 세기를 깜박이게 하고, 박쥐는 가만히 있는 나뭇잎 사이에서 파닥이는 나방을 골라냅니다. 「박쥐」 슬라이더에서 관박쥐를 고르면 숫자를 볼 수 있습니다.
메아리가 말해 주는 표면
거친 바위는 소리를 사방으로 흩뜨립니다. 빔이 닿는 곳마다 일부가 곧장 되돌아오기 때문에 동굴 벽이 점으로 가득 찹니다. 매끈한 면은 거울처럼 굴니다. 울음은 들어온 각도 그대로 튕겨 나가 멀어지고, 박쥐 바로 아래의 물만 메아리를 돌려보냅니다.
그래서 무대의 웅덩이는 메아리 지도에서 어둡게 남습니다. 2010년 슈테판 그라이프와 비외른 지머스는 박쥐가 소리로 매끈한 넓은 면을 모두 물로 여긴다는 것을 보였습니다. 15종의 야생 박쥐가 금속, 나무, 플라스틱으로 만든 매끈한 판에서 물을 마시려 했고, 판이 눈에 훤히 보여도 그랬습니다. 물을 본 적 없는 어린 박쥐도 똑같이 해서, 이 규칙은 타고나는 것으로 보입니다. 무대에서 웅덩이는 박쥐 바로 아래의 밝은 점 하나를 빼면 지도에 난 구멍으로 나타납니다.
맞서는 나방
나방은 수천만 년 동안 박쥐에게 사냥당해 왔고, 많은 나방이 대응책을 갖고 있습니다. 나방 가운데 상당수는 박쥐 울음을 듣는 귀가 있습니다. 울음이 커지면 급강하하거나 고리를 그리며 돌거나 땅으로 떨어집니다. 박쥐는 다시 그 귀가 잘 못 듣는 주파수로 울거나 아주 작게 웁니다. 갈색긴귀박쥐를 영국에서 「속삭이는 박쥐」라 부르는 까닭입니다.
어떤 불나방은 소리로 맞받아칩니다. 2009년 에런 코코런, 제시 바버, 윌리엄 코너는 어둠 속에서 큰갈색박쥐가 불나방 Bertholdia trigona를 공격하는 모습을 찍었습니다. 박쥐가 마지막 버즈에 들어서자 나방은 초음파 딸깍 소리를 촘촘하게 쏟아 냈고, 박쥐는 나방을 놓쳤습니다. 딸깍 소리가 박쥐로 하여금 나방까지의 거리를 헷갈리게 하는 것으로 보입니다. 「나방의 방해」를 켜고 사냥을 시작하면 나방 메아리가 엉뚱한 거리의 빨간 점으로 번지고, 이 모형에서는 박쥐가 대개 지나쳐 버립니다.
긴꼬리산누에나방은 다른 방법을 씁니다. 날 때 긴 뒷날개 꼬리가 빙글빙글 돌며 따로 메아리를 냅니다. 바버와 동료들의 실험에서 박쥐는 공격의 절반 넘게를 꼬리에 겨눴고, 꼬리가 있는 나방은 없는 나방보다 약 47퍼센트 더 많이 살아남았습니다. 박쥐끼리도 방해합니다. 같은 곤충을 쫓는 멕시코자유꼬리박쥐는 특별한 소리를 내서 상대가 먹이를 놓치게 합니다.
반향정위를 하는 다른 동물
박쥐가 가장 유명하지만 혼자는 아닙니다. 돌고래와 쥐돌고래를 포함한 이빨고래는 물속에서 반향정위를 하는데, 물속에서는 소리가 공기보다 약 4.4배 빠릅니다. 이들의 딸깍 소리는 짧고 아주 큽니다. 베르텔 묄과 동료들이 녹음한 향고래의 정면 딸깍 소리는 236 dB re 1 µPa에 이르러, 동물이 낸 소리 가운데 가장 큰 것으로 알려져 있습니다. 페테르 마센과 아네마리 수를리케는 박쥐와 이빨고래가 따로 진화했는데도 소나가 얼마나 비슷해졌는지 보여 주었습니다.
새 가운데 두 무리도 반향정위를 합니다. 남아메리카의 기름쏙독새는 밤에 열매를 먹고 동굴 깊숙이 둥지를 틀며, 인도·태평양의 동굴칼새도 어두운 동굴에 둥지를 짓습니다. 두 무리 모두 사람에게도 들리는 낮은 딸깍 소리를 쓰는데, 멀리 가지만 세부는 덜 보여 줍니다. 땃쥐는 물건이 빽빽한 곳을 탐색할 때 더 자주 지저귀고, 녹음해 보면 그 소리가 가까운 거리에서 쓸 만한 메아리를 줍니다. 반향정위를 못 한다고 여겨지던 과일박쥐 가운데에도 날개로 낸 딸깍 소리로 어둠 속 길을 찾는 종이 있습니다.
반향정위를 하는 사람
입으로 딸깍 소리를 내서 반향정위를 하는 시각장애인도 있습니다. 2011년 로어 탈러, 스티븐 아놋, 멜빈 구데일은 시각장애인 전문가 두 사람이 자기 딸깍 소리와 메아리를 녹음한 것을 들을 때 뇌를 촬영했습니다. 메아리는 청각 영역이 더 일하게 하는 대신 원래 시각을 맡는 뇌 부분을 활발하게 했습니다. 2021년 더럼 대학교의 훈련 연구에서는 21~79세의 시각장애인과 비장애인 성인이 10주 동안 20번 훈련해 딸깍 반향정위를 익혔습니다. 두 무리 모두 크게 늘었고, 나이도 시각장애도 배우는 속도를 막지 않았습니다.
사람의 딸깍 소리는 몇 킬로헤르츠라서 파장이 10 cm 안팎입니다. 벽이나 문간이나 세워 둔 차를 알아채기에는 충분하지만 나방을 찾기에는 모자랍니다.
같은 일을 하는 기계
배는 소나를 씁니다. 물속 음속 약 1,500 m/s를 쓴다는 것만 빼면 박쥐와 같은 규칙입니다. 10 m 아래 바닥에서 오는 메아리는 약 13 ms 뒤에 돌아옵니다. 의료용 초음파는 메가헤르츠 대역의 소리를 몸속으로 보내는데, 파장이 밀리미터 수준이라 장기와 심장의 윤곽을 보여 줄 수 있습니다. 자동차 범퍼의 주차 센서도 초음파 메아리의 시간을 재서 약 15 cm부터 5 m까지의 장애물을 찾습니다.
짧은 역사
1790년대에 라차로 스팔란차니는 눈을 가린 박쥐도 부딪치지 않고 난다는 것을 알아냈고, 루이 쥐린은 귀를 막은 박쥐는 그러지 못한다는 것을 보였습니다. 박쥐가 아무 소리도 내지 않는 것처럼 보였기 때문에 아무도 까닭을 설명하지 못했습니다. 답은 초음파를 듣는 마이크가 나올 때까지 기다려야 했습니다. 1938년 하버드 대학교 학생이던 도널드 그리핀은 초음파 탐지기를 만든 물리학자 조지 피어스에게 박쥐를 가져갔습니다. 그 뒤 그리핀은 로버트 갈람보스와 함께 박쥐가 초음파 펄스를 내고 그 메아리로 장애물을 피한다는 것을 보였고, 1944년 이 능력에 반향정위라는 이름을 붙였습니다.
모형에서 단순하게 한 것
무대의 박쥐는 사냥하지 않을 때 제자리에 머물러 있어서 주위를 둘러볼 수 있습니다. 실제로 탐색 비행 중인 박쥐는 멈추지 않습니다. 동굴은 매끈한 수학적 모양으로 만들었고, 메아리는 같은 모양 안으로 광선 수백 개를 쏘아 찾습니다. 실제 소리는 광선 다발이 아니라 파동이라서, 모서리를 돌아 휘고 메아리끼리 겹치며 간섭합니다. 메아리 세기는 바위의 표적 세기를 하나로 정한 단순한 소나 방정식에서 나오고, 들을 수 있는 한계도 숫자 하나입니다.
나방은 점으로 다룹니다. 실제 나방의 메아리는 날갯짓마다 바뀌고, 박쥐는 그것으로 곤충을 알아보기도 합니다. 방해 모형은 Bertholdia trigona에서 보고된 결과만 그린 것으로, 나방 메아리가 엉뚱한 거리에 나타납니다. 들리는 소리는 화면과 같은 배수만큼 느리게 튼 울음이라서, 100배 느리게 하면 40 kHz 울음이 400 Hz로 나옵니다. 야외 조사용 박쥐 탐지기도 같은 방법을 쓰며, 이것을 시간 확장 방식이라고 합니다.
1밀리초 메아리를 읽는 법
공기가 정지해 있고 음속을 343 m/s로 반올림했다고 가정합니다. 메아리 지연이 1 ms라면 소리가 이동한 전체 거리는 343 × 0.001 = 0.343 m입니다. 그 절반이 편도 거리이므로 반사체는 0.1715 m, 약 17 cm 떨어져 있습니다. 돌아오는 길을 빼먹으면 거리를 두 배로 계산하게 됩니다. 이 예에서는 소리가 표적에서 곧바로 반사되어 돌아온다고 가정합니다. 다른 벽에 먼저 부딪친 뒤 돌아오는 메아리는 이동 경로가 더 길어서 같은 직선거리로 해석할 수 없습니다.
이 거리 식에는 주파수가 들어가지 않습니다. 기온이 같다면 40 kHz와 82 kHz 소리가 같은 표적까지 가는 시간은 사실상 같습니다. 대신 파장이 다릅니다. 반올림한 음속으로 계산하면 343 ÷ 40,000 = 0.008575 m, 약 8.6 mm입니다. 이 값은 이웃한 파동 마루 사이 간격이지, 박쥐가 감지할 수 있는 곤충의 최소 몸길이가 아닙니다. 더 작은 곤충도 메아리를 돌려보냅니다. 들을 수 있는지는 곤충의 방향과 반사면, 거리와 배경 소음에 따라 달라집니다. 사냥 중에는 곤충의 날개도 움직입니다. 고정된 구형 표적은 계산에 도움이 되지만 곤충을 구별하는 규칙은 아닙니다.
「메아리 계산기」에서 「공기 온도」를 20 °C, 「울음 주파수」를 40 kHz, 「대상까지 거리」를 1 m로 맞춥니다. 계산기는 위에서 반올림한 343 m/s 대신 기온 공식을 쓰므로 약 5.83 ms와 8.6 mm가 나옵니다. 거리를 두 배로 늘리면 지연도 두 배가 되지만 파장은 그대로입니다. 주파수를 높이면 파장과 흡수가 바뀌지만 지연이 두 배로 늘어나지는 않습니다. 밝은 메아리 그림만 보면 섞어서 생각하기 쉬운 서로 다른 효과입니다.
마지막 버즈가 빠른 탐색 울음과 다른 이유
래트클리프와 동료들의 검토 논문 How the bat got its buzz는 사냥 중 울음 횟수 외의 변화도 다룹니다. 일부 박쥐는 버즈의 두 번째 구간에서 기본 주파수를 낮춥니다. 입을 벌린 크기가 같다면 주파수가 낮을수록 방출하는 빔이 넓어집니다. 가까운 곤충은 옆으로 조금만 움직여도 좁은 빔에서 벗어나므로, 소리로 감시하는 범위를 넓히면 회피하는 먹이를 계속 추적하는 데 도움이 될 수 있습니다. 작은 표적에는 짧은 파장이 유리하다는 원리와 모순되는 것이 아니라 서로 다른 이점 사이의 절충입니다.
초당 200회라는 예를 들면 울음 시작 사이 간격은 1 ÷ 200 = 0.005 s, 즉 5 ms입니다. 음속이 343 m/s라면 그동안 소리가 약 0.86 m 거리까지 갔다가 돌아올 수 있습니다. 이상적인 시간 계산이며, 반드시 사냥할 수 있는 거리를 뜻하지는 않습니다. 울음 자체도 간격 일부를 차지하고, 주변의 메아리도 계속 도착하며, 후두는 다시 이완하고 수축해야 합니다. 이 검토 논문은 일부 종에서 초당 약 220회까지 보고하므로 200회가 모든 박쥐의 상한은 아닙니다.
무대는 「마지막 버즈」의 기준을 초당 170회로 두고 표적 지연에 따라 추가로 제한합니다. 그래서 나방이 멀면 표시되는 빈도가 더 낮을 수 있습니다. 또한 무대는 이 단계에서 빔을 좁게 그리지만, 논문은 특정 실제 종의 버즈에서 빔이 넓어지는 현상을 설명합니다. 소리 껍질은 울음 간격을 비교하는 데 쓰고, 모든 박쥐가 포획 직전에 빔을 좁힌다는 근거로 쓰지 않습니다. 동굴 애니메이션은 종마다 다른 울음 변화를 전부 재현하지 않습니다.
화면에서 조건을 하나씩 비교하기
사냥하지 않는 상태로 시작합니다. 「메아리 지도 지우기」를 누르고 「소리 내기」를 눌러 오래된 점이 쌓이기 전에 처음 돌아오는 껍질을 따라갑니다. 조명을 켜면 실제 동굴 모양과 불완전한 메아리 지도를 비교할 수 있습니다. 점이 없다고 바위가 없는 것은 아닙니다. 빔이 그곳을 비추지 않았거나 반사음이 너무 약할 수도 있습니다. 장면에서 물체를 실제로 없애는 것과 다릅니다.
다음 비교에서는 종을 유지하고 「메아리 계산기」의 「대상까지 거리」만 바꿉니다. 「메아리 지연」과 「겹치지 않는 최대 빈도」를 함께 읽습니다. 거리가 멀면 지연은 길어지고 이상적인 반복 빈도는 낮아집니다. 계산기는 나방의 실제 위치와 독립적이므로 거리 입력을 움직여도 나방이 이동하지 않습니다. 계산기와 무대 표시값을 비교할 때 이 차이를 구분해야 합니다.
마지막으로 「관박쥐」를 고른 뒤 「큰갈색박쥐」로 돌아옵니다. 앞의 설정은 긴 고정 주파수 울음, 뒤의 설정은 짧게 내려가는 FM 울음을 나타냅니다. 실제 관박쥐는 좁은 대역에 예민한 청각으로 잎 사이에서 날갯짓에 따른 변화를 감지하는 데 유리합니다. 넓은 대역의 FM 울음은 가까운 반사체의 시간 정보를 얻는 데 유용합니다. 서로 배타적인 감각이 아니라 강조하는 정보가 다릅니다. 실제 관박쥐 울음에도 주파수가 변하는 구간이 있으며, 모형의 고정음 표시는 그 세부를 생략합니다.
자주 묻는 질문
사람이 박쥐 소리를 들을 수 있나요?
박쥐 울음은 대부분 20 kHz보다 높아서 사람 귀에 들리지 않습니다. 더 낮게 우는 종도 있습니다. 점박이박쥐는 9~12 kHz로 울어서 많은 사람이 들을 수 있습니다. 박쥐는 더 낮은 사회적 울음도 냅니다. 나머지는 박쥐 탐지기로 들을 수 있습니다.
박쥐는 눈이 먼가요?
아닙니다. 박쥐도 눈이 제대로 있고, 특히 과일박쥐는 잘 봅니다. 반향정위는 완전한 어둠에서도 통하고 가까운 거리에서 정확한 감각을 하나 더해 줍니다.
박쥐는 메아리로 얼마나 멀리까지 알 수 있나요?
표적의 크기와 주파수에 따라 다릅니다. 이 페이지의 모형에서는 35 kHz로 나방을 약 3.5 m, 바위벽을 약 8 m까지 감지합니다. 물체가 크고 주파수가 낮을수록 더 멀리 닿습니다.
박쥐는 다른 박쥐의 울음을 제 메아리로 착각하지 않나요?
이웃과 조금 다른 주파수로 울음을 옮기는 일이 많고, 예상하는 지연 시간에 오는 메아리를 골라 듣습니다. 그래도 붐비는 동굴에서는 쉽지 않고, 같은 곤충을 쫓을 때 일부러 상대를 방해하는 박쥐도 있습니다.
메아리는 왜 울음보다 그렇게 작은가요?
울음은 표적까지 가는 동안 퍼지고 메아리는 돌아오는 동안 또 퍼져서, 거리가 두 배가 될 때마다 12 dB를 잃습니다. 여기에 공기가 더 흡수하고, 작은 곤충은 자기에게 닿은 소리 가운데 아주 작은 부분만 돌려보냅니다.
박쥐는 모두 반향정위를 하나요?
곤충을 먹는 박쥐는 거의 모두 합니다. 구대륙 과일박쥐는 대부분 못 한다고 여겨졌지만, 이집트과일박쥐는 혀를 차서 소리를 내고, 2014년에는 과일박쥐 두 종이 더 날개로 낸 딸깍 소리로 어둠 속 물체를 알아챈다는 것이 밝혀졌습니다.
마지막 버즈가 무엇인가요?
공격의 마지막 부분으로, 울음 빈도가 1초에 160번을 넘고 울음 하나가 1밀리초도 안 되는 때입니다. 박쥐는 몇 밀리초마다 곤충 위치를 새로 알게 됩니다.
메아리 지도에서 웅덩이가 왜 구멍처럼 보이나요?
매끈한 물은 울음을 거울처럼 비껴 보내서 메아리가 거의 돌아오지 않습니다. 박쥐는 이것을 물의 표시로 쓰고, 매끈한 판이면 무엇이든 물을 마시려 합니다.
이 페이지의 소리는 진짜 박쥐 소리인가요?
아닙니다. 종마다 울음 모양을 따라 합성하고 느린 화면 배수만큼 늦춘 소리이며, 그만큼 음높이가 낮아집니다. 시간 확장 방식 박쥐 탐지기가 울음을 들리게 만드는 방법과 같습니다.
돌고래와 박쥐는 같은 방식으로 반향정위를 하나요?
원리는 같고, 두 무리는 따로 진화했습니다. 돌고래는 소리가 약 4.4배 빠른 물속에서 일하므로 같은 거리에서도 메아리가 더 빨리 돌아옵니다. 돌고래의 딸깍 소리는 대부분의 박쥐 울음보다 훨씬 짧습니다.
용어
- 반향정위: 소리를 내고 그 메아리를 분석해 물체를 찾는 일.
- 메아리 지연: 울음과 메아리 사이의 시간. 거리 = 음속 × 지연 ÷ 2.
- 초음파: 약 20 kHz보다 높아 사람이 듣지 못하는 소리.
- FM 울음: 높은 주파수에서 낮은 주파수로 빠르게 훑는 울음으로, 거리를 재기에 좋습니다.
- CF 울음: 주파수가 거의 일정한 울음으로, 날갯짓과 도플러 이동을 알아채기에 좋습니다.
- 마지막 버즈: 공격 끝에 아주 빠르게 우는 것.
- 도플러 이동: 소리를 내는 쪽이나 되비추는 쪽이 움직일 때 주파수가 바뀌는 것.
- 표적 세기: 표적이 소리를 얼마나 되돌려 보내는지를 데시벨로 나타낸 값.
- 귀구슬: 박쥐 귓구멍 앞의 작은 돌기.
출처
모든 주소는 2026-10-17에 확인했습니다. PubMed 페이지는 curl 에 HTTP 203과 함께 전체 페이지를 돌려줍니다.
- Annemarie Surlykke and Elisabeth K. V. Kalko, Echolocating bats cry out loud to detect their prey. PLoS ONE 3 (2008), e2036. Source levels 122 to 134 dB SPL, above 140 dB for Noctilio. https://pmc.ncbi.nlm.nih.gov/articles/PMC2323577/
- Coen P. H. Elemans, Andrew F. Mead, Lasse Jakobsen and John M. Ratcliffe, Superfast muscles set maximum call rate in echolocating bats. Science 333 (2011), 1885 to 1888. https://pubmed.ncbi.nlm.nih.gov/21960635/
- John M. Ratcliffe, Coen P. H. Elemans, Lasse Jakobsen and Annemarie Surlykke, How the bat got its buzz. Biology Letters 9 (2013). https://pmc.ncbi.nlm.nih.gov/articles/PMC3639754/
- Lasse Jakobsen, John M. Ratcliffe and Annemarie Surlykke, Convergent acoustic field of view in echolocating bats. Nature 493 (2013), 93 to 96. https://www.nature.com/articles/nature11664
- James A. Simmons, The resolution of target range by echolocating bats. Journal of the Acoustical Society of America 54 (1973), 157 to 173. https://pubmed.ncbi.nlm.nih.gov/4738624/
- Brian D. Lawrence and James A. Simmons, Measurements of atmospheric attenuation at ultrasonic frequencies and the significance for echolocation by bats. J. Acoust. Soc. Am. 71 (1982), 585 to 590. https://pubmed.ncbi.nlm.nih.gov/7085967/
- Stefan Greif and Björn M. Siemers, Innate recognition of water bodies in echolocating bats. Nature Communications 1 (2010), 107. https://pmc.ncbi.nlm.nih.gov/articles/PMC3060641/
- Aaron J. Corcoran, Jesse R. Barber and William E. Conner, Tiger moth jams bat sonar. Science 325 (2009), 325 to 327. https://pubmed.ncbi.nlm.nih.gov/19608920/
- Aaron J. Corcoran and William E. Conner, Bats jamming bats: food competition through sonar interference. Science 346 (2014), 745 to 747. https://pubmed.ncbi.nlm.nih.gov/25378624/
- Jesse R. Barber and others, Moth tails divert bat attack: evolution of acoustic deflection. PNAS 112 (2015), 2812 to 2816. https://pmc.ncbi.nlm.nih.gov/articles/PMC4352808/
- Hannah M. ter Hofstede and John M. Ratcliffe, Evolutionary escalation: the bat-moth arms race. Journal of Experimental Biology 219 (2016), 1589 to 1602. https://pubmed.ncbi.nlm.nih.gov/27252453/
- Alan D. Grinnell, Early milestones in the understanding of echolocation in bats. Journal of Comparative Physiology A 204 (2018), 519 to 536. https://pubmed.ncbi.nlm.nih.gov/29687162/
- Peter T. Madsen and Annemarie Surlykke, Functional convergence in bat and toothed whale biosonars. Physiology 28 (2013), 276 to 283. https://pubmed.ncbi.nlm.nih.gov/23997187/
- Bertel Møhl and others, The monopulsed nature of sperm whale clicks. J. Acoust. Soc. Am. 114 (2003), 1143 to 1154. https://pubmed.ncbi.nlm.nih.gov/12942991/
- Signe Brinkløv, M. Brock Fenton and John M. Ratcliffe, Echolocation in oilbirds and swiftlets. Frontiers in Physiology 4 (2013), 123. https://pmc.ncbi.nlm.nih.gov/articles/PMC3664765/
- Björn M. Siemers and others, Why do shrews twitter? Communication or simple echo-based orientation. Biology Letters 5 (2009), 593 to 596. https://pmc.ncbi.nlm.nih.gov/articles/PMC2781971/
- Lore Thaler, Stephen R. Arnott and Melvyn A. Goodale, Neural correlates of natural human echolocation in early and late blind echolocation experts. PLoS ONE 6 (2011), e20162. https://pmc.ncbi.nlm.nih.gov/articles/PMC3102086/
- Liam J. Norman, Caitlin Dodsworth, Denise Foresteire and Lore Thaler, Human click-based echolocation: effects of blindness and age, and real-life implications in a 10-week training program. PLoS ONE 16 (2021), e0252330. https://pmc.ncbi.nlm.nih.gov/articles/PMC8171922/
- Yossi Yovel, Michal Geva-Sagiv and Nachum Ulanovsky, Click-based echolocation in bats: not so primitive after all. J. Comp. Physiol. A 197 (2011), 515 to 530. https://pubmed.ncbi.nlm.nih.gov/21465138/
- Animal Diversity Web (University of Michigan), Eptesicus fuscus: FM calls of 1 to 5 ms from 50 to 25 kHz. https://animaldiversity.org/accounts/Eptesicus_fuscus/
- Animal Diversity Web, Euderma maculatum: calls of 9 to 12 kHz. https://animaldiversity.org/accounts/Euderma_maculatum/
- Bat Conservation Trust, Greater horseshoe bat: almost constant frequency call of about 82 kHz. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/greater-horseshoe
- Bat Conservation Trust, Brown long-eared bat (the whispering bat). https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/brown-long-eared-bat
- Hans-Ulrich Schnitzler and Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. J. Comp. Physiol. A 197 (2011), 541 to 559. https://www.ebi.ac.uk/europepmc/webservices/rest/search?query=EXT_ID:20857119&format=json&resultType=core
- Arjan Boonman, Sara Bumrungsri and Yossi Yovel, Nonecholocating fruit bats produce biosonar clicks with their wings. Current Biology 24 (2014), 2962 to 2967. https://pubmed.ncbi.nlm.nih.gov/25484290/
- NASA Glenn Research Center, Speed of Sound. https://www.grc.nasa.gov/www/k-12/airplane/sound.html
- NOAA Ocean Service, What is sonar? https://oceanservice.noaa.gov/facts/sonar.html
- National Institute of Biomedical Imaging and Bioengineering, Ultrasound. https://www.nibib.nih.gov/science-education/science-topics/ultrasound
- Bosch Mobility, Ultrasonic sensor: detection range 15 cm to 5 m. https://www.bosch-mobility.com/en/solutions/sensors/ultrasonic-sensor/
- 공기 중 소리 흡수: ISO 9613-1:1993, 음향학, 실외 전파 중 소리의 감쇠, 제1부(모형에 쓴 식).
- 무대 아래 목록의 동물과 기계마다 출처를 카드에 걸어 두었습니다.
코스 4 / 8
빛과 소리함께 보면 좋은 전시
오르골은 어떻게 소리를 낼까
길이 30.6 mm인 강철 빗살은 1초에 261.6번 떨리고, 길이를 절반으로 줄이면 음이 두 옥타브 올라갑니다.
축음기의 원리: 주석박에서 카세트테이프와 CD 까지
1877년 에디슨의 첫 축음기는 주석박에 목소리를 새겼고, 같은 바늘이 2.54 mm 간격의 홈에서 그 목소리를 다시 들려주었습니다.
피아노는 어떻게 소리를 낼까: 그랜드 액션과 평균율
건반을 10밀리미터 누르면 펠트 해머가 현까지 날아가 치고, 소리를 막지 않도록 곧바로 떨어집니다.
소리는 어떻게 생겼을까: 음파, 주파수, 데시벨
440 Hz 소리는 공기를 78 cm 간격의 빽빽한 층으로 밀어내지만, 94 dB로 크게 울려도 공기 한 점이 움직이는 거리는 1,000분의 1 mm가 안 됩니다.
레코드판(LP) 원리: 소리골에 소리가 새겨지는 법
LP 바깥쪽 홈은 바늘 밑을 1초에 0.5 m씩 지나가지만, 마지막 곡이 끝날 무렵에는 21 cm로 느려집니다.
번개와 천둥은 어떻게 생길까
번개 줄기는 공기를 태양 표면의 약 5배 온도로 달구고, 그 천둥은 1 km를 올 때마다 약 3초씩 걸립니다.