그림 69원리관
광합성의 원리
햇빛을 받는 나뭇잎은 이산화탄소가 100만분의 426 정도밖에 없는 공기에서 탄소를 거둬 당을 만듭니다.
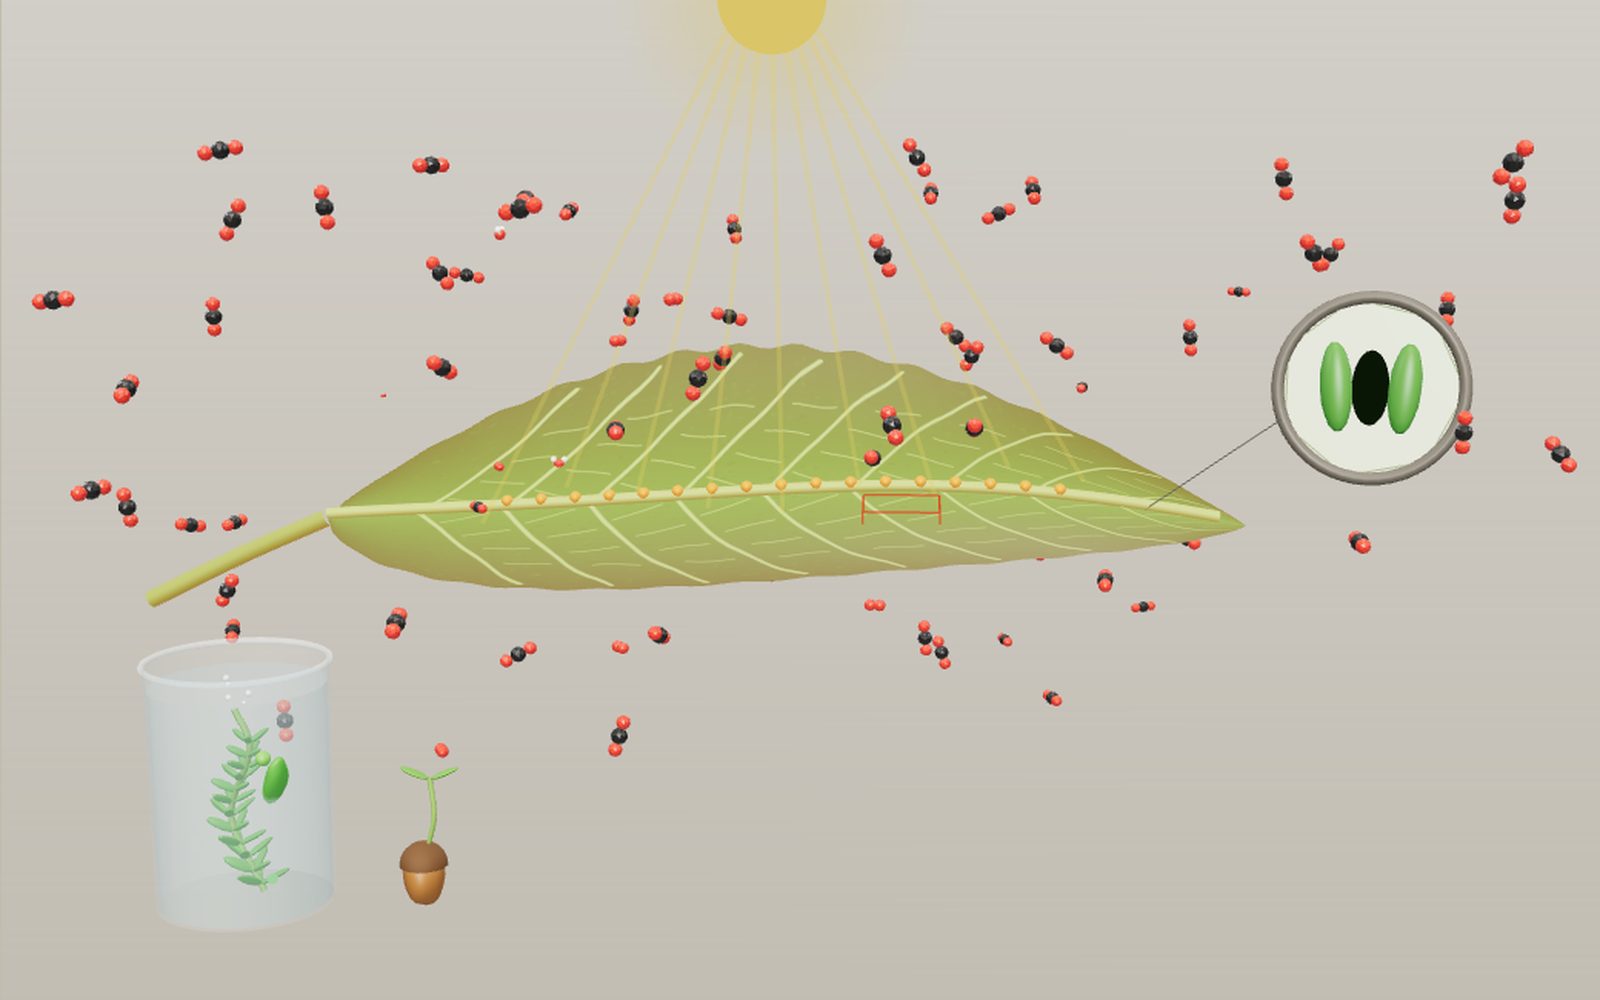
이 기기에서는 3D를 띄울 수 없습니다. 아래 안내 단계를 글로 볼 수 있습니다.
1 / 8 햇빛을 받는 나뭇잎여기서 출발합니다. 해를 끌어 빛을 기울이고 잎 둘레의 공기를 보세요. CO₂ 분자가 들어가고 O₂가 나가며, 비커 속 물풀에서 방울이 올라옵니다. 빨간 상자는 다음에 잘라 볼 조각입니다.
끌어서 돌리고, 휠이나 두 손가락으로 확대하세요.
나무의 몸은 어디에서 왔을까요
도토리 한 알은 몇 그램밖에 되지 않지만, 거기서 자란 참나무는 몇 톤이 됩니다. 그 무게의 대부분은 흙에서 오지 않았습니다. 공기 속 이산화탄소에서 왔고, 초록 잎 안에서 빛의 에너지를 받아 당으로 바뀌었습니다. 우리가 마시는 산소도 같은 과정에서 나옵니다. OpenStax 생물학 교과서는 지구 생태계의 99퍼센트가 광합성으로 움직인다고 적고 있습니다.
전체 반응은 한 줄로 쓸 수 있습니다. 이산화탄소 여섯 분자와 물 여섯 분자가 당 하나와 산소 여섯 분자가 됩니다. 하지만 이 한 줄 뒤에는 잎 한 장에서 수십억분의 1미터짜리 단백질에 이르기까지 여러 크기에 걸친 긴 단계가 숨어 있습니다. 이 전시는 그 단계를 차례로 내려갑니다. 나뭇잎에서 출발해 작은 조각을 잘라 보고, 엽록체 하나를 연 다음, 빛이 화학 에너지로 바뀌는 틸라코이드 막 위에 섭니다. 슬라이더 세 개로 빛과 이산화탄소와 온도를 바꾸면, 구석의 곡선이 광합성 속도가 어떻게 달라지는지 보여 줍니다.
잎은 빛을 받으면서 공기도 들여야 합니다
잎이 맡은 일 두 가지는 서로 부딪칩니다. 초록 세포를 빛 쪽으로 넓게 펼쳐야 하고, 그 세포까지 공기가 닿게 해야 하며, 그러면서 물은 되도록 적게 잃어야 합니다. 잎의 층 구조가 이 문제를 풉니다.
맨 위는 물이 덜 빠져나가게 하는 왁스 같은 큐티클이 덮고 있고, 그 아래에 보통 한 겹인 투명한 표피 세포가 있습니다. 표피 밑에는 울타리 세포가 기둥처럼 나란히 서 있습니다. OpenStax의 잎 단원은 이 세포를 한 층에서 세 층까지 빽빽하게 늘어선 기둥 모양 세포라고 설명하며, 잎의 엽록체 대부분이 여기에 있습니다. 모형에서는 기둥을 반투명하게 그려서 안쪽 엽록체가 짙은 초록 알갱이로 보이게 했습니다.
울타리 조직 아래로 내려가면 세포 모양이 달라집니다. 해면 조직은 모양이 불규칙한 세포가 듬성듬성 놓여 있고, 그 사이가 공기로 차 있습니다. 이 공기 틈이 잎의 허파 노릇을 합니다. 잎 뒷면으로 들어온 기체가 이 틈을 따라 모든 세포에 퍼집니다. 조각 가운데로는 잎맥이 지나가는데, 물관(목부)은 뿌리에서 물을 끌어올리고 체관(사부)은 당을 다른 곳으로 실어 냅니다.
기공은 물을 내주고 이산화탄소를 받습니다
잎 뒷면에는 기공이라는 작은 구멍이 흩어져 있고, 구멍마다 공변세포 두 개가 감싸고 있습니다. 공변세포에 물이 차서 부풀면 두 세포가 휘어 벌어지면서 구멍이 열립니다. 공변세포가 시들면 구멍이 닫힙니다. 표피 세포 가운데 엽록체를 가진 것은 공변세포뿐입니다.
구멍을 여는 데는 대가가 따릅니다. 이산화탄소는 구멍이 열려야만 들어올 수 있는데, 같은 길로 수증기가 빠져나갑니다. 잎 속 공기는 거의 포화 상태이고 바깥 공기는 대개 그렇지 않기 때문입니다. OpenStax에 따르면 식물이 뿌리로 빨아들인 물의 90퍼센트까지가 이렇게 증산으로 사라질 수 있습니다. 공변세포는 빛, 잎의 수분 상태, 이산화탄소 농도에 반응하므로, 덥고 건조한 오후에는 식물이 기공을 닫고 물을 지키는 대신 광합성을 덜 하는 쪽을 고를 수 있습니다.
모형에서는 기공 열림 슬라이더가 공변세포를 움직입니다. 짙은 회색과 빨강으로 된 CO₂ 분자가 구멍으로 들어오고, 파랑과 흰색의 물 분자가 빠져나갑니다. 구멍을 닫으면 두 흐름이 모두 0이 됩니다. 수분 손실 값은 기공이 넓을수록, 온도가 높을수록 커집니다. 따뜻한 공기는 물을 더 많이 품을 수 있어서 잎을 더 빨리 말리기 때문입니다.
엽록체 안에는 막이 또 있습니다
울타리 세포 속 초록 알갱이 하나하나가 엽록체입니다. 엽록체는 두 겹의 막으로 싸여 있고, 그 안은 스트로마라는 물기 많은 공간입니다. 스트로마 안에는 세 번째 막인 틸라코이드가 떠 있는데, 납작한 주머니가 쌓여 그라나를 이루고 한 장짜리 막이 그라나 사이를 잇습니다. 주머니 안쪽 공간은 루멘이라고 부릅니다.
이렇게 나뉜 공간에서 일도 둘로 나뉩니다. 틸라코이드 막에서는 명반응이 일어나 ATP와 NADPH라는 에너지 운반체 두 가지를 만듭니다. 스트로마에서는 캘빈 회로가 이 둘을 써서 이산화탄소로 당을 짓습니다. 전시의 마지막 배율은 이 둘을 한 화면에 보여 줍니다. 가운데에 막이 가로놓이고, 위가 스트로마, 아래가 루멘입니다.
광계 II가 물에서 전자를 가져옵니다
빛은 광자로 들어옵니다. 엽록소는 빨간빛과 파란빛을 잘 흡수하고 초록빛은 반사하기 때문에 잎이 초록으로 보입니다. 식물은 약 400~700 nm 파장의 빛을 쓰며, 식물생리학에서는 이 범위를 광합성 유효 복사라고 부릅니다.
광자는 안테나 복합체가 붙잡습니다. OpenStax에 따르면 집광 복합체 하나에 엽록소가 300~400개, 그리고 카로티노이드가 들어 있습니다. 흡수된 광자의 에너지는 색소에서 색소로 건너가다가 100만분의 1초쯤 지나 반응 중심에 닿습니다. 광계 II의 반응 중심은 P680이라는 엽록소 한 쌍이고, 전달된 에너지가 이 엽록소의 전자 하나를 받개 쪽으로 밀어냅니다.
전자를 잃은 P680은 물에서 전자를 되찾습니다. 광계 II의 루멘 쪽에는 망가니즈 원자 넷, 칼슘 원자 하나, 산소 원자 다섯으로 된 클러스터가 있습니다. 2011년 우메나와 동료들은 이 클러스터를 1.9 Å 해상도로 밝혔고, 여기에 물 분자 네 개가 붙어 있는 것을 확인했습니다. 클러스터는 물에서 전자를 하나씩 빼 옵니다. 물 두 분자를 쪼개면 전자 네 개, 양성자 네 개, 산소 분자 하나가 나옵니다. OpenStax는 이 산소의 약 10퍼센트를 잎의 미토콘드리아가 쓰고 나머지는 공기로 나간다고 설명합니다.
모형에서 노란 줄무늬는 광자, 청록 구슬은 전자입니다. 광계 II에서 전자 네 개가 떠날 때마다 클러스터에서 O₂ 분자 하나가 떠나고 나간 O₂ 숫자가 하나 늘어납니다.
전자는 플라스토퀴논을 거쳐 NADPH로 갑니다
전자는 그 자리에 머물지 않습니다. 먼저 플라스토퀴논(노란 구슬)에 넘어가는데, 이 작은 분자는 막 속을 헤엄쳐 사이토크롬 b6f 복합체까지 갑니다. 전자가 b6f를 지나는 동안 b6f는 스트로마의 양성자를 루멘으로 옮깁니다. 반대편에서는 구리를 가진 파란 단백질 플라스토시아닌이 전자를 받아 루멘 쪽 표면을 따라 광계 I까지 나릅니다.
여기까지 오는 동안 전자는 에너지를 많이 잃었으므로, 광계 I에는 두 번째 광자가 필요합니다. 반응 중심 P700이 전자를 다시 높은 에너지로 올려 스트로마 쪽의 페레독신에 넘깁니다. 그다음 페레독신-NADP⁺ 환원효소(FNR)가 전자 두 개를 NADP⁺에 실어 NADPH를 만듭니다. 모형에서는 전자가 두 개 도착할 때마다 보라색 NADPH가 FNR을 떠나 캘빈 회로로 갑니다.
양성자 기울기가 ATP 합성효소를 돌립니다
루멘에는 두 곳에서 양성자가 찹니다. 광계 II의 물 분해와 b6f의 펌프입니다. 루멘은 산성이 되고 스트로마는 덜 산성이 되며, 양성자가 돌아갈 문은 하나뿐입니다. 그 문이 ATP 합성효소 전시에서 본 회전 기계이고, 엽록체에서는 머리를 스트로마 쪽으로 두고 박혀 있습니다.
2000년 셸러트와 동료들은 원자힘 현미경으로 엽록체의 ATP 합성효소를 보고 회전 고리가 소단위 14개로 되어 있다는 것을 알아냈습니다. 양성자 하나가 건널 때마다 고리가 소단위 한 칸씩 돌기 때문에 양성자 14개가 고리를 한 바퀴 돌리고, 한 바퀴에 머리에서 ATP가 3개 나옵니다. ATP 하나에 양성자 14 ÷ 3 ≈ 4.67개가 드는 셈입니다. 명반응이 빨라질수록 루멘의 빨간 구슬이 늘어나고, 그 구슬이 고리를 하나씩 지나가는 모습을 볼 수 있습니다.
루비스코와 캘빈 회로
실제로 탄소를 붙잡는 효소는 스트로마에 있습니다. 리불로스-1,5-이인산 카복실화효소/산소화효소, 줄여서 루비스코입니다. 루비스코는 CO₂ 하나를 RuBP라는 탄소 다섯 개짜리 당에 붙입니다. 그렇게 생긴 탄소 여섯 개짜리 물질은 바로 둘로 갈라져 탄소 세 개짜리 3-PGA 두 분자가 됩니다. OpenStax는 캘빈 회로를 고정, 환원, 재생의 세 단계로 나눕니다.
환원 단계에서는 ATP와 NADPH가 3-PGA를 탄소 세 개짜리 당인산 G3P로 바꿉니다. 재생 단계에서는 G3P 대부분을 다시 RuBP로 바꿔 회로가 계속 돌게 하는데, 여기에도 ATP가 듭니다. 한 바퀴에 탄소가 하나씩만 더해지므로, 밖으로 내보낼 G3P 하나를 얻으려면 세 바퀴를 돌아야 합니다. 그 세 바퀴 동안 ATP 9개와 NADPH 6개가 쓰입니다. 포도당 하나에는 여섯 바퀴 분량이 필요합니다.
모형의 회로는 루비스코를 맨 위에 두고 시계 방향으로 돕니다. 구슬은 돌면서 색이 바뀌는데, 파랑이 3-PGA, 주황이 G3P, 초록이 RuBP입니다. 구슬이 루비스코를 지날 때마다 CO₂ 분자가 하나 날아오고, 아래 막에서 ATP와 NADPH가 올라오며, 세 번 고정할 때마다 육각형 당 하나가 오른쪽으로 떠납니다.
숫자로 확인하기
전시의 모든 수치는 화면에서 1초에 고정되는 CO₂ 수 하나로 이어집니다. 나머지는 출처의 수치에서 따라 나옵니다.
- CO₂ 하나를 고정할 때 캘빈 회로는 ATP 9 ÷ 3 = 3개, NADPH 6 ÷ 3 = 2개를 씁니다.
- NADPH 하나는 전자 두 개를 나르므로 NADPH 2개에는 전자 4개가 필요합니다. 전자 4개는 물 두 분자를 쪼개야 나오고, 그때 O₂가 하나 나옵니다. 따라서 CO₂ 하나를 고정할 때마다 O₂ 하나가 나가며, 전체 반응식과도 맞습니다.
- 전자 하나는 두 광계를 모두 지나며 각각에서 광자 하나를 씁니다. 그래서 이 단순한 직선 경로에서는 O₂ 하나에 광자 8개가 듭니다.
- CO₂ 하나에 ATP 3개, ATP 3개에 양성자 14개이므로, CO₂ 하나를 고정할 때마다 양성자 14개가 ATP 합성효소를 지나갑니다.
화면의 숫자로도 확인할 수 있습니다. 시간이 조금 지나면 만든 ATP는 고정한 CO₂의 세 배 가까이, 만든 NADPH는 두 배 가까이, 나간 O₂는 거의 같은 수가 됩니다. 숫자마다 애니메이션에서 올라가는 순간이 달라서 한두 개씩은 어긋납니다.
속도 곡선은 실제로 잰 잎이 아니라 모형입니다. 빛 반응은 교과서에서 흔히 쓰는 비직각 쌍곡선 모양입니다. 총 속도 P는 θP² − (αI + Pc)P + αIPc = 0의 해이며, 여기서 I는 빛 세기, α = 0.11은 처음 기울기, θ = 0.8은 꺾이는 정도, Pc는 이산화탄소와 온도가 정하는 천장입니다. 천장은 CO₂ 농도 C에 따라 100 × (C − 50) ÷ (C − 50 + 300)으로 올라가고, 25 °C에서 꼭대기를 이루는 한쪽으로 기운 종 모양 곡선이 곱해집니다. 여기서 25 °C에 3, 10 °C 오를 때마다 두 배가 되는 호흡량을 빼면 순 속도가 됩니다. 단위는 천장을 100으로 둔 모형 단위입니다.
계산하면 이런 값이 나옵니다. 모형 기본값인 426 ppm, 25 °C에서 순 속도는 어둠 속에서 −3(잎이 호흡만 함), 빛 200에서 16.8, 빛 2000에서 49.4입니다. 곡선은 빛 약 1274에서 천장의 90퍼센트에 닿습니다. CO₂를 1000 ppm으로 올리면 곡선 꼭대기가 62.8로 올라가고, 90퍼센트 지점은 약 1636으로 밀려납니다. 모형에서 가장 좋은 온도는 24.5 °C입니다. 기본값 426 ppm은 NOAA 마우나로아 관측 기록에서 가져왔으며, 2026년 9월 월평균이 426.07 ppm입니다.
빛과 이산화탄소와 온도가 저마다 한계를 정합니다
곡선은 두 부분으로 나뉩니다. 어두울 때는 거의 직선으로 올라갑니다. 들어오는 광자를 모두 쓸 수 있고 다른 것은 모자라지 않기 때문입니다. 밝아지면 곡선이 평평해지는데, 캘빈 회로가 따라가지 못해서입니다. 루비스코는 느리고 이산화탄소가 있어야 일할 수 있으니, 빛을 더 준다고 빨라지지 않습니다. 화면의 제한 요인 칸은 지금 속도를 붙잡고 있는 것이 무엇인지 알려 줍니다.
그래서 슬라이더마다 효과가 다릅니다. CO₂를 올리면 어두운 쪽 곡선은 거의 그대로이고 꼭대기만 올라갑니다. 온실에 CO₂를 넣어 주면 햇빛이 강할 때 가장 이득을 보는 까닭입니다. 온도는 주로 효소에 영향을 주므로 곡선 꼭대기 전체를 눌렀다 폈다 합니다. 기공을 닫으면 바깥 공기가 그대로여도 잎 속 CO₂(화면의 잎 속 CO₂)가 낮아져 천장이 내려갑니다. 점선은 언제나 기본 상태의 잎이라 비교할 수 있습니다.
모형에서 단순하게 만든 부분
모형은 알아보기 쉽게 그렸고, 배율 사이의 크기 비율은 실제와 다릅니다. 단백질은 실제 구조가 아니라 매끈한 덩어리입니다. 실제로 일어나지만 빠진 과정도 몇 가지 있습니다.
- 루비스코는 산소와도 반응합니다. 이 곁반응인 광호흡은 탄소를 낭비하며 잎이 더워질수록 심해집니다. 모형은 온도 곡선의 모양으로만 이를 짐작하게 합니다.
- 식물은 광계 I 주위를 도는 순환 전자 흐름으로 NADPH 없이 ATP를 더 만들기도 합니다. 모형은 직선 경로만 보여 주므로 ATP와 NADPH 수가 캘빈 회로와 꼭 맞아떨어집니다.
- C4 식물과 선인장 같은 CAM 식물은 루비스코에 닿기 전에 CO₂를 모아 둡니다. OpenStax는 선인장이 밤에 CO₂를 받아 두고 낮에는 기공을 닫아 둔다고 설명합니다. 이런 식물의 곡선은 꽤 다릅니다.
- 실제 최적 온도는 종마다 다르고, 식물이 자라는 온도에 적응하면서 옮겨 갑니다. 야모리와 동료들이 2014년 총설에서 이를 정리했습니다. 여기서 쓴 25 °C는 모형을 위해 고른 어림값입니다.
- 수분 손실은 모형 단위이며, 기공이 열린 정도와 습도 50퍼센트 공기의 건조한 정도에 비례하게 했습니다. 포화 수증기압은 FAO 공식을 썼습니다.
짧은 역사
멜빈 캘빈은 식물의 이산화탄소 동화 연구로 1961년 노벨 화학상을 받았습니다. 탄소가 회로를 어떻게 도는지 추적한 연구이고, 그 회로에 그의 이름이 붙었습니다. 함께 연구한 다른 과학자의 이름을 넣어 캘빈-벤슨 회로라고 부르는 교과서도 많습니다. 양성자 기울기가 미토콘드리아와 엽록체에서 ATP 합성을 이끈다는 피터 미첼의 화학삼투 이론은 1978년 노벨 화학상을 받았습니다. 1988년에는 요한 다이젠호퍼, 로베르트 후버, 하르트무트 미헬이 광합성 반응 중심의 3차원 구조를 밝힌 공로로 노벨 화학상을 함께 받았는데, 막단백질의 구조를 원자 하나하나까지 밝힌 첫 사례였습니다. 광계 II의 물 분해 클러스터 구조는 2011년에 밝혀졌습니다.
광자 수와 저장 에너지 계산
광자 8개라는 숫자는 이상적인 전자 전달의 수지이지, 햇빛이 작물로 바뀌는 비율이 아닙니다. NADPH 2개를 공급하려면 전자 4개가 각각 2번 들떠야 합니다. 고정한 CO₂ 1개를 흡수한 광자 8개로 나누면 한계 양자 수율은 광자당 CO₂ 0.125개입니다. 가상의 잎에서 CO₂ 1개 고정에 흡수 광자 10개가 필요하다면 수율은 0.100입니다. 둘 다 계산 예입니다. 두 번째 값은 모든 잎에서 측정된 보편적인 요구량이 아닙니다. 추가 ATP 생산과 광호흡 등 손실에 따라 실제 요구량이 달라집니다.
가령 잎이 흡수하는 광자속을 제곱미터당 초당 800마이크로몰이라고 가정합니다. 광자 8개 기준이면 같은 면적에서 초당 CO₂ 100마이크로몰까지 고정할 수 있고, 10개 기준이면 80마이크로몰입니다. 어느 값도 화면의 「순 속도」를 예측하지는 않습니다. 화면 세로축은 모형 단위이고 호흡 항도 따로 빼기 때문입니다. 둘 다 마이크로몰을 쓰더라도 광자속과 탄소 흐름은 다른 양입니다. 광자를 세는 것만으로 에너지 효율을 알 수도 없습니다. 파란 광자가 빨간 광자보다 에너지가 크기 때문입니다.
Zhu, Long, Ort의 2008년 검토 논문은 30 °C, CO₂ 380 ppm에서 햇빛을 생물량으로 전환하는 최대 효율을 C3 식물 4.6%, C4 식물 6%로 추정했습니다. 이 농도는 논문의 가정이며 현재 공기 농도를 뜻하지 않습니다. 두 백분율의 분모는 입사한 태양 복사 전체입니다. 흡수 광자당 수율이나 가시광선만 분모로 삼은 효율과 그대로 비교할 수 없습니다. 햇빛 상당 부분은 통상적인 광합성 유효 파장 범위 밖에 있고, 반사와 대사 비용이 나머지도 줄입니다.
에너지 수지를 계산하기 위해 일정한 면적과 기간에 작물이 받는 태양 에너지를 총 1000 MJ라고 가정합니다. 전환 효율을 1%로 가정하면 생물량에 10 MJ가 저장되고, 2%라면 20 MJ입니다. 이 비율은 포장 성능을 생각하기 위한 예시 가정이며 모든 작물의 실측치가 아닙니다. 저장량이 그대로 먹을 수 있는 수확량이 된다는 보장도 없고, 받은 빛 모두가 활동 중인 잎에 도달한다는 뜻도 아닙니다. 뿌리와 줄기에도 화학 에너지가 저장됩니다. 잘 밝힌 잎을 짧게 측정한 값과 한 철 수확량은 서로 다른 질문에 답합니다.
광보상점과 광포화점의 차이
광보상점에서는 광합성의 총 탄소 흡수가 호흡의 탄소 방출과 정확히 같아 순 교환이 0입니다. 그보다 어두워도 광합성은 일어날 수 있지만 호흡이 더 큽니다. 광포화에서는 빛을 더 늘려도 탄소 흡수가 별로 늘지 않습니다. 두 지점은 곡선에서 다른 위치이며, 처음 꺾이는 부분을 부르는 두 이름이 아닙니다.
「공기 중 CO₂」 426 ppm, 「잎 온도」 25 °C, 「기공 열림」 100%에서 코드가 주는 광보상점은 제곱미터당 초당 광자 약 27.6마이크로몰입니다. 모형 순 속도 식이 0이 되는 빛 세기를 푼 값이며, 참나무 잎에서 발표된 문턱값이 아닙니다. 조작기는 빛을 정수로 설정하므로 28에 두면 교차점에 가깝습니다. 빛이 0이면 순 속도는 모형 단위 −3입니다. 0을 통과한다고 호흡이 멈춘 것은 아닙니다.
90% 표시는 계산한 총 광합성 천장을 기준으로 합니다. 이 설정에서는 약 1274에 나타납니다. 그 지점에서 곡선이 수학적으로 완전히 평평해진 것은 아니며, 화면의 순 속도에는 호흡이 빠져 있습니다. 다른 백분율을 기준으로 잡으면 포화 표시 위치도 달라집니다. 따라서 광포화 숫자를 인용할 때는 기준을 함께 밝혀야 합니다.
그늘에 적응한 잎은 호흡 속도가 낮아서 더 어두운 조건에서 순 탄소 이득을 낼 수 있습니다. 햇빛에 적응한 잎은 최대 속도가 더 높을 수 있습니다. 이 전시에는 실측한 양엽과 음엽 매개변수를 바꾸는 기능이 없습니다. 매끈한 반응 곡선에는 지나치게 강한 빛에 의한 손상도 넣지 않았습니다. 실제 군락에서는 위쪽 잎이 처리 능력보다 많은 빛을 받는 동안 아래 잎은 빛이 부족할 수 있습니다. 안테나 크기 연구는 꼭대기에서 흡수량만 늘리기보다 빛을 더 고르게 나누어 군락 전체 생산량을 높일 수 있는지 검토합니다.
C3 잎과 옥수수와 선인장
C3와 C4라는 이름은 각각 최초 고정 경로의 첫 안정 생성물에 들어 있는 탄소 수를 가리킵니다. C3 잎에서는 루비스코가 RuBP에 CO₂를 직접 붙이고, 이때 만들어지는 안정 생성물은 탄소 3개인 3-PGA입니다. 밀과 벼가 이 경로를 씁니다. 루비스코는 산소와도 반응합니다. 그 산소화 반응은 광호흡이라는 회수 경로를 시작하며, 에너지를 쓰고 이미 고정한 탄소 일부를 다시 방출합니다. 이것은 어둠 속 미토콘드리아 호흡과 다른 과정입니다.
옥수수와 사탕수수는 C4 식물입니다. 엽육세포의 PEP 카복실화효소가 먼저 탄소를 받아 탄소 4개인 화합물을 만듭니다. 이 화합물이 유관속초세포로 탄소를 옮겨 루비스코 가까이에서 CO₂를 내놓습니다. 캘빈 회로는 여전히 작동하고, C4 대사는 더 농축된 CO₂를 공급합니다. 이 펌프를 유지하는 데는 추가 에너지가 필요하므로 어느 온도와 빛 조건에서나 유리한 것은 아닙니다. 더위와 낮은 잎 속 CO₂ 때문에 광호흡이 커질 조건에서 특히 도움이 됩니다.
많은 선인장은 CAM을 씁니다. 외부 CO₂ 상당 부분을 밤에 받아 유기산에 탄소를 잠시 저장합니다. 낮에는 기공을 더 닫아 둔 채 산을 분해해 CO₂를 공급합니다. C4는 대체로 최초 포획과 캘빈 회로를 서로 다른 세포에 나누고, CAM은 일의 상당 부분을 밤과 낮에 나눕니다. 따라서 보통의 낮 시간 C3 잎을 나타내는 모형에 선인장을 그대로 대입하면 잘못 해석하게 됩니다.
루비스코의 카복실화 능력은 문제의 일부입니다. 반응물 전달도 중요합니다. 효소가 온전해도 기공이 닫히면 탄소 흡수가 제한되고, 외부 CO₂를 늘려도 엽록체까지 충분히 도달해야 도움이 됩니다. 「잎 종류」 조작으로 C3 양지 잎, C3 음지 잎, 옥수수를 닮은 C4 잎을 고를 수 있고, 세 가지 모두 모형 곡선입니다. C4 설정은 지금 공기 근처에서 CO₂ 반응이 포화되고, 보상점이 0에 가깝고, 최적 온도가 더 높으며, 펌프에 드는 ATP를 나타내려고 처음 기울기를 낮게 잡았습니다. 루비스코의 회전 속도나 산소화 반응, 펌프 자체를 계산하지는 않습니다. 음지 잎은 Boardman의 양지·음지 식물 총설을 따라 처리 능력과 호흡이 모두 작아서, 어두운 빛에서 본전을 맞추고 일찍 포화됩니다. CAM 설정은 없으며, 세 가지 어느 것으로도 실제 작물 수확량의 순위를 정할 수는 없습니다.
초록 잎만 보고 알 수 없는 것
초록색 외관은 초록 광자가 광합성에 쓰이지 않는다는 증거가 아닙니다. 분리한 엽록소는 파란색과 빨간색 대역을 강하게 흡수하지만, 잎은 엽록체가 여럿 든 두껍고 빛을 산란시키는 구조입니다. 초록빛 일부는 빠져나가고, 일부는 조직 깊이 들어간 뒤 흡수됩니다. 색소 용액의 흡수 스펙트럼과 잎 전체의 작용 스펙트럼은 같은 측정이 아닙니다.
Liu와 van Iersel의 2021년 연구는 여러 빛 스펙트럼과 광자속에서 상추를 시험했습니다. 약한 빛에서는 초록빛 흡수율이 낮아 입사광 기준 양자 수율도 낮았습니다. 강한 빛에서는 수율이 높은 쪽에 속했고, 잎 안에 들뜸이 더 고르게 분포한다는 설명과 맞았습니다. 조건이 붙는 결과이지 초록 조명만 쓰면 모든 작물이 더 잘 자란다는 권고가 아닙니다. 「빛 색」 조작은 이 경향을 느슨하게 따릅니다. 곡선의 처음 기울기만 바꾸므로(초록빛이 가장 낮고, 파란빛, 흰빛, 빨간빛 순), 빛 색의 차이는 어두울 때 가장 크고 밝을 때는 거의 같아집니다. 이 비율은 모형 값이며, 전시는 깊이에 따른 흡수를 계산하지 않습니다.
흙에 대한 오해에서는 다른 구분이 필요합니다. 새 목재의 탄소는 주로 공기 중 CO₂에서 오지만, 생나무를 재면 물 무게도 상당합니다. 물은 뿌리로 들어오며 흙의 무기 양분은 건조 유기 탄소의 주된 공급원이 아니어도 필수입니다. 화분의 흙은 별로 줄지 않는데 식물 무게가 늘었다면 흙이 주된 질량 공급원이라는 설명에 반하는 증거입니다. 그러나 그것만으로 늘어난 무게의 모든 출처가 밝혀지지는 않습니다. 젖은 식물을 달기만 하는 것보다 건조 질량을 비교하고 탄소를 추적해야 더 강한 검증이 됩니다.
화면의 당 기호도 수지를 나타내는 표시입니다. 탄소를 고정할 때마다 엽록체가 완성된 포도당을 내보낸다는 뜻이 아닙니다. 캘빈 회로는 여러 번 돈 뒤 탄소 3개인 생성물을 내보내고, 후속 대사가 당과 다른 물질을 만듭니다. 눈에 보이는 기포는 방출된 기체를 알려 줄 뿐 자라는 줄기의 탄소 출처를 알려 주지는 않습니다.
물풀의 방울과 기울어진 빛
학교에서는 물풀로 광합성을 잽니다. 영국 왕립생물학회의 Practical Biology 실험 안내에서는 잘라 낸 Elodea나 Cabomba를 램프 아래 물에 넣고, 잘린 끝에서 올라오는 방울을 1분 동안 셉니다. 여러 번 세어 평균을 냅니다. 안내문은 가정도 밝힙니다. 방울은 모두 산소이고, 산소 생산은 광합성 속도에 비례하며, 방울 크기는 모두 같다고 봅니다. 작은 램프의 빛은 거리의 제곱에 반비례해 약해지므로, 램프를 두 배 멀리 두면 빛은 약 4분의 1이 됩니다.
무대의 비커는 같은 실험을 모형 안에서 합니다. 분당 방울 수는 모형의 순 속도에 정해진 수를 곱한 값이라서, 교실에서 세는 숫자가 아니라 방향과 비율을 보여 줍니다. 물풀은 물속의 C3 식물로 계산하므로 「기공 열림」 조작은 물풀에 영향을 주지 않습니다.
해는 끌어서 옮길 수 있습니다. 비스듬히 오는 빛은 더 넓은 잎 면적에 퍼지므로, 잎 1제곱미터에 닿는 빛은 바로 위에서 잰 각도의 코사인만큼 줄어듭니다. 60도에서는 해가 바로 위에 있을 때의 절반을 받습니다. 판독표에는 두 숫자가 다 나옵니다. 「빛」은 광원의 세기이고, 「잎에 닿는 빛」은 속도 곡선이 쓰는 값입니다.
화면에서 해 보기
- 조작은 처음 값 그대로 두고 해를 지평선 쪽으로 끌어 내립니다. 「빛 세기」는 그대로인데 「잎에 닿는 빛」은 각도의 코사인만큼 줄고, 햇살이 옅어지며 물풀의 방울도 느려집니다. 분당 방울 수는 모형 값입니다.
- 「빛 세기」를 0으로 옮깁니다. 제목 아래 줄이 CO₂를 내보내는 쪽으로 바뀌고, 분자의 흐름이 거꾸로 가며, 물풀이 멈춥니다. 빛을 천천히 올려 「순 속도」가 0을 지나는 곳을 찾습니다. 이 모형에서 426 ppm, 25 °C일 때 약 28 µmol/m²/s인 광보상점입니다.
- 「빛 세기」를 2000으로 두고 점과 「90%」 표시를 비교합니다. 이어서 「공기 중 CO₂」를 1000으로 올립니다. 잎 둘레의 CO₂ 구름이 짙어지고 곡선 위쪽이 높아집니다. 램프가 아니라 탄소 처리 천장이 달라졌기 때문입니다.
- 「잎 온도」를 40으로 올립니다. 수분 손실이 커지면서 잎이 노랗게 바래고 처지며 속도가 떨어집니다. 「기공 열림」을 줄이면 확대한 기공이 닫히고, 잎이 잃는 물이 줄며 「잎 속 CO₂」가 내려갑니다.
- 「잎 종류」를 C4로, 「빛 색」을 초록빛으로 바꿉니다. 그다음 「배율」로 틸라코이드 막까지 내려가 광계 II에서 NADPH로 가는 전자를 따라갑니다. ATP, NADPH, 고정한 CO₂ 계수기는 앞에서 설명한 3 대 2 대 1 수지를 따르며, 따로 잰 값이 아닙니다.
자주 묻는 질문
광합성에서 나오는 산소는 어디에서 오나요?
이산화탄소가 아니라 물에서 옵니다. 광계 II가 물에서 전자를 빼 오고, 물 두 분자를 쪼갤 때 O₂ 하나가 나옵니다. CO₂의 탄소는 유기물에 편입됩니다. 총괄 반응식은 물과 교환되는 산소 원자 하나하나의 경로까지 나타내지는 않습니다.
잎은 왜 초록색인가요?
엽록소가 빨간빛과 파란빛은 잘 흡수하고 초록빛은 반사하거나 통과시키기 때문입니다. 그렇다고 초록빛이 쓸모없다는 뜻은 아닙니다. 잎 안에서 흡수된 초록빛도 광합성에 쓰이며, 특히 강한 조명에서는 잎 깊은 곳까지 빛을 전달할 수 있습니다.
명반응과 캘빈 회로는 무엇이 다른가요?
명반응은 틸라코이드 막에서 일어나 빛을 ATP와 NADPH로 바꾸고 산소를 내보냅니다. 캘빈 회로는 스트로마에서 그 ATP와 NADPH로 CO₂를 당에 고정합니다. 예전 이름인 암반응은 오해를 부르는데, 캘빈 회로는 ATP와 NADPH가 만들어지는 낮에 돌아가기 때문입니다.
빛이 강해지면 왜 속도가 더 오르지 않나요?
어느 정도 밝아지면 캘빈 회로가 병목이 됩니다. 루비스코가 CO₂를 고정하는 속도에는 한계가 있고, CO₂는 기공을 거쳐 들어와야 합니다. 그때부터는 빛을 더 줘도 달라지지 않지만, CO₂를 늘리거나 온도를 맞추면 달라집니다.
식물은 왜 기공을 닫나요?
물을 아끼기 위해서입니다. 열린 기공은 CO₂를 들이지만 수증기도 내보내며, 식물이 빨아들인 물의 90퍼센트까지가 이렇게 사라질 수 있습니다. 덥고 건조한 날 구멍을 닫으면 광합성을 덜 하는 대신 식물이 마르지 않습니다.
O₂ 하나를 만드는 데 광자가 몇 개 드나요?
단순한 직선 경로로 보면 8개입니다. 물 두 분자에서 O₂ 하나를 내려면 전자 4개가 필요하고, 전자 하나는 광계 II와 광계 I에서 한 번씩, 모두 두 번 에너지를 받습니다.
엽록체의 ATP 합성효소는 미토콘드리아의 것과 같은가요?
작동 방식과 부품은 같지만, 잎 엽록체의 회전 고리는 소단위가 14개로 동물 미토콘드리아의 고리보다 큽니다. 고리가 클수록 ATP 하나에 드는 양성자가 많습니다. ATP 합성효소 전시에서 고리 크기를 바꿔 볼 수 있습니다.
초록빛도 광합성에 쓰이나요?
그렇습니다. 잎 안에서 흡수된 초록 광자도 광합성에 기여합니다. 표면에서 덜 흡수되면 더 깊은 엽록체까지 도달할 수 있습니다. 이득은 빛 세기와 잎 구조에 따라 달라집니다.
C4 식물은 캘빈 회로를 쓰지 않나요?
아닙니다. CO₂를 농축한 뒤 루비스코와 캘빈 회로에 공급합니다. 이 추가 농축 경로에는 에너지 비용이 듭니다.
광보상점에서 광합성이 시작되나요?
아닙니다. 광합성 흡수와 호흡 방출이 균형을 이루는 지점입니다. 그보다 어두워 순 탄소 교환이 음수여도 광합성은 계속될 수 있습니다.
용어
- 기공: 잎 표면에서 공변세포 두 개 사이에 난 구멍입니다.
- 엽육: 잎 안쪽 조직으로, 울타리 조직과 해면 조직으로 나뉩니다.
- 엽록체: 광합성이 일어나는 세포 소기관입니다.
- 틸라코이드: 엽록체 안의 납작한 막 주머니이며, 쌓인 묶음을 그라나라고 합니다.
- 스트로마: 틸라코이드를 둘러싼 액체로, 캘빈 회로가 여기서 돕니다.
- 루멘: 틸라코이드 안쪽 공간으로, 양성자가 모입니다.
- 광계: 색소 안테나와 반응 중심으로 된 단백질 복합체로, 빛으로 전자를 옮깁니다.
- NADPH: 명반응이 만드는 전자 운반체로, 캘빈 회로에서 탄소를 환원하는 데 씁니다.
- 루비스코: CO₂를 RuBP에 붙이는 효소입니다.
- G3P: 글리세르알데하이드 3-인산으로, 캘빈 회로가 내보내는 탄소 세 개짜리 당입니다.
- 증산: 식물에서 수증기가 빠져나가는 것으로, 대부분 기공을 통합니다.
- 광포화: 그 이상 빛을 늘려도 광합성 속도가 별로 오르지 않는 빛 세기입니다.
출처
OpenStax, Biology 2e, 8.1 광합성 개관(생태계의 99퍼센트, 엽록체, 틸라코이드, 그라나, 스트로마, 루멘, 잎 뒷면의 기공). https://openstax.org/books/biology-2e/pages/8-1-overview-of-photosynthesis (2026년 10월 16일 확인)
OpenStax, Biology 2e, 8.2 광합성의 명반응(400
700 nm, 안테나당 엽록소 300400개, 100만분의 1초, P680, P700, 물 분해, 산소의 약 10퍼센트를 미토콘드리아가 씀, 플라스토퀴논, 사이토크롬 복합체, 플라스토시아닌). https://openstax.org/books/biology-2e/pages/8-2-the-light-dependent-reactions-of-photosynthesis (2026년 10월 16일 확인)OpenStax, Biology 2e, 8.3 빛 에너지로 유기물 만들기(루비스코, RuBP, 3-PGA, G3P, G3P 하나에 세 바퀴, 환원에 ATP 6개와 NADPH 6개, 재생에 ATP 3개, 선인장). https://openstax.org/books/biology-2e/pages/8-3-using-light-energy-to-make-organic-molecules (2026년 10월 16일 확인)
OpenStax, Biology 2e, 30.4 잎(큐티클, 표피, 울타리 조직과 해면 조직, 공변세포, 잎맥). https://openstax.org/books/biology-2e/pages/30-4-leaves (2026년 10월 16일 확인)
OpenStax, Biology 2e, 30.5 식물의 물과 용질 이동(증산으로 물의 90퍼센트까지 잃음, 공변세포의 반응). https://openstax.org/books/biology-2e/pages/30-5-transport-of-water-and-solutes-in-plants (2026년 10월 16일 확인)
NOAA 지구감시연구소, Trends in Atmospheric Carbon Dioxide(마우나로아 2026년 9월 월평균 426.07 ppm). https://gml.noaa.gov/ccgg/trends/ (2026년 10월 16일 확인)
Umena Y, Kawakami K, Shen J-R, Kamiya N, Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å, Nature 473, 55 (2011)(Mn4CaO5 클러스터, 결합한 물 네 분자). https://www.nature.com/articles/nature09913 (2026년 10월 16일 확인)
Seelert H, Poetsch A, Dencher NA, Engel A, Stahlberg H, Müller DJ, Proton-powered turbine of a plant motor, Nature 405, 418 (2000)(엽록체 ATP 합성효소 고리의 소단위 14개). https://www.nature.com/articles/35013148 (2026년 10월 16일 확인)
Yamori W, Hikosaka K, Way DA, Temperature response of photosynthesis in C3, C4, and CAM plants: temperature acclimation and temperature adaptation, Photosynthesis Research 119, 101 (2014). https://link.springer.com/article/10.1007/s11120-013-9874-6 (2026년 10월 16일 확인)
FAO, Crop evapotranspiration, 관개·배수 보고서 56, 3장(포화 수증기압, 식 11). https://www.fao.org/4/x0490e/x0490e07.htm (2026년 10월 16일 확인)
NobelPrize.org, 1961년 노벨 화학상(멜빈 캘빈). https://www.nobelprize.org/prizes/chemistry/1961/summary/ (2026년 10월 16일 확인)
NobelPrize.org, 1978년 노벨 화학상(피터 미첼). https://www.nobelprize.org/prizes/chemistry/1978/summary/ (2026년 10월 16일 확인)
NobelPrize.org, 1988년 노벨 화학상 보도자료(광합성 반응 중심의 구조). https://www.nobelprize.org/prizes/chemistry/1988/press-release/ (2026년 10월 16일 확인)
Zhu, Long and Ort (2008), What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? University of Illinois record and abstract (4.6%, 6%, 30 °C, 380 ppm assumptions). https://experts.illinois.edu/en/publications/what-is-the-maximum-efficiency-with-which-photosynthesis-can-conv (HTTP 200, checked 23 October 2026)
Ort, Zhu and Melis (2011), Optimizing Antenna Size to Maximize Photosynthetic Efficiency, Plant Physiology (canopy light distribution, quantum yield, response curves). https://pmc.ncbi.nlm.nih.gov/articles/PMC3014228/ (HTTP 200, checked 23 October 2026)
영국 왕립생물학회, Practical Biology, Investigating factors affecting the rate of photosynthesis(물풀 방울 세기, 가정, 빛과 거리). https://practicalbiology.org/energy/photosynthesis/investigating-factors-affecting-the-rate-of-photosynthesis.html (2026년 10월 26일 확인)
Boardman(1977), Comparative photosynthesis of sun and shade plants, Annual Review of Plant Physiology 28. https://doi.org/10.1146/annurev.pp.28.060177.002035 (2026년 10월 26일 확인)
Liu and van Iersel (2021), Photosynthetic Physiology of Blue, Green, and Red Light, Frontiers in Plant Science (lettuce, intensity-dependent green-light response). https://pmc.ncbi.nlm.nih.gov/articles/PMC7977723/ (HTTP 200, checked 23 October 2026)
함께 보면 좋은 전시
69종 동물의 눈: 색·시력·밤눈·자외선 비교
초록 잔디 위의 빨간 공은 사람에게는 잘 보이지만 개에게는 잘 보이지 않습니다. 같은 꽃에서 꿀벌은 사람이 못 보는 무늬를 봅니다.
자이언트 세쿼이아 숲: 세상에서 가장 큰 나무 아래를 걷다
높이 83.8 m, 나이 약 2,200년인 제너럴 셔먼 나무 밑동에 서서 올려다본 뒤, 줄기를 올라 그 높이의 물이 얼마나 세게 당겨지는지 봅니다.
말 걸음걸이 평보와 속보부터 구보와 습보까지 비교
1878년 머이브리지의 사진은 달리는 말이 네 발을 모두 띄우는 순간이 있고, 그때 다리가 몸 아래로 모여 있다는 것을 보여 주었습니다. 빨리 가도 끝내 땅을 떠나지 않는 동물도 있습니다.
크리스퍼 유전자 가위 원리(CRISPR-Cas9)
가이드 RNA가 읽는 DNA는 20글자뿐인데, 대개 그것만으로 사람 유전체 염기쌍 30억 개 가운데 한 자리를 골라냅니다.
ATP 합성효소의 원리
미토콘드리아 속 ATP 합성효소의 회전자는 1초에 약 100바퀴 돌고, 한 바퀴마다 ATP를 세 개씩 내놓습니다.
공룡 크기 비교로 보는 실제 크기 선사 동물 172종
첫 공룡부터 티라노사우루스까지, 선사 시대 동물 172종을 실제 크기로 시대 순서대로 세운 600 m 공원입니다.