그림 21감각관
69종 동물의 눈: 색·시력·밤눈·자외선 비교
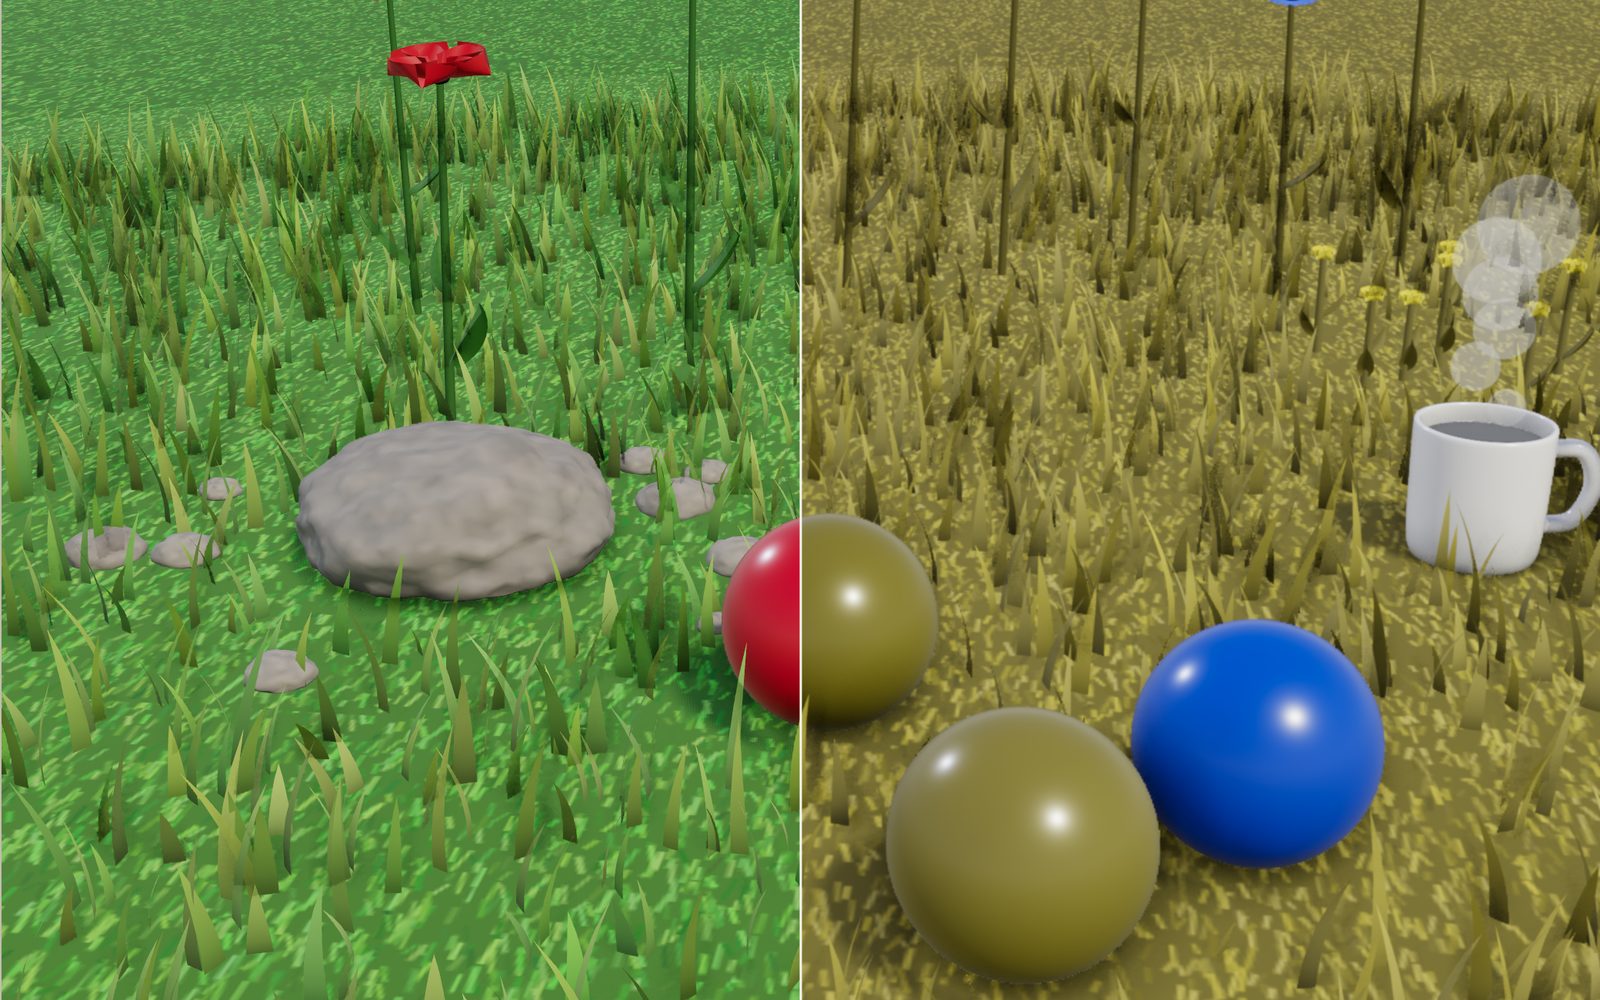
초록 잔디 위의 빨간 공은 사람에게는 잘 보이지만 개에게는 잘 보이지 않습니다. 같은 꽃에서 꿀벌은 사람이 못 보는 무늬를 봅니다.
이 기기에서는 3D를 띄울 수 없습니다. 아래 안내 단계를 글로 볼 수 있습니다.
1 / 20 같은 정원, 69가지 눈같은 정원을 동물마다 새로 그립니다. 색과 선명함, 눈이 필요로 하는 빛, 보는 속도가 모두 달라집니다. 그림 아래 막대에서 동물을, 위쪽에서 장면을 고르세요.
끌어서 돌리고, 휠이나 두 손가락으로 확대하세요.
개는 왜 빨간 공을 놓칠까요
동물의 눈은 빛을 받는 세포와 시력, 시야가 달라 같은 풍경도 서로 다르게 봅니다. 개는 파랑과 노랑을 구별하지만 빨강과 초록은 헷갈립니다. 이 전시에서는 같은 장면을 동물마다 바꿔 가며 사람의 눈과 비교합니다.
초록 잔디에 빨간 공을 던지면 사람은 공이 떨어지는 곳까지 눈으로 따라갈 수 있습니다. 그런데 많은 개는 공 옆을 그냥 지나쳤다가 코로 냄새를 맡아 찾아냅니다. 공이 안 보이게 된 것은 아닙니다. 개의 눈에서는 빨강과 초록이 같은 종류의 원뿔세포에 걸리기 때문에, 공과 잔디가 칙칙한 올리브색의 두 가지 밝기로 보입니다. 파란 공을 던지면 개는 바로 알아봅니다.
이 작은 장면에 이 전시가 다루는 내용이 거의 다 들어 있습니다. 눈은 세상을 있는 그대로 찍는 카메라가 아닙니다. 몇 가지 수용체로 빛을 나눠 받고, 정해진 선명함과 빠르기로, 정해진 각도 안에서, 어느 밝기 이상일 때만 봅니다. 동물마다 이 값들이 모두 다릅니다. 무대는 정원 하나, 밤 숲, 산호초, 하늘에서 내려다본 풀밭을 동물 69종의 눈으로 다시 그립니다. 무대에 나오는 숫자는 모두 맨 아래에 적은 논문이나 대학 자료에서 잰 값입니다. 아무도 재지 않은 값은 짐작하지 않고 「자료 없음」이라고 적었습니다.
눈은 빛을 어떻게 색으로 바꿀까요
망막에는 빛을 받는 세포가 두 가지 있습니다. 막대세포는 어두운 곳에서 일하고 색을 가리지 못합니다. 원뿔세포는 밝은 곳에서 일하고 몇 종류로 나뉘는데, 종류마다 잘 받는 파장 띠가 다릅니다. 원뿔세포 하나는 자기가 무슨 색을 보는지 모릅니다. 빛을 얼마나 받았는지만 알립니다. 뇌가 종류가 다른 원뿔세포의 신호를 서로 비교하고, 그 비교가 우리가 느끼는 색이 됩니다.
사람은 보통 원뿔세포가 세 종류입니다. 사람 망막에서 세포 하나씩 재면 봉우리가 420 nm(보라에 가까운 파랑), 534 nm(초록), 564 nm(노란빛 초록) 근처에 있습니다. 초록 원뿔세포와 긴 파장 원뿔세포는 많이 겹치지만, 빨간 물체와 초록 물체는 두 세포에 서로 다른 비율로 빛을 주기 때문에 두 색으로 보입니다. 거꾸로, 스펙트럼이 달라도 세 원뿔세포에 같은 양을 주는 두 빛은 똑같아 보입니다. 화면이 좁은 원색 세 개만으로 거의 모든 색을 흉내 낼 수 있는 까닭입니다.
수용체의 감도 곡선 모양은 봉우리 위치만 알면 색소가 달라도 거의 비슷합니다. 고바르돕스키 연구진은 2000년에 봉우리 하나로 곡선 전체를 그리는 틀을 만들었고, 짧은 파장 쪽의 작은 두 번째 봉우리까지 담았습니다. 무대 숫자판의 곡선은 이 틀로 수용체마다 하나씩 그렸고, 색 모형도 같은 곡선을 씁니다.
원뿔세포 두 종류: 개, 고양이, 말, 농장 동물
포유류 대부분은 원뿔세포가 두 종류입니다. 하나는 짧은 파장, 하나는 중간에서 긴 파장을 받습니다. 원뿔세포가 두 종류여도 파랑과 노랑은 가릴 수 있지만, 빨강, 주황, 노랑, 초록은 대부분 긴 파장 원뿔세포에 걸려서 밝기로만 달라집니다. 적록 색맹인 사람도 비슷하게 봅니다.
개는 1989년에 발표된 훈련 실험에서 원뿔 색소가 429 nm와 555 nm 근처 두 가지로 나왔습니다. 고양이도 비슷하게 450 nm와 556 nm 근처 두 가지이고, 1969년과 1979년의 망막 기록으로 쟀습니다. 말은 2001년에 잰 값이 428 nm와 539 nm입니다. 소와 염소, 양은 1998년에 함께 시험했는데, 짧은 원뿔세포가 444455 nm, 긴 원뿔세포가 552555 nm였습니다. 흰꼬리사슴은 짧은 원뿔세포가 450~460 nm, 중간 원뿔세포가 537 nm 근처입니다.
개를 고르고 「반반 비교」를 켜 보세요. 왼쪽 절반은 사람, 오른쪽 절반은 개의 화면입니다. 빨간 공과 초록 공은 사람에게 CIELAB 색 차이로 100 넘게 떨어져 있지만, 개에게는 약 5 정도만 떨어져 있습니다. 파란 공은 잔디와 여전히 100 넘게 떨어져 있습니다. 잔디밭에서 노는 개에게 장난감을 사 준다면 빨강보다 파랑이나 노랑이 낫습니다. 말과 소, 사슴도 바꿔 보세요. 긴 파장 원뿔세포의 위치가 조금씩 달라서 빨강이 올리브색으로 바뀌는 정도도 조금씩 다릅니다.
자외선: 생쥐, 꿀벌, 사랑앵무, 금붕어
많은 동물은 사람이 못 보는 빛 띠, 약 400 nm 아래의 자외선을 봅니다. 사람의 수정체는 자외선 대부분을 망막에 닿기 전에 흡수합니다. 1991년에 제이콥스 연구진은 몇몇 설치류에게 자외선에 가장 잘 반응하는 원뿔세포가 있다는 것을 찾았고, 포유류에서 처음 알려진 자외선 수용체였습니다. 생쥐에게는 360 nm에서 가장 잘 반응하는 원뿔세포와 508 nm의 초록 원뿔세포가 있고, 원뿔세포 대부분은 두 색소를 한꺼번에 갖고 있습니다. 쥐도 자외선 원뿔세포와 중간 파장 원뿔세포가 있고, 2001년에 발표된 실험에서 둘을 함께 써서 색을 구별했습니다.
꿀벌의 수용체는 344, 436, 544 nm에서 가장 잘 반응하는 자외선, 파랑, 초록이고 빨강 수용체는 없습니다. 사랑앵무와 금화조는 원뿔세포가 네 종류이고, 그중 하나가 360~380 nm의 진짜 자외선 원뿔세포입니다. 금붕어도 네 종류로, 356, 447, 537, 623 nm입니다. 중남미에 사는 꽃박쥐 팔라스긴혀박쥐는 310 nm까지 자외선에 반응하지만, 색소 하나가 두 가지 일을 합니다. 초록 색소의 작은 두 번째 흡수 띠가 자외선을 받기 때문에, 박쥐에게 자외선은 따로 된 색이 아니라 밝기로 느껴집니다.
꽃에는 자외선 무늬가 흔합니다. 루드베키아는 사람 눈에 그냥 노란 꽃이지만, 꽃잎이 가운데 쪽에서는 자외선을 흡수하고 끝에서는 되비춰서 꽃 가운데 둘레에 어두운 고리가 생깁니다. 2014년 야외 연구에서 야생 벌은 자외선 고리를 넓힌 꽃을 고리를 좁힌 꽃보다 더 자주 찾았습니다. 정원에서 꿀벌이나 생쥐, 사랑앵무를 고르고 노란 꽃에 가까이 가 보세요. 화면은 자외선을 낼 수 없어서, 무대는 물체 표면마다 자외선 값을 따로 담아 두고 다른 색으로 보여 줍니다. 「자외선만」을 켜면 그 통로만 봅니다.
수용체가 많다고 색을 잘 보는 것은 아닙니다
호랑나비의 한 종류인 일본 노랑호랑나비는 수용체가 여섯 무리, 여덟 갈래입니다. 2008년에 발표된 행동 실험에서 한 색을 배운 나비는 스펙트럼의 세 곳, 430, 480, 560 nm 근처에서 1 nm만 차이 나는 빛도 구별했습니다. 이 무늬는 수용체 네 종류가 함께 일한다는 표시라서, 호랑나비는 수용체 종류가 더 많아도 네 통로로 색을 봅니다.
갯가재는 가장 극단적인 예입니다. 어떤 종은 300720 nm에 걸쳐 수용체가 12종류나 있습니다. 그러면 살아 있는 어떤 동물보다 색을 잘 가릴 것 같지만, 토엔 연구진이 2014년에 시험해 보니 반대였습니다. 갯가재는 1225 nm 떨어진 빛을 헷갈렸고, 나비보다도, 사람보다도 거칠게 구별했습니다. 연구진은 갯가재가 수용체끼리 잘게 비교하지 않고, 눈을 물체 위로 훑으며 어느 좁은 수용체가 반응하는지로 색을 알아본다고 봅니다. 무대는 이 생각을 간단한 규칙으로 흉내 냈습니다. 12개 수용체 가운데 가장 세게 반응한 것이 색을 정하니, 산호초가 평평한 색 띠로 나뉩니다. 갯가재는 원편광도 볼 수 있다는 것을 치우 연구진이 2008년에 보였습니다.
원뿔세포 하나: 상어, 문어, 갑오징어
하트 연구진은 2011년에 상어 17종의 시각 색소를 쟀습니다. 모두 원뿔세포가 한 종류뿐이었고, 봉우리는 532~561 nm였습니다. 원뿔세포가 하나면 밝기는 알아도 색은 모르므로, 상어는 색맹일 가능성이 큽니다. 고래와 돌고래, 물범도 원뿔세포가 한 종류인데, 상어와 따로 같은 설계에 이르렀습니다.
참문어의 시각 색소는 475 nm 하나뿐이고, 행동 실험 대부분에서 색맹으로 나옵니다. 갑오징어도 비슷하게 500 nm 근처의 수용체 한 종류만 있는데, 피부색을 바꿔 배경에 맞춥니다. 마셜과 메신저는 1996년에 이것을 「색맹의 위장술」이라고 불렀습니다. 두족류는 그 대신 편광을 봅니다. 수용체가 서로 직각으로 놓여 있고, 각각 한 방향으로 진동하는 빛을 가장 잘 흡수합니다. 은빛 물고기에서 되비친 빛이 강하게 편광되는 물속에서는 쓸모 있는 신호입니다. 산호초에서 문어를 고르고 「편광」을 켜 보세요. 강하게 편광된 빛은 노랑, 편광되지 않은 빛은 파랑으로 보입니다.
얼마나 선명할까요: 1도당 주기
선명함은 줄무늬로 잽니다. 동물에게 검고 흰 줄 쌍을 보여 주고 점점 가늘게 만들다가, 그냥 회색과 구별하지 못하게 되는 굵기를 찾습니다. 아직 보이는 가장 가는 무늬를 시야 1도에 들어가는 줄 쌍(주기)의 수로 센 것이 시력입니다. 20/20 시력인 사람은 1도에 약 30주기를 가려냅니다. 1965년 연구에서는 간섭무늬로 눈의 광학을 건너뛰자 사람이 1도에 약 60주기 줄무늬까지 가려냈습니다. 무대는 60을 사람의 한계로 쓰고, 어떤 값이든 20/(600 ÷ 1도당 주기)로 스넬렌 분수로 바꿉니다.
개는 뇌와 망막의 반응으로 잰 시력이 1도에 11.612.6주기로, 사람이 가장 잘 볼 때의 5분의 1쯤입니다. 말은 행동 실험에서 가장 좋을 때 23.3주기였습니다. 고양이는 3.59, 생쥐는 약 0.5, 쥐는 약 1입니다. 밝은 빛에서 사람 두 명과 함께 시험한 올빼미는 사람보다 덜 자세히 보았고, 비둘기와 비슷했습니다. 반대쪽 끝에는 쐐기꼬리수리가 있습니다. 1985년 레이먼드의 실험에서 1도에 132~143주기로 사람의 두 배가 넘었고, 동공이 통과시킬 수 있는 157에 가까웠습니다.
곤충의 눈은 작은 낱눈이 모여 있고, 낱눈마다 바라보는 방향이 다릅니다. 이웃한 낱눈 사이의 각도가 얼마나 자세히 보느냐를 정합니다. 원시 곤충의 수십 도부터 잠자리의 0.24도까지 있고, 잠자리 값이 알려진 것 가운데 가장 촘촘합니다. 꿀벌 눈 앞쪽은 1도에 약 0.54주기를 가려냅니다. 깡충거미 포르티아의 큰 눈은 작은 망원 카메라라서 수용체 간격이 각도로 2.4분, 1도에 약 12.5주기이고, 같은 크기 곤충 어느 것보다 훨씬 낫습니다. 껍데기 가장자리에 작은 눈이 200개까지 있는 가리비는 약 2도를 가려냅니다.
시력을 화면에 보여 주려고, 무대는 시야 1도가 화면 몇 픽셀인지에 따라 그림을 흐리게 합니다. 줄무늬 한 주기를 그리려면 픽셀이 두 개 필요하므로, 1도에 p픽셀인 화면은 1도에 많아야 p ÷ 2주기까지만 보여 줄 수 있습니다. 정원의 1도는 가로 1440픽셀 창에서 약 1620픽셀, 세로로 든 휴대전화에서 약 810픽셀이라 1도에 4~10주기까지만 담깁니다. 개의 눈보다도 거친 화면이어서, 기본 화면에서 개의 흐림은 3분의 1픽셀쯤으로 계산되고 개 화면이 사람 화면만큼 또렷해 보입니다. 그림이 틀린 것이 아니라 화면이 두 눈보다 거친 것입니다.
「멀리 보기」는 망원경처럼 이 문제를 풉니다. 카메라 화각을 2배, 4배, 8배로 좁혀서 같은 1도를 그만큼 많은 픽셀에 펼치고, 흐림을 그 배율에서의 실제 크기로 그립니다. 노트북에서 ×4로 올리면 1도가 약 7080픽셀이 됩니다. 사람 절반은 또렷하고, 개 절반은 약 2.53픽셀 흐려지고, 꿀벌은 낱눈 몇 개만 봅니다. 휴대전화에서는 ×8을 쓰세요. 1도가 약 70픽셀이 됩니다. 판독창에는 지금 화면의 1도당 픽셀과 이 배율에서의 흐림이 나옵니다. 독수리처럼 사람보다 선명한 눈은 아예 보여 줄 수 없습니다. 그림은 결국 보는 사람의 눈을 거쳐야 하므로, 무대는 흐리게 하지 않고 그렇다고 적어 둡니다.
하늘 장면은 거리로 같은 일을 합니다. 망원경처럼 높이 4 m만 담는 좁은 화면으로, 20 m부터 1.5 km까지 고른 거리에서 풀밭을 봅니다. 약 480 m에서 길이 40 cm인 토끼는 사람에게 약 3주기, 독수리에게 약 7주기라서, 사람에게는 얼룩이고 독수리에게는 여전히 토끼입니다. 「반반 비교」에서 양쪽에 하나씩 보이도록 토끼 두 마리를 2.4 m 떨어뜨려 놓았습니다.
얼마나 빠를까요: 깜빡임 융합
빛을 켰다 껐다 하며 빠르기를 올리면, 어느 주파수에서 깜빡임이 합쳐져 고른 빛이 됩니다. 이 주파수를 깜빡임 융합 주파수라고 하고, 눈이 변화를 얼마나 빨리 따라가는지를 보여 줍니다. 잉거 연구진은 2014년에 81종의 측정값을 모았습니다. 사람은 약 60 Hz, 고양이 55, 개 80, 비둘기는 연구에 따라 77143, 닭은 72105, 검정파리와 꿀벌, 잠자리는 200300입니다. 지금까지 잰 상어는 1837 Hz입니다.
정원의 등불과 숲의 가로등은 20~320 Hz 가운데 고른 빠르기로 깜빡입니다. 화면은 1초에 100번 깜빡이는 빛을 보여 줄 수 없으니, 고른 동물이 그 깜빡임을 볼 수 있으면 등불이 천천히 맥박치게 했습니다. 등불 빠르기가 그 동물의 융합 주파수보다 낮을수록 맥박이 깊어집니다. 50 Hz 전기로 켠 등처럼 100 Hz로 두면, 사람에게는 고른 빛이고 꿀벌에게는 깜빡입니다. 많은 화면의 주사율인 60 Hz로 두면 고양이에게는 고르고 개에게는 깜빡입니다.
나란히 놓은 숫자
조작 아래의 도감에 동물 69종을 출처와 함께 모두 실었습니다. 측정값이 가장 많은 동물만 무대와 같은 단위로 추리면 다음과 같습니다. 줄표(-)는 이 출처들에서 값을 찾지 못했다는 뜻입니다.
| 동물 | 수용체 봉우리(nm) | 시력(cpd) | 시야 | 깜빡임 융합(Hz) |
|---|---|---|---|---|
| 사람 | 420, 534, 564 | 60 | 180° | 60 |
| 개 | 429, 555 | 11.6~12.6 | 240° | 80 |
| 고양이 | 450, 556 | 3.5~9 | 200° | 55 |
| 말 | 428, 539 | 23.3 | 350° | - |
| 생쥐 | 360, 508 | 0.5 | - | - |
| 쥐 | 자외선, 중간 파장 | 1 | - | 30 |
| 꿀벌 | 344, 436, 544 | 0.54 | - | 200~300 |
| 비둘기 | 409, 453, 507, 567 | - | - | 77~143 |
| 금붕어 | 356, 447, 537, 623 | - | - | - |
| 쐐기꼬리수리 | 보라에 반응하는 짧은 원뿔세포 | 132~143 | - | - |
| 올빼미 | - | - | 201° | - |
| 잠자리 | 옵신 유전자 15~33개 | 2.1 | - | 300 |
| 깡충거미 | 자외선, 초록 | 12.5 | - | - |
| 상어 | 원뿔세포 하나, 532~561 | - | - | 18~37 |
한 줄씩 가로로 읽으면 맞바꾼 것이 보입니다. 독수리는 눈이 가장 선명하지만 밤에 특별히 잘 본다는 기록은 없습니다. 고양이는 어두운 곳에서 보는 대신 가는 무늬가 흐려집니다. 꿀벌은 자외선과 빠른 깜빡임을 보지만 1도에 반 주기 정도밖에 가려내지 못합니다.
어두운 곳에서 보기
빛이 약해지면 원뿔세포가 쉬고 막대세포가 일을 넘겨받습니다. 막대세포는 더 민감하지만 한 종류뿐이라 색이 사라집니다. 사람은 약 0.02 cd/m², 해 질 녘 무렵의 밝기에서 색을 잃습니다. 고양이는 사람보다 어두운 곳에서 봅니다. 같은 무늬로 시험하자 0.74 로그 단위, 약 5.5배 더 민감했고, 대부분은 큰 동공과 빛을 모으는 광학 덕분이었습니다. 원숭이올빼미는 관 모양 눈의 f수가 1.13입니다. 어두운 곳에서 사람 눈은 f/2.4쯤이므로 올빼미 망막의 상이 약 4.5배 밝습니다. 무대는 이 비율을 원숭이올빼미의 밤 감도로 쓰고, 모형 값이라고 적었습니다.
사람이 색을 잃는 곳에서도 색을 지키는 동물이 둘 있습니다. 헬멧도마뱀붙이는 막대세포가 하나도 없고 큰 원뿔세포 세 종류만 있는데, 2004년에 희미한 달빛인 0.002 cd/m²에서 파랑과 회색을 구별했습니다. 코끼리박각시는 2002년에 발표된 실험에서 희미한 별빛인 0.0001 cd/m²에서 색 있는 표적을 골랐습니다. 같은 밝기에서 사람은 색을 전혀 보지 못합니다. 밤 숲을 「희미한 별빛」으로 두고 두 동물을 골라 보세요. 이 둘은 색을 잃는 밝기를 사람과 비교한 비율(10배와 200배)만큼 화면을 밝게 했고, 이것도 모형이라고 적었습니다.
밤에 움직이는 많은 동물은 망막 뒤에 거울 같은 반사판(휘판)을 갖고 있습니다. 수용체를 그냥 지나친 빛이 다시 수용체로 돌아가 한 번 더 붙잡힐 기회를 얻습니다. 개, 고양이, 말, 소를 비롯한 많은 포유류와 상어에게 있고, 손전등을 비추면 눈이 빛나는 까닭입니다. 숲에서 손전등을 켜고 사슴을 보세요.
얼마나 넓을까요: 시야
얼굴 앞에 눈이 있으면 같은 장면을 두 번 보아서 거리를 재기 좋고, 머리 옆에 눈이 있으면 한꺼번에 더 넓게 봅니다. 사람은 양옆으로 약 90도씩, 합쳐서 약 180도를 보고, 두 눈이 함께 보는 곳은 약 120도입니다. 개의 시야는 약 240도이고 두 눈이 겹치는 곳은 30~60도, 고양이는 약 200도입니다. 말은 약 350도를 덮어서 바로 뒤와 이마 바로 앞만 보지 못합니다. 올빼미는 눈 하나가 124도만 덮어 척추동물 가운데 잰 값이 가장 좁고, 두 눈을 합쳐 201도이며 겹치는 곳은 48도입니다. 카멜레온은 먹이를 찾을 때 두 눈을 따로 움직이다가, 먹이를 찾으면 두 눈을 함께 맞춥니다.
파노라마는 카메라 둘레 한 바퀴를 모두 보여 주고, 바라보는 방향이 가운데에 옵니다. 동물의 시야가 띠의 가운데를 덮고, 그 밖은 빗금으로 칠했습니다. 시야 값이 없는 동물은 360도를 모두 보여 주고 그렇다고 적었습니다.
동공의 모양
동공에는 둥근 것, 틈 모양, 막대 모양, W자, 바늘구멍 모양이 있습니다. 뱅크스 연구진은 2015년에 육상 동물 214종을 비교해 규칙을 찾았습니다. 염소, 양, 말, 사슴처럼 풀을 뜯는 먹잇감 동물은 동공이 가로로 길고, 풀을 뜯으려 고개를 숙이면 눈이 돌아가 동공이 땅과 나란하게 남습니다. 덕분에 지평선을 따라 넓고 또렷하게 봅니다. 고양이처럼 땅 가까이에서 숨어 기다리는 작은 포식자는 세로 틈 동공이 많고, 흐림으로 거리를 재는 데 도움이 됩니다. 갑오징어의 W자 동공은 위와 아래에서 오는 빛을 고르게 합니다. 헬멧도마뱀붙이의 동공은 닫히면 바늘구멍이 한 줄로 늘어섭니다.
초점이 맞지 않은 물체가 어떤 모양으로 흐려지는지는 동공이 정합니다. 「동공 흐림」을 켜고 염소를 골라 보세요. 카메라가 도는 중심점보다 앞이나 뒤에 있는 물체는 옆으로 번지고, 세로 윤곽은 비교적 또렷합니다. 고양이의 세로 틈은 반대입니다. 흐림의 세기는 모양이 잘 보이도록 고른 모형 값이고, 모양은 그 동물의 것입니다.
물속에서
물은 빛을 흡수하고, 빨강이 가장 먼저 사라집니다. 포프와 프라이가 1997년에 잰 순수한 물은 650 nm에서 1 m에 0.34를 흡수하지만 450 nm에서는 1 m에 0.0092를 흡수해서 약 37배 차이가 납니다. 산호초 장면에서 빛은 수면에서 산호초까지 내려왔다가 다시 옆으로 눈까지 오고, 그 길을 따라 색마다 약해집니다. 15 m에서는 빨간빛이 약 2퍼센트만 남아서 사람 눈에도 빨간 물고기가 회갈색이 되고, 파란 물고기와 노란 물고기는 더 오래 색을 지킵니다. 실제 바닷물은 빛을 흩뜨리고 플랑크톤도 섞여 있지만, 무대는 순수한 물과 간단한 뿌연 막만 씁니다.
열: 살무사
살무사와 비단뱀, 보아는 얼굴에 있는 구멍으로 따뜻한 몸이 내는 적외선을 느낍니다. 불럭과 카울스는 1952년에 이 구멍의 신경에서 기록해, 가까이 있는 따뜻한 물체에 반응한다는 것을 보였습니다. 2010년에 그라체바 연구진은 그 뒤에 있는 분자를 찾았습니다. 구멍에 이어진 신경 섬유에는 따뜻해지면 열리는 TRPA1 통로가 있습니다. 적외선이 구멍의 막을 데우면 이 통로가 그 변화를 알립니다. 세 번째 눈이 아니라 열을 느끼는 감각입니다. 무대는 어둡게 낮춘 화면 위에 따뜻한 곳을 다른 색으로 칠합니다. 차는 밝게, 햇볕에 데워진 돌은 희미하게 빛나고, 트인 하늘은 차갑습니다.
눈 구조 실험실
다섯 번째 장면은 눈 자체를 탁자 위에 올려놓습니다. 반으로 자른 사람 눈에서는 각막과 수정체가 빛을 꺾어 망막의 한 점에 모으고, 상이 거꾸로 맺히며, 원뿔세포가 가장 빽빽한 중심오목이 보입니다. 겹눈은 육각형 낱눈이 덮은 둥근 지붕이고, 일부를 잘라 아래의 긴 낱눈 기둥을 보여 줍니다. 낱눈마다 렌즈와 수용체가 따로 있습니다. 세 번째 눈은 망막 뒤에 반사판이 있고, 들어간 빛이 되돌아 나오는 길을 그렸습니다. 홍채 다섯 개가 동공 모양을 보여 줍니다. 마지막 모형은 렌즈 대신 오목거울로 빛을 모으는 가리비 눈입니다. 파머 연구진은 2017년에 이 거울이 네모난 구아닌 결정을 타일처럼 깐 것이고, 빛을 망막 두 겹에 보내는데 하나는 시야 가운데를, 하나는 가장자리를 맡는다는 것을 보였습니다. 실험실에서 동물을 고르면 카메라가 그 동물의 눈 모형으로 갑니다.
69종의 동물과 같은 눈 묶음
이번 판에서는 등장 동물을 31종에서 69종, 10개 무리로 두 배 넘게 늘렸습니다. 새로 넣은 동물은 사람들이 자주 묻는 동물입니다. 농장 동물과 반려동물, 동물원 동물, 정원과 물가의 새, 파충류와 개구리, 무는 곤충과 꽃가루를 나르는 곤충, 그리고 눈이 유난히 특이한 바다 동물 몇 종입니다. 눈에 관해 무언가를 잰 논문이 있을 때만 넣었고, 무대의 숫자는 그 논문과 이어집니다.
직접 잰 자료는 없지만 이미 잰 동물과 눈 체계가 분명히 같은 동물도 있습니다. 도감에서는 이런 동물에 「같은 눈 묶음」이라고 표시하고, 묶은 근거도 출처로 답니다. 침팬지는 사람과 묶었습니다. 영장류 색소 연구에서 구대륙원숭이와 유인원, 사람이 모두 최대 감도가 거의 같은 원뿔세포 세 종류를 가진다고 했기 때문입니다. 물범은 큰돌고래와 묶었습니다. 항체 염색으로 살핀 물범·바다사자 5종과 이빨고래 7종 모두 파랑 원뿔세포가 없었고, 육지의 친척들은 그대로였습니다. 비단뱀과 보아뱀은 살무사와 묶었습니다. 세 무리의 구멍 기관 신경에서 같은 열 감지 통로가 나왔기 때문입니다. 기린은 발굽 있는 포유류가 대개 원뿔세포 두 종류를 가지므로 소의 곡선으로 그렸지만, 25~27 cpd라는 시력은 기린 망막을 세어서 얻은 기린 자신의 값입니다. 묶인 동물은 대표 동물의 곡선을 그대로 쓰고, 무대도 그렇다고 알려 줍니다.
품종 질문도 많습니다. 개의 원뿔세포 두 종류는 품종을 가리지 않은 개에게서 잰 값이고, 여기 출처에는 품종끼리 색 시각을 비교한 연구가 없습니다. 품종에 따라 다른 것은 촘촘한 세포가 놓인 자리입니다. McGreevy 연구진은 코가 긴 개는 늑대처럼 신경절 세포가 가로 띠를 이루고, 퍼그는 가운데 점 하나만 있다는 것을 찾았습니다. 그레이하운드와 퍼그는 같은 색을 보면서도 세상을 훑는 방식은 다를 것입니다. 고양이 품종을 비교한 연구는 여기 출처에 아예 없습니다.
코끼리는 깔끔한 예입니다. 아프리카코끼리와 아시아코끼리의 유전자로 만든 색소는 419 nm와 552 nm에서 가장 잘 반응하는데, 적록 색각 이상의 한 종류인 녹색맹 사람과 같은 짝입니다. 돼지(439, 556 nm), 기니피그(429, 529 nm), 토끼(425, 523 nm)도 두 색 시각이고, 최대 감도만 조금씩 다릅니다. 구대륙원숭이는 430, 535, 565 nm 근처로, 사람의 원뿔세포와 거의 같은 자리입니다.
새는 원뿔세포 네 종류와 색이 든 기름방울을 가집니다. 흰점찌르레기의 단일 원뿔세포는 563, 504, 449, 약 362 nm이고 마지막이 진짜 자외선 원뿔세포입니다. 청둥오리는 약 420, 452, 502, 570 nm입니다. 공작의 색소 424, 458, 505, 567 nm는 기름방울을 거치면 최대 감도가 432, 477, 537, 605 nm가 됩니다. 붉은귀거북은 색소 네 가지를 기름방울과 짝지어 원뿔세포 일곱 종류를 만듭니다. 펭귄은 반대로 원뿔세포 세 종류(403, 450, 543 nm)를 가졌고, 이것이 청록색 물에 알맞습니다.
동물 눈높이에서 보기
새로 생긴 「눈높이 보기」 스위치는 카메라를 동물의 눈이 있을 자리로 옮기고, 거기서 둘러보게 해 줍니다. 생쥐는 풀잎 끝보다 낮은 3 cm에서 내다보기 때문에 잔디밭이 풀잎 숲이 되고, 접시 위 사과는 그쪽으로 돌아볼 때까지 가려져 있습니다. 개는 50 cm, 사람은 1.6 m에서 보고, 기린은 5 m에서 정원 전체를 내려다봅니다. 꽃가루를 나르는 동물은 땅 가까이 핀 노란 꽃 옆에서 시작하고, 꿀벌은 12 cm입니다.
이 높이들은 논문에서 잰 값이 아니라, 다 자란 동물이 서 있거나 앉아 있을 때의 흔한 높이로 정한 모형 값입니다. 물에 사는 동물은 이 무대에서 눈높이가 없습니다. 눈높이 보기는 정원과 숲에서만 되기 때문입니다. 높이는 생각보다 많은 것을 바꿉니다. 3 cm에서는 땅 가까이 있는 것이 모두 크고 가깝고, 하늘이 화면 위쪽 절반을 채우며, 1 m 떨어진 물건도 풀잎 하나 뒤에 숨습니다. 5 m에서는 같은 정원이 작은 땅 한 조각이고 꽃은 점이 되며, 기린 망막의 25~27 cpd가 색보다 더 중요해집니다.
낱눈 세기
겹눈은 조금씩 다른 방향을 향한 수많은 낱눈으로 세상을 나눠 받습니다. 이웃한 낱눈 사이의 각도가 눈이 가려낼 수 있는 무늬의 세밀함을 정하고, 무대는 그 간격의 벌집 무늬로 화면을 그립니다. 육각형 하나가 자기 몫의 영역을 평균한 값입니다. Seidl과 Kaiser가 1981년에 센 바로는 일벌의 눈 하나에 평균 5,432개의 낱눈이 있고, 두 눈을 합치면 거의 공 모양 전체를 봅니다. 5,432개의 육각형을 공의 절반쯤에 고르게 펼치면 평균 간격이 약 2°가 됩니다. 벌이 꽃을 보는 앞쪽에서는 낱눈이 더 촘촘해서 약 0.93° 간격입니다. 판독표는 이 값과, 지금 화면 가로에 낱눈이 몇 개 들어가는지를 보여 줍니다.
모기는 곤충 눈이 얼마나 거칠 수 있는지 보여 줍니다. 이집트숲모기 암컷의 낱눈 간격은 6.2°라서 가려내는 가장 작은 각도가 약 12.3°입니다. 팔을 뻗어 든 손바닥 너비쯤입니다. 뒤에 나온 꿀벌 광수용체 연구에서는 눈 앞쪽 수용체 하나가 0.6° × 0.6°짜리 작은 물체에도 반응했습니다. 낱눈 간격으로 짐작한 것보다 세밀하므로, 벌집 무늬는 벌이 알아챌 수 있는 것의 아래 한계일 뿐 벌이 알아채는 모든 것을 그린 그림은 아닙니다.
모든 겹눈이 낱눈마다 따로 보지는 않습니다. 일부 바다 새우와 바닷가재는 안쪽이 거울로 된 네모난 관이 여러 낱눈의 빛을 한 점으로 반사해 밝은 상 하나를 만듭니다. Land가 1976년에 이런 반사 겹침눈을 설명했습니다. 무대는 이 차이를 그리지 못해서 바닷가재에도 모형 간격의 같은 벌집 무늬를 씁니다.
어둠 속의 자글자글한 점
빛은 광자로 들어오고, 어두우면 수용체 하나가 상 하나를 만드는 동안 받는 광자가 몇 개뿐입니다. 이 개수는 순간마다 제 제곱근만큼 제멋대로 흔들립니다. 광자 100개를 받는 수용체는 10개만큼 흔들려서 신호의 10%가 흔들리고, 4개를 받는 수용체는 2개만큼 흔들려서 50%가 흔들립니다. 이 흔들림이 광자 잡음이고, 달밤 장면이 자글자글해 보이는 까닭입니다. 밤 화면은 이 규칙을 따르는 점을 더합니다. 점은 그 자리 밝기의 제곱근에 따라 커지고, 빛이 밝거나 동물의 감도가 높을수록 작아집니다. 사람보다 감도가 5.5배인 고양이는 같은 빛에서 점이 덜합니다. 점의 크기 눈금은 모형이지만 제곱근 규칙은 모형이 아닙니다.
차가운 동물에게는 이점이 하나 더 있습니다. 막대세포는 빛이 없어도 가끔 열 때문에 저절로 반응하고, 이 어둠 잡음이 눈이 알아챌 수 있는 가장 약한 빛의 바닥을 정합니다. Aho 연구진은 여러 종을 온도별로 비교해서, 차가울수록 망막 잡음이 적고 절대 감도가 좋다는 것을 찾았습니다. 두꺼비와 개구리에게 도움이 되는 성질입니다. 개구리는 한 걸음 더 나아갑니다. 막대세포가 두 종류인데, 2017년 연구에서 빛 쪽으로 뛰는 개구리는 볼 수 있는 가장 약한 빛에서도 파랑과 초록을 구별했습니다.
상을 거의 만들지 않는 눈
이제는 선명한 그림을 보는 것보다 더 낯선 일을 하는 눈도 나옵니다. 앵무조개는 수정체 없이 바다 쪽으로 열린 바늘구멍 눈을 가지며, 가려내는 가장 작은 각도는 5.511.25°입니다. 군부는 껍데기 판에 박힌 수백 개의 작은 눈에 광물인 아라고나이트로 된 수정체가 있어서 공기와 물속에서 약 912°를 가려냅니다. 상자해파리의 수정체는 거의 완벽한 상을 만들지만 망막이 초점에서 벗어나 있어서 수용체 하나가 넓고 흐린 영역을 봅니다. 불가사리는 팔 끝마다 수정체 없는 겹눈이 있는데, 느리고 색을 못 보지만 산호초로 돌아가는 길을 찾기에는 충분합니다. 반대쪽 끝에는 지름 약 27 cm, 동공 9 cm인 대왕오징어의 눈알이 있고, 동물 가운데 가장 큰 눈입니다. 그물던지기거미의 뒤쪽 눈은 f값이 0.58이라서 수용체 하나에 깡충거미의 약 2,000배 빛을 모읍니다.
다른 눈을 재 온 짧은 역사
20세기 대부분 동안, 동물이 무엇을 보는지는 행동으로 알아냈습니다. 보상을 주며 한 카드를 고르도록 가르친 다음, 어떤 카드를 헷갈리는지 봅니다. 느린 실험이지만, 동물이 실제로 쓸 수 있는 것이 무엇이냐는 가장 중요한 물음에 답합니다. 여기 나오는 숫자 상당수도 이런 실험에서 나왔습니다. 1992년의 말 시력, 2002년의 별빛 속 박각시 색, 2014년의 갯가재 실험이 그렇습니다.
생리학이 두 번째 길을 열었습니다. 1952년에 불럭과 카울스는 살무사 얼굴 구멍의 신경에 전극을 대고, 따뜻한 물체가 다가오면 신경이 신호를 내는 것을 보았습니다. 미세분광측정법은 수용체 하나에 아주 가는 빛줄기를 통과시켜 색소의 흡수를 읽어 냅니다. 1980년의 사람 원뿔세포, 1997년의 새 원뿔세포, 2011년의 상어 색소가 이렇게 측정되었습니다. 눈 표면에서 기록하는 망막전위도는 해부하지 않고도 말과 소, 사슴의 원뿔 곡선을 알려 주었습니다.
가장 새로운 길은 유전학입니다. 동물이 가진 옵신 유전자를 세면 만들 수 있는 색소가 몇 가지인지 압니다. 잠자리는 15~33개였습니다. 다만 유전자 수가 그대로 색 감각이 되지는 않습니다. 갯가재 이야기가 보여 주듯, 마지막 답은 여전히 행동이 줍니다. 수용체가 많다고 해서 저절로 색을 잘게 가리게 되지는 않습니다.
직접 해 보기
조작 아래 칸에는 연구자처럼 무대를 써 보는 과제 열두 개가 있습니다. 과제의 「시작」을 누르면 장면이 준비되고, 상자에 표시가 생길 때까지 동물이나 빛, 거리를 바꾸면 됩니다. 하나는 자외선 눈에만 보이는 꽃 무늬를 찾는 과제입니다. 다른 하나는 빨간 공과 초록 공을 헷갈리는 동물을 찾습니다. 별빛에서도 색을 보는 동물, 뒤를 볼 수 있는 동물, 60 Hz 화면이 깜빡여 보이는 동물, 독수리만 토끼를 알아보는 거리, 빨간 물고기가 회색이 되는 깊이, 가로 동공이 흐리게 하는 방향, 개의 화면이 사람 옆에서 흐려지는 배율을 찾는 과제도 있습니다. 새로 넣은 과제 셋은 눈높이 보기를 씁니다. 벌의 높이에서 은양지꽃의 꿀길 찾기, 생쥐가 되어 3 cm 높이에서 사과 찾기, 시야가 뒤까지 닿는 동물 셋 찾기입니다. 과제 아래의 사례 목록에는 연구 102건이 있고, 「보기」를 누르면 무대가 그 사례에 맞춰집니다.
화면은 어떻게 계산할까요
모든 계산은 그래픽 칩에서 두 번에 나뉘어 일어납니다. 먼저 장면을 선형 색으로 화면 밖 그림에 그리고, 더 작은 두 번째 그림에 표면마다 자외선 반사율, 온도, 빛을 얼마나 편광시키는지, 얼마나 멀리 있는지를 적습니다. 그다음 화면 전체를 덮는 셰이더 하나가 두 그림을 동물의 화면으로 바꿉니다.
색은 마샤두 연구진(2009)의 방법을 다른 동물로 넓혀 계산합니다. 화면은 좁은 원색 세 개로 모든 색을 만드니, 픽셀마다 스펙트럼을 압니다. 이 스펙트럼에 동물의 수용체 곡선을 곱하면 수용체마다 받은 빛이 나오고, 평균 자외선을 가진 흰색이 모든 수용체에서 1이 되도록 맞춥니다. 그다음 사람에게 비슷한 결과를 주는 화면 색을 찾습니다. 수용체가 두 종류면 정확한 답이 있습니다. 흰색과 파랑 사이의 평면에서 동물의 두 수용체에 같은 양을 주는 색을 고르므로, 동물이 헷갈리는 두 색은 화면에서도 똑같이 나옵니다. 자외선을 포함한 수용체 세 종류는 가장 짧은 것을 파랑, 가운데를 초록, 가장 긴 것을 빨강으로 보여 주는데, 꿀벌에게 흔히 쓰는 거짓 색입니다. 수용체 네 종류짜리 눈은 세 색 화면에 그대로 보여 줄 수 없어서, 사람의 색은 그대로 두고 자외선이 있는 눈이면 보랏빛을 더합니다. 수용체가 하나면 회색 그림이 됩니다.
선명함은 화면의 1도당 픽셀 수를 동물의 1도당 주기의 두 배로 나눈 반지름만큼 흐리게 합니다. 겹눈은 낱눈 간격으로 벌집 무늬를 그리고, 칸마다 그 부분을 평균합니다. 어두운 곳에서는 밝기가 동물의 감도에 따라 로그 눈금으로 줄고, 동물이 색을 잃는 밝기 아래에서 색이 바래며, 광자 잡음이 커집니다(「어둠 속의 자글자글한 점」 참고). 물속에서는 색마다 길을 따라 남는 비율을 곱합니다. 파노라마에서는 장면을 큐브 맵에 그린 다음 둘레로 펼칩니다.
정원을 그리는 방법
이번 판에서는 장면을 다시 만들어, 평평한 삼각형을 잘라 붙인 모양 대신 자연스러운 모양이 되게 했습니다. 풀잎 하나하나는 좁고 휜 띠이고, 수천 개를 한 번에 그립니다. 그래픽 칩에서 도는 작은 프로그램이 바람에 맞춰 풀잎을 휘게 해서, 처리 장치가 풀잎을 하나씩 움직이지 않아도 됩니다. 꽃잎과 잎은 납작하게 오린 판이 아니라 휜 면입니다. 은양지꽃에는 자외선 칸에만 들어가는 무늬를 입혀서, 어두운 가운데가 벌처럼 자외선을 보는 눈에서만 나타나고 사람 화면에는 나오지 않습니다. 돌은 프랙털 잡음으로 구부린 구이고 겉면을 매끈하게 다듬었습니다. 사과와 공, 접시, 찻잔은 잘게 나눈 모양에 유약처럼 맑은 겉칠을 더했습니다. 장면마다 자기 하늘에서 미리 걸러 둔 주변광으로 빛을 받고, 그림자 가장자리는 부드럽습니다. 빠른 기기에서는 처리를 한 번 더 해서 물건이 땅에 닿는 틈을 어둡게 합니다(주변광 차폐). 느린 기기는 이 추가 처리를 저절로 빼고 같은 화면을 보여 줍니다.
이것은 눈을 비교하기 위한 그림이지 사진이 아닙니다. 풀에는 씨앗이 없고 사슴에는 털이 없으며, 실제 꽃의 색은 꽃밭 세 곳이 보여 줄 수 있는 것보다 훨씬 다양합니다. 자외선 무늬는 인용한 논문의 설명을 따라 그렸고, 이 꽃들에서 직접 잰 값이 아닙니다.
모형이 빠뜨린 것
화면은 사람 원뿔세포에 맞춘 세 색만 내므로, 어느 화면도 동물이 느끼는 것을 보여 주지는 못합니다. 각 화면은 그 동물의 수용체가 받을 빛을 사람이 볼 수 있는 색으로 옮긴 것입니다. 「모형」이라고 적은 숫자는 잰 값이 아니라 고른 값입니다. 이 출처들에 색소 값이 없는 동물의 수용체 봉우리, 도마뱀붙이와 박각시의 밝기 감도, 동공 흐림의 세기, 여러 곤충의 낱눈 크기, 눈높이 보기의 높이가 그렇습니다. 막대세포는 500 nm 근처에 따로 감도를 가져서 밤 장면을 파랑과 초록 쪽으로 기울이지만, 무대는 색을 바래게 하기만 합니다. 눈만큼 뇌도 중요해서, 원뿔세포가 같아도 그 신호를 다르게 읽도록 배울 수 있습니다. 개체와 품종에 따라서도 다르고, 여기 숫자는 연구 하나에서 나온 대표값입니다.
내 사진과 카메라
「내 사진」과 「카메라」는 누를 때만 기기의 사진을 불러오거나 카메라를 엽니다. 그림은 이 페이지에서 그래픽 칩으로만 처리하고, 어디에도 올리거나 저장하지 않습니다. 사진에는 카메라 센서가 받는 세 색만 담기므로 자외선, 열, 편광 정보가 없습니다. 그 통로는 비어 있고, 무대가 그렇다고 알려 줍니다.
자주 묻는 질문
개는 색맹인가요?
완전히 그렇지는 않습니다. 개는 원뿔세포가 429 nm와 555 nm 근처 두 종류라서, 파랑과 노랑은 잘 보지만 빨강, 주황, 초록을 헷갈립니다. 사람의 적록 색맹과 비슷하고, 회색 세상은 아닙니다.
잔디밭에서 개가 가장 잘 보는 장난감 색은 무엇인가요?
파랑입니다. 개의 화면에서 빨간 공과 초록 공은 색 차이가 약 5인데, 파란 공은 잔디와 약 100 떨어져 있습니다.
고양이는 어둠 속에서 볼 수 있나요?
완전한 어둠에서 보는 눈은 없습니다. 고양이는 사람보다 약 5.5배 약한 빛을 알아채는데, 대부분 큰 동공과 광학 덕분입니다. 그 대가로 낮에는 더 흐리게 보고 색도 약합니다.
밤에 가장 잘 보는 동물은 무엇인가요?
「잘」을 무엇으로 보느냐에 달렸습니다. 색으로 보면 코끼리박각시입니다. 희미한 별빛인 0.0001 cd/m²에서 색을 골랐습니다. 밝기로 보면 올빼미와 고양이가 사람보다 빛을 많이 모읍니다. 밤에 움직이는 동물 상당수는 빛을 한 번 더 쓰게 하는 반사판도 갖고 있습니다.
눈이 가장 선명한 동물은 무엇인가요?
여기 나오는 동물 가운데서는 1도에 132~143주기인 쐐기꼬리수리입니다. 무척추동물에서는 망원 눈을 가진 깡충거미가 약 12.5에 이르러, 같은 크기 곤충보다 훨씬 낫습니다.
개의 화면이 왜 사람 화면만큼 또렷해 보이나요?
기본 화면에서는 눈보다 화면이 먼저 한계에 닿기 때문입니다. 정원의 1도는 화면에서 약 820픽셀이라 1도에 410주기까지만 담기는데, 사람(약 60)과 개(약 12)는 둘 다 그보다 촘촘하게 봅니다. 「멀리 보기」를 ×4나 ×8로 올리면 1도에 픽셀이 충분해져서, 개 절반은 흐려지고 사람 절반은 또렷하게 남습니다.
뒤를 볼 수 있는 동물이 있나요?
말은 약 350도를 덮어서 바로 뒤의 좁은 띠와 이마 앞의 작은 곳 말고는 둘레를 거의 다 봅니다. 청둥오리와 멧도요는 360도를 모두 봅니다. 파노라마를 켜고 사람의 180도와 비교해 보세요.
어떤 동물에게는 왜 화면이 깜빡여 보이나요?
많은 화면과 등은 1초에 60번이나 100번 밝기가 바뀝니다. 사람의 깜빡임 융합보다 빨라서 고른 빛으로 보입니다. 개와 많은 새, 날아다니는 곤충 대부분은 더 높은 주파수에서 융합되므로 깜빡임을 봅니다.
이 화면의 자외선은 진짜인가요?
자외선 값은 루드베키아의 고리처럼 알려진 무늬를 따라 표면마다 모형에 넣은 것이고, 다른 색으로 그렸습니다. 화면은 자외선을 낼 수 없으므로 흉내입니다.
갯가재가 색을 가장 많이 보나요?
수용체 종류는 12개로 가장 많지만, 실험에서는 나비나 사람보다 거칠게 색을 구별했습니다. 수용체끼리 비교하기보다 어느 수용체가 반응하는지로 색을 알아보는 것으로 보입니다.
상어는 색맹인가요?
그럴 가능성이 큽니다. 잰 17종 모두 원뿔세포가 한 종류뿐이었습니다. 그래도 대비와 움직임, 밝기는 아주 잘 봅니다.
손전등을 비추면 동물 눈이 왜 빛나나요?
망막 뒤에 빛을 수용체로 되돌려 보내는 거울층, 반사판(휘판)이 있기 때문입니다. 다시 빠져나오는 빛이 눈빛입니다.
염소 동공은 왜 네모난가요?
가로 막대 모양 동공은 포식자가 다가오는 땅을 따라 넓고 또렷하게 보게 합니다. 고개를 숙이면 눈이 돌아가서, 풀을 뜯는 동안에도 동공이 수평으로 남습니다.
뱀은 눈으로 열을 보나요?
아닙니다. 살무사와 비단뱀, 보아는 얼굴의 구멍으로 적외선을 따로 느낍니다. 따뜻해지면 구멍 신경의 TRPA1 통로가 열립니다. 눈은 구멍과 함께 일합니다.
물속에서는 왜 모든 것이 파랗게 보이나요?
물은 빨간빛을 파란빛보다 훨씬 세게 흡수합니다. 650 nm에서는 450 nm보다 약 37배 많이 흡수합니다. 몇 미터만 내려가도 빨간빛 대부분이 사라집니다.
개 품종마다 색을 다르게 보나요?
여기 출처에는 품종끼리 색 시각을 비교한 연구가 없고, 원뿔세포 두 종류는 품종을 가리지 않은 개에게서 잰 값입니다. 다만 신경절 세포가 퍼진 모양은 품종마다 다릅니다. 코가 긴 개는 늑대처럼 가로 띠, 코가 짧은 개는 가운데 점입니다.
생쥐에게 정원은 어떻게 보이나요?
3 cm 높이에서는 풀잎이 눈 위로 우뚝 솟고, 사과는 풀잎 뒤에 숨으며, 시력이 약 0.5 cpd라서 모든 것이 부드럽게 번집니다. 생쥐 원뿔세포는 자외선과 초록을 받으므로 빨간 사과는 어둡게 보입니다. 생쥐를 고르고 눈높이 보기를 켜 보세요.
꿀벌 눈에는 렌즈가 몇 개 있나요?
일벌의 눈 하나에는 평균 5,432개의 낱눈이 있고, 낱눈마다 렌즈가 따로 있습니다. 눈 앞쪽에서는 낱눈이 약 0.93° 간격으로 향합니다.
밤 화면은 왜 자글자글한가요?
어두우면 수용체 하나가 한 번에 받는 광자가 몇 개뿐이고, 그 개수는 제 제곱근만큼 제멋대로 흔들립니다. 무대는 이 규칙을 따르는 점을 더하므로, 어두울수록 점이 세지고 감도가 높은 동물일수록 약해집니다.
눈이 가장 큰 동물은 무엇인가요?
대왕오징어 무리(Architeuthis, Mesonychoteuthis)입니다. 대왕오징어 눈알 하나는 지름 약 27 cm, 동공 9 cm였습니다.
코끼리는 색을 보나요?
네, 두 가지 색으로 봅니다. 색소의 최대 감도가 419 nm와 552 nm로, 녹색맹인 사람과 같은 짝입니다.
용어
- 원뿔세포: 밝은 곳에서 일하는 망막의 빛 수용체입니다. 종류가 다른 원뿔세포를 비교해 색이 생깁니다.
- 막대세포: 어두운 곳에서 일하는 수용체입니다. 색을 가리지 못합니다.
- 이색형, 삼색형, 사색형: 수용체 두 종류, 세 종류, 네 종류를 비교하는 눈입니다.
- 봉우리 파장(λmax): 수용체가 가장 세게 반응하는 파장으로, 나노미터로 적습니다.
- 1도당 주기(cpd): 시야 1도 안에 가려낼 수 있는 밝고 어두운 줄 쌍의 수입니다.
- 깜빡임 융합 주파수(CFF): 깜빡임이 합쳐져 고른 빛으로 보이는 빠르기입니다.
- 반사판(휘판, 타페툼): 밤에 움직이는 많은 동물의 망막 뒤에 있는 반사층입니다.
- 낱눈(오마티디움): 겹눈을 이루는 단위 하나로, 렌즈와 수용체를 따로 갖습니다.
- 피트 기관: 살무사와 비단뱀, 보아의 얼굴에 있는 열 감지 구멍입니다.
- cd/m²: 제곱미터당 칸델라로, 표면이 얼마나 밝아 보이는지 나타냅니다. 한낮 장면은 수천, 별빛은 0.0001 안팎입니다.
- 편광: 빛의 파동이 진동하는 방향입니다. 물이나 반짝이는 비늘에서 되비친 빛은 편광된 경우가 많습니다.
- 눈높이: 눈높이 보기에서 동물마다 카메라를 땅에서 띄우는 높이입니다. 모형 값입니다.
- 겹침눈: 여러 낱눈의 빛을 렌즈나 거울로 모아 상 하나를 만드는 겹눈입니다.
- 광자 잡음: 수용체가 받는 광자 수가 제멋대로 흔들리는 것으로, 흔들림은 광자 수의 제곱근쯤입니다.
출처
모든 주소는 2026-10-18에 확인했습니다.
- Bowmaker, J. K. & Dartnall, H. J. A. (1980) Visual pigments of rods and cones in a human retina, Journal of Physiology 298: 501-511. https://doi.org/10.1113/jphysiol.1980.sp013097
- Govardovskii, V. I. et al. (2000) In search of the visual pigment template, Visual Neuroscience 17: 509-528. https://doi.org/10.1017/S0952523800174036
- Machado, G. M., Oliveira, M. M. & Fernandes, L. A. F. (2009) A physiologically-based model for simulation of color vision deficiency, IEEE Transactions on Visualization and Computer Graphics 15: 1291-1298. https://doi.org/10.1109/TVCG.2009.113
- Campbell, F. W. & Green, D. G. (1965) Optical and retinal factors affecting visual resolution, Journal of Physiology 181: 576-593. https://doi.org/10.1113/jphysiol.1965.sp007784
- Spector, R. H. (1990) Visual Fields, in Clinical Methods, 3rd edition, NCBI Bookshelf NBK220. https://www.ncbi.nlm.nih.gov/books/NBK220/
- Neitz, J., Geist, T. & Jacobs, G. H. (1989) Color vision in the dog, Visual Neuroscience 3: 119-125. https://doi.org/10.1017/S0952523800004430
- Odom, J. V., Bromberg, N. M. & Dawson, W. W. (1983) Canine visual acuity: retinal and cortical field potentials evoked by pattern stimulation, American Journal of Physiology 245: R637-R641. https://doi.org/10.1152/ajpregu.1983.245.5.R637
- Miller, P. E. & Murphy, C. J. (1995) Vision in dogs, Journal of the American Veterinary Medical Association 207: 1623-1634. https://doi.org/10.2460/javma.1995.207.12.1623
- Miller, P. E., Vision in Animals: What do Dogs and Cats See?, Veterinary Information Network. https://www.vin.com/apputil/content/defaultadv1.aspx?catId=29216&id=3844144
- Daw, N. W. & Pearlman, A. L. (1969) Cat colour vision: one cone process or several?, Journal of Physiology 201: 745-764. https://doi.org/10.1113/jphysiol.1969.sp008785
- Zrenner, E. & Gouras, P. (1979) Blue-sensitive cones of the cat produce a rodlike electroretinogram, Investigative Ophthalmology and Visual Science 18: 1076-1081, PubMed 478777. https://pubmed.ncbi.nlm.nih.gov/478777/
- Kang, I. et al. (2009) Contrast sensitivity of cats and humans in scotopic and mesopic conditions, Journal of Neurophysiology 102: 831-840. https://doi.org/10.1152/jn.90641.2008
- Carroll, J. et al. (2001) Photopigment basis for dichromatic color vision in the horse, Journal of Vision 1: 80-87. https://doi.org/10.1167/1.2.2
- Timney, B. & Keil, K. (1992) Visual acuity in the horse, Vision Research 32: 2289-2293. https://doi.org/10.1016/0042-6989(92)90092-W
- Harman, A. M. et al. (1999) Horse vision and an explanation for the visual behaviour originally explained by the ramp retina, Equine Veterinary Journal 31: 384-390. https://doi.org/10.1111/j.2042-3306.1999.tb03837.x
- UC Davis School of Veterinary Medicine, Center for Equine Health, Equine vision and performance. https://cehhorsereport.vetmed.ucdavis.edu/news/equine-vision-and-performance
- Jacobs, G. H., Deegan, J. F. & Neitz, J. (1998) Photopigment basis for dichromatic color vision in cows, goats, and sheep, Visual Neuroscience 15: 581-584. https://doi.org/10.1017/S0952523898153154
- Jacobs, G. H. et al. (1994) Electrophysiological measurements of spectral mechanisms in the retinas of two cervids, Journal of Comparative Physiology A 174: 551-557. https://doi.org/10.1007/BF00217375
- D'Angelo, G. J. et al. (2008) Visual specialization of an herbivore prey species, the white-tailed deer, Canadian Journal of Zoology 86: 735-743. https://doi.org/10.1139/Z08-050
- Banks, M. S. et al. (2015) Why do animal eyes have pupils of different shapes?, Science Advances 1: e1500391. https://doi.org/10.1126/sciadv.1500391
- Jacobs, G. H., Neitz, J. & Deegan, J. F. (1991) Retinal receptors in rodents maximally sensitive to ultraviolet light, Nature 353: 655-656. https://doi.org/10.1038/353655a0
- Wang, Y. V., Weick, M. & Demb, J. B. (2011) Spectral and temporal sensitivity of cone-mediated responses in mouse retinal ganglion cells, Journal of Neuroscience 31: 7670-7681. https://doi.org/10.1523/JNEUROSCI.0629-11.2011
- Prusky, G. T., West, P. W. & Douglas, R. M. (2000) Behavioral assessment of visual acuity in mice and rats, Vision Research 40: 2201-2209. https://doi.org/10.1016/S0042-6989(00)00081-X
- Jacobs, G. H., Fenwick, J. A. & Williams, G. A. (2001) Cone-based vision of rats for ultraviolet and visible lights, Journal of Experimental Biology 204: 2439-2446. https://doi.org/10.1242/jeb.204.14.2439
- Winter, Y., López, J. & von Helversen, O. (2003) Ultraviolet vision in a bat, Nature 425: 612-614. https://doi.org/10.1038/nature01971
- Peitsch, D. et al. (1992) The spectral input systems of hymenopteran insects and their receptor-based colour vision, Journal of Comparative Physiology A 170: 23-40. https://doi.org/10.1007/BF00190398
- Ryan, L. A. et al. (2020) The buzz around spatial resolving power and contrast sensitivity in the honeybee, Apis mellifera, Vision Research 169: 25-32. https://doi.org/10.1016/j.visres.2020.02.005
- Horth, L., Campbell, L. & Bray, R. (2014) Wild bees preferentially visit Rudbeckia flower heads with exaggerated ultraviolet absorbing floral guides, Biology Open 3, PubMed Central. https://pmc.ncbi.nlm.nih.gov/articles/PMC4001241/
- Koshitaka, H. et al. (2008) Tetrachromacy in a butterfly that has eight varieties of spectral receptors, Proceedings of the Royal Society B 275: 947-954. https://doi.org/10.1098/rspb.2007.1614
- Arikawa, K. (2003) Spectral organization of the eye of a butterfly, Papilio, Journal of Comparative Physiology A 189: 791-800. https://doi.org/10.1007/s00359-003-0454-7
- Kelber, A., Balkenius, A. & Warrant, E. J. (2002) Scotopic colour vision in nocturnal hawkmoths, Nature 419: 922-925. https://doi.org/10.1038/nature01065
- Johnsen, S. et al. (2006) Crepuscular and nocturnal illumination and its effects on color perception by the nocturnal hawkmoth Deilephila elpenor, Journal of Experimental Biology 209: 789-800. https://doi.org/10.1242/jeb.02053
- Thoen, H. H. et al. (2014) A different form of color vision in mantis shrimp, Science 343: 411-413. https://doi.org/10.1126/science.1245824
- Chiou, T.-H. et al. (2008) Circular polarization vision in a stomatopod crustacean, Current Biology 18: 429-434. https://doi.org/10.1016/j.cub.2008.02.066
- Reymond, L. (1985) Spatial visual acuity of the eagle Aquila audax, Vision Research 25: 1477-1491. https://doi.org/10.1016/0042-6989(85)90226-3
- Lind, O. et al. (2013) Ultraviolet sensitivity and colour vision in raptor foraging, Journal of Experimental Biology 216: 1819-1826. https://doi.org/10.1242/jeb.082834
- Martin, G. R. (1984) The visual fields of the tawny owl, Strix aluco L., Vision Research 24: 1739-1751. https://doi.org/10.1016/0042-6989(84)90005-1
- Martin, G. R. & Gordon, I. E. (1974) Visual acuity in the tawny owl (Strix aluco), Vision Research 14: 1393-1397. https://doi.org/10.1016/0042-6989(74)90014-5
- Orlowski, J. et al. (2012) Night vision in barn owls: visual acuity and contrast sensitivity under dark adaptation, Journal of Vision 12(13): 4. https://doi.org/10.1167/12.13.4
- Bowmaker, J. K. et al. (1997) Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds, Vision Research 37: 2183-2194. https://doi.org/10.1016/S0042-6989(97)00026-6
- Palacios, A. G. et al. (1998) Spectral sensitivity of cones in the goldfish, Carassius auratus, Vision Research 38: 2135-2146. https://doi.org/10.1016/S0042-6989(97)00411-2
- Bowmaker, J. K., Thorpe, A. & Douglas, R. H. (1991) Ultraviolet-sensitive cones in the goldfish, Vision Research 31: 349-352. https://doi.org/10.1016/0042-6989(91)90087-L
- Hart, N. S. et al. (2011) Microspectrophotometric evidence for cone monochromacy in sharks, Naturwissenschaften 98: 193-201. https://doi.org/10.1007/s00114-010-0758-8
- Hanke, F. D. & Kelber, A. (2020) The eye of the common octopus (Octopus vulgaris), Frontiers in Physiology 10: 1637. https://doi.org/10.3389/fphys.2019.01637
- Marshall, N. J. & Messenger, J. B. (1996) Colour-blind camouflage, Nature 382: 408-409. https://doi.org/10.1038/382408b0
- Kelman, E. J., Osorio, D. & Baddeley, R. J. (2008) A review of cuttlefish camouflage and object recognition and evidence for depth perception, Journal of Experimental Biology 211: 1757-1763. https://doi.org/10.1242/jeb.015149
- Mäthger, L. M. et al. (2013) The W-shaped pupil in cuttlefish (Sepia officinalis): functions for improving horizontal vision, Vision Research 83: 19-24. https://doi.org/10.1016/j.visres.2013.02.016
- Gracheva, E. O. et al. (2010) Molecular basis of infrared detection by snakes, Nature 464: 1006-1011. https://doi.org/10.1038/nature08943
- Bullock, T. H. & Cowles, R. B. (1952) Physiology of an infrared receptor: the facial pit of pit vipers, Science 115: 541-543. https://doi.org/10.1126/science.115.2994.541-b
- Roth, L. S. V. & Kelber, A. (2004) Nocturnal colour vision in geckos, Proceedings of the Royal Society B 271 (Suppl. 6): S485-S487. https://doi.org/10.1098/rsbl.2004.0227
- Roth, L. S. V. et al. (2009) The pupils and optical systems of gecko eyes, Journal of Vision 9(3): 27. https://doi.org/10.1167/9.3.27
- Ott, M. (2001) Chameleons have independent eye movements but synchronise both eyes during saccadic prey tracking, Experimental Brain Research 139: 173-179. https://doi.org/10.1007/s002210100774
- Land, M. F. (1997) Visual acuity in insects, Annual Review of Entomology 42: 147-177. https://doi.org/10.1146/annurev.ento.42.1.147
- Futahashi, R. et al. (2015) Extraordinary diversity of visual opsin genes in dragonflies, PNAS 112: E1247-E1256. https://doi.org/10.1073/pnas.1424670112
- Williams, D. S. & McIntyre, P. (1980) The principal eyes of a jumping spider have a telephoto component, Nature 288: 578-580. https://doi.org/10.1038/288578a0
- DeVoe, R. D. (1975) Ultraviolet and green receptors in principal eyes of jumping spiders, Journal of General Physiology 66: 193-207. https://doi.org/10.1085/jgp.66.2.193
- Zurek, D. B. et al. (2015) Spectral filtering enables trichromatic vision in colorful jumping spiders, Current Biology 25: R403-R404. https://doi.org/10.1016/j.cub.2015.03.033
- Palmer, B. A. et al. (2017) The image-forming mirror in the eye of the scallop, Science 358: 1172-1175. https://doi.org/10.1126/science.aam9506
- Speiser, D. I. & Johnsen, S. (2008) Scallops visually respond to the size and speed of virtual particles, Journal of Experimental Biology 211: 2066-2070. https://doi.org/10.1242/jeb.017038
- Ollivier, F. J. et al. (2004) Comparative morphology of the tapetum lucidum (among selected species), Veterinary Ophthalmology 7: 11-22. https://doi.org/10.1111/j.1463-5224.2004.00318.x
- Inger, R. et al. (2014) Potential biological and ecological effects of flickering artificial light, PLoS ONE 9: e98631 (Table S1, critical fusion frequencies). https://doi.org/10.1371/journal.pone.0098631
- Pope, R. M. & Fry, E. S. (1997) Absorption spectrum (380-700 nm) of pure water II: integrating cavity measurements, Applied Optics 36: 8710-8723. https://doi.org/10.1364/AO.36.008710
- Neitz, J. & Jacobs, G. H. (1989) Spectral sensitivity of cones in an ungulate, Visual Neuroscience 2: 97-100. https://doi.org/10.1017/S0952523800011949
- Nuboer, J. F. W., van Nuys, W. M. & Wortel, J. F. (1983) Cone systems in the rabbit retina revealed by ERG-null-detection, Journal of Comparative Physiology 151: 347-352. https://doi.org/10.1007/BF00623909
- Jacobs, G. H. & Deegan, J. F. (1994) Spectral sensitivity, photopigments, and color vision in the guinea pig (Cavia porcellus), Behavioral Neuroscience 108: 993-1004. https://doi.org/10.1037/0735-7044.108.5.993
- Coimbra, J. P. et al. (2013) Scene from above: retinal ganglion cell topography and spatial resolving power in the giraffe (Giraffa camelopardalis), Journal of Comparative Neurology 521: 2042-2057. https://doi.org/10.1002/cne.23271
- Yokoyama, S. et al. (2005) Elephants and human color-blind deuteranopes have identical sets of visual pigments, Genetics 170: 335-344. https://doi.org/10.1534/genetics.104.039511
- Fasick, J. I. et al. (1998) The visual pigments of the bottlenose dolphin (Tursiops truncatus), Visual Neuroscience 15: 643-651. https://doi.org/10.1017/S0952523898154056
- Peichl, L., Behrmann, G. & Kröger, R. H. H. (2001) For whales and seals the ocean is not blue: a visual pigment loss in marine mammals, European Journal of Neuroscience 13: 1520-1528. https://doi.org/10.1046/j.0953-816x.2001.01533.x
- Bowmaker, J. K. et al. (1991) Photosensitive and photostable pigments in the retinae of Old World monkeys, Journal of Experimental Biology 156: 1-19. https://doi.org/10.1242/jeb.156.1.1
- Jacobs, G. H. (1996) Primate photopigments and primate color vision, PNAS 93: 577-581. https://doi.org/10.1073/pnas.93.2.577
- Jacobs, G. H. (2009) Evolution of colour vision in mammals, Philosophical Transactions of the Royal Society B 364: 2957-2967. https://doi.org/10.1098/rstb.2009.0039
- Hogg, C. et al. (2011) Arctic reindeer extend their visual range into the ultraviolet, Journal of Experimental Biology 214: 2014-2019. https://doi.org/10.1242/jeb.053553
- Bowmaker, J. K. & Martin, G. R. (1985) Visual pigments and oil droplets in the penguin, Spheniscus humboldti, Journal of Comparative Physiology A 156: 71-77. https://doi.org/10.1007/BF00610668
- Martin, G. R. & Young, S. R. (1984) The eye of the Humboldt penguin, Spheniscus humboldti: visual fields and schematic optics, Proceedings of the Royal Society B 223: 197-222. https://doi.org/10.1098/rspb.1984.0090
- Herrera, G. et al. (2008) Spectral sensitivities of photoreceptors and their role in colour discrimination in the green-backed firecrown hummingbird (Sephanoides sephaniodes), Journal of Comparative Physiology A 194: 785-794. https://doi.org/10.1007/s00359-008-0349-8
- Hart, N. S., Partridge, J. C. & Cuthill, I. C. (1998) Visual pigments, oil droplets and cone photoreceptor distribution in the European starling (Sturnus vulgaris), Journal of Experimental Biology 201: 1433-1446. https://doi.org/10.1242/jeb.201.9.1433
- Hart, N. S. (2002) Vision in the peafowl (Aves: Pavo cristatus), Journal of Experimental Biology 205: 3925-3935. https://doi.org/10.1242/jeb.205.24.3925
- Jane, S. D. & Bowmaker, J. K. (1988) Tetrachromatic colour vision in the duck (Anas platyrhynchos L.): microspectrophotometry of visual pigments and oil droplets, Journal of Comparative Physiology A 162: 225-235. https://doi.org/10.1007/BF00606087
- Martin, G. R. (1986) Total panoramic vision in the mallard duck, Anas platyrhynchos, Vision Research 26: 1303-1305. https://doi.org/10.1016/0042-6989(86)90112-4
- Martin, G. R. (1994) Visual fields in woodcocks Scolopax rusticola (Scolopacidae; Charadriiformes), Journal of Comparative Physiology A 174. https://doi.org/10.1007/BF00192728
- Viitala, J. et al. (1995) Attraction of kestrels to vole scent marks visible in ultraviolet light, Nature 373: 425-427. https://doi.org/10.1038/373425a0
- Loew, E. R. & Govardovskii, V. I. (2001) Photoreceptors and visual pigments in the red-eared turtle, Trachemys scripta elegans, Visual Neuroscience 18: 753-757. https://doi.org/10.1017/S0952523801185081
- Loew, E. R. et al. (2002) Visual pigments and oil droplets in diurnal lizards: a comparative study of Caribbean anoles, Journal of Experimental Biology 205: 927-938. https://doi.org/10.1242/jeb.205.7.927
- Nagloo, N. et al. (2016) Spatial resolving power and spectral sensitivity of the saltwater crocodile, Crocodylus porosus, and the freshwater crocodile, Crocodylus johnstoni, Journal of Experimental Biology 219: 1394-1404. https://doi.org/10.1242/jeb.135673
- Yovanovich, C. A. M. et al. (2017) The dual rod system of amphibians supports colour discrimination at the absolute visual threshold, Philosophical Transactions of the Royal Society B 372: 20160066. https://doi.org/10.1098/rstb.2016.0066
- Aho, A.-C. et al. (1988) Low retinal noise in animals with low body temperature allows high visual sensitivity, Nature 334: 348-350. https://doi.org/10.1038/334348a0
- Allison, W. T. et al. (2004) Visual pigment composition in zebrafish: evidence for a rhodopsin-porphyropsin interchange system, Visual Neuroscience 21: 945-952. https://doi.org/10.1017/S0952523804216145
- Archer, S. N. & Lythgoe, J. N. (1990) The visual pigment basis for cone polymorphism in the guppy, Poecilia reticulata, Vision Research 30: 225-233. https://doi.org/10.1016/0042-6989(90)90038-M
- Muir, L. E., Thorne, M. J. & Kay, B. H. (1992) Aedes aegypti (Diptera: Culicidae) vision: spectral sensitivity and other perceptual parameters of the female eye, Journal of Medical Entomology 29: 278-281. https://doi.org/10.1093/jmedent/29.2.278
- Mote, M. I. & Wehner, R. (1980) Functional characteristics of photoreceptors in the compound eye and ocellus of the desert ant, Cataglyphis bicolor, Journal of Comparative Physiology 137: 63-71. https://doi.org/10.1007/BF00656918
- Salcedo, E. et al. (1999) Blue- and green-absorbing visual pigments of Drosophila: ectopic expression and physiological characterization of the R8 photoreceptor cell-specific Rh5 and Rh6 rhodopsins, Journal of Neuroscience 19: 10716-10726. https://doi.org/10.1523/JNEUROSCI.19-24-10716.1999
- Skorupski, P. & Chittka, L. (2010) Photoreceptor spectral sensitivity in the bumblebee, Bombus impatiens (Hymenoptera: Apidae), PLoS ONE 5: e12049. https://doi.org/10.1371/journal.pone.0012049
- Nityananda, V. et al. (2016) Insect stereopsis demonstrated using a 3D insect cinema, Scientific Reports 6: 18718. https://doi.org/10.1038/srep18718
- Land, M. F. (1976) Superposition images are formed by reflection in the eyes of some oceanic decapod Crustacea, Nature 263: 764-765. https://doi.org/10.1038/263764a0
- Nilsson, D.-E. et al. (2012) A unique advantage for giant eyes in giant squid, Current Biology 22: 683-688. https://doi.org/10.1016/j.cub.2012.02.031
- Muntz, W. R. A. & Raj, U. (1984) On the visual system of Nautilus pompilius, Journal of Experimental Biology 109: 253-263. https://doi.org/10.1242/jeb.109.1.253
- Speiser, D. I., Eernisse, D. J. & Johnsen, S. (2011) A chiton uses aragonite lenses to form images, Current Biology 21: 665-670. https://doi.org/10.1016/j.cub.2011.03.033
- Blest, A. D. & Land, M. F. (1977) The physiological optics of Dinopis subrufus L. Koch: a fish-lens in a spider, Proceedings of the Royal Society B 196: 197-222. https://doi.org/10.1098/rspb.1977.0037
- Nilsson, D.-E. et al. (2005) Advanced optics in a jellyfish eye, Nature 435: 201-205. https://doi.org/10.1038/nature03484
- Garm, A. & Nilsson, D.-E. (2014) Visual navigation in starfish: first evidence for the use of vision and eyes in starfish, Proceedings of the Royal Society B 281: 20133011. https://doi.org/10.1098/rspb.2013.3011
- Seidl, R. & Kaiser, W. (1981) Visual field size, binocular domain and the ommatidial array of the compound eyes in worker honey bees, Journal of Comparative Physiology 143: 17-26. https://doi.org/10.1007/BF00606065
- McGreevy, P., Grassi, T. D. & Harman, A. M. (2004) A strong correlation exists between the distribution of retinal ganglion cells and nose length in the dog, Brain, Behavior and Evolution 63: 13-22. https://doi.org/10.1159/000073756
- Koski, M. H. & Ashman, T.-L. (2015) Floral pigmentation patterns provide an example of Gloger's rule in plants, Nature Plants 1: 14007. https://doi.org/10.1038/nplants.2014.7
- Rigosi, E., Wiederman, S. D. & O'Carroll, D. C. (2017) Visual acuity of the honey bee retina and the limits for feature detection, Scientific Reports 7: 45972. https://doi.org/10.1038/srep45972
함께 보면 좋은 전시
광합성의 원리
햇빛을 받는 나뭇잎은 이산화탄소가 100만분의 426 정도밖에 없는 공기에서 탄소를 거둬 당을 만듭니다.
필름 카메라와 폴라로이드의 원리
1/1000초 셔터는 필름 전체를 한꺼번에 열지 않습니다. 좁은 틈 하나가 필름 위를 훑고 지나갑니다.
빛의 속도로 여행하면
빛은 1초에 적도를 7.5바퀴 돌지만, 같은 빛이 안드로메다은하에 닿으려면 250만 년이 걸립니다.
빛과 색: 프리즘에서 편광 필터까지
유리 프리즘은 보라색 빛을 빨간색보다 1.6도쯤 더 꺾고, 흰빛이 무지갯빛 띠로 펼쳐지는 데는 그 작은 차이면 충분합니다.
착시는 왜 생길까: 그림자 체커, 에임스 방, 크기 착시, 폭포 착시
A 칸은 어둡고 B 칸은 밝아 보이지만, 화면이 두 칸에서 내보내는 회색은 똑같습니다.
광섬유와 해저 케이블의 원리
해저 케이블 속 빛이 지름 8.2 μm 유리 코어를 수천 km 동안 벗어나지 않는 것은 코어 벽에 84.5°보다 비스듬히 부딪히기 때문입니다.
자이언트 세쿼이아 숲: 세상에서 가장 큰 나무 아래를 걷다
높이 83.8 m, 나이 약 2,200년인 제너럴 셔먼 나무 밑동에 서서 올려다본 뒤, 줄기를 올라 그 높이의 물이 얼마나 세게 당겨지는지 봅니다.
말 걸음걸이 평보와 속보부터 구보와 습보까지 비교
1878년 머이브리지의 사진은 달리는 말이 네 발을 모두 띄우는 순간이 있고, 그때 다리가 몸 아래로 모여 있다는 것을 보여 주었습니다. 빨리 가도 끝내 땅을 떠나지 않는 동물도 있습니다.
ATP 합성효소의 원리
미토콘드리아 속 ATP 합성효소의 회전자는 1초에 약 100바퀴 돌고, 한 바퀴마다 ATP를 세 개씩 내놓습니다.
공룡 크기 비교로 보는 실제 크기 선사 동물 172종
첫 공룡부터 티라노사우루스까지, 선사 시대 동물 172종을 실제 크기로 시대 순서대로 세운 600 m 공원입니다.
DNA 복제 과정: 선도 가닥과 오카자키 절편을 3D로
DNA 중합효소는 가닥의 한쪽 끝에만 뉴클레오타이드를 붙일 수 있어서, 복제 포크마다 새 가닥 하나는 한 줄로 이어 자라고 다른 하나는 짧은 조각으로 자랍니다.
신경 신호가 전해지는 원리
신경세포는 평소 −70 mV에 머물다가 자극이 막 전위를 −55 mV 근처까지 끌어올리면 언제나 같은 크기의 활동전위를 내보냅니다.