그림 32원리관
말 걸음걸이 평보와 속보부터 구보와 습보까지 비교
1878년 머이브리지의 사진은 달리는 말이 네 발을 모두 띄우는 순간이 있고, 그때 다리가 몸 아래로 모여 있다는 것을 보여 주었습니다. 빨리 가도 끝내 땅을 떠나지 않는 동물도 있습니다.
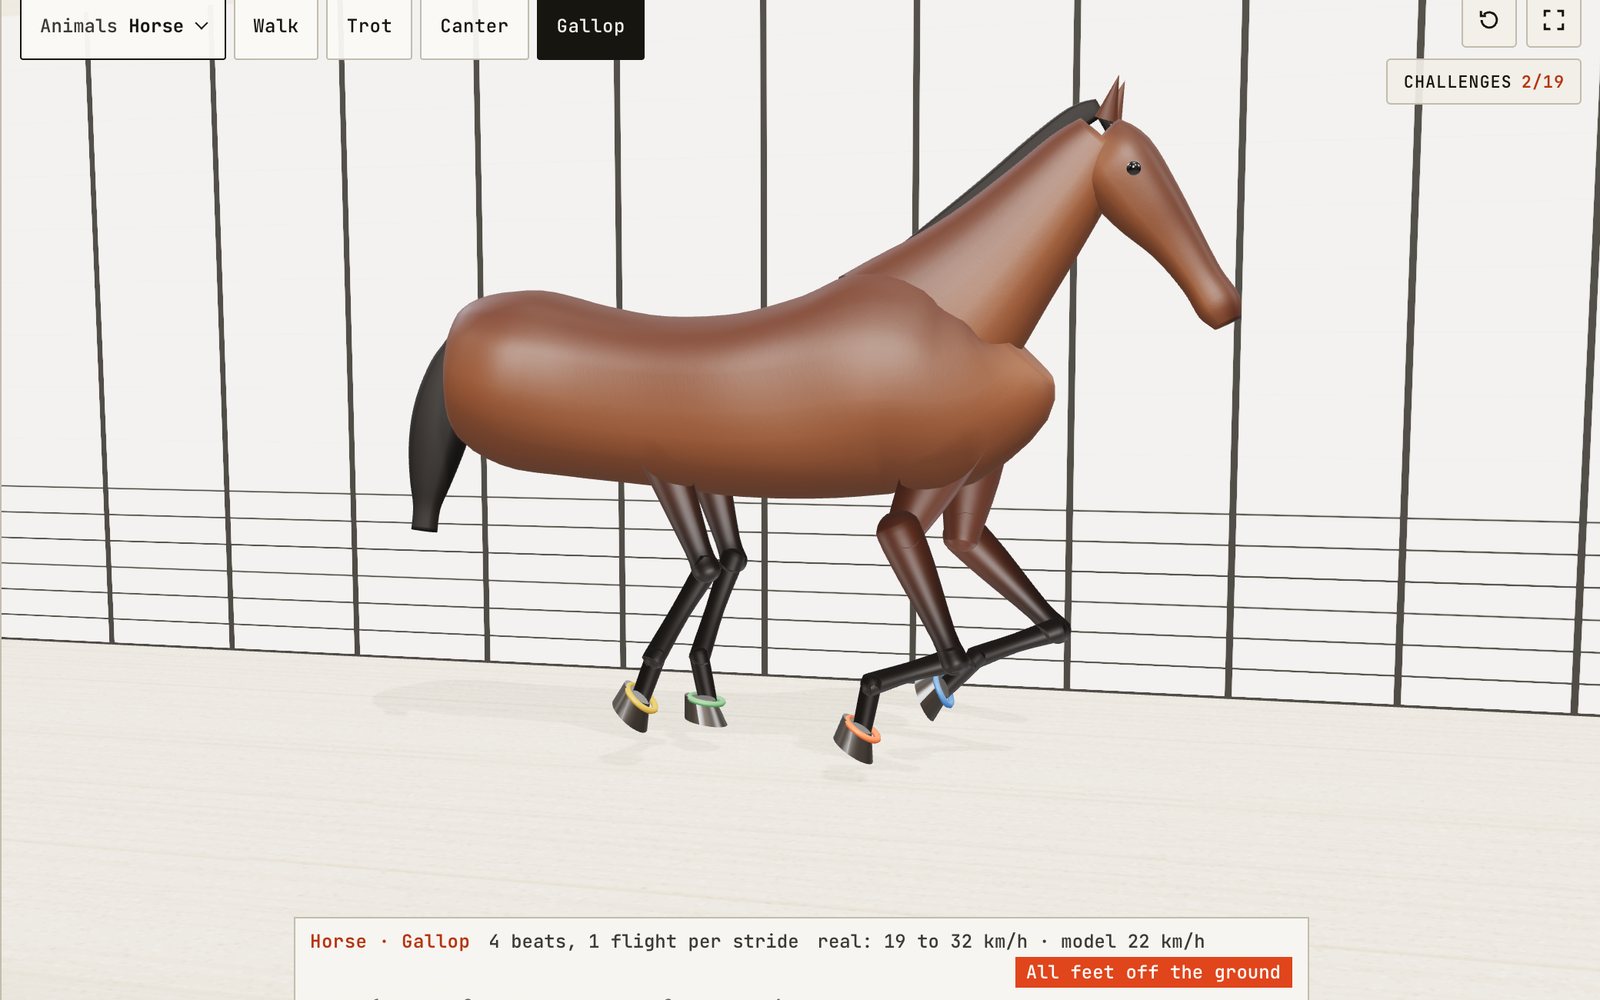
이 기기에서는 3D를 띄울 수 없습니다. 아래 안내 단계를 글로 볼 수 있습니다.
1 / 17 속이 비치는 말코드로 만든 말입니다. 어깨, 몸통, 엉덩이의 큰 근육 덩어리 위로 매끈한 피부를 씌웠고 그 안에 뼈대가 있습니다. 처음에는 느린 습보로 달리다가 네 발이 모두 뜬 순간에 잠깐 멈춥니다. 말은 제자리에서 달리고 땅이 뒤로 흘러가서, 땅에 닿은 발굽은 모래 위 한 자리에 머뭅니다. 말 위의 「동물」 단추로 52종 가운데 하나를 고를 수 있습니다.
끌어서 돌리고, 휠이나 두 손가락으로 확대하세요.
모형이 보여 주는 것
말 걸음걸이는 평보, 속보, 구보, 습보에 따라 발을 딛는 순서와 박자가 다릅니다. 평보는 네 박자, 속보는 두 박자이며, 이 전시에서는 여러 동물의 발 디딤을 느리게 비교합니다. 말이 속보로 지나가면 다리가 흐릿하게 뭉개집니다. 박자는 들리는데 어느 발이 언제 닿는지는 보이지 않습니다. 오랫동안 아무도 그것을 볼 수 없었고, 화가들은 짐작으로 그렸습니다. 이 전시는 말의 타고난 네 걸음인 평보, 속보, 구보, 습보를 발 하나하나를 따라갈 수 있을 만큼 느리게 보여 줍니다. 그다음 고양이부터 코끼리까지 다른 동물 19종을 같은 방식으로 견주어, 어떤 걸음이 흔하고 어떤 걸음이 드문지 보여 줍니다.
말은 코드로 만들었습니다. 어깨, 몸통, 엉덩이의 큰 근육 덩어리 위로 매끈한 피부를 씌우고 갈기와 꼬리를 달았으며, 그 안에 뼈대가 있습니다. 말은 제자리에서 달리고 모래와 배경판이 그 아래로 뒤로 흘러갑니다. 러닝머신과 같은 방식입니다. 처음에는 느린 습보로 달리다가 네 발이 모두 뜬 순간에 잠깐 멈춥니다. 무대 왼쪽 위 「동물」 단추를 누르면 동물 52종을 실루엣, 검색, 무리로 고를 수 있고, 그 옆 단추로 걸음을 고릅니다. 아래 판은 발 디딤 그래프입니다. 다리마다 한 줄씩 있고, 한 걸음 동안 그 발이 땅에 닿아 있는 구간에 색 막대가 그려집니다. 그래프 위를 지나가는 세로선이 지금 순간입니다. 말의 발굽마다 그 줄과 같은 색 띠가 둘러져 있고, 그래프 위 판독 창은 땅에 닿은 발의 수를 셉니다. 발이 하나도 닿지 않으면 그렇다고 알려 줍니다.
「조작」 탭에는 더 많은 것이 있습니다. 「재생 속도」는 실제의 10분의 1까지 늦출 수 있습니다. 「걸음 위치」는 동물을 멈추고 한 걸음을 손으로 끌어 볼 수 있게 합니다. 「속 보기」는 말의 피부를 옅게 해 뼈대를 보여 줍니다. 「발자국」은 발이 닿는 자리마다 자국을 남기고, 「발굽 소리」는 발이 닿을 때마다 딸깍 소리를 내며, 「사람 1.75 m」는 크기를 비교하도록 동물 옆에 사람을 세웁니다. 조작 아래에는 과제 19개, 옆·위·앞 시점과 발굽 궤적 단추, 말 품종 18가지와 걸음 17가지, 걸음 편집기, 동물 52종과 걸음 108가지를 담은 표, 기록표가 붙은 100 m 경주, 머이브리지의 카메라처럼 한 걸음을 12장면으로 나눈 띠가 있습니다.
박자와 땅에 닿은 발 세기
말을 다루는 사람들은 걸음을 박자로 설명합니다. 한 걸음 동안 따로 들리는 발굽 소리의 수입니다. 두 발이 같은 순간에 닿으면 한 박입니다. 한 걸음은 어떤 발이 닿은 때부터 같은 발이 다시 닿을 때까지의 한 주기입니다.
그래프에 보이는 것은 대부분 숫자 두 개로 설명됩니다. 하나는 각 발이 한 걸음 가운데 얼마 동안 땅에 있느냐입니다. 생체역학 연구자들은 이것을 듀티 팩터라고 부릅니다. 모형에서 말의 평보는 0.62를 써서, 발굽마다 한 걸음의 62% 동안 땅에 닿아 있습니다. 속보와 구보는 0.40, 습보는 0.30입니다. 다른 하나는 발이 닿는 순서와 그 간격입니다. 1960년대에 많은 말의 걸음을 필름으로 찍은 밀턴 힐데브랜드는 평보, 속보, 측대보 같은 대칭 걸음을 두 숫자만으로 나타낼 수 있다는 것을 보였습니다. 듀티 팩터, 그리고 같은 쪽 뒷발보다 앞발이 얼마나 늦게 닿느냐입니다.
이 둘을 합치면 공중에 뜨는 순간을 미리 알 수 있습니다. 평보처럼 모든 발이 한 걸음의 절반보다 오래 땅에 있으면 발이 하나도 닿지 않는 순간은 생기지 않습니다. 발마다 절반보다 짧게 땅에 있으면 틈이 생길 수 있고, 실제로 생기는지는 발 딛는 간격에 달려 있습니다. 판독 창이 그 틈을 세어 「공중 구간 없음」, 「한 걸음에 공중 1번」, 「한 걸음에 공중 2번」으로 알려 줍니다.
평보: 언제나 두세 발이 땅에
평보는 4박 걸음입니다. 발마다 따로 한 박씩, 왼뒷발, 왼앞발, 오른뒷발, 오른앞발 순서로 닿습니다. 몬태나 주립대 확장교육원 안내는 늘 두세 발이 땅에 있고 공중에 뜨는 순간이 없다고 덧붙입니다. 모형도 그대로입니다. 평보를 돌리면 판독 창은 두 발과 세 발 사이만 오가고 그보다 줄지 않습니다.
박자가 한 걸음의 4분의 1씩 고르게 떨어져 있어서, 말 아래에는 늘 다리 세 개로 된 삼각형이나 다리 두 개가 있습니다. 그래서 평보는 가장 안정된 걸음이고, 먼 길과 거친 땅에서 쓰는 걸음입니다. 몬태나 주립대는 시속 3.55마일, 약 5.68 km/h 로 적습니다.
속보: 대각선 두 쌍
속보는 2박입니다. 왼앞발과 오른뒷발이 함께 닿고, 다음에 오른앞발과 왼뒷발이 닿습니다. 대각선 쌍 하나가 거의 다리 하나처럼 움직여서 몸은 대각선 위에서 받쳐집니다. 안내의 앞쪽 비스듬한 시점에서 속보를 보면 두 쌍이 가위날처럼 엇갈립니다.
두 쌍 사이에는 발이 하나도 닿지 않는 짧은 순간이 있습니다. 모형의 속보는 한 걸음의 약 20%를 공중에서 보내고, 이것이 두 번으로 나뉩니다. 몬태나 주립대는 스탠더드브레드가 길게 뻗는 속보에서 공중에 떠 있는 시간이 가장 길고, 해크니처럼 다리를 높이 들며 짧게 모아 걷는 품종은 공중 구간 없이 속보를 하기도 한다고 적습니다. 평균 속보 속도는 시속 710마일, 약 1116 km/h 입니다. 탄 사람이 가장 덜컹거린다고 느끼는 걸음도 속보입니다. 착지할 때마다 몸이 조금 내려앉았다가 다음 쌍에 다시 튀어 오르기 때문입니다.
구보: 3박과 리드
구보는 3박입니다. 몬태나 주립대는 오른발 리드 구보의 순서를 왼뒷발, 이어서 오른뒷발과 왼앞발이 함께, 마지막으로 오른앞발로 적고, 오른앞발이 땅을 떠난 뒤 공중에 뜨는 구간이 온다고 합니다. 마지막에 닿는 다리, 여기서는 오른앞발이 가장 앞으로 나가기 때문에 리드 다리라고 부릅니다. 오른쪽으로 도는 말은 보통 오른쪽 다리로 리드합니다.
리드는 그래프에서 보입니다. 구보로 바꾸고 세 번째 박자를 보세요. 오른앞발이 혼자 닿고, 그 뒤의 틈이 한 걸음에서 유일하게 공중에 뜨는 순간입니다. 몬태나 주립대는 이때가 리드를 바꾸라고 말에게 알리기 가장 좋은 때라고 합니다. 예전 순서를 붙들고 있을 발이 땅에 하나도 없기 때문입니다. 평균 속도는 시속 610마일, 약 1016 km/h 이고, 몬태나 주립대는 구보를 모아서 억제한 습보라고 설명합니다.
습보: 네 번째 박자와 공중에 뜨는 순간
습보는 빠른 구보처럼 보이고, 실제로 여러모로 그렇습니다. 차이는 가운데 박자에 있습니다. 구보에서는 안쪽 뒷발과 바깥쪽 앞발이 함께 닿습니다. 습보에서는 뒷발이 아주 조금 먼저 닿아서 한 박이 둘로 나뉘고, 오른발 리드라면 왼뒷발, 오른뒷발, 왼앞발, 오른앞발의 4박이 됩니다. 공중에 뜨는 구간은 마지막 앞발이 땅을 떠난 뒤에 옵니다.
모형에서 발굽은 한 걸음의 30% 동안만 땅에 있고, 말은 한 걸음의 약 4분의 1을 공중에서 보냅니다. 안내 6단계를 열면 그 순간을 실제의 10분의 1 속도로 볼 수 있습니다. 앞다리는 막 땅을 차고 가슴 아래로 접혀 들어가고, 뒷다리는 배 아래로 앞으로 흔들려 나옵니다. 네 발굽이 모두 몸 아래에 모여 있습니다. 몬태나 주립대는 습보를 시속 1220마일, 약 1932 km/h 로 적습니다. 경주마는 이 평균보다 빠르기 때문에 판독 창은 이 값을 최고 속도가 아니라 보통 범위로 보여 줍니다.
걸음별 속도
판독 창에 나오는 몬태나 주립대의 값을 마일에서 km 로 바꾼 것입니다.
| 걸음 | 박자 | 한 걸음의 공중 구간 | 몬태나 주립대 | km/h |
|---|---|---|---|---|
| 평보 | 4 | 0 | 시속 3.5~5마일 | 5.6~8 |
| 속보 | 2 | 2 | 시속 7~10마일 | 11~16 |
| 구보 | 3 | 1 | 시속 6~10마일 | 10~16 |
| 습보 | 4 | 1 | 시속 12~20마일 | 19~32 |
구보와 속보의 범위가 겹칩니다. 말은 정해진 한 속도에서 걸음을 바꾸지 않고, 훈련된 속보마는 다른 말의 구보보다 빠르게 속보를 할 수 있습니다.
모형은 이보다 천천히 움직입니다. 네 걸음의 모형 땅 속도는 3.5, 9.3, 11.6, 22.4 km/h 입니다. 발굽이 몸 아래에서 쓸고 가는 거리가 실제 말보다 짧기 때문입니다. 판독 창은 두 값을 「실제」와 「모형」으로 함께 보여 줍니다. 모형에서 중요한 것은 발 딛는 시간이고, 그래프는 어떤 속도에서든 그것을 보여 줍니다.
말은 왜 걸음을 바꿀까
이론으로는 말이 속보로 바꾸지 않고 평보를 점점 빠르게 할 수도 있습니다. 1981년 도널드 호이트와 리처드 테일러는 조랑말을 러닝머신에서 훈련시키고, 같은 거리를 가는 데 산소를 얼마나 쓰는지 쟀습니다. 걸음마다 이동 비용이 가장 낮은 속도가 있었고, 그보다 빠르거나 느리게 걸으면 비용이 더 들었습니다. 같은 조랑말이 자유롭게 움직일 때는 이 최저점에 가까운 속도를 골랐고, 그 사이에서 걸음을 바꿨습니다.
그러니 걸음마다 싸게 먹히는 속도 범위가 있고, 말은 대체로 한 범위가 다음 범위로 넘어가는 곳에서 걸음을 바꿉니다. 공중에 뜨는 순간도 여기에 얽혀 있습니다. 속보와 습보에서 다리는 용수철처럼 일합니다. 몸이 내려앉을 때 힘줄이 늘어났다가 몸이 올라갈 때 되돌아오며, 그냥 잃었을 에너지를 모아 둡니다.
크기, 걸음, 프루드 수
고양이와 코끼리를 차례로 돌려 보면 고양이 다리는 흐릿해지고 코끼리 다리는 슬로모션처럼 보입니다. 작은 동물은 1초에 걸음을 더 많이 걷습니다. 노먼 헤글런드와 리처드 테일러는 생쥐부터 말까지 견주어, 각 동물이 속보에서 습보로 바꾸는 속도에서 작은 동물이 큰 동물보다 1초에 훨씬 많은 걸음을 걷는다는 것을 알아냈습니다. 또 비슷한 정도의 속도에서는 한 걸음에 몸무게 1 kg 당 쓰는 에너지가 크기와 상관없이 거의 같았습니다.
로버트 맥닐 알렉산더와 앨런 제이스는 크기가 다른 동물을 공평하게 견주는 방법을 제안했습니다. 속도의 제곱을 중력 가속도와 다리 길이의 곱으로 나누면 단위가 없는 수가 나오는데, 이것이 프루드 수입니다. 크기가 달라도 프루드 수가 같으면 같은 걸음을 같은 비율로 쓰는 경향이 있습니다. 길이만 다른 큰 진자와 작은 진자가 닮은꼴로 흔들리는 것과 비슷합니다. 모형도 이 생각을 씁니다. 동물의 한 걸음 주기가 다리 길이의 제곱근에 비례해 늘어나서, 생쥐와 기린이 모두 제 몸집에 자연스러운 빠르기로 움직입니다.
사람은 초속 약 2 m 에서 걷기를 달리기로 바꾸는데, 사람 다리 길이로 계산하면 프루드 수 0.5 가까이입니다. 알렉산더는 프루드 수가 1에 다가가면 걷기가 역학적으로 불가능해진다는 것을 보였습니다. 뻣뻣한 다리 위로 넘어가는 몸이 땅에서 떠 버리기 때문입니다.
사람이 말에게 가르친 걸음
몬태나 주립대는 평보, 속보, 측대보, 습보를 야생 말의 타고난 걸음으로 꼽습니다. 길들이는 동안 일부가 바뀌어 익힌 걸음이 되었는데, 슬로 로프, 러닝 워크, 랙, 스테핑 페이스, 폭스 트롯 등이 그렇습니다. 이 가운데 세 가지 발 딛는 방식이 동물 메뉴에 있습니다.
측대보는 속보처럼 2박이지만, 같은 쪽 두 다리가 함께 움직입니다. 왼뒷발과 왼앞발, 다음에 오른뒷발과 오른앞발입니다. 몬태나 주립대는 이것을 타고난 걸음으로 분류하고, 스탠더드브레드는 속보로도 측대보로도 경주합니다. 그래프에서 스탠더드브레드의 두 걸음을 비교해 보세요. 막대 길이는 같고 짝만 바뀝니다.
몬태나 주립대에 따르면 아이슬란드 말은 타고난 걸음이 다섯 가지이고, 그중에 퇼트와 짧은 거리에서 시속 40마일(64 km/h)까지 낸다는 측대보가 있습니다. 퇼트는 평보의 4박 순서를 지키되 발마다 땅에 있는 시간이 짧아서, 말은 한두 발로 받쳐지고 땅을 떠나지 않습니다. 탄 사람은 거의 흔들리지 않습니다. 테네시 워킹 호스의 러닝 워크도 비슷하고 보폭이 더 깁니다. 로빌리아드, 파우, 윌슨은 걸음이 특별한 품종까지 포함해 말의 걸음을 발 딛는 시간으로 분류했는데, 이 그래프가 보여 주는 것과 같은 정보입니다.
동물 52종을 한 그래프로
조작 아래 표는 전시의 모든 동물과 걸음을 박자, 한 걸음의 공중 구간 수, 출처가 적은 속도(있을 때만)와 함께 보여 줍니다. 줄을 고르면 그 동물이 무대에 나옵니다. 무리(발굽, 발바닥 패드, 발가락, 영장류, 두 발, 옆으로 벌린 다리, 여섯 다리)로 거르거나 이름으로 찾을 수 있습니다. 무대 위 「동물」 단추도 같은 선택을 실루엣 줄로 보여 줍니다. 실루엣은 동물마다 자기 다리 길이로 그렸습니다.
그래프를 여럿 읽다 보면 몇 가지가 눈에 띕니다. 네발짐승은 거의 모두 말과 같은 순서로 걷습니다. 왼뒷발, 왼앞발, 오른뒷발, 오른앞발입니다. 힐데브랜드는 이것을 측방 순서 평보라고 불렀고, 크기가 아주 다른 포유류에서도 찾았습니다. 메뉴의 고양이도 이렇게 걷습니다. 차이는 빨라질 때 나타나서, 동물들은 속보파, 측대보파, 습보파, 도약파로 갈립니다.
낙타는 측대보로 갑니다
단봉낙타로 바꾸면 왼쪽 다리 둘이 함께 앞으로 나가고, 다음에 오른쪽 다리 둘이 나갑니다. 몸이 좌우로 흔들립니다. 앤 이니스 대그의 1974년 연구에서 단봉낙타는 측대보를 늘 썼고 속보를 하는 모습은 보이지 않았습니다. 습보는 드물게 했고, 빨리 먼 거리를 갈 때는 측대보를 썼습니다. 다리가 긴 동물이 측대보를 쓰는 까닭으로는, 같은 쪽 뒷발과 앞발이 함께 나가서 서로 부딪히지 않는다는 설명이 나와 있습니다.
뜨지 않고 빨리 가기: 기린과 코끼리
서두른다고 모든 동물이 땅을 떠나지는 않습니다. 크리스토퍼 바수와 동료들은 남아프리카에서 자유롭게 다니는 기린을 드론으로 찍었습니다. 다 자란 기린은 초속 3.46.9 m, 약 1225 km/h 로 회전 습보를 썼고, 네 발이 모두 뜬 어른 기린은 없었습니다. 짧게 뜨는 모습은 어린 기린에게서만 보였습니다. 앞선 연구에서 잰 기린의 평보는 말과 같은 측방 순서 평보입니다.
코끼리는 가장 뚜렷한 예입니다. 존 허친슨과 동료들은 초속 6.8 m, 약 24 km/h 까지 움직이는 아시아코끼리를 쟀는데, 네 발이 모두 땅을 떠난 적은 한 번도 없었습니다. 그런데 이 속도에서 몸이 오르내리는 모양은 걷기보다 달리기에 가까웠습니다. 아시아코끼리와 아프리카코끼리를 함께 잰 뒤의 연구는 코끼리가 모든 속도에서 측방 순서를 지킨다는 것을 보였습니다. 모형에서 코끼리의 빠른 걸음은 듀티 팩터가 0.52이고, 그래프에 틈이 생기지 않습니다.
한 걸음에 공중 두 번: 개, 그레이하운드, 치타
말의 습보는 가로지르기 습보입니다. 발 딛는 차례가 한쪽에서 다른 쪽으로 건너갑니다. 왼뒤, 오뒤, 왼앞, 오앞입니다. 많은 개와 고양이는 다르게 달립니다. 회전 습보에서는 앞발이 뒷발과 반대 순서로 닿아서, 차례가 원을 그리며 돕니다. 왼뒤, 오뒤, 오앞, 왼앞입니다.
그레이하운드와 치타처럼 빠른 동물은 공중 구간이 하나 더 있습니다. 뒷발이 땅을 차고 나면 다리를 쭉 뻗은 채 날고, 앞발이 떨어지고 나면 다리를 몸 아래로 모은 채 다시 납니다. 잘 휘는 등이 뜰 때마다 늘어났다 말리며 보폭을 늘립니다. 치타의 습보를 골라 그래프에서 색칠된 틈 두 개를 찾아보세요. 앨런 윌슨의 연구진이 보츠와나의 야생 치타에 단 목걸이는 최고 초속 25.9 m, 약 93 km/h 를 기록했습니다. 제임스 어셔우드와 윌슨은 곡선 주로를 달리는 그레이하운드가 다리로 더 세게 밀어야 하는데도 속도를 유지한다는 것을 보였습니다. 다리가 낼 수 있는 힘이 그레이하운드의 최고 속도를 정하지는 않는다는 뜻입니다.
도약과 뜀뛰기: 토끼, 다람쥐, 캥거루
작은 동물은 다리 한 쌍이 함께 움직이는 걸음을 자주 씁니다. 도약에서는 뒷발 둘이 함께 닿고, 다음에 앞발 둘이 함께 닿아서 2박에 공중 구간이 두 번입니다. 메뉴의 토끼가 쓰는 반도약에서는 뒷발은 함께 닿지만 앞발은 하나씩 닿아서 3박이 됩니다. 힐데브랜드는 둘 다 습보처럼 비대칭 걸음으로 분류했습니다. 한 쌍의 왼쪽 다리와 오른쪽 다리가 한 걸음의 절반만큼 떨어져 움직이지 않기 때문입니다.
붉은캥거루는 이것을 끝까지 밀고 갑니다. 두 뒷다리가 하나처럼 움직여서, 뜀뛰기 한 번이 1박에 공중 구간 1번입니다. 테렌스 도슨과 리처드 테일러는 붉은캥거루를 러닝머신에 올려, 일단 뛰기 시작하면 더 빨리 뛰어도 1분에 쓰는 에너지가 늘지 않는다는 것을 알아냈습니다. 달리는 동물은 빨라질수록 에너지를 더 씁니다. 뒷다리의 긴 힘줄이 착지할 때마다 에너지를 모았다가 돌려줍니다.
두 발: 사람과 타조
걷는 사람은 늘 한 발이 땅에 있고, 발을 바꾸는 순간에는 두 발이 다 닿아 있습니다. 달리면 한 걸음에 공중 구간이 두 번 생깁니다. 발 하나가 땅을 찰 때마다 한 번입니다. 피터 웨이앤드와 동료들은 빠른 단거리 선수가 느린 선수보다 다리를 더 빨리 앞으로 휘두르는 것이 아니라, 땅을 더 세게 눌러서 한 걸음에 더 멀리 간다는 것을 보였습니다. 기록된 가장 빠른 100 m 는 2009년 베를린의 9.58초이고, 평균으로 바꾸면 37.58 km/h 입니다. 경주에서 사람 줄이 이 값입니다.
타조는 달리기와 뜨기가 서로 다른 일이라는 것을 보여 줍니다. 요나스 루벤손과 동료들은 러닝머신 위의 타조를 초속 0.8~6.7 m 에서 쟀습니다. 중간 속도에서는 공중 구간 없이 굽힌 다리로 튀듯이 달렸고, 늘 한 발이 땅에 있었습니다. 이것을 안 뜨는 달리기라고 부릅니다. 더 빠르면 짧은 공중 구간이 생겼습니다. 메뉴에 타조의 세 걸음이 다 있으니 비교해 보세요.
옆으로 벌린 다리: 악어와 도마뱀
악어와 도마뱀은 넓적다리와 위팔을 옆으로 벌리고 있습니다. 도마뱀은 속보로 걷습니다. 대각선 다리가 함께 움직이고 몸통은 좌우로 휩니다. 클레어 팔리와 팀 코는 속보하는 도마뱀에 걸리는 힘을 재어, 달리는 포유류와 같은 튀는 방식으로 에너지가 오간다는 것을 알아냈습니다. 악어는 보통 몸을 땅에서 들어 올린 채 높이 걷지만, 작은 악어는 습보로도 달립니다. 조지 주크는 1974년에 이것을 파충류에서 거의 알려지지 않은 걸음으로 기록했습니다. 모형은 이들의 다리도 다른 동물처럼 평면 안에서 그려서, 옆으로 벌린 모습은 넓은 자세로만 드러납니다.
다리가 앞으로 갈 때 접히는 이유
말의 앞다리가 앞으로 나갈 때를 보면, 사람들이 무릎이라고 부르는 관절에서 아랫부분이 뒤로 확 접힙니다. 이 관절은 사람의 손목에 해당합니다. 뒷다리의 비절은 발목이고, 뒷다리 위쪽에서 앞을 향한 관절인 후슬이 사람의 무릎입니다. 앞무릎과 비절 아래에는 근육이 거의 없습니다. 긴 관부 뼈 하나, 계부 뼈들, 그리고 말이 딛고 서 있는 발가락 하나의 발톱인 발굽뿐입니다.
근육을 위쪽에 모아 두면 다리 아래가 가벼워서 1초에 여러 번 앞으로 휘둘러도 힘이 덜 듭니다. 앞으로 갈 때 다리를 접으면 다리가 짧아져서 더 빨리 흔들 수 있고, 발굽이 땅에 걸리지도 않습니다. 모형도 그렇게 움직입니다. 걸음이 빠를수록 앞무릎과 비절이 더 많이 접힙니다. 「속 보기」를 켜면 피부 안의 뼈를 볼 수 있습니다.
어깨도 독특합니다. 말에게는 빗장뼈가 없어서 어깨뼈가 근육으로만 몸통에 붙어 있습니다. 「부품」 목록에서 어깨뼈를 고르면 갈비뼈에 기대어 있는 자리를 볼 수 있습니다.
머이브리지와 공중에 뜬 말
사진이 움직임을 멈춰 세우기 전에는 달리는 말을 앞다리는 앞으로, 뒷다리는 뒤로 쭉 뻗고 네 발이 모두 뜬 자세로 그리는 일이 많았습니다. 오늘날 플라잉 갤럽이라고 부르는 자세입니다. 말이 땅을 완전히 떠나기는 하는지, 떠난다면 어떤 자세인지는 실제로 논쟁거리였습니다.
과학박물관 그룹에 따르면 캘리포니아 주지사를 지냈고 센트럴 퍼시픽 철도 사장이던 릴런드 스탠퍼드가 1872년 사진가 에드워드 머이브리지에게 이 문제를 맡겼습니다. 1877년 머이브리지는 팰로앨토의 스탠퍼드 농장에서 작업을 다시 시작했고, 카메라 12대를 한 줄로 세워 말이 지나갈 때마다 전기로 셔터가 하나씩 열리게 했습니다. 과학박물관 그룹의 1882년 책 『The Horse in Motion』 기록은 말이 가는 실을 끊으며 셔터를 터뜨렸다고 설명합니다.
스틸먼의 1882년 책은 1878년 장치를 이렇게 적습니다. 팰로앨토에 있는 릴런드 스탠퍼드의 개인 경주로 서쪽에 건물을 세우고, 그 안에 카메라 12대를 21인치 간격으로 놓았으며, 카메라마다 셔터가 둘이었습니다. 한 장을 찍는 데 걸린 시간은 5천분의 1초를 넘지 않았다고 합니다. 모형 배경판의 세로줄도 같은 21인치 간격으로 그렸고, 조작 아래의 장면 띠도 같은 생각으로 한 걸음을 12장으로 나눕니다.
사진을 보니 달리는 말은 정말로 네 발을 한꺼번에 띄웠지만, 다리를 몸 아래로 모았을 때뿐이었습니다. 다리를 쭉 뻗었을 때는 적어도 한 발이 땅에 있었습니다. 칸 아카데미의 이 연작 해설은 그 뒤 플라잉 갤럽 자세가 그림과 경마 신문 삽화에서 사라졌다고 합니다.
머이브리지는 그 뒤 여러 동물과 사람의 움직임을 찍어 1887년 781장짜리 『Animal Locomotion』을 펴냈습니다. 팰로앨토 작업을 다룬 1882년 책은 스탠퍼드의 친구 J. D. B. 스틸먼이 썼고, 인터넷 아카이브에 전문이 있습니다.
말 품종과 그 품종의 걸음
말은 대부분 평보, 속보, 구보, 습보로 움직입니다. 어떤 품종은 여기에 자기만의 걸음을 하나 더 가지고 있고, 이런 말을 보법마(gaited horse)라고 부릅니다. 안데르손과 동료들은 2012년에 DMRT3 라는 유전자 하나의 변화가 이런 걸음을 가능하게 하고, 마차 경주의 속보에도 도움이 된다는 것을 찾았습니다. 프로메로바와 동료들은 이어서 141개 품종의 말 4,396마리를 조사해 68개 품종에서 이 변이를 찾았습니다. 변이 빈도가 50%를 넘는 품종은 모두 보법마이거나 마차 경주용으로 기른 품종이었습니다.
「말 품종과 걸음」에서 서러브레드부터 제주마까지 18개 품종 가운데 하나를 고르고, 그 품종의 걸음을 고를 수 있습니다. 무대의 말이 그 품종의 털 색을 입고 그 걸음으로 움직입니다. 표에는 걸음마다 LAP(뒷발이 닿은 뒤 같은 쪽 앞발이 닿기까지 걸리는 시간이 한 걸음에서 차지하는 비율), 디딤 비율, 출처가 적은 속도 범위가 나옵니다.
LAP 하나로 걸음이 깔끔하게 정리됩니다. 빈슬레트가 2023년에 이런 걸음을 정리한 논문에 따르면 평보는 0.25 가까이여서 네 발이 한 걸음의 4분의 1 간격으로 고르게 닿습니다. 속보는 0.5 로 대각선 두 발이 함께 닿고, 측대보는 0 가까이로 한쪽 두 발이 거의 함께 닿습니다. 보법마의 걸음은 모두 그 사이에 있습니다.
싱글풋 걸음: 퇼트, 랙, 러닝 워크
아이슬란드 말의 퇼트, 아메리칸 새들브레드와 래킹 호스의 랙, 테네시 워킹 호스의 러닝 워크는 모두 평보의 순서(왼뒤, 왼앞, 오뒤, 오앞)를 지킵니다. 고른 4박 걸음이라 싱글풋이라고도 부릅니다. 바뀌는 것은 속도와 발이 땅에 머무는 시간입니다.
집스와 동료들은 아이슬란드 말 23마리를 초속 2.9, 3.7, 4.7 m 의 퇼트로 달리게 해 쟀습니다. 정의대로 발 하나로 서는 순간과 발 둘로 서는 순간이 번갈아 왔지만, 가장 빠른 속도에서는 걸음의 60%가 4박 측대보로 바뀌어 있었습니다. 모형의 퇼트는 LAP 0.21, 디딤 비율 42%여서 땅에 닿은 발이 하나까지 줄지만 0이 되지는 않습니다.
빈슬레트는 러닝 워크의 LAP 를 0.23에서 0.17, 속도를 초속 2.24.0 m, 한 걸음 시간을 0.850.65초로 적습니다. 랙은 더 빨라서 초속 2.56.0 m, 경주마는 10.6 m 까지 가고 걸음도 더 잦습니다. 파소 피노의 클래식 피노는 아주 모은 랙입니다. 발걸음이 아주 작고 한 걸음이 0.350.39초이며 앞으로 거의 나아가지 않습니다. 페루비안 파소의 파소 야노는 러닝 워크의 한 형태입니다.
쪼갠 속보와 쪼갠 측대보
2박 걸음을 고르지 않은 4박으로 쪼갠 걸음도 있습니다. 미주리 폭스 트로터의 폭스 트롯에서는 대각선 두 다리가 함께 뜨지만 앞발이 뒷발보다 조금 먼저 닿아서 박자가 가까운 쌍으로 들립니다. 빈슬레트는 LAP 0.410.32, 초속 3.23.7 m 로 적습니다. 스테핑 페이스(쪼갠 측대보, 앰블)에서는 한쪽 두 발이 함께 뜨지만 뒷발이 먼저 닿고, LAP 는 0.180.13, 속도는 초속 2.96.2 m 입니다. 페루비안 파소의 소브레안단도도 쪼갠 측대보입니다.
브라질의 망갈라르가 마르샤도르는 마르샤를 두 가지로 걷습니다. 마르샤 바치다는 대각선 두 발로 서는 시간이, 마르샤 피카다는 같은 쪽 두 발로 서는 시간이 더 길고, 둘 다 세 발로 서는 순간이 있습니다. 시모나토와 동료들은 마르샤 바치다를 초속 3.34~3.85 m 에서 쟀습니다.
측대보 자체는 초속 3.58.1 m 의 2박 걸음이고, 경주용 측대보(플라잉 페이스)는 공중에 뜨는 순간을 두고 초속 10.514 m 까지 갑니다. 동아시아의 여러 품종이 측대보를 하는데, 제주마, 홋카이도 말, 몽골말이 그렇습니다.
걸음 편집기와 지지 면적
걸음 편집기에서는 걸음을 직접 만들 수 있습니다. 슬라이더 셋으로 왼앞발, 오른뒷발, 오른앞발이 왼뒷발 뒤 한 걸음의 몇 % 지점에서 닿을지 정하고, 넷째 슬라이더로 발이 땅에 머무는 비율을 정합니다. 「무대에서 달리기」를 누르면 그 걸음이 바로 말에 실립니다. 편집기는 도감에서 일치하는 걸음이나 가장 가까운 걸음의 이름을 알려 줍니다.
슬라이더 옆에는 위에서 본 발 그림이 있습니다. 땅에 닿은 발을 이어 지지 면적을 그리고, 이 모형에서 몸통 가운데보다 조금 앞에 둔 무게중심을 점으로 찍습니다. 발이 셋 이상 닿아 있고 점이 그 안에 있으면 말은 그 자세로 멈춰 서도 넘어지지 않습니다. 이것을 정적으로 안정하다고 합니다. 발이 둘이면 선 위에서 균형을 잡는 셈이라 계속 움직여야 합니다.
카트밀, 르믈랭, 슈미트는 이 생각으로 걷는 걸음들을 비교했습니다. 디딤 시간이 긴 느린 옆 순서 걷기는 한 걸음 대부분 동안 무게중심을 세 발이 만든 삼각형 안에 둡니다. 편집기에서 발마다 한 걸음의 80% 동안 땅에 있는 평보는 약 5분의 4 동안 안정합니다. 디딤 시간을 줄이면 안정한 비율이 떨어지고, 속보와 측대보에서는 안정한 순간이 아예 없어집니다. 빠른 걸음은 서 있는 균형이 아니라 움직임으로 버팁니다.
무거운 속보 동물: 하마와 코뿔소
하마는 가장 큰 육상 포유류에 속하지만 어떻게 걷는지 잘 알려져 있지 않았습니다. 허친슨과 프링글은 인터넷 영상과 동물원 하마 두 마리를 직접 찍은 영상으로 하마 32마리의 걸음 169번을 분석했습니다. 모두 속보이거나 속보에 가까웠습니다. 가장 빠를 때는 네 발이 모두 뜨는 짧은 순간이 있었고, 이것은 처음 보고된 것이었습니다. 비슷한 크기의 코끼리는 메뉴의 코끼리처럼 땅을 떠나지 않습니다.
영장류는 반대 순서로 걷습니다
포유류 대부분은 옆 순서로 걷습니다. 뒷발이 닿으면 같은 쪽 앞발이 뒤따릅니다. 영장류는 대부분 반대입니다. 왼뒷발이 닿은 다음 오른앞발이 닿는 대각 순서 걷기입니다. 힐데브랜드가 1967년에 이것을 기록했고, 메뉴의 침팬지, 고릴라, 개코원숭이가 이렇게 걷습니다.
영장류가 왜 이렇게 걷는지는 아직 논쟁 중입니다. 카트밀과 동료들은 앞발이 새 나뭇가지를 짚는 순간 뒷발이 몸 아래에 있어서 가는 가지 위에서 안정하다는 생각을 냈습니다. 샤피로와 레이클런은 어른보다 여러 걸음을 쓰는 새끼 개코원숭이로 이것을 시험했고, 그 기준으로는 옆 순서 걷기도 그만큼 안정하다는 결과를 얻었습니다. 폰처, 레이클런, 로드먼은 침팬지가 두 발로 걸을 때와 네 발로 걸을 때 에너지가 비슷하게 든다는 것을 찾았습니다.
새: 공중 구간 없이 달리기
새는 사람처럼 두 다리로 달리지만, 공중에 뜨지 않고도 달릴 수 있습니다. 게이츠와 비에너는 새와 사람을 비교해 새가 다리를 더 구부린 채 쓴다는 것을 찾았습니다. 메뉴의 타조는 루벤슨과 동료들이 잰 대로 두 방식을 다 씁니다. 중간 속도에서는 공중 구간 없이, 더 빠르면 짧게 뜨며 달립니다. 동물 다양성 웹은 에뮤가 초속 13.4 m 까지 속도를 유지할 수 있다고 적습니다.
병아리를 보면 이 가운데 얼마가 배워서 되는지 알 수 있습니다. 뮤어와 동료들은 병아리를 태어나서 2주 동안 쟀습니다. 갓 부화한 병아리도 달릴 수는 있었지만, 걸을 때 위치 에너지와 운동 에너지를 어른처럼 주고받지는 못했고 2주가 되자 그렇게 했습니다. 펭귄은 좌우로 뒤뚱거리며 걷습니다. 그리핀과 크램은 이 뒤뚱거림이 헛된 움직임이 아니라 걸음마다 에너지를 되찾는 데 도움이 된다는 것을 보였습니다.
파충류: 벌린 다리, 습보, 물 위 달리기
도마뱀은 다리를 옆으로 벌리고 몸통을 휘며 갑니다. 팔리와 고는 줄무늬도마뱀붙이와 스킨크를 쟀고, 둘 다 대각선 다리를 함께 움직이는 속보로 걸었습니다. 얼룩꼬리도마뱀은 가장 빠를 때 두 다리로 일어서 달리고, 어식과 제인은 그 두 발 달리기와 네 발 달리기를 비교했습니다.
악어류는 뜻밖입니다. 허친슨과 동료들은 15종 42마리를 초속 0.15~4.35 m 에서 찍었습니다. 크로커다일은 습보와 도약으로 달렸지만 앨리게이터는 그러지 않았습니다. 이 능력이 앨리게이터 계통에서 사라졌거나 크로커다일 계통에서 생겼다는 뜻입니다. 르누와 동료들은 어린 존스턴크로커다일의 습보를 자세히 기록했습니다.
바실리스크도마뱀은 뒷다리로 물 위를 달립니다. 글래신과 맥마흔이 그 방법을 보였습니다. 발로 물을 내리친 뒤 아래 뒤쪽으로 저어 물속에 공기 구멍을 만들고, 구멍이 닫히기 전에 발을 빼냅니다. 시에와 라우더는 어린 바실리스크가 물을 디딜 때의 힘을 재서 걸음마다 옆으로 크게 미는 힘이 있다는 것을 찾았고, 이 힘이 몸을 바로 세우는 데 도움이 될 수 있다고 보았습니다. 모형의 바실리스크는 같은 두 발 걸음으로 모래 위를 달립니다.
여섯 다리: 번갈아 딛는 삼각 걸음
곤충은 다리가 여섯이고, 대부분의 속도에서 삼각 두 벌로 걷습니다. 한쪽의 앞다리와 뒷다리가 반대쪽 가운데 다리와 함께 움직여서 늘 발 셋이 땅에 있습니다. 풀과 투는 이질바퀴가 초속 0.441.0 m 에서 이 삼각 걸음을 쓰는 것을 쟀습니다. 초속 1 m 를 넘으면 땅을 누르는 힘이 순간순간 0 가까이 떨어졌고, 초속 1.01.5 m(1초에 몸길이 약 50배)에서는 네 다리나 두 다리로 달렸습니다.
사막개미(카타글리피스 속)는 가장 빠른 곤충에 속합니다. 발, 페퍼, 비트링거는 카타글리피스 포르티스의 걷기와 달리기를 연구했고, 페퍼와 동료들은 다리가 더 짧은 사하라은개미가 1초에 40걸음 넘게, 발이 닿아 있는 시간을 7 ms 까지 줄이고, 다리를 초속 1.4 m 까지 휘둘러 이를 메운다는 것을 찾았습니다. 무대의 곤충은 크게 키워 보여 주고(판독 창에 배율이 나옵니다), 모형 속도도 같은 배율로 나눠 적습니다. 다리를 따라가려면 가장 느린 재생 속도를 고르세요.
경주와 기록표
동물을 8마리까지 골라 출발하세요. 동물마다 출처가 적은 최고 속도로 달립니다. 범위의 위쪽 값, 잰 최고 속도, 기록의 평균입니다. 경주용 서러브레드는 빈슬레트가 경마에 대해 적은 초속 17~19 m 의 위쪽 값인 19 m 로 달립니다. 경주가 끝나면 동물마다 100 m 기록이 이 브라우저의 기록표에 남고, 가장 빠른 10개가 나옵니다.
크다고 빠른 것은 아닙니다. 히르트와 동료들은 30 마이크로그램부터 100톤까지 474종의 최고 속도를 맞춰 보고 혹 모양의 곡선을 얻었습니다. 몸이 커질수록 빨라지다가 가장 큰 동물에서는 다시 느려집니다. 가속할 시간이 모자라기 때문입니다. 그래서 경주에서 코끼리는 뒤쪽에서 들어오고 중간 크기의 치타가 이깁니다.
직접 해 보기
조작 아래의 과제 19개는 무대 상태를 확인합니다. 어떤 과제는 동물을 알맞은 순간에 멈추라고 합니다. 말의 네 발이 모두 뜬 순간을 찾거나, 습보를 발 하나만 닿은 순간에 멈추는 것입니다. 어떤 과제는 무대가 답해 줄 수 있는 질문을 던집니다. 낙타가 빨리 갈 때 쓰는 걸음, 말의 가장 빠른 걸음, 빨리 가는 코끼리도 땅을 떠나는지입니다. 3박 걸음을 아무거나 무대에 띄우는 과제도 있습니다. 걸음 편집기를 쓰는 과제가 9개 있습니다. 평보, 속보, 낙타의 측대보를 다시 만들고, 도약이나 싱글풋 걸음을 만들고, 공중 구간이 있는 걸음, 늘 세 발이 땅에 있는 걸음, 한 걸음 내내 안정한 걸음, 공중 구간 없이 발 하나로 서는 순간이 있는 걸음을 만드는 것입니다. 보법마 품종이나 여섯 다리 동물을 무대에 올리는 과제도 있고, 마지막 과제는 경주를 시작하기 전에 우승자를 맞히는 것입니다.
경주는 출처에 있는 값만 씁니다. 범위의 위쪽 값, 잰 최고 속도, 세계 기록의 평균, 연구에서 잰 가장 빠른 속도입니다. 공정한 시합은 아닙니다. 타조의 러닝머신 한계는 최고 속도가 아니기 때문입니다. 표의 속도 칸이 각 줄이 어떤 값인지 알려 줍니다. 출처에 잰 속도가 없는 동물은 어림값을 주지 않고 경주에서 뺐습니다.
모형과 실제 동물이 다른 점
뼈대는 단순하게 했습니다. 말의 갈비뼈는 실제보다 적은 13쌍이고, 다리는 마디마다 뼈 하나뿐이지만 실제 말은 앞무릎과 비절에 작은 뼈가 여러 개 있습니다. 목과 머리는 몸통과 함께 움직입니다. 실제 말은 평보에서 균형을 잡으려고 머리와 목을 조금씩 위아래로 움직이고, 구보에서는 뒷다리가 몸 아래로 들어올 때 머리가 올라갔다가 리드 앞발이 닿을 때 가장 낮아집니다. 근육은 매끈한 덩어리로 만들었고 하나하나의 근육은 아닙니다.
다른 동물들은 같은 부품을 늘이고 색을 바꿔 만들었습니다. 영장류는 긴 말 얼굴 대신 둥근 머리와 짧은 주둥이를 달았고, 새와 펭귄은 서 있는 몸 하나를 크기에 맞춰 줄였으며, 곤충은 매끈한 몸 마디와 두 마디 다리로 따로 만들었습니다. 기린과 낙타는 목을 늘였고, 낙타에는 혹을, 코끼리에는 코와 큰 귀를, 치타에는 점무늬를 붙였습니다. 이들에게는 뼈대가 없고 얼굴도 단순합니다. 다리는 말과 같은 두 관절 방식으로 움직여서, 고양이나 개의 발이 실제보다 작은 발굽처럼 그려집니다.
움직임도 단순하게 했습니다. 걸음 주기, 듀티 팩터, 다리를 들 때 발의 높이는 출처의 걸음 설명에 맞춘 어림값이고 한 동물을 잰 값이 아닙니다. 다리는 평면 안에서 움직이고, 몸은 정해진 만큼만 오르내리며 앞뒤로 기웁니다. 실제 동물은 걸음마다 시간이 조금씩 다릅니다. 땅에 닿은 발은 모래에 대해 완전히 멈춰 있는데, 실제 발도 땅에 있는 동안 대부분 그렇습니다. 모형에서 걸음을 바꾸면 0.5초도 안 되어 한 방식이 다른 방식으로 넘어가지만, 실제 동물은 몇 걸음이 걸립니다.
자주 묻는 질문
말이 네 발을 모두 띄우는 순간이 있나요?
있습니다. 속보에서는 대각선 두 쌍 사이에 짧게, 구보와 습보에서는 한 걸음에 한 번 공중에 뜹니다. 머이브리지의 1878년 사진은 습보에서 그 순간 다리가 몸 아래로 모여 있다는 것을 보여 주었습니다.
평보는 왜 땅을 떠나지 않나요?
발마다 한 걸음의 절반보다 오래 땅에 있고, 네 번의 발 딛기가 한 걸음의 4분의 1씩 떨어져 있어서 늘 두세 발이 땅에 있습니다. 그래서 거친 땅에서도 평보는 안정적입니다.
구보와 습보의 리드는 무엇인가요?
앞다리와 뒷다리가 더 앞으로 나가는 쪽입니다. 오른발 리드에서는 한 걸음마다 오른앞발이 마지막에 닿습니다. 말은 곡선에서 보통 안쪽 다리로 리드하고, 공중에 뜬 순간에 리드를 바꿀 수 있습니다.
속보가 구보보다 빠른가요?
꼭 그렇지는 않습니다. 몬태나 주립대는 속보를 시속 710마일, 구보를 시속 610마일로 적어서 범위가 겹칩니다. 마차 경주마는 보통 구보보다 훨씬 빠르게 속보를 하도록 길러지고 훈련됩니다.
말은 얼마나 빨리 달리나요?
몬태나 주립대는 평균 습보를 시속 1220마일, 약 1932 km/h 로 적습니다. 경주용 품종은 짧은 거리에서 더 빠르고, 아이슬란드 말의 측대보는 시속 40마일까지 낸다고 합니다.
화가들은 왜 습보를 잘못 그렸나요?
다리가 너무 빨라서 눈으로는 자세를 하나하나 가를 수 없습니다. 화가들은 가장 빨라 보이는, 네 다리를 쭉 뻗은 자세를 그렸습니다. 1878년 사진은 다리를 뻗은 자세에서는 늘 한 발이 땅에 있다는 것을 보여 주었습니다.
속보와 측대보는 어떻게 다른가요?
둘 다 2박입니다. 속보는 대각선 다리가 함께, 측대보는 같은 쪽 두 다리가 함께 움직입니다. 스탠더드브레드를 골라 그래프에서 비교해 보세요.
어떤 동물이 측대보를 하나요?
이 전시에서는 낙타, 스탠더드브레드, 아이슬란드 말입니다. 대그는 단봉낙타가 측대보를 늘 쓰고 속보는 하지 않는다는 것을 알아냈습니다.
코끼리도 달리나요?
달리기를 어떻게 정의하느냐에 달려 있습니다. 초속 6.8 m 까지 잰 코끼리는 네 발이 모두 뜬 적이 없지만, 그 속도에서 몸은 달리는 동물처럼 튀었습니다.
치타는 왜 한 걸음에 두 번 뜨나요?
습보에서 뒷다리 한 쌍과 앞다리 한 쌍이 각각 땅을 차고, 쌍마다 그 뒤에 공중 구간이 옵니다. 등이 함께 굽었다 펴지며 보폭을 늘립니다.
작은 동물은 왜 다리를 그렇게 빨리 움직이나요?
짧은 다리는 짧은 진자처럼 더 빨리 흔들립니다. 헤글런드와 테일러는 비슷한 정도의 속도에서 생쥐가 말보다 1초에 훨씬 많은 걸음을 걷는다는 것을 보였습니다.
판독 창의 실제 속도와 모형 속도는 왜 다른가요?
모형의 발은 실제 동물보다 몸 아래에서 짧은 거리를 쓸고 가서, 한 걸음에 가는 거리가 짧습니다. 출처를 따른 것은 발 딛는 시간이고, 판독 창은 실제 값과 모형 값을 나란히 보여 줍니다.
보법마는 무엇인가요?
평보, 속보, 구보, 습보 말고도 타고난 걸음이 하나 더 있는 말입니다. 대개 퇼트, 랙, 러닝 워크 같은 고른 4박 걸음이나 측대보입니다. 보법마 품종 대부분은 안데르손과 동료들이 2012년에 찾은 DMRT3 유전자 변이를 가지고 있습니다.
퇼트는 무엇인가요?
아이슬란드 말의 4박 걸음으로, 평보와 같은 순서로 발을 딛습니다. 공중에 뜨는 순간이 없고 한 번에 발 하나나 둘로 서기 때문에 기수가 거의 튀지 않습니다. 집스와 동료들은 초속 2.9~4.7 m 에서 쟀습니다.
랙과 러닝 워크는 어떻게 다른가요?
둘 다 평보 순서의 고른 4박 걸음입니다. 빈슬레트의 정리에 따르면 러닝 워크는 뒷발을 길게 내딛는 늘인 평보이고 초속 2.24.0 m 입니다. 랙은 걸음이 더 잦고 빨라서 초속 2.56.0 m 이며, 뒷발 걸음이 짧고 튀는 듯한 움직임이 있습니다.
하마도 습보를 하나요?
허친슨과 프링글이 분석한 하마의 걸음 169번에서 습보는 없었습니다. 하마는 어느 속도에서나 속보를 쓰고, 가장 빠를 때 네 발이 모두 뜨는 짧은 순간이 있습니다.
영장류는 왜 대각 순서로 걷나요?
아직 확실하지 않습니다. 손이 새 나뭇가지를 짚는 순간 뒷발을 몸 아래에 두기 위해서라는 생각이 있지만, 새끼 개코원숭이로 한 시험에서 답이 나지는 않았습니다.
곤충도 달리나요?
네. 풀과 투가 잰 이질바퀴는 초속 1 m 를 넘으면 삼각 걸음에서도 땅을 누르는 힘이 거의 없는 순간이 생기고, 초속 1.0~1.5 m 에서는 네 다리나 두 다리로 달립니다.
걸음 소리를 들을 수 있나요?
「발굽 소리」를 켜세요. 발이 닿을 때마다 딸깍 소리가 나고, 앞발이 더 높은 소리입니다. 평보에서는 고른 소리 네 번, 속보에서는 두 번, 구보에서는 세 번에 쉼이 들립니다.
용어
- 걸음: 걸음마다 되풀이되는 다리 움직임의 방식. 평보, 속보 같은 것입니다.
- 박자: 발 하나가 땅을 치는 것, 또는 같은 순간에 닿는 여러 발.
- 한 걸음: 다리 움직임의 한 주기. 어떤 발이 닿은 때부터 같은 발이 다시 닿을 때까지입니다.
- 듀티 팩터: 한 걸음 가운데 발이 땅에 있는 비율.
- 공중 구간: 한 걸음 가운데 발이 하나도 땅에 닿지 않은 순간.
- 리드: 구보와 습보에서 다리가 마지막에 닿고 가장 앞으로 나가는 쪽.
- 측대보: 같은 쪽 두 다리가 함께 움직이는 2박 걸음.
- 측방 순서: 평보처럼 뒷발 다음에 같은 쪽 앞발이 닿는 발 딛는 순서.
- 가로지르기 습보: 말처럼 발 딛는 차례가 한쪽에서 다른 쪽으로 건너가는 습보.
- 회전 습보: 개와 치타처럼 앞발이 뒷발과 반대 순서로 닿는 습보.
- 도약: 뒷발 둘이 함께 닿고 이어서 앞발 둘이 함께 닿는 걸음.
- 안 뜨는 달리기: 타조가 중간 속도에서 쓰는, 공중 구간 없이 튀는 걸음.
- 프루드 수: 속도의 제곱을 중력 가속도와 다리 길이의 곱으로 나눈 값. 크기가 다른 동물을 견줄 때 씁니다.
- 발 디딤 그래프: 다리마다 한 줄씩, 발이 땅에 있는 때를 표시한 그림.
- 관부 뼈: 앞무릎이나 비절과 구절 사이의 긴 뼈.
- 비절: 사람의 발목에 해당하는 뒷다리 관절.
- 기갑: 어깨뼈 위, 등에서 가장 높은 곳.
- 보법마: 퇼트, 랙, 러닝 워크, 측대보 같은 걸음을 하나 더 타고난 말.
- LAP(측방 선행 착지): 뒷발이 닿은 뒤 같은 쪽 앞발이 닿기까지 걸리는 시간이 한 걸음에서 차지하는 비율. 고른 4박은 0.25, 속보는 0.5 입니다.
- 싱글풋: 평보 순서로 딛는 고른 4박 걸음. 퇼트, 랙, 러닝 워크가 여기에 듭니다.
- 쪼갠 속보, 쪼갠 측대보: 대각선 쌍(폭스 트롯)이나 같은 쪽 쌍(스테핑 페이스)이 조금 어긋나게 닿는 4박 걸음.
- 대각 순서: 뒷발 다음에 반대쪽 앞발이 닿는 순서. 영장류 대부분이 이렇게 걷습니다.
- 삼각 걸음: 한쪽의 앞다리와 뒷다리가 반대쪽 가운데 다리와 함께 움직이는 곤충의 걸음.
- 지지 면적: 위에서 보았을 때 땅에 닿은 발들이 이루는 테두리.
- 정적 안정: 무게중심이 지지 면적 안에 있어서 그 자세로 멈춰도 넘어지지 않는 상태.
출처
- Montana State University Extension, Horse Locomotion. https://animalrangeextension.montana.edu/equine/locomotion.html (2026년 10월 18일 확인)
- Hildebrand, M. (1965). Symmetrical gaits of horses. Science 150, 701-708. https://doi.org/10.1126/science.150.3697.701 (2026년 10월 18일 확인)
- Hildebrand, M. (1989). The quadrupedal gaits of vertebrates. BioScience 39, 766-775. https://doi.org/10.2307/1311182 (2026년 10월 18일 확인)
- Hoyt, D. F. and Taylor, C. R. (1981). Gait and the energetics of locomotion in horses. Nature 292, 239-240. https://doi.org/10.1038/292239a0 (2026년 10월 18일 확인)
- Heglund, N. C. and Taylor, C. R. (1988). Speed, stride frequency and energy cost per stride: how do they change with body size and gait? Journal of Experimental Biology 138, 301-318. https://doi.org/10.1242/jeb.138.1.301 (2026년 10월 18일 확인)
- Alexander, R. McN. and Jayes, A. S. (1983). A dynamic similarity hypothesis for the gaits of quadrupedal mammals. Journal of Zoology 201, 135-152. https://doi.org/10.1111/j.1469-7998.1983.tb04266.x (2026년 10월 18일 확인)
- Alexander, R. McN. (1989). Optimization and gaits in the locomotion of vertebrates. Physiological Reviews 69, 1199-1227. https://doi.org/10.1152/physrev.1989.69.4.1199 (2026년 10월 18일 확인)
- Robilliard, J. J., Pfau, T. and Wilson, A. M. (2007). Gait characterisation and classification in horses. Journal of Experimental Biology 210, 187-197. https://doi.org/10.1242/jeb.02611 (2026년 10월 18일 확인)
- Dagg, A. I. (1974). The locomotion of the camel (Camelus dromedarius). Journal of Zoology 174, 67-78. https://doi.org/10.1111/j.1469-7998.1974.tb03144.x (2026년 10월 18일 확인)
- Basu, C. K., Deacon, F., Hutchinson, J. R. and Wilson, A. M. (2019). The running kinematics of free-roaming giraffes, measured using a low cost unmanned aerial vehicle (UAV). PeerJ 7, e6312. https://doi.org/10.7717/peerj.6312 (2026년 10월 18일 확인)
- Basu, C., Wilson, A. M. and Hutchinson, J. R. (2019). The locomotor kinematics and ground reaction forces of walking giraffes. Journal of Experimental Biology 222, jeb159277. https://doi.org/10.1242/jeb.159277 (2026년 10월 18일 확인)
- Hutchinson, J. R., Famini, D., Lair, R. and Kram, R. (2003). Are fast-moving elephants really running? Nature 422, 493-494. https://doi.org/10.1038/422493a (2026년 10월 18일 확인)
- Hutchinson, J. R. et al. (2006). The locomotor kinematics of Asian and African elephants: changes with speed and size. Journal of Experimental Biology 209, 3812-3827. https://doi.org/10.1242/jeb.02443 (2026년 10월 18일 확인)
- Wilson, A. M. et al. (2013). Locomotion dynamics of hunting in wild cheetahs. Nature 498, 185-189. https://doi.org/10.1038/nature12295 (2026년 10월 18일 확인)
- Usherwood, J. R. and Wilson, A. M. (2005). No force limit on greyhound sprint speed. Nature 438, 753-754. https://doi.org/10.1038/438753a (2026년 10월 18일 확인)
- Dawson, T. J. and Taylor, C. R. (1973). Energetic cost of locomotion in kangaroos. Nature 246, 313-314. https://doi.org/10.1038/246313a0 (2026년 10월 18일 확인)
- Rubenson, J., Heliams, D. B., Lloyd, D. G. and Fournier, P. A. (2004). Gait selection in the ostrich: mechanical and metabolic characteristics of walking and running with and without an aerial phase. Proceedings of the Royal Society B 271, 1091-1099. https://doi.org/10.1098/rspb.2004.2702 (2026년 10월 18일 확인)
- Weyand, P. G. et al. (2000). Faster top running speeds are achieved with greater ground forces not more rapid leg movements. Journal of Applied Physiology 89, 1991-1999. https://doi.org/10.1152/jappl.2000.89.5.1991 (2026년 10월 18일 확인)
- World Athletics, World records, 남자 100 m, 9.58초(베를린, 2009년 8월 16일). https://worldathletics.org/records/by-category/world-records (2026년 10월 18일 확인)
- Lindstedt, S. L. et al. (1991). Running energetics in the pronghorn antelope. Nature 353, 748-750. https://doi.org/10.1038/353748a0 (2026년 10월 18일 확인)
- Herbin, M. et al. (2007). Gait parameters of treadmill versus overground locomotion in mouse. Behavioural Brain Research 181, 173-179. https://doi.org/10.1016/j.bbr.2007.04.001 (2026년 10월 18일 확인)
- Zug, G. R. (1974). Crocodilian galloping: an unique gait for reptiles. Copeia 1974, 550-552. https://doi.org/10.2307/1442557 (2026년 10월 18일 확인)
- Farley, C. T. and Ko, T. C. (1997). Mechanics of locomotion in lizards. Journal of Experimental Biology 200, 2177-2188. https://doi.org/10.1242/jeb.200.16.2177 (2026년 10월 18일 확인)
- Science Museum Group Collection, The Horse in Motion (J. D. B. 스틸먼이 쓰고 에드워드 머이브리지가 찍은 책, 1882). https://collection.sciencemuseumgroup.org.uk/objects/co8452654/the-horse-in-motion (2026년 10월 16일 확인)
- Science Museum Group Collection, Eadweard Muybridge. https://collection.sciencemuseumgroup.org.uk/people/ap28178/muybridge-eadweard (2026년 10월 16일 확인)
- Khan Academy (Smarthistory), Eadweard Muybridge, The Horse in Motion. https://www.khanacademy.org/humanities/becoming-modern/early-photo/early-photo-france/a/eadweard-muybridge-the-horse-in-motion (2026년 10월 16일 확인)
- Internet Archive, J. D. B. Stillman, The Horse in Motion as Shown by Instantaneous Photography (1882). https://archive.org/details/horseinmotionass00stilrich (2026년 10월 16일 확인)
- Vincelette, A. (2023). The characteristics, distribution, function, and origin of alternative lateral horse gaits. Animals 13, 2557. https://doi.org/10.3390/ani13162557 (2026년 10월 26일 확인)
- Zips, S., Peham, C., Scheidl, M., Licka, T. and Girtler, D. (2001). Motion pattern of the toelt of Icelandic horses at different speeds. Equine Veterinary Journal 33 (S33), 109-111. https://doi.org/10.1111/j.2042-3306.2001.tb05371.x (2026년 10월 26일 확인)
- Nicodemus, M. C. and Clayton, H. M. (2003). Temporal variables of four-beat, stepping gaits of gaited horses. Applied Animal Behaviour Science 80, 133-142. https://doi.org/10.1016/S0168-1591(02)00219-8 (2026년 10월 26일 확인)
- Nicodemus, M. C. and Slater, J. K. (2009). Forelimb kinematics of the flat walk and fox trot of the Missouri Fox Trotter. Comparative Exercise Physiology 6, 149-156. https://doi.org/10.1017/S1755254010000048 (2026년 10월 26일 확인)
- Simonato, S. P. et al. (2021). 3D kinematic of the thoracolumbar spine in Mangalarga Marchador horses performing the marcha batida gait and being led by hand. PLOS ONE 16, e0253697. https://doi.org/10.1371/journal.pone.0253697 (2026년 10월 26일 확인)
- Andersson, L. S. et al. (2012). Mutations in DMRT3 affect locomotion in horses and spinal circuit function in mice. Nature 488, 642-646. https://doi.org/10.1038/nature11399 (2026년 10월 26일 확인)
- Promerová, M. et al. (2014). Worldwide frequency distribution of the 'Gait keeper' mutation in the DMRT3 gene. Animal Genetics 45, 274-282. https://doi.org/10.1111/age.12120 (2026년 10월 26일 확인)
- Paso Fino Horse Association, The gaits. https://pfha.org/the-breed/the-gaits/ (2026년 10월 26일 확인)
- Full, R. J. and Tu, M. S. (1991). Mechanics of a rapid running insect: two-, four- and six-legged locomotion. Journal of Experimental Biology 156, 215-231. https://doi.org/10.1242/jeb.156.1.215 (2026년 10월 26일 확인)
- Wahl, V., Pfeffer, S. E. and Wittlinger, M. (2015). Walking and running in the desert ant Cataglyphis fortis. Journal of Comparative Physiology A 201, 645-656. https://doi.org/10.1007/s00359-015-0999-2 (2026년 10월 26일 확인)
- Pfeffer, S. E., Wahl, V. L., Wittlinger, M. and Wolf, H. (2019). High-speed locomotion in the Saharan silver ant, Cataglyphis bombycina. Journal of Experimental Biology 222, jeb198705. https://doi.org/10.1242/jeb.198705 (2026년 10월 26일 확인)
- Hsieh, S. T. and Lauder, G. V. (2004). Running on water: three-dimensional force generation by basilisk lizards. PNAS 101, 16784-16788. https://doi.org/10.1073/pnas.0405736101 (2026년 10월 26일 확인)
- Glasheen, J. W. and McMahon, T. A. (1996). A hydrodynamic model of locomotion in the basilisk lizard. Nature 380, 340-342. https://doi.org/10.1038/380340a0 (2026년 10월 26일 확인)
- Irschick, D. J. and Jayne, B. C. (1999). Comparative three-dimensional kinematics of the hindlimb for high-speed bipedal and quadrupedal locomotion of lizards. Journal of Experimental Biology 202, 1047-1065. https://doi.org/10.1242/jeb.202.9.1047 (2026년 10월 26일 확인)
- Renous, S., Gasc, J.-P., Bels, V. L. and Wicker, R. (2002). Asymmetrical gaits of juvenile Crocodylus johnstoni, galloping Australian crocodiles. Journal of Zoology 256, 311-325. https://doi.org/10.1017/S0952836902000353 (2026년 10월 26일 확인)
- Hutchinson, J. R. et al. (2019). Divergent evolution of terrestrial locomotor abilities in extant Crocodylia. Scientific Reports 9, 19302. https://doi.org/10.1038/s41598-019-55768-6 (2026년 10월 26일 확인)
- Hutchinson, J. R. and Pringle, E. V. (2024). Footfall patterns and stride parameters of Common hippopotamus (Hippopotamus amphibius) on land. PeerJ 12, e17675. https://doi.org/10.7717/peerj.17675 (2026년 10월 26일 확인)
- Gatesy, S. M. and Biewener, A. A. (1991). Bipedal locomotion: effects of speed, size and limb posture in birds and humans. Journal of Zoology 224, 127-147. https://doi.org/10.1111/j.1469-7998.1991.tb04794.x (2026년 10월 26일 확인)
- Griffin, T. M. and Kram, R. (2000). Penguin waddling is not wasteful. Nature 408, 929. https://doi.org/10.1038/35050167 (2026년 10월 26일 확인)
- Muir, G. D., Gosline, J. M. and Steeves, J. D. (1996). Ontogeny of bipedal locomotion: walking and running in the chick. Journal of Physiology 493, 589-601. https://doi.org/10.1113/jphysiol.1996.sp021406 (2026년 10월 26일 확인)
- Pontzer, H., Raichlen, D. A. and Rodman, P. S. (2014). Bipedal and quadrupedal locomotion in chimpanzees. Journal of Human Evolution 66, 64-82. https://doi.org/10.1016/j.jhevol.2013.10.002 (2026년 10월 26일 확인)
- Hildebrand, M. (1967). Symmetrical gaits of primates. American Journal of Physical Anthropology 26, 119-130. https://doi.org/10.1002/ajpa.1330260203 (2026년 10월 26일 확인)
- Shapiro, L. J. and Raichlen, D. A. (2004). Lateral sequence walking in infant Papio cynocephalus. American Journal of Physical Anthropology 126, 205-213. https://doi.org/10.1002/ajpa.20049 (2026년 10월 26일 확인)
- Cartmill, M., Lemelin, P. and Schmitt, D. (2002). Support polygons and symmetrical gaits in mammals. Zoological Journal of the Linnean Society 136, 401-420. https://doi.org/10.1046/j.1096-3642.2002.00038.x (2026년 10월 26일 확인)
- Biewener, A. A. (1983). Allometry of quadrupedal locomotion: the scaling of duty factor, bone curvature and limb orientation to body size. Journal of Experimental Biology 105, 147-171. https://doi.org/10.1242/jeb.105.1.147 (2026년 10월 26일 확인)
- Garland, T. (1983). The relation between maximal running speed and body mass in terrestrial mammals. Journal of Zoology 199, 157-170. https://doi.org/10.1111/j.1469-7998.1983.tb02087.x (2026년 10월 26일 확인)
- Hirt, M. R., Jetz, W., Rall, B. C. and Brose, U. (2017). A general scaling law reveals why the largest animals are not the fastest. Nature Ecology & Evolution 1, 1116-1122. https://doi.org/10.1038/s41559-017-0241-4 (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Eudorcas thomsonii (톰슨가젤). https://animaldiversity.org/accounts/Eudorcas_thomsonii/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Odocoileus virginianus (흰꼬리사슴). https://animaldiversity.org/accounts/Odocoileus_virginianus/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Alces alces (말코손바닥사슴). https://animaldiversity.org/accounts/Alces_alces/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Bison bison (아메리카들소). https://animaldiversity.org/accounts/Bison_bison/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Canis lupus (회색늑대). https://animaldiversity.org/accounts/Canis_lupus/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Vulpes vulpes (붉은여우). https://animaldiversity.org/accounts/Vulpes_vulpes/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Lycaon pictus (아프리카들개). https://animaldiversity.org/accounts/Lycaon_pictus/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Crocuta crocuta (점박이하이에나). https://animaldiversity.org/accounts/Crocuta_crocuta/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Procyon lotor (미국너구리). https://animaldiversity.org/accounts/Procyon_lotor/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Dromaius novaehollandiae (에뮤). https://animaldiversity.org/accounts/Dromaius_novaehollandiae/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Struthio camelus (타조). https://animaldiversity.org/accounts/Struthio_camelus/ (2026년 10월 26일 확인)
- 미시간 대학교 동물학 박물관, Animal Diversity Web, Macropus rufus (붉은캥거루). https://animaldiversity.org/accounts/Macropus_rufus/ (2026년 10월 26일 확인)
함께 보면 좋은 전시
공룡 크기 비교로 보는 실제 크기 선사 동물 172종
첫 공룡부터 티라노사우루스까지, 선사 시대 동물 172종을 실제 크기로 시대 순서대로 세운 600 m 공원입니다.
실제 크기 빙하기 동물 사이를 걷기
털매머드부터 검치호랑이까지 마지막 빙기 동물 65종을 실제 크기로 세운 600 m 공원입니다. 시대 슬라이더로 5만 년을 오갑니다.
인류 진화 걷기
루시의 키는 약 1.1 m 였습니다. 700만 년 동안의 사람 종을 실제 크기로, 내 키와 나란히 보며 걸어 봅니다.
진자시계 원리: 탈진기는 왜 째깍거릴까
진자시계는 길이 99.4 cm 막대 하나로 1초를 셉니다. 진자 길이와 온도, 놓인 곳을 바꾸고 탈진기 네 가지를 갈아 끼우면서 하루에 몇 초가 틀어지는지 확인할 수 있습니다.
풍차와 물레방아는 어떻게 움직일까
네덜란드 풍차 날개는 8층 건물 높이만큼 넓지만, 초속 7 m 바람에서 바람이 가진 힘의 5분의 1 쯤만 가져갑니다.
자판기는 동전을 어떻게 알아볼까
100원은 자석에 붙지 않습니다. 그런데 자판기 속 자석이 바로 100원과 구리 가짜를 가려냅니다.