FIG. 54Promenades
Promenade dans une cellule : animale, végétale et bactérie
Agrandie un million de fois, une mitochondrie a à peu près la taille d’un canapé, une bactérie E. coli entière mesure 2 m et la kinésine qui remorque une vésicule à côté de vous marche à 0,8 mètre par seconde.
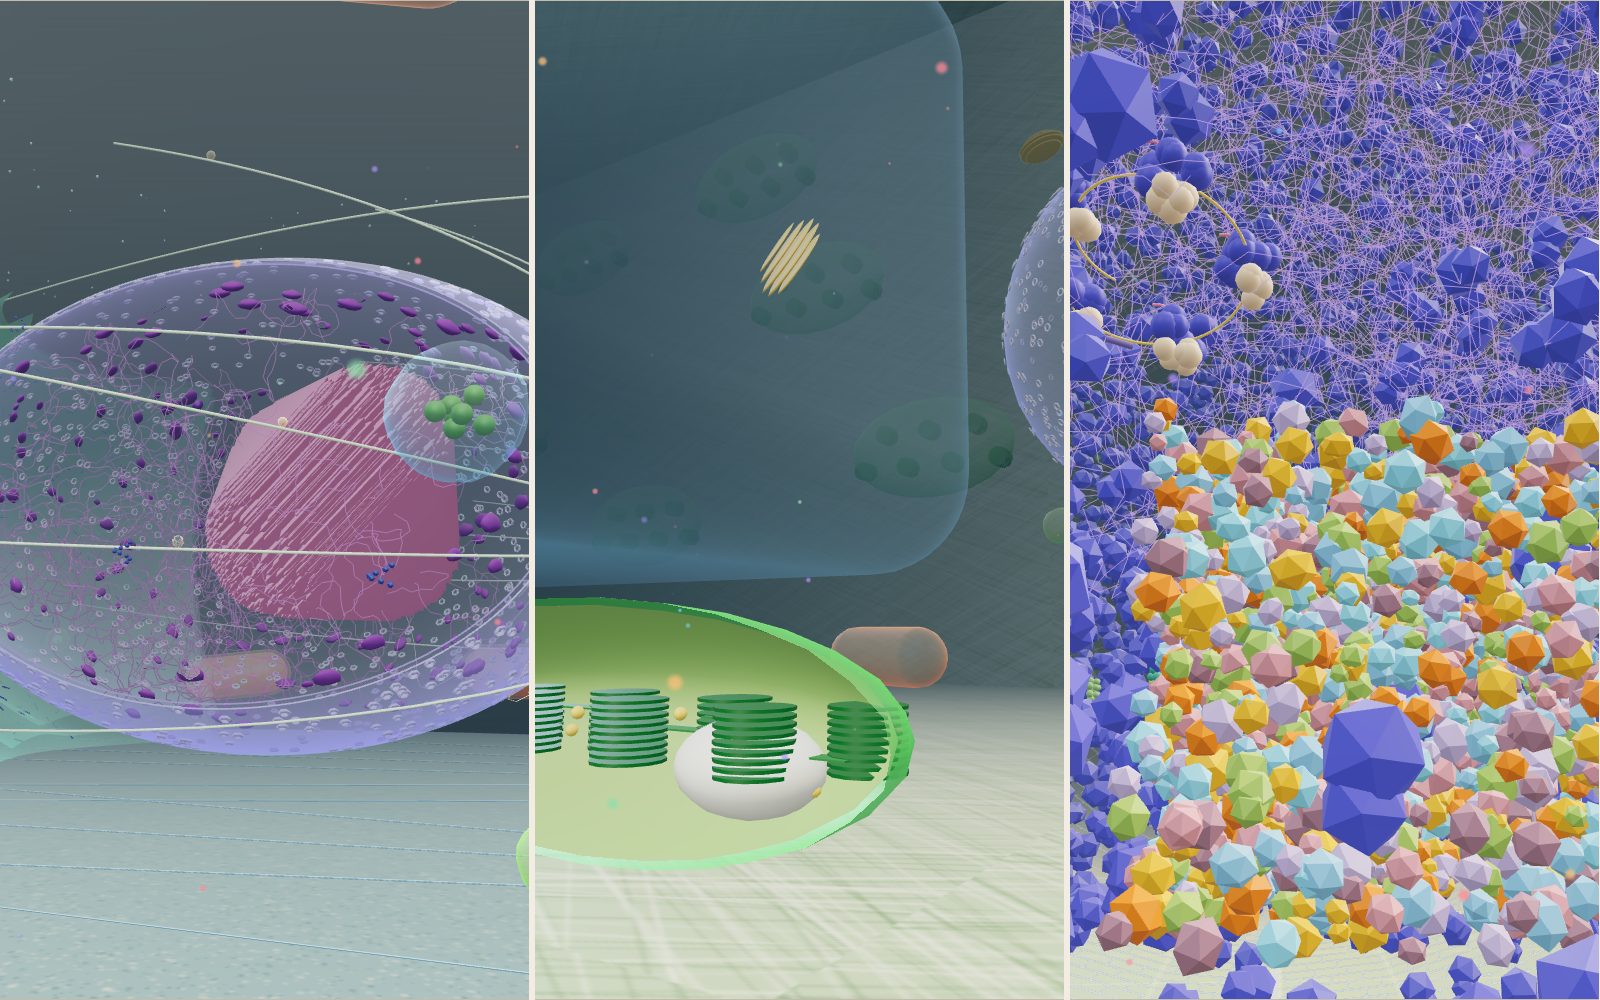
Cet appareil ne peut pas afficher le modèle 3D. Les étapes de la visite ci-dessous se lisent sous forme de texte.
1 / 14 Une cellule un million de fois plus grandeVous êtes debout sur la membrane du fond d’une cellule agrandie un million de fois, si bien que vos yeux sont à 1,6 µm au-dessus d’elle. Déplacez-vous avec WASD, les flèches ou le joystick, montez ou descendez avec R et F ou les flèches de droite. Le noyau devant vous a une fenêtre. Le bouton « Guide » en haut à droite liste 78 choses à visiter.
Faites glisser pour tourner. Molette ou pincement pour zoomer.
Où vous vous trouvez
Une cellule est trop petite pour qu’on se la représente. Le dessin habituel des manuels scolaires place le noyau, quelques mitochondries et quelques lignes ondulées de réticulum dans un cercle, tous à peu près de la même taille et flottant dans le vide. Cette exposition prend une cellule animale, l’agrandit un million de fois et vous laisse vous y promener à hauteur d’yeux ordinaire. Tout est dessiné aux tailles mesurées dans de vraies cellules : une mitochondrie est une capsule sur laquelle vous pourriez vous asseoir et un ribosome une perle sombre de la taille d’une grosse bille.
La cellule a la forme d’une cellule étalée sur une lame de verre : un dôme bas de 30 µm de long, 24 µm de large et 8 µm de haut au milieu. Vous partez de son sol, la partie de la membrane plasmique collée au verre. Le noyau occupe le centre, avec le réticulum rugueux enroulé autour de son côté gauche et la pile de Golgi à sa droite. Mitochondries et lysosomes sont dispersés tout autour, les microtubules partent en éventail d’un point voisin du noyau, et de petites vésicules les empruntent pour rejoindre le bord de la cellule.
Pourquoi le modèle est un million de fois plus grand
Le choix évident serait d’agrandir la cellule juste assez pour que votre corps y tienne. Un grossissement de 100 000 ne suffit pas. À cette échelle, une cellule de 20 µm devient une bulle de 2 m, et le noyau serait plus petit que votre tête. Une personne de 1,6 m représenterait 16 µm, plus que la hauteur de la cellule entière.
Avec un grossissement de 1 000 000, les nombres deviennent faciles à lire. Un mètre dans le modèle correspond à un micromètre dans la cellule, et un millimètre à un nanomètre. Vos yeux, à 1,6 m, représentent 1,6 µm. L’encadré d’échelle en haut à gauche l’indique, et sa barre est redessinée pour ce qui se trouve droit devant vous. Si vous regardez un mur à 3 m, la barre montre la longueur apparente de 1 µm à cette distance.
Les tailles dans le modèle
Voici les principales parties et les tailles auxquelles elles sont construites. Les valeurs réelles sont des fourchettes, car les cellules varient d’un type à l’autre.
| Partie | Taille réelle | Taille dans le modèle |
|---|---|---|
| Cellule entière (étalée sur verre) | 20 à 40 µm | 30 × 24 × 8 m |
| Noyau | 2 à 10 µm | 9 × 6 × 7,6 m |
| Mitochondrie | environ 1 µm de large, 2 µm de long | 0,84 à 1 m de large, 2 à 2,8 m de long |
| Lysosome | 0,1 à 1,2 µm | 0,5 à 0,7 m |
| Pore nucléaire | environ 120 nm | 12 cm |
| Microtubule | 25 nm de large | 2,5 cm de large |
| Ribosome | 25 à 30 nm | environ 2,8 cm |
| Tube de réticulum lisse | 30 à 100 nm | 6 cm |
| Membrane plasmique | 4 à 10 nm d’épaisseur | 4 à 10 mm d’épaisseur |
| Pas de kinésine | 8 nm | 8 mm |
Le volume de la cellule est d’environ 3000 µm³. Cell Biology by the Numbers retient 2000 µm³ comme ordre de grandeur pour une cellule humaine, la plupart se situant entre 500 et 4000 µm³, et utilise 3000 µm³ pour une cellule de mammifère typique dans ses exemples chiffrés. Les cellules HeLa étalées sur une lame atteignent environ 40 µm de large tout en ne mesurant que quelques micromètres de haut, d’où le dôme bas du modèle plutôt qu’une boule.
Vérifier vous-même quelques nombres
Placez-vous à côté de la mitochondrie ouverte, près du départ. Elle mesure 1 m de large, son sommet est donc un peu plus bas que vos yeux. Dans la vraie cellule, cela fait 1 µm, environ un centième de l’épaisseur d’un cheveu.
La membrane est la partie la plus difficile à voir. Avec ses 4 à 10 nm, elle fait 4 à 10 mm dans le modèle, à peu près l’épaisseur d’un crayon, autour d’une salle de 30 m de long. Cell Biology by the Numbers la compare à la peau d’un avion rapportée à la largeur de son fuselage. C’est pourquoi un morceau de la paroi de droite est dessiné 20 fois plus épais que le reste. Dans ce morceau, chaque tête de lipide mesure 16 mm au lieu de 0,8 mm, et vous pouvez compter les deux couches.
L’ADN du noyau est le nombre qui ne tient pas du tout. Une cellule humaine contient environ 2 m d’ADN (deux copies d’un génome d’environ 3 milliards de paires de bases, à 0,3 nm par paire de bases). Dans le modèle, cela ferait 2000 km de fil tassés dans une boule de 9 m de long. Les fils violets que vous voyez par la fenêtre sont un petit échantillon dessiné pour montrer la texture.
La membrane en coupe
Un phospholipide possède une tête qui se mélange à l’eau et deux queues qui la fuient. Dans l’eau, les queues s’en protègent en s’alignant queue contre queue, ce qui donne deux couches avec des têtes sur les deux faces extérieures. Chaque couche a une profondeur d’environ 2 nm, si bien que le cœur de la bicouche mesure environ 4 nm d’épaisseur. Les protéines sont logées dans ce film. Le tonneau bleu du morceau agrandi est un canal qui traverse les deux couches, et la protéine ornée de perles vertes à l’extérieur porte une chaîne de sucres.
La membrane est fluide. Les lipides glissent sans cesse latéralement le long de leurs voisins, mais ils passent très rarement d’une couche à l’autre, ce qui permet aux deux couches de garder des mélanges de lipides différents. Le modèle les tient immobiles.
Le noyau et ses pores
L’enveloppe nucléaire est formée de deux membranes, interne et externe, séparées par un espace de quelques dizaines de nanomètres. La fenêtre découpée à l’avant du noyau montre les deux bords, distants d’environ 4 cm dans le modèle. La membrane externe se prolonge par le réticulum rugueux, c’est pourquoi les feuillets du réticulum commencent juste à côté du noyau dans le modèle.
Les pores nucléaires traversent les deux membranes à la fois. Chacun est un anneau de protéines d’environ 120 nm percé d’un canal en son centre, et le noyau d’un vertébré en compte environ 2000. L’ARN messager et les sous-unités des ribosomes sortent par les pores, et les protéines nécessaires dans le noyau y entrent. Le modèle affiche de 300 à 1100 pores selon votre appareil.
À l’intérieur, le nucléole est une région dense sans membrane, dessinée avec 2 µm de diamètre dans le modèle. Il se forme autour des gènes de l’ARN ribosomique, et les deux moitiés du ribosome y sont assemblées avant d’être exportées.
Où les protéines sont fabriquées et emballées
Un ribosome lit l’ARN messager et assemble les acides aminés en chaîne. Les ribosomes qui flottent dans le cytosol fabriquent des protéines qui restent dans le cytosol. Quand le début d’une nouvelle protéine porte un signal pour le réticulum, le ribosome s’amarre au réticulum et fait passer la chaîne en croissance à travers la membrane, dans le sac : c’est ce qui donne au réticulum son aspect rugueux. Le réticulum lisse ne porte pas de ribosomes. C’est un réseau de tubes de 30 à 100 nm de large qui fabrique des lipides et stocke du calcium.
Depuis le réticulum, les protéines voyagent dans de petites vésicules jusqu’à l’appareil de Golgi. Une cellule de mammifère possède de 40 à 100 piles de Golgi, en général regroupées près du centrosome, et chaque pile compte de quatre à huit saccules. Le modèle en montre une pile de six. Les protéines entrent par la face cis, la plus proche du réticulum, voient leurs sucres retaillés et complétés pendant leur traversée, et repartent par la face trans dans des vésicules destinées à la membrane, aux lysosomes ou à d’autres compartiments.
La kinésine marche sur un microtubule
Les microtubules sont des tubes creux d’environ 25 nm de large, formés en général de 13 rangées de tubuline. Chaque rangée est une chaîne de paires de tubuline alpha et bêta qui se répète tous les 8 nm. La plupart des microtubules partent du centrosome, à côté du noyau, et s’étendent vers le bord de la cellule. Ils sont rigides et presque droits sur les distances qu’on trouve dans une cellule.
La kinésine-1 possède deux têtes motrices reliées par une longue tige enroulée, et une queue qui tient la cargaison. Elle avance main sur main, comme le décrit PDB-101. Une tête reste fixée au microtubule pendant que l’autre se détache, la dépasse en se balançant et se fixe 16 nm plus loin. Chaque pas déplace la cargaison de 8 nm et consomme un ATP. Cell Biology by the Numbers donne environ 800 nm par seconde pour la kinésine conventionnelle en éprouvette, avec environ 100 pas avant qu’elle ne se décroche.
À un million de fois la taille réelle, 800 nm par seconde deviennent 0,8 m par seconde, l’allure d’une marche lente. Mais les têtes font environ 100 pas par seconde, bien trop vite pour être suivies à l’écran. L’étape du guide consacrée à la kinésine active donc un ralenti à 1/20 de la vitesse réelle, pour que vous voyiez chaque tête dépasser l’autre.
Mitochondries et lysosomes
Les mitochondries ont deux membranes. L’externe est lisse. L’interne est repliée en crêtes, qui lui donnent une grande surface pour les protéines qui fabriquent l’ATP. Cell Biology by the Numbers décrit une mitochondrie typique comme une capsule d’environ 2 µm de long et 1 µm de diamètre, même si, dans beaucoup de cellules, elles s’unissent en réseaux ramifiés longs de dizaines de micromètres. Le modèle utilise dix capsules séparées et en ouvre une pour que vous voyiez les crêtes.
Les lysosomes sont des sacs contenant plus de 60 sortes d’enzymes digestives, et une cellule en possède normalement des centaines. Le modèle en montre six. Leur intérieur est maintenu à pH 4,5 à 5, l’acidité à laquelle les enzymes fonctionnent le mieux. Le cytosol qui les entoure est à un pH d’environ 7,2, où ces enzymes fonctionnent mal : un lysosome qui fuit ne digère donc pas le reste de la cellule.
Rapetisser dix et cent fois
À un million de fois la taille réelle, on se promène facilement dans la cellule, mais tout ce qui mesure moins d’environ 20 nm n’est qu’une miette à vos pieds. Un ribosome a la taille d’une bille et un canal potassique mesure 8 mm. Pour voir les molécules, il faut un second palier de grossissement, et les boutons « Taille » en haut à droite vous en donnent deux de plus : ×10 et ×100.
Ces boutons ne reconstruisent pas la cellule. Ils vous font rapetisser. À ×10, l’échelle est de 10 000 000 pour 1, un mètre devant vous vaut 100 nm et vos yeux sont à 160 nm du sol. À ×100, l’échelle est de 100 000 000 pour 1, un mètre vaut 10 nm et vous mesurez 16 nm, à peu près la hauteur d’un protéasome. L’encadré en haut à gauche indique toujours le grossissement actuel, ce que vaut un mètre et votre taille réelle, si bien que les nombres restent honnêtes à chaque palier. La cellule, elle, ne change pas. Une mitochondrie de la taille d’un canapé devient un bâtiment de 100 m de long, et la longer à ×100 prendrait des minutes.
Des molécules à leur vraie taille
Les molécules sont dessinées comme des modèles en perles, une perle par partie repliée d’une protéine, dans le style des illustrations de RCSB PDB-101. Elles sont construites à leur vraie taille et placées là où elles travaillent, puis cachées jusqu’à ce que vous soyez assez près pour les voir. Depuis l’autre bout de la cellule, elles ne coûtent rien à afficher.
Dans la cellule animale, on les trouve à quatre endroits :
- Sur la membrane du sol, vers l’avant à droite. Des canaux potassiques, des pompes sodium-potassium, des récepteurs et des aquaporines sont logés dans un morceau de membrane pavé de têtes de lipides espacées de 0,8 nm. Un puits recouvert de clathrine, une cage d’environ 100 nm, tire un bourgeon de membrane vers l’intérieur. Des filaments d’actine de 7 nm traversent le sol, un moteur de myosine V marche sur l’un d’eux, et un filament intermédiaire en forme de corde est posé tout près.
- Dans la foule voisine. Une boîte de 100 nm de côté est remplie de protéines à la densité du vrai cytosol, environ 3 millions par micromètre cube. À ×100, c’est un mur de molécules dans lequel vous pouvez vous enfoncer. Sur son bord se trouvent un protéasome, un chaperon Hsp90, un granule de glycogène et un chapelet de ribosomes qui lisent un même ARN messager.
- Dans le noyau. Un segment d’ADN enroulé sur des nucléosomes, avec une ARN polymérase II qui fabrique un brin d’ARN, et un complexe du pore nucléaire tout en détail sur l’enveloppe.
- Sur les organites. Un ribosome amarré au réticulum rugueux par son canal Sec61, une rangée d’ATP synthases sur le bord coupé de la mitochondrie ouverte, et un moteur de dynéine sous le rail de la kinésine.
Les densités sont réelles là où le guide l’indique (la boîte de la foule, le sol de lipides) et réduites ailleurs, car une vraie membrane est si chargée de protéines que les canaux seraient difficiles à repérer.
Une cellule végétale à la même échelle
Le bouton « Cellule » passe à une cellule de feuille construite à la même échelle. Elle mesure 40 µm de long, 24 µm de large et 20 µm de haut, dans une paroi de cellulose. Cell Biology by the Numbers décrit des cellules végétales de ce type dont la plus grande partie du volume est occupée par une vacuole, et c’est la première chose que l’on remarque : un bloc translucide remplit le centre, et le reste de la cellule est comprimé en une fine couche autour de lui et dans une pièce à une extrémité, où se trouve le noyau.
Les chloroplastes reposent sur le sol sous la vacuole et contre une paroi. Ils sont dessinés avec 5 µm de long, dans la fourchette de 4 à 6 µm donnée pour les plantes vasculaires, et l’un d’eux est ouvert pour montrer ses grana, des piles de sacs plats de thylakoïdes, et un grain d’amidon. Sur la paroi du fond, un champ de ponctuations garni de plasmodesmes, des canaux d’environ 50 nm, relie cette cellule à sa voisine. Le long de la paroi proche, les organites circulent autour d’une boucle de câbles d’actine à 4 µm par seconde, dans la fourchette de 1 à 100 µm par seconde mesurée pour la cyclose. À ×100, dans le chloroplaste ouvert, vous trouverez la Rubisco, l’enzyme qui fixe le dioxyde de carbone, et le photosystème II, qui casse l’eau et libère de l’oxygène.
Une bactérie à la même échelle
La troisième cellule est E. coli. Cell Biology by the Numbers retient comme ordre de grandeur environ 1 µm de large, 2 µm de long et 1 µm³ de volume : à un million de fois la taille réelle, l’organisme entier est donc une capsule de 2 m posée sur la boîte, de la taille d’une des mitochondries de la cellule animale. Ce n’est pas une coïncidence du modèle. Les mitochondries descendent de bactéries absorbées par une autre cellule dans un passé lointain, et elles gardent encore un petit génome à elles. Le quadrillage de la boîte est dessiné en carrés de 1 µm.
À ×1, vous êtes trop grand pour entrer, la visite commence donc à ×10. À l’intérieur, les ribosomes remplissent presque tout l’espace autour du nucléoïde, l’enchevêtrement du chromosome au centre, sans membrane autour. L’enveloppe au-dessus de vous comporte trois couches : la membrane interne, un fin filet de peptidoglycane et la membrane externe. Des moteurs flagellaires d’environ 45 nm sont logés dans l’enveloppe, chacun faisant tourner un filament en tire-bouchon environ 100 fois par seconde, et un réseau de chimiorécepteurs à une extrémité indique aux moteurs quand inverser leur rotation. Comme aucun noyau ne s’interpose, les ribosomes commencent à lire l’ARN messager pendant qu’il est encore fabriqué, ce que le modèle montre à deux endroits près du départ.
Le guide
Le bouton « Guide » ouvre une liste de 78 choses à visiter : 49 dans la cellule animale, 14 dans la cellule végétale et 15 dans la bactérie. Vous pouvez chercher par nom, filtrer par cellule et par sorte (organites, molécules et processus) et trier par taille. Choisir un élément change de cellule et de taille si nécessaire et vous emmène devant lui. Une fiche montre alors sa taille réelle, combien une cellule en compte, une courte description, ses sources et une barre qui compare sa taille à celle d’une protéine, d’un ribosome, d’E. coli, d’une cellule animale et à votre propre taille du moment.
Sept processus, les phases de la mitose, le cycle cellulaire, la plaque cellulaire d’une cellule végétale en division et la division binaire des bactéries, ne sont pas joués dans les cellules 3D. Leurs fiches montrent à la place un petit dessin.
Ce que fait un grossissement d’un million sur les vitesses et les distances
Comme 1 m dans le modèle vaut 1 µm dans la cellule, toute longueur se convertit en montant l’unité de six crans. Une cellule de 20 µm de large mesure 20 m, la longueur d’un bus et demi bout à bout. Un ribosome de 25 nm mesure 25 mm, soit 2,5 cm, la taille d’une grosse bille. Une protéine de 5 nm mesure 5 mm, comme un grain de riz vu par le bout, et une membrane de 5 nm d’épaisseur fait 5 mm, une couche que l’on tiendrait entre deux doigts autour d’une salle de 30 m.
Les vitesses changent de la même façon, car le temps n’est pas étiré. La kinésine marche à environ 800 nm par seconde, soit 0,8 m par seconde dans le modèle. Une protéine qui dérive de quelques micromètres en une seconde parcourt quelques mètres. Vous marchez à environ 1,4 m par seconde, ce qui fait 1,4 µm par seconde dans la cellule réelle, un peu plus vite qu’une kinésine. Traverser les 30 m de la cellule vous prend environ 21 secondes. À ×100, le même pas fait 14 nm par seconde, et c’est pourquoi la commande Marche propose un réglage rapide.
Les unités cachent un piège. Les aires varient avec le carré et les volumes avec le cube. Une mitochondrie de 1 µm³ fait 1 m³ dans le modèle, un cube d’un mètre de côté. La cellule entière, d’environ 3000 µm³, fait 3000 m³, une salle plus grande qu’une piscine olympique, qui contient environ 2500 m³. Les nombres du tableau ci-dessus sont des longueurs. Quand ce guide donne un nombre par cellule, il s’agit de ces 3000 mètres cubes.
Combien de molécules, et combien de temps pour traverser
D’après Cell Biology by the Numbers, une cellule contient environ 3 millions de protéines par micromètre cube, si bien qu’une cellule humaine de 2000 à 4000 µm³ en renferme de l’ordre de 10 milliards (10¹⁰). Pour les 3000 µm³ de ce modèle, cela donne 3000 × 3 millions, soit environ 9 milliards. Dans le modèle, chaque mètre cube autour de vous en contient 3 millions. L’écart moyen entre deux protéines voisines est la racine cubique de 1 µm³ divisé par 3 millions, soit environ 0,007 µm ou 7 nm, ce qui fait 7 mm à l’écran. Une protéine typique mesure environ 5 nm : elles se touchent presque. C’est la densité que reproduit la boîte de la foule. Tout le reste du modèle est bien plus vide.
Les molécules d’une cellule ne vont pas en ligne droite. Elles sont bousculées par les molécules d’eau, ce que l’on appelle la diffusion, et le temps moyen pour couvrir une distance x croît comme le carré de cette distance. Pour une particule qui se déplace dans une dimension, t ≈ x² / 2D, où D est la constante de diffusion. En trois dimensions, le 2 devient 6. Le livre donne D à environ 100 µm²/s pour une protéine de taille moyenne dans l’eau et à environ 10 µm²/s dans une cellule. Avec ces valeurs :
- Pour traverser une cellule d’E. coli, x = 1 µm : t ≈ 1 / 60, soit environ 0,02 s. Le livre cite environ 0,01 s.
- Pour traverser une cellule HeLa, x = 20 µm : t ≈ 400 / 60, soit environ 7 s. Le livre cite environ 10 s.
- Le long d’un axone de 1 cm, x = 10 000 µm : t ≈ 10⁸ / 60, soit environ 1,7 million de s, près de trois semaines. Le livre dit environ deux semaines, car il arrondit D et le facteur.
Un moteur qui avance à 1 µm par seconde mettrait de 2 à 3 heures pour parcourir 1 cm, ce qui explique que les neurones transportent leur cargaison sur des microtubules au lieu d’attendre qu’elle diffuse. À l’échelle d’une cellule, pourtant, les deux méthodes se valent. À 20 µm, un moteur met 20 s et la diffusion moins de 10 s : une petite cellule laisse donc les molécules diffuser et réserve les moteurs aux cargaisons volumineuses ou qui doivent aller à un endroit précis.
Idées reçues
- « Les organites flottent loin les uns des autres dans de l’eau vide. » Dans une cellule réelle, le cytosol est un gel encombré et les organites sont serrés, le réticulum endoplasmique s’étendant presque partout. La grande salle vide que vous traversez dans le modèle est une simplification pour que vous puissiez vous déplacer.
- « Les molécules savent où aller. » La plupart trouvent leur partenaire par hasard, par diffusion, et ne réagissent que si elles se rencontrent dans la bonne orientation. Les moteurs comme la kinésine font exception, car ils suivent des rails, mais la cargaison doit quand même trouver le rail.
- « La kinésine marche comme une personne. » L’animation le laisse croire, mais les têtes sont assez petites pour être poussées en permanence par l’eau qui les entoure. Le pas est un cliquet : chaque ATP fait avancer une tête et la fixe, de sorte que l’agitation se transforme en pas dans une seule direction.
- « Le noyau est le cerveau de la cellule et commande tout directement. » Le noyau garde et copie le génome et fabrique de l’ARN, mais les protéines sont produites dans le cytosol et sur le réticulum, et beaucoup de décisions de la cellule viennent de signaux qui arrivent à la membrane. Les mitochondries gardent même un petit génome à elles.
- « Toutes les cellules ressemblent au dessin du manuel. » Le modèle montre un seul type de cellule étalée sur du verre, aux tailles des cellules les plus étudiées. Un globule rouge n’a pas de noyau, une fibre musculaire en a plusieurs, et le volume des cellules s’étend sur plusieurs ordres de grandeur.
En quoi le modèle diffère d’une vraie cellule
- Le cytosol est presque vide ici. Une vraie cellule contient environ 3 millions de protéines dans chaque micromètre cube. Les particules qui flottent autour de vous ne sont que quelques milliers au plus, et elles dérivent lentement au lieu de s’entrechoquer à grande vitesse.
- Les ribosomes sont clairsemés. Le modèle en dessine quelques milliers. Une vraie cellule en a bien davantage, si serrés sur le réticulum rugueux que les feuillets en paraissent cloutés.
- L’actine et les filaments intermédiaires sont rares. Des faisceaux d’actine traversent le sol et quelques filaments intermédiaires entourent le noyau, mais le dense maillage d’actine sous la membrane a été omis pour garder les passages dégagés.
- Les molécules sont cachées de loin. Les modèles de molécules n’apparaissent que lorsque vous êtes assez près pour les voir, et ils restent immobiles au lieu de culbuter.
- La plupart des organites restent immobiles. Dans une cellule vivante, les mitochondries se déplacent, se divisent et fusionnent, et le réticulum change de forme d’une minute à l’autre.
- Le noyau a une fenêtre. Une vraie enveloppe est fermée, à part ses pores.
- Les couleurs sont inventées. À cette taille, les organites n’ont pas de couleur propre. Les microscopes électroniques les montrent en gris, et les images de fluorescence utilisent des colorants.
Se déplacer
Sur ordinateur, utilisez WASD ou les flèches pour marcher et faites glisser la souris pour regarder autour de vous. R vous fait monter et F vous laisse redescendre. Maj accélère vos déplacements. Un clic sur le sol vous y conduit. Sur téléphone, la moitié gauche de l’écran est un joystick et la moitié droite oriente votre regard. Les deux flèches à droite vous font monter ou descendre.
Le panneau à droite de la scène compte trois rangées. « Cellule » passe de la cellule animale à la cellule végétale et à la bactérie. « Taille » vous fait rapetisser à ×10 ou ×100 et revenir. « Marche » règle votre allure sur lente, normale ou rapide, ce qui aide à ×100, où la marche normale ne couvre que 13 nm par seconde. La petite carte en haut à gauche montre d’en haut où vous êtes ; cliquez dessus pour marcher jusqu’à cet endroit.
Les étiquettes de nom apparaissent quand vous vous approchez de quelque chose, et à ×100 elles désignent des molécules isolées. La commande « Toutes les étiquettes » en affiche davantage à la fois. La liste des « Pièces » et le « Guide » vous emmènent tous deux directement à ce que vous choisissez.
Questions
Une vraie cellule ressemble-t-elle à cela de l’intérieur ?
Les tailles et les positions suivent des mesures réelles, mais une vraie cellule est bien plus encombrée. Protéines, ARN et petites molécules remplissent presque chaque interstice, et les organites sont plus serrés que dans le modèle. Si elle était dessinée à sa vraie densité, vous ne verriez pas à plus de quelques micromètres dans aucune direction.
Pourquoi la cellule a-t-elle un sol ?
La plupart des cellules animales étudiées en laboratoire sont cultivées sur du verre ou du plastique, où elles s’étalent à plat et adhèrent à la surface. Le sol est la partie de la membrane plasmique qui touche la boîte. Dans un tissu, la cellule serait entourée d’autres cellules de tous côtés.
À quelle vitesse la kinésine avance-t-elle vraiment ?
La kinésine conventionnelle avance d’environ 800 nm par seconde en éprouvette et peut aller plus vite dans les cellules. Cela fait des pas de 8 nm répétés environ 100 fois par seconde. À l’échelle du modèle, cela donne 0,8 m par seconde : sans ralenti, elle passe devant vous d’un pas de promenade tandis que ses têtes deviennent floues.
Une vésicule peut-elle vraiment voyager aussi loin sur un microtubule ?
Oui. Les kinésines transportent vésicules, organites et autres cargaisons le long des microtubules, et la dynéine les transporte dans l’autre sens, vers le centrosome. Une kinésine seule se détache en général après une centaine de pas, mais une cargaison porte souvent plusieurs moteurs : elle peut ainsi passer de l’un à l’autre et continuer d’avancer.
Pourquoi les mitochondries sont-elles montrées comme des capsules séparées ?
C’est l’image des manuels, et elle est vraie pour beaucoup de cellules, surtout sur les coupes de microscopie électronique. Dans les cellules vivantes, elles forment souvent de longs réseaux ramifiés qui ne cessent de se diviser et de fusionner. Des capsules séparées sont plus faciles à voir.
Combien une cellule a-t-elle de ribosomes ?
Cela dépend du type de cellule et de la vitesse à laquelle elle croît. Cell Biology by the Numbers montre qu’une E. coli en croissance rapide possède environ 72 000 ribosomes, plus du tiers de sa masse sèche. Une cellule animale est au moins mille fois plus volumineuse et en possède bien davantage encore : les quelques milliers de ce modèle ne sont qu’un maigre échantillon.
Pourquoi puis-je flotter dans le noyau ?
La fenêtre est un écorché, comme ceux des maquettes de moteurs dans les musées. Dans une vraie cellule, l’enveloppe est fermée et rien d’aussi grand que vous ne pourrait passer par un pore nucléaire.
Pourquoi ne puis-je pas entrer dans la bactérie à la taille normale ?
Parce qu’à un million de fois la taille réelle, elle ne mesure que 2 m de long et 1 m de large, alors que vos yeux sont à 1,6 m. En rapetissant dix fois, vous mesurez 160 nm et la bactérie devient un tunnel de 10 m de large. C’est le même rapport de tailles que dans la réalité : une cellule d’E. coli est à peu près aussi grande qu’une mitochondrie, et une cellule animale pourrait en contenir des milliers.
Les molécules sont-elles vraiment aussi serrées ?
Dans la boîte de la foule et sur le sol de lipides, oui. Cell Biology by the Numbers estime la teneur en protéines des cellules à environ 3 millions de protéines par micromètre cube, et la boîte est remplie à cette densité. Ailleurs, les modèles de molécules sont clairsemés pour que vous puissiez en trouver d’isolées, et les particules qui flottent autour de vous ne sont qu’une quantité symbolique.
Pourquoi la cellule végétale est-elle si vide au milieu ?
Le milieu est la vacuole centrale, un sac d’eau, de sels et de pigments. Dans beaucoup de cellules de feuille, elle occupe 80 % du volume ou plus. Sa pression contre la paroi est ce qui garde rigides les parties tendres d’une plante, et la plante fane quand les vacuoles perdent leur eau.
Comment les boutons de taille changent-ils ce que je vois ?
Ils vous rendent plus petit tandis que la cellule reste la même. À ×10, chaque longueur devant vous est dix fois plus grande qu’avant : un ribosome qui était une bille devient un ballon de football. L’encadré d’échelle indique toujours le grossissement actuel, ce que vaut un mètre et votre propre taille en unités réelles.
Vocabulaire
- Organite : une partie de la cellule qui a sa propre fonction, comme le noyau ou une mitochondrie.
- Cytosol : le gel aqueux qui remplit la cellule autour des organites.
- Bicouche de phospholipides : les deux couches de molécules de lipides qui forment les membranes cellulaires.
- Enveloppe nucléaire : la double membrane qui entoure le noyau.
- Complexe du pore nucléaire : un anneau de protéines d’environ 120 nm qui forme un canal à travers l’enveloppe nucléaire.
- Chromatine : de l’ADN enroulé autour d’histones, la forme que prend l’ADN dans le noyau.
- Réticulum endoplasmique (RE) : un réseau de sacs et de tubes membranaires. Le réticulum rugueux porte des ribosomes, le lisse n’en porte pas.
- Saccule : un sac aplati du réticulum ou de l’appareil de Golgi.
- Crêtes : les replis de la membrane interne de la mitochondrie.
- Microtubule : un tube creux de tubuline d’environ 25 nm de large.
- Protéine motrice : une protéine qui utilise l’ATP pour se déplacer le long d’un filament. La kinésine et la dynéine marchent sur les microtubules.
- ATP : adénosine triphosphate, la petite molécule que les cellules utilisent pour transporter l’énergie.
- Vacuole : le grand sac d’eau d’une cellule végétale, entouré d’une membrane appelée tonoplaste.
- Chloroplaste : l’organite où se déroule la photosynthèse, qui contient des piles de thylakoïdes.
- Plasmodesme : un canal à travers la paroi des cellules végétales qui relie deux cellules voisines.
- Nucléoïde : la région d’une bactérie où se trouve son chromosome, sans membrane autour.
- Peptidoglycane : le filet de chaînes de sucres et de courts peptides qui forme la paroi des bactéries.
- Moteur flagellaire : le moteur rotatif de l’enveloppe bactérienne qui fait tourner le flagelle.
- Grossissement : combien de fois le modèle est plus grand que l’objet réel. ×10 et ×100 multiplient les 1 000 000 de départ.
Sources
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is a human cell? https://book.bionumbers.org/how-big-is-a-human-cell/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are nuclei? https://book.bionumbers.org/how-big-are-nuclei/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are mitochondria? https://book.bionumbers.org/how-big-are-mitochondria/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is the endoplasmic reticulum of cells? https://book.bionumbers.org/how-big-is-the-endoplasmic-reticulum-of-cells/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the thickness of the cell membrane? https://book.bionumbers.org/what-is-the-thickness-of-the-cell-membrane/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What are the sizes of the cell's filaments? https://book.bionumbers.org/what-are-the-sizes-of-the-cells-filaments/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How fast do molecular motors move on cytoskeletal filaments? https://book.bionumbers.org/how-fast-do-molecular-motors-move-on-cytoskeletal-filaments/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are the molecular machines of the central dogma? https://book.bionumbers.org/how-big-are-the-molecular-machines-of-the-central-dogma/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: The geography of the cell. https://book.bionumbers.org/the-geography-of-the-cell/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are genomes? https://book.bionumbers.org/how-big-are-genomes/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How many ribosomes are in a cell? https://book.bionumbers.org/how-many-ribosomes-are-in-a-cell/ (consulté le 16 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Kinesin. https://pdb101.rcsb.org/motm/64 (consulté le 16 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Nuclear Pore Complex. https://pdb101.rcsb.org/motm/205 (consulté le 16 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Ribosomal Subunits. https://pdb101.rcsb.org/motm/10 (consulté le 16 octobre 2026)
- Nature Education, Scitable: Mitochondria. https://www.nature.com/scitable/topicpage/mitochondria-14053590/ (consulté le 16 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How large are chloroplasts?. https://book.bionumbers.org/how-large-are-chloroplasts/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is an E. coli cell and what is its mass?. https://book.bionumbers.org/how-big-is-an-e-coli-cell-and-what-is-its-mass/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the frequency of rotary molecular motors?. https://book.bionumbers.org/what-is-the-frequency-of-rotary-molecular-motors/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How fast do proteasomes degrade proteins?. https://book.bionumbers.org/how-fast-do-proteasomes-degrade-proteins/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How many ions pass through an ion channel per second?. https://book.bionumbers.org/how-many-ions-pass-through-an-ion-channel-per-second/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What are the rates of membrane transporters?. https://book.bionumbers.org/what-are-the-rates-of-membrane-transporters/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How long do the different stages of the cell cycle take?. https://book.bionumbers.org/how-long-do-the-different-stages-of-the-cell-cycle-take/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How many proteins are in a cell?. https://book.bionumbers.org/how-many-proteins-are-in-a-cell/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is the average protein?. https://book.bionumbers.org/how-big-is-the-average-protein/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is faster, transcription or translation?. https://book.bionumbers.org/what-is-faster-transcription-or-translation/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the pH of a cell?. https://book.bionumbers.org/what-is-the-ph-of-a-cell/ (consulté le 17 octobre 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the range of cell sizes and shapes?. https://book.bionumbers.org/what-is-the-range-of-cell-sizes-and-shapes/ (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 4.3 Eukaryotic Cells. https://openstax.org/books/biology-2e/pages/4-3-eukaryotic-cells (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 4.2 Prokaryotic Cells. https://openstax.org/books/biology-2e/pages/4-2-prokaryotic-cells (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 4.4 The Endomembrane System and Proteins. https://openstax.org/books/biology-2e/pages/4-4-the-endomembrane-system-and-proteins (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 4.5 The Cytoskeleton. https://openstax.org/books/biology-2e/pages/4-5-the-cytoskeleton (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 4.6 Connections between Cells and Cellular Activities. https://openstax.org/books/biology-2e/pages/4-6-connections-between-cells-and-cellular-activities (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 10.2 The Cell Cycle. https://openstax.org/books/biology-2e/pages/10-2-the-cell-cycle (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 10.5 Prokaryotic Cell Division. https://openstax.org/books/biology-2e/pages/10-5-prokaryotic-cell-division (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 15.5 Ribosomes and Protein Synthesis. https://openstax.org/books/biology-2e/pages/15-5-ribosomes-and-protein-synthesis (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 15.2 Prokaryotic Transcription. https://openstax.org/books/biology-2e/pages/15-2-prokaryotic-transcription (consulté le 17 octobre 2026)
- OpenStax, Biology 2e, 3.4 Proteins. https://openstax.org/books/biology-2e/pages/3-4-proteins (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: ATP Synthase. https://pdb101.rcsb.org/motm/72 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Potassium Channels. https://pdb101.rcsb.org/motm/38 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Sodium-Potassium Pump. https://pdb101.rcsb.org/motm/118 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Adrenergic Receptors. https://pdb101.rcsb.org/motm/100 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Aquaporin. https://pdb101.rcsb.org/motm/173 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Clathrin. https://pdb101.rcsb.org/motm/88 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Proteasome. https://pdb101.rcsb.org/motm/166 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Hsp90. https://pdb101.rcsb.org/motm/108 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Chaperones. https://pdb101.rcsb.org/motm/32 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: RNA Polymerase. https://pdb101.rcsb.org/motm/40 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Nucleosome. https://pdb101.rcsb.org/motm/7 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Ribosome. https://pdb101.rcsb.org/motm/121 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Elongation Factors. https://pdb101.rcsb.org/motm/81 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Actin. https://pdb101.rcsb.org/motm/19 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Microtubules. https://pdb101.rcsb.org/motm/175 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Dynein. https://pdb101.rcsb.org/motm/176 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Myosin. https://pdb101.rcsb.org/motm/18 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Rubisco. https://pdb101.rcsb.org/motm/11 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Photosystem II. https://pdb101.rcsb.org/motm/59 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Flagellar Motor. https://pdb101.rcsb.org/motm/300 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Pilus Machine. https://pdb101.rcsb.org/motm/211 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Penicillin-binding Proteins. https://pdb101.rcsb.org/motm/29 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Catalase. https://pdb101.rcsb.org/motm/57 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: SNARE Proteins. https://pdb101.rcsb.org/motm/167 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Vacuolar ATPase. https://pdb101.rcsb.org/motm/219 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Glycogen Phosphorylase. https://pdb101.rcsb.org/motm/24 (consulté le 17 octobre 2026)
- RCSB PDB-101, Molecule of the Month: Cellulose Synthase. https://pdb101.rcsb.org/motm/254 (consulté le 17 octobre 2026)
- BioNumbers BNID 106729: Diameter of peroxisome (0.1 to 1.0 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=106729 (consulté le 17 octobre 2026)
- BioNumbers BNID 113930: Organelle numbers in COS-7 cells (lipid droplets, peroxisomes, lysosomes about 90 to 190 each). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=113930 (consulté le 17 octobre 2026)
- BioNumbers BNID 104378: Diameter of late endosome in HeLa cells (0.76 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104378 (consulté le 17 octobre 2026)
- BioNumbers BNID 104387: Diameter of late endosome, Rab9-depleted HeLa cells (0.42 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104387 (consulté le 17 octobre 2026)
- Fujimoto and Parton, Not Just Fat: The Structure and Function of the Lipid Droplet, Cold Spring Harb Perspect Biol 2011 (PMC3039932). https://pmc.ncbi.nlm.nih.gov/articles/PMC3039932/ (consulté le 17 octobre 2026)
- BioNumbers BNID 105741: Size of canonical centriole (about 0.5 × 0.2 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=105741 (consulté le 17 octobre 2026)
- BioNumbers BNID 106125: Diameter of intermediate filaments (8 to 10 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=106125 (consulté le 17 octobre 2026)
- BioNumbers BNID 112144: Number of clathrin-coated structures per cell (about 9,000). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=112144 (consulté le 17 octobre 2026)
- BioNumbers BNID 112147: Clathrin-coated pit mean lifetime (about 40 s). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=112147 (consulté le 17 octobre 2026)
- BioNumbers BNID 104385: Diameter of endocytic vesicle (100 ± 30 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104385 (consulté le 17 octobre 2026)
- MetaCyc (SRI International): glycogen, β particles about 20 to 30 nm. https://biocyc.org/META/new-image?object=Glycogens (consulté le 17 octobre 2026)
- BioNumbers BNID 107396: Beta hairpin folding time (6 µs). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=107396 (consulté le 17 octobre 2026)
- BioNumbers BNID 111269: GFP folding time (600 s). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=111269 (consulté le 17 octobre 2026)
- BioNumbers BNID 102727: Diameter of a vesicle (40 to 80 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=102727 (consulté le 17 octobre 2026)
- OpenStax Biology 2e, 5.4 Bulk Transport. https://openstax.org/books/biology-2e/pages/5-4-bulk-transport (consulté le 17 octobre 2026)
- BioNumbers BNID 102983: Diameter of entire mitotic chromosome (1,400 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=102983 (consulté le 17 octobre 2026)
- Betterton and McIntosh, Regulation of chromosome speeds in mitosis, Cell Mol Bioeng 2013 (PMC4578309). https://pmc.ncbi.nlm.nih.gov/articles/PMC4578309/ (consulté le 17 octobre 2026)
- Focus on cell walls, Plant Physiology 2024 (PMC10756750). https://pmc.ncbi.nlm.nih.gov/articles/PMC10756750/ (consulté le 17 octobre 2026)
- BioNumbers BNID 100594: Plasmodesmata diameter (50 nm, 20 to 200). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100594 (consulté le 17 octobre 2026)
- BioNumbers BNID 100593: Plasmodesmata per µm² of cell wall (2 to 10). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100593 (consulté le 17 octobre 2026)
- Zeeman et al., Starch Synthesis in Arabidopsis. Granule Synthesis, Composition, and Structure, Plant Physiol 2002 (PMC161669). https://pmc.ncbi.nlm.nih.gov/articles/PMC161669/ (consulté le 17 octobre 2026)
- Goldstein and van de Meent, A physical perspective on cytoplasmic streaming, Interface Focus 2015 (PMC4590424). https://pmc.ncbi.nlm.nih.gov/articles/PMC4590424/ (consulté le 17 octobre 2026)
- BioNumbers BNID 104947: Width of cell envelope of E. coli B (28.7 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104947 (consulté le 17 octobre 2026)
- BioNumbers BNID 108581: Thickness of peptidoglycan (Gram-negative a few nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=108581 (consulté le 17 octobre 2026)
- BioNumbers BNID 109343: Diameter of bacterial flagellum (about 20 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=109343 (consulté le 17 octobre 2026)
- BioNumbers BNID 100095: Typical length of E. coli flagella (5 to 10 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100095 (consulté le 17 octobre 2026)
- BioNumbers BNID 100105: Diameter of E. coli pili (7 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100105 (consulté le 17 octobre 2026)
- BioNumbers BNID 100104: Length of E. coli pili (1 to 2 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100104 (consulté le 17 octobre 2026)
- BioNumbers BNID 101473: Number of pili per E. coli cell (100 to 300). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=101473 (consulté le 17 octobre 2026)
- Briegel et al., Universal architecture of bacterial chemoreceptor arrays, PNAS 2009 (PMC2761316; E. coli array about 53,000 nm², about 5,200 receptors). https://pmc.ncbi.nlm.nih.gov/articles/PMC2761316/ (consulté le 17 octobre 2026)
- OpenStax Microbiology, 3.3 Unique Characteristics of Prokaryotic Cells. https://openstax.org/books/microbiology/pages/3-3-unique-characteristics-of-prokaryotic-cells (consulté le 17 octobre 2026)
- RCSB PDB 3DKN: Sec61 in the canine ribosome-channel complex. https://www.rcsb.org/structure/3dkn (consulté le 17 octobre 2026)
- BioNumbers BNID 100121: Diameter of 70S ribosome (26 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100121 (consulté le 17 octobre 2026)
- BioNumbers BNID 100483: Ribosome diameter (30 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100483 (consulté le 17 octobre 2026)
D'autres expositions
CRISPR-Cas9 interactif : coupe et réparation de l’ADN
Un ARN guide ne lit que 20 lettres d’ADN, et cela suffit en général pour repérer un seul endroit parmi les 3 milliards de paires de bases d’un génome humain.
Promenez-vous parmi des dinosaures grandeur nature
Un parc de 600 m avec 172 animaux préhistoriques à leur taille réelle, des premiers dinosaures à T. rex, rangés par période.
Animaux de l’ère glaciaire : promenade à taille réelle
Un parc de 600 m avec 65 animaux de la dernière ère glaciaire à taille réelle, des mammouths laineux aux félins à dents de sabre, et un curseur couvrant 50 000 ans.
Évolution humaine : chronologie des espèces en taille réelle
Lucy mesurait environ 1,1 m. Parcourez 7 millions d’années de parents humains à taille réelle, avec votre figure à leurs côtés.
Battement du cœur interactif : signal électrique, ECG
Votre cœur éjecte environ 70 mL de sang à chaque battement et, au rythme de repos, il le fait environ 108 000 fois par jour.
Chambre d’Ames et illusions d’optique : pourquoi l’œil se trompe
La case A paraît sombre et la case B claire, pourtant votre écran envoie le même gris à votre œil depuis les deux.