ABB. 54Rundgänge
Spaziergang durch eine Zelle: Tier, Pflanze und Bakterium
Millionenfach vergrößert ist ein Mitochondrium etwa so groß wie ein Sofa, ein ganzes E. coli ist 2 m lang, und das Kinesin, das neben Ihnen ein Vesikel schleppt, läuft mit 0,8 Metern pro Sekunde.
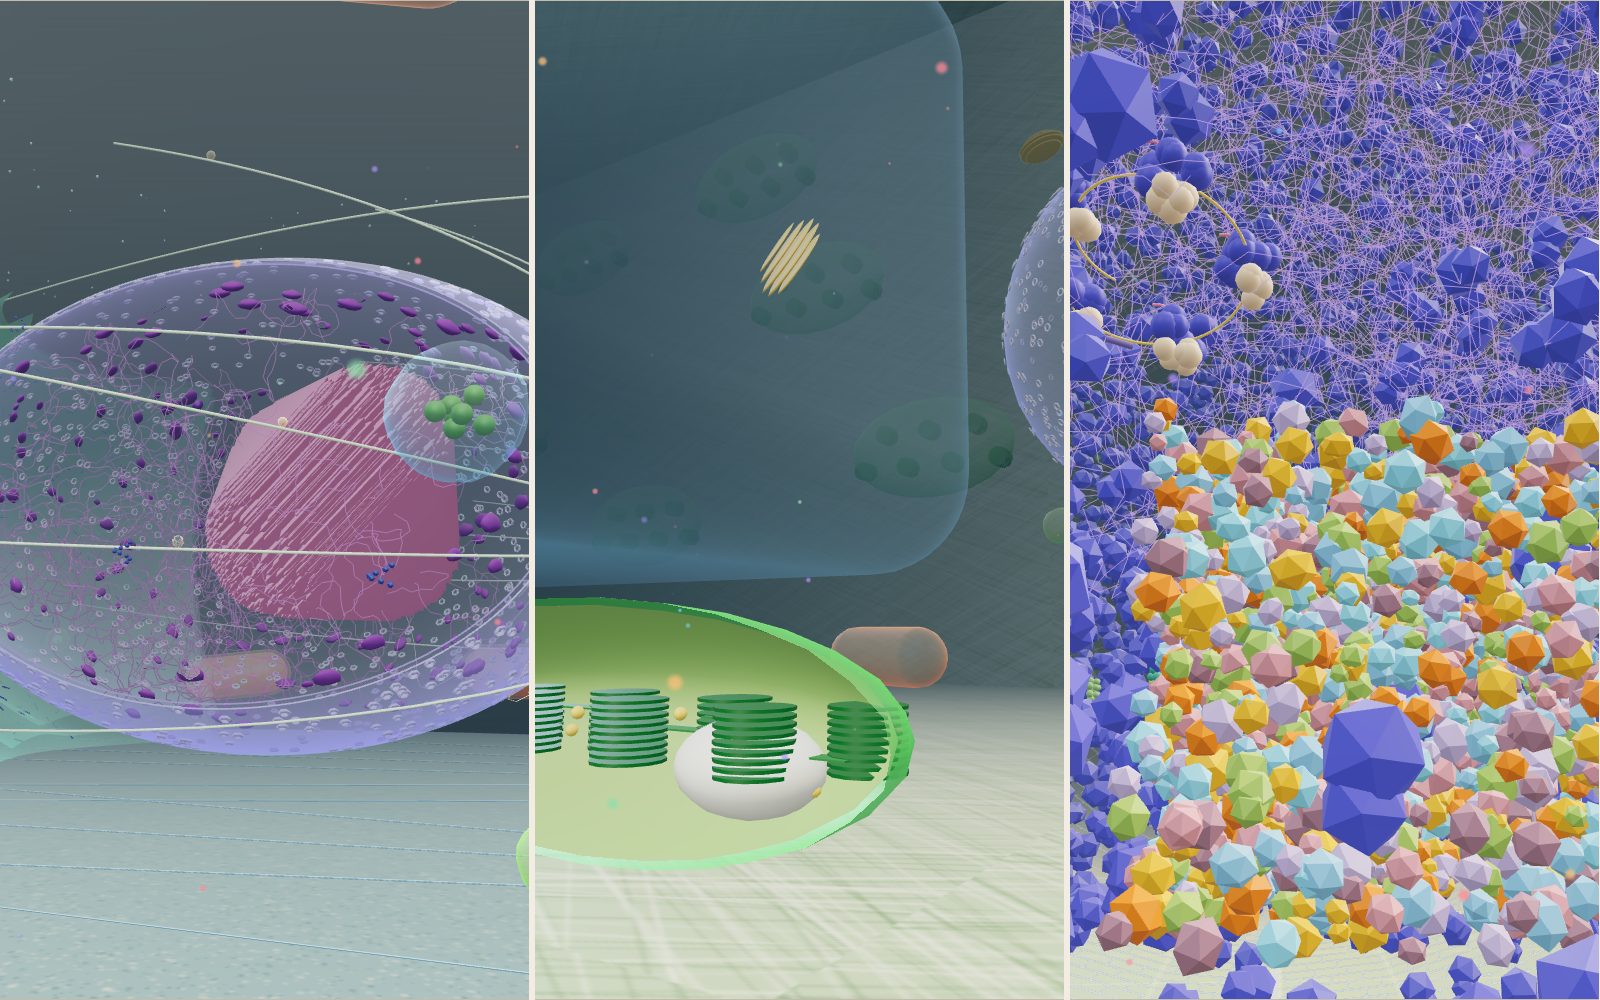
Dieses Gerät kann das 3D-Modell nicht anzeigen. Die Schritte des Rundgangs unten lassen sich als Text lesen.
1 / 14 Eine millionenfach vergrößerte ZelleSie stehen auf der unteren Membran einer millionenfach vergrößerten Zelle, Ihre Augen sind also 1,6 µm darüber. Bewegen Sie sich mit WASD, den Pfeiltasten oder dem Joystick, steigen und sinken Sie mit R und F oder den Pfeilen rechts. In den Zellkern vor Ihnen ist ein Fenster geschnitten. Die Schaltfläche „Zellführer“ oben rechts listet 78 Stationen zum Besuchen.
Ziehen zum Drehen. Mausrad oder zwei Finger zum Zoomen.
Wo Sie stehen
Eine Zelle ist zu klein, um sie sich vorzustellen. Die übliche Zeichnung im Schulbuch setzt den Zellkern, ein paar Mitochondrien und einige gewellte Linien des endoplasmatischen Retikulums in einen Kreis, alles ungefähr gleich groß und alles in leerem Raum schwebend. Diese Ausstellung nimmt eine Tierzelle, vergrößert sie millionenfach und lässt Sie in normaler Augenhöhe darin umhergehen. Alles ist in den Größen gezeichnet, die in echten Zellen gemessen wurden. Ein Mitochondrium ist also eine Kapsel, auf die Sie sich setzen könnten, und ein Ribosom eine dunkle Perle von der Größe einer großen Murmel.
Die Zelle hat die Form einer Zelle, die sich auf einer Glasschale ausgebreitet hat: eine flache Kuppel, 30 µm lang, 24 µm breit und in der Mitte 8 µm hoch. Sie beginnen auf ihrem Boden, dem Teil der Plasmamembran, der am Glas haftet. Der Zellkern füllt die Mitte, das raue ER legt sich um seine linke Seite, und der Golgi-Stapel steht rechts davon. Mitochondrien und Lysosomen liegen verstreut ringsum, Mikrotubuli fächern sich von einem Punkt neben dem Kern auf, und kleine Vesikel fahren auf ihnen zum Rand der Zelle.
Warum das Modell millionenfach vergrößert ist
Naheliegend wäre, die Zelle gerade so groß zu machen, dass Ihr Körper hineinpasst. Eine 100.000-fache Vergrößerung reicht dafür nicht. In diesem Maßstab wird eine 20 µm große Zelle zu einer Blase von 2 m, und der Zellkern wäre kleiner als Ihr Kopf. Ein Mensch von 1,6 m Größe entspräche 16 µm und wäre höher als die ganze Zelle.
Bei 1.000.000-facher Vergrößerung lassen sich die Zahlen leicht lesen. Ein Meter im Modell ist ein Mikrometer in der Zelle, ein Millimeter ist ein Nanometer. Ihre Augenhöhe von 1,6 m steht für 1,6 µm. Das Maßstabsfeld oben links zeigt das an, und sein Balken wird für das neu gezeichnet, was gerade vor Ihnen liegt. Schauen Sie auf eine Wand in 3 m Entfernung, zeigt der Balken, wie lang 1 µm in dieser Entfernung aussieht.
Größen im Modell
Das sind die wichtigsten Teile und die Größen, in denen sie gebaut sind. Die echten Werte sind Spannen, weil sich Zellen von Typ zu Typ unterscheiden.
| Teil | Echte Größe | Größe im Modell |
|---|---|---|
| Ganze Zelle (auf Glas ausgebreitet) | 20 bis 40 µm | 30 × 24 × 8 m |
| Zellkern | 2 bis 10 µm | 9 × 6 × 7,6 m |
| Mitochondrium | etwa 1 µm breit, 2 µm lang | 0,84 bis 1 m breit, 2 bis 2,8 m lang |
| Lysosom | 0,1 bis 1,2 µm | 0,5 bis 0,7 m |
| Kernpore | etwa 120 nm | 12 cm |
| Mikrotubulus | 25 nm breit | 2,5 cm breit |
| Ribosom | 25 bis 30 nm | etwa 2,8 cm |
| Röhre des glatten ER | 30 bis 100 nm | 6 cm |
| Plasmamembran | 4 bis 10 nm dick | 4 bis 10 mm dick |
| Kinesinschritt | 8 nm | 8 mm |
Das Volumen der Zelle ergibt etwa 3000 µm³. Cell Biology by the Numbers nimmt 2000 µm³ als Faustwert für eine menschliche Zelle, wobei die meisten zwischen 500 und 4000 µm³ liegen, und rechnet in seinen Beispielen mit 3000 µm³ für eine typische Säugetierzelle. HeLa-Zellen, die sich auf einem Objektträger ausbreiten, werden etwa 40 µm breit und bleiben dabei nur wenige Mikrometer hoch. Deshalb ist das Modell eine flache Kuppel und keine Kugel.
Einige Zahlen selbst prüfen
Stellen Sie sich neben das aufgeschnittene Mitochondrium nahe dem Start. Es ist 1 m breit, seine Oberseite liegt also etwas unter Ihrer Augenhöhe. In der echten Zelle ist das 1 µm, etwa ein Hundertstel der Dicke eines Menschenhaars.
Die Membran ist am schwersten zu sehen. Bei 4 bis 10 nm Dicke ist sie im Modell 4 bis 10 mm dick, etwa wie ein Bleistift, und umschließt einen 30 m langen Raum. Cell Biology by the Numbers vergleicht sie mit der Außenhaut eines Flugzeugs im Verhältnis zur Breite seines Rumpfs. Darum ist ein Stück der rechten Wand 20-mal dicker gezeichnet als der Rest. In diesem Stück ist jeder Lipidkopf 16 mm statt 0,8 mm breit, und Sie können die beiden Schichten zählen.
Die DNA im Zellkern ist die Zahl, die überhaupt nicht hineinpasst. Eine menschliche Zelle trägt etwa 2 m DNA (zwei Kopien eines Genoms von etwa 3 Milliarden Basenpaaren, 0,3 nm pro Basenpaar). Im Modell wären das 2000 km Faden, verpackt in eine 9 m lange Kugel. Die violetten Fäden, die Sie im Fenster sehen, sind eine kleine Auswahl, gezeichnet, um die Struktur zu zeigen.
Die Membran im Querschnitt
Ein Phospholipid hat einen Kopf, der sich mit Wasser mischt, und zwei Schwänze, die das nicht tun. Im Wasser verstecken sich die Schwänze davor, indem sie sich Schwanz an Schwanz aufreihen. So entstehen zwei Schichten mit Köpfen auf beiden Außenseiten. Jede Schicht ist etwa 2 nm tief, der Kern der Doppelschicht also etwa 4 nm dick. In diesem Film sitzen Proteine. Das blaue Fass im vergrößerten Stück ist ein Kanal durch beide Schichten, und das Protein mit grünen Perlen auf der Außenseite trägt eine Zuckerkette.
Die Membran ist flüssig. Lipide gleiten ständig seitlich an ihren Nachbarn vorbei, wechseln aber sehr selten von einer Schicht in die andere, sodass beide Schichten unterschiedliche Lipidmischungen behalten können. Im Modell stehen sie still.
Der Zellkern und seine Poren
Die Kernhülle besteht aus zwei Membranen, einer inneren und einer äußeren, mit einem Spalt von einigen Dutzend Nanometern dazwischen. Das Fenster vorn im Kern zeigt beide Ränder, im Modell etwa 4 cm voneinander entfernt. Die äußere Membran setzt sich ins raue ER fort, deshalb beginnen die ER-Blätter im Modell direkt neben dem Kern.
Kernporen führen durch beide Membranen zugleich. Jede ist ein Ring aus Proteinen von etwa 120 nm mit einem Kanal in der Mitte, und ein Wirbeltierkern hat etwa 2000 davon. Boten-RNA und Ribosomenuntereinheiten verlassen den Kern durch die Poren, und Proteine, die im Kern gebraucht werden, kommen herein. Das Modell zeigt je nach Gerät 300 bis 1100 Poren.
Im Inneren liegt das Kernkörperchen, ein dichter Bereich ohne Membran, im Modell 2 µm groß gezeichnet. Es bildet sich um die Gene für ribosomale RNA, und die beiden Hälften des Ribosoms werden dort zusammengesetzt, bevor sie exportiert werden.
Wo Proteine gebaut und verpackt werden
Ein Ribosom liest Boten-RNA und verknüpft Aminosäuren zu einer Kette. Ribosomen, die frei im Cytosol schweben, bauen Proteine, die im Cytosol bleiben. Trägt der Anfang eines neuen Proteins ein Signal für das ER, dockt das Ribosom am ER an und fädelt die wachsende Kette durch die Membran in den Sack. Das gibt dem ER sein raues Aussehen. Das glatte ER hat keine Ribosomen. Es ist ein Netz aus Röhren von 30 bis 100 nm Breite, das Lipide bildet und Calcium speichert.
Vom ER reisen Proteine in kleinen Vesikeln zum Golgi-Apparat. Eine Säugetierzelle hat 40 bis 100 Golgi-Stapel, meist nahe dem Zentrosom versammelt, und jeder Stapel hat vier bis acht Zisternen. Das Modell zeigt einen Stapel aus sechs. Proteine treten auf der cis-Seite ein, die dem ER am nächsten liegt, bekommen beim Durchwandern Zucker gekürzt und angehängt und verlassen die trans-Seite in Vesikeln, die zur Membran, zu den Lysosomen oder in andere Abteile unterwegs sind.
Kinesin läuft auf einem Mikrotubulus
Mikrotubuli sind hohle Röhren von etwa 25 nm Breite, meist aus 13 Reihen Tubulin gebaut. Jede Reihe ist eine Kette aus Paaren von Alpha- und Beta-Tubulin, die sich alle 8 nm wiederholt. Die meisten Mikrotubuli beginnen am Zentrosom neben dem Kern und laufen zum Rand der Zelle. Über die Strecken innerhalb einer Zelle sind sie steif und fast gerade.
Kinesin-1 hat zwei Motorköpfe, verbunden durch einen langen gewundenen Stiel, und einen Schwanz, der die Fracht hält. Es läuft Hand über Hand, wie PDB-101 es beschreibt. Ein Kopf bleibt am Mikrotubulus gebunden, während der andere loslässt, an ihm vorbeischwingt und 16 nm weiter vorn bindet. Jeder Schritt bewegt die Fracht um 8 nm und verbraucht ein ATP. Cell Biology by the Numbers nennt für herkömmliches Kinesin im Reagenzglas etwa 800 nm pro Sekunde und etwa 100 Schritte, bevor es abfällt.
Millionenfach vergrößert werden aus 800 nm pro Sekunde 0,8 m pro Sekunde, ein langsames Gehtempo. Die Köpfe machen aber etwa 100 Schritte pro Sekunde, viel zu schnell, um ihnen auf dem Bildschirm zu folgen. Der Führungsschritt zum Kinesin schaltet deshalb eine Zeitlupe mit 1/20 der echten Geschwindigkeit ein, damit Sie sehen, wie jeder Kopf am anderen vorbeischwingt.
Mitochondrien und Lysosomen
Mitochondrien haben zwei Membranen. Die äußere ist glatt. Die innere ist zu Cristae gefaltet, die ihr eine große Fläche für die Proteine geben, die ATP herstellen. Cell Biology by the Numbers beschreibt ein typisches Mitochondrium als Kapsel von etwa 2 µm Länge und 1 µm Durchmesser, auch wenn sie sich in vielen Zellen zu verzweigten Netzen von Dutzenden Mikrometern verbinden. Das Modell verwendet zehn einzelne Kapseln und schneidet eine auf, damit Sie die Cristae sehen.
Lysosomen sind Säckchen mit mehr als 60 Arten von Verdauungsenzymen, und eine Zelle hat normalerweise Hunderte davon. Das Modell zeigt sechs. Ihr Inneres wird bei pH 4,5 bis 5 gehalten, und bei diesem Säuregrad arbeiten die Enzyme am besten. Das Cytosol ringsum hat etwa pH 7,2, wo die Enzyme nicht richtig arbeiten. Ein undichtes Lysosom verdaut deshalb nicht den Rest der Zelle.
Zehn- und hundertmal schrumpfen
Millionenfach vergrößert lässt sich die Zelle leicht durchwandern, aber alles, was kleiner als etwa 20 nm ist, liegt als Krümel zu Ihren Füßen. Ein Ribosom ist so groß wie eine Murmel, und ein Kaliumkanal misst 8 mm. Um Moleküle zu sehen, braucht es eine zweite Vergrößerungsstufe, und die Größen-Schaltflächen oben rechts geben Ihnen zwei weitere: ×10 und ×100.
Die Schaltflächen bauen die Zelle nicht neu auf. Sie lassen Sie schrumpfen. Bei ×10 ist der Maßstab 10.000.000 zu 1, ein Meter vor Ihnen entspricht 100 nm, und Ihre Augen sind 160 nm über dem Boden. Bei ×100 ist der Maßstab 100.000.000 zu 1, ein Meter entspricht 10 nm, und Sie sind 16 nm groß, etwa so hoch wie ein Proteasom. Das Feld oben links zeigt immer die aktuelle Vergrößerung, wofür ein Meter steht, und Ihre echte Größe, sodass die Zahlen auf jeder Stufe ehrlich bleiben. Die Zelle selbst ändert sich nicht. Ein Mitochondrium, das so groß wie ein Sofa war, wird zu einem 100 m langen Gebäude, und an ihm vorbeizugehen würde bei ×100 Minuten dauern.
Moleküle in echter Größe
Moleküle sind als Perlenmodelle gezeichnet, eine Perle für jeden gefalteten Teil eines Proteins, im Stil der Illustrationen von RCSB PDB-101. Sie sind in echter Größe gebaut und dort platziert, wo sie arbeiten, und bleiben verborgen, bis Sie nah genug sind, um sie zu sehen. Von der anderen Seite der Zelle aus kostet ihr Zeichnen nichts.
In der Tierzelle gibt es vier Orte, an denen Sie sie finden:
- Auf der Bodenmembran, vorn rechts. Kaliumkanäle, Natrium-Kalium-Pumpen, Rezeptoren und Aquaporine sitzen in einem Stück Membran, das mit Lipidköpfen im Abstand von 0,8 nm gepflastert ist. Ein Clathrin-umhülltes Grübchen, ein Käfig von etwa 100 nm, zieht eine Membranknospe nach innen. Aktinfilamente von 7 nm Breite ziehen über den Boden, auf einem davon läuft ein Myosin-V-Motor, und daneben liegt ein seilartiges Intermediärfilament.
- Im Gedränge daneben. Eine Kiste mit 100 nm Kantenlänge ist mit Proteinen in der Dichte echten Cytosols gefüllt, etwa 3 Millionen pro Kubikmikrometer. Bei ×100 ist sie eine Wand aus Molekülen, in die Sie sich hineindrängen können. An ihrem Rand sitzen ein Proteasom, ein Chaperon Hsp90, ein Glykogengranulum und eine Kette von Ribosomen, die dieselbe Boten-RNA lesen.
- Im Zellkern. Ein Stück DNA, um Nukleosomen gewickelt, auf dem die RNA-Polymerase II einen RNA-Strang baut, und ein Kernporenkomplex in allen Einzelheiten auf der Hülle.
- An Organellen. Ein Ribosom, das über seinen Sec61-Kanal am rauen ER angedockt ist, eine Reihe von ATP-Synthasen an der Schnittkante des offenen Mitochondriums und ein Dynein-Motor unter der Kinesinschiene.
Die Dichten sind echt, wo der Zellführer es angibt (die Gedrängekiste, der Lipidboden), und anderswo ausgedünnt, weil eine echte Membran so voller Proteine steckt, dass die Kanäle schwer zu erkennen wären.
Eine Pflanzenzelle im selben Maßstab
Die Schaltfläche „Zelle“ wechselt zu einer Blattzelle im selben Maßstab. Sie ist 40 µm lang, 24 µm breit und 20 µm hoch und steckt in einer Wand aus Cellulose. Cell Biology by the Numbers beschreibt solche Pflanzenzellen, deren Volumen größtenteils von einer Vakuole eingenommen wird, und genau das fällt zuerst auf: Ein durchscheinender Block füllt die Mitte, und der Rest der Zelle ist in eine dünne Schicht darum und in einen Raum an einem Ende gedrängt, in dem der Kern sitzt.
Chloroplasten liegen auf dem Boden unter der Vakuole und an einer Wand. Sie sind 5 µm lang gezeichnet, innerhalb der für Gefäßpflanzen angegebenen Spanne von 4 bis 6 µm, und einer ist aufgeschnitten, um seine Grana, Stapel flacher Thylakoidsäcke, und ein Stärkekorn zu zeigen. An der hinteren Wand verbindet ein Tüpfelfeld mit Plasmodesmen, Kanälen von etwa 50 nm, diese Zelle mit ihrer Nachbarin. Entlang der nahen Wand strömen Organellen mit 4 µm pro Sekunde um eine Schleife aus Aktinseilen, innerhalb der für die Plasmaströmung gemessenen Spanne von 1 bis 100 µm pro Sekunde. Bei ×100 im aufgeschnittenen Chloroplasten finden Sie Rubisco, das Enzym, das Kohlendioxid bindet, und Photosystem II, das Wasser spaltet und Sauerstoff freisetzt.
Ein Bakterium im selben Maßstab
Die dritte Zelle ist E. coli. Cell Biology by the Numbers nimmt als Faustwert etwa 1 µm Breite, 2 µm Länge und 1 µm³ Volumen, millionenfach vergrößert ist der ganze Organismus also eine 2 m lange Kapsel auf der Schale, so groß wie eines der Mitochondrien der Tierzelle. Das ist kein Zufall des Modells. Mitochondrien stammen von Bakterien ab, die in ferner Vergangenheit von einer anderen Zelle aufgenommen wurden, und besitzen bis heute ein kleines eigenes Genom. Das Gitter auf der Schale ist in Quadraten von 1 µm gezeichnet.
Bei ×1 sind Sie zu groß, um hineinzugehen, darum beginnt der Rundgang bei ×10. Innen füllen Ribosomen den größten Teil des Raums um das Nucleoid, das Chromosomenknäuel in der Mitte ohne Membran darum. Die Hülle über Ihnen hat drei Schichten: die innere Membran, ein dünnes Netz aus Peptidoglykan und die äußere Membran. Geißelmotoren von etwa 45 nm sitzen in der Hülle und drehen je einen korkenzieherförmigen Faden etwa 100-mal pro Sekunde, und ein Gitter aus Chemorezeptoren an einem Ende sagt den Motoren, wann sie umkehren sollen. Weil kein Kern im Weg ist, beginnen Ribosomen die Boten-RNA zu lesen, während sie noch hergestellt wird. Das Modell zeigt das an zwei Stellen nahe dem Start.
Der Zellführer
Die Schaltfläche „Zellführer“ öffnet eine Liste von 78 Stationen: 49 in der Tierzelle, 14 in der Pflanzenzelle und 15 im Bakterium. Sie können nach Namen suchen, nach Zelle und Art (Organellen, Moleküle und Vorgänge) filtern und nach Größe sortieren. Wählen Sie einen Eintrag, wechseln Zelle und Größe bei Bedarf, und Sie werden zu einem Punkt davor geführt. Eine Karte zeigt dann die echte Größe, wie viele es in einer Zelle gibt, eine kurze Beschreibung, die Quellen und einen Balken, der die Größe mit einem Protein, einem Ribosom, E. coli, einer Tierzelle und Ihrer eigenen Größe in der aktuellen Stufe vergleicht.
Sieben Vorgänge, die Phasen der Mitose, der Zellzyklus, die Zellplatte einer sich teilenden Pflanzenzelle und die Zweiteilung der Bakterien, werden in den 3D-Zellen nicht vorgeführt. Ihre Karten zeigen stattdessen eine kleine Zeichnung.
Was ein millionenfaches Vergrößern mit Tempo und Entfernungen macht
Weil 1 m im Modell 1 µm in der Zelle entspricht, lässt sich jede Länge umrechnen, indem man die Einheit um sechs Stufen hebt. Eine Zelle von 20 µm Breite ist 20 m breit, so lang wie eineinhalb hintereinander stehende Busse. Ein Ribosom von 25 nm ist 25 mm groß, also 2,5 cm, so groß wie eine dicke Murmel. Ein Protein von 5 nm ist 5 mm groß, wie ein hochkant stehendes Reiskorn, und eine Membran von 5 nm Dicke ist 5 mm dick, eine Schicht, die zwischen zwei Finger passt, rund um eine 30 m lange Halle.
Auch Geschwindigkeiten ändern sich im selben Verhältnis, denn die Zeit wird nicht gedehnt. Kinesin läuft mit etwa 800 nm pro Sekunde, im Modell sind das 0,8 m pro Sekunde. Ein Protein, das in einer Sekunde einige Mikrometer weit driftet, legt einige Meter zurück. Sie gehen mit etwa 1,4 m pro Sekunde, in der echten Zelle sind das 1,4 µm pro Sekunde, etwas schneller als ein Kinesin. Die 30 m der Zelle zu durchqueren dauert etwa 21 Sekunden. Bei ×100 sind derselbe Schritt 14 nm pro Sekunde, und deshalb hat die Laufsteuerung eine schnelle Stufe.
Die Einheiten verbergen eine Falle. Flächen wachsen mit dem Quadrat, Volumina mit der dritten Potenz. Ein Mitochondrium von 1 µm³ ist im Modell 1 m³ groß, ein Würfel von einem Meter Kantenlänge. Die ganze Zelle mit etwa 3000 µm³ sind 3000 m³, eine Halle, größer als ein olympisches Schwimmbecken, das etwa 2500 m³ fasst. Die Zahlen in der Tabelle oben sind Längen. Wenn dieser Führer eine Anzahl pro Zelle nennt, meint er diese 3000 Kubikmeter.
Wie viele Moleküle es sind und wie lange sie zum Durchqueren brauchen
Nach Cell Biology by the Numbers stecken in jedem Kubikmikrometer einer Zelle etwa 3 Millionen Proteine, sodass eine menschliche Zelle von 2000 bis 4000 µm³ in der Größenordnung von 10 Milliarden (10¹⁰) Proteine enthält. Für die 3000 µm³ dieses Modells ergibt das 3000 × 3 Millionen, etwa 9 Milliarden. Im Modell enthält jeder Kubikmeter um Sie herum 3 Millionen davon. Der mittlere Abstand zwischen benachbarten Proteinen ist die dritte Wurzel aus 1 µm³ geteilt durch 3 Millionen, etwa 0,007 µm oder 7 nm, auf dem Bildschirm also 7 mm. Ein typisches Protein ist etwa 5 nm groß, die Proteine berühren sich also fast. Diese Dichte bildet der Gedrängekasten nach. Alles andere im Modell ist viel leerer.
Moleküle in einer Zelle fliegen nicht geradeaus. Wassermoleküle stoßen sie hin und her, ein Vorgang, der Diffusion heißt, und die mittlere Zeit für eine Strecke x wächst mit dem Quadrat dieser Strecke. Für ein Teilchen, das sich in einer Dimension bewegt, gilt t ≈ x² / 2D, wobei D die Diffusionskonstante ist. In drei Dimensionen wird aus der 2 eine 6. Das Buch gibt D mit etwa 100 µm²/s für ein Protein mittlerer Größe in Wasser und mit etwa 10 µm²/s in einer Zelle an. Mit diesen Zahlen:
- Quer durch eine E.-coli-Zelle, x = 1 µm: t ≈ 1 / 60, etwa 0,02 s. Das Buch nennt etwa 0,01 s.
- Quer durch eine HeLa-Zelle, x = 20 µm: t ≈ 400 / 60, etwa 7 s. Das Buch nennt etwa 10 s.
- Entlang eines 1 cm langen Axons, x = 10.000 µm: t ≈ 10⁸ / 60, etwa 1,7 Millionen s, fast drei Wochen. Das Buch sagt etwa zwei Wochen, weil es D und den Faktor rundet.
Ein Motor, der mit 1 µm pro Sekunde vorankommt, bräuchte für 1 cm 2 bis 3 Stunden, weshalb Nervenzellen Fracht auf Mikrotubuli befördern, statt auf Diffusion zu warten. In der Größe einer einzelnen Zelle liegen die beiden Verfahren aber nah beieinander. Bei 20 µm braucht ein Motor 20 s und die Diffusion weniger als 10 s. Eine kleine Zelle überlässt es daher den Molekülen zu diffundieren und spart die Motoren für große Fracht oder für Fracht auf, die an einen bestimmten Ort muss.
Häufige Missverständnisse
- „Organellen schwimmen weit voneinander entfernt in leerem Wasser.“ In einer echten Zelle ist das Cytosol ein dicht gedrängtes Gel und die Organellen liegen eng beieinander, wobei sich das endoplasmatische Retikulum fast überallhin erstreckt. Der freie Raum, durch den Sie im Modell laufen, ist eine Vereinfachung, damit Sie sich bewegen können.
- „Moleküle wissen, wohin sie müssen.“ Die meisten finden ihren Partner durch Zufall, durch Diffusion, und reagieren nur, wenn sie in der richtigen Ausrichtung aufeinandertreffen. Motoren wie Kinesin sind die Ausnahme, denn sie folgen Schienen, doch die Fracht muss die Schiene trotzdem finden.
- „Kinesin läuft wie ein Mensch.“ In der Animation sieht es so aus, aber die Köpfe sind klein genug, um vom umgebenden Wasser ständig angestoßen zu werden. Der Gang ist eine Ratsche, bei der jedes ATP einen Kopf nach vorn schwingen und andocken lässt, sodass das Zittern zu Schritten in eine Richtung wird.
- „Der Zellkern ist das Gehirn der Zelle und steuert alles direkt.“ Der Kern bewahrt und kopiert das Genom und stellt RNA her, doch Proteine entstehen im Cytosol und am Retikulum, und viele Entscheidungen der Zelle gehen von Signalen aus, die an der Membran ankommen. Mitochondrien behalten sogar ein kleines eigenes Genom.
- „Alle Zellen sehen aus wie die Zeichnung im Lehrbuch.“ Das Modell zeigt einen einzigen Zelltyp, auf Glas ausgebreitet, in den Größen der meistuntersuchten Zellen. Ein rotes Blutkörperchen hat keinen Kern, eine Muskelfaser hat viele, und das Volumen von Zellen umfasst mehrere Größenordnungen.
Wie sich das Modell von einer echten Zelle unterscheidet
- Das Cytosol ist hier fast leer. Eine echte Zelle enthält etwa 3 Millionen Proteine in jedem Kubikmikrometer. Die schwebenden Pünktchen um Sie herum sind höchstens einige Tausend, und sie treiben langsam, statt mit hoher Geschwindigkeit aneinanderzustoßen.
- Ribosomen sind ausgedünnt. Das Modell zeichnet einige Tausend. Eine echte Zelle hat weit mehr, so dicht auf dem rauen ER, dass die Blätter wie besetzt aussehen.
- Aktin und Intermediärfilamente sind spärlich. Aktinbündel ziehen über den Boden und einige Intermediärfilamente umschlingen den Kern, aber das dichte Aktingeflecht unter der Membran ist weggelassen, damit die Wege frei bleiben.
- Moleküle sind aus der Ferne verborgen. Die Molekülmodelle erscheinen erst, wenn Sie nah genug sind, um sie zu sehen, und sie stehen still, statt zu taumeln.
- Die meisten Organellen stehen still. In einer lebenden Zelle bewegen, teilen und verbinden sich Mitochondrien, und das ER ändert von Minute zu Minute seine Form.
- Der Zellkern hat ein Fenster. Eine echte Hülle ist bis auf ihre Poren geschlossen.
- Die Farben sind erfunden. In dieser Größe haben Organellen keine eigene Farbe. Elektronenmikroskope zeigen sie grau, Fluoreszenzbilder verwenden Farbstoffe.
Sich bewegen
Am Computer gehen Sie mit WASD oder den Pfeiltasten und ziehen mit der Maus, um sich umzusehen. R hebt Sie an, mit F sinken Sie wieder ab. Mit Umschalt bewegen Sie sich schneller. Ein Klick auf den Boden lässt Sie dorthin gehen. Auf dem Handy ist die linke Bildschirmhälfte ein Joystick, die rechte dreht den Blick. Die beiden Pfeile rechts heben oder senken Sie.
Das Bedienfeld rechts auf der Bühne hat drei Reihen. „Zelle“ wechselt zwischen Tierzelle, Pflanzenzelle und Bakterium. „Größe“ lässt Sie auf ×10 oder ×100 schrumpfen und wieder zurück. „Tempo“ stellt Ihr Gehtempo auf langsam, normal oder schnell, was bei ×100 hilft, wo normales Gehen nur 13 nm pro Sekunde schafft. Die kleine Karte oben links zeigt von oben, wo Sie sind; klicken Sie darauf, um zu dieser Stelle zu gehen.
Namensschilder erscheinen, wenn Sie sich etwas nähern, und bei ×100 benennen sie einzelne Moleküle. Die Einstellung „Alle Namensschilder“ zeigt mehr davon auf einmal. Die Teileliste und der Zellführer bringen Sie beide direkt zu dem, was Sie wählen.
Fragen
Sieht eine echte Zelle innen so aus?
Größen und Lagen folgen echten Messungen, aber eine echte Zelle ist viel voller. Proteine, RNA und kleine Moleküle füllen fast jede Lücke, und die Organellen liegen dichter als im Modell. In echter Dichte gezeichnet könnten Sie in keine Richtung weiter als ein paar Mikrometer sehen.
Warum hat die Zelle einen Boden?
Die meisten Tierzellen, die im Labor untersucht werden, wachsen auf Glas oder Kunststoff, wo sie sich flach ausbreiten und an der Oberfläche haften. Der Boden ist der Teil der Plasmamembran, der die Schale berührt. In einem Gewebe wäre die Zelle von allen Seiten von anderen Zellen umgeben.
Wie schnell bewegt sich Kinesin wirklich?
Herkömmliches Kinesin legt im Reagenzglas etwa 800 nm pro Sekunde zurück und kann in Zellen schneller sein. Das sind Schritte von 8 nm, etwa 100-mal pro Sekunde. Im Maßstab des Modells sind das 0,8 m pro Sekunde, ohne Zeitlupe schlendert es also an Ihnen vorbei, während seine Köpfe verschwimmen.
Kann ein Vesikel wirklich so weit auf einem Mikrotubulus fahren?
Ja. Kinesine tragen Vesikel, Organellen und andere Fracht an Mikrotubuli entlang, und Dynein bringt Fracht in die andere Richtung, zum Zentrosom. Ein einzelnes Kinesin lässt meist nach etwa hundert Schritten los, aber Fracht trägt oft mehrere Motoren, sodass sie weitergereicht werden und in Bewegung bleiben kann.
Warum werden Mitochondrien als einzelne Kapseln gezeigt?
Das ist das Lehrbuchbild, und es stimmt für viele Zellen, besonders in elektronenmikroskopischen Schnitten. In lebenden Zellen bilden sie oft lange verzweigte Netze, die sich ständig teilen und verschmelzen. Einzelne Kapseln sind leichter zu erkennen.
Wie viele Ribosomen hat eine Zelle?
Das hängt von der Zellart ab und davon, wie schnell sie wächst. Cell Biology by the Numbers zeigt, dass ein schnell wachsendes E. coli etwa 72.000 Ribosomen hat, mehr als ein Drittel seiner Trockenmasse. Eine Tierzelle ist im Volumen tausendmal größer oder mehr und hat noch weit mehr davon, die einigen Tausend in diesem Modell sind also eine dünne Stichprobe.
Warum kann ich im Zellkern schweben?
Das Fenster ist ein Schnittmodell, wie bei Motoren im Museum. In einer echten Zelle ist die Hülle geschlossen, und nichts so Großes wie Sie käme durch eine Kernpore.
Warum kann ich in normaler Größe nicht in das Bakterium hinein?
Weil es millionenfach vergrößert nur 2 m lang und 1 m breit ist und Ihre Augen in 1,6 m Höhe liegen. Zehnmal geschrumpft sind Sie 160 nm groß, und das Bakterium wird zu einem 10 m breiten Tunnel. Das ist dasselbe Größenverhältnis wie in Wirklichkeit: Eine E.-coli-Zelle ist etwa so groß wie ein Mitochondrium, und eine Tierzelle könnte Tausende davon aufnehmen.
Sind die Moleküle wirklich so dicht gepackt?
In der Gedrängekiste und im Lipidboden ja. Cell Biology by the Numbers beziffert den Proteingehalt von Zellen auf etwa 3 Millionen Proteine pro Kubikmikrometer, und die Kiste ist in dieser Dichte gefüllt. Anderswo sind die Molekülmodelle ausgedünnt, damit Sie einzelne finden, und die Pünktchen um Sie herum sind nur eine symbolische Menge.
Warum ist die Pflanzenzelle in der Mitte so leer?
Die Mitte ist die Zentralvakuole, ein Sack aus Wasser, Salzen und Farbstoffen. In vielen Blattzellen nimmt sie 80% des Volumens oder mehr ein. Ihr Druck gegen die Wand hält die weichen Teile einer Pflanze straff, und eine Pflanze welkt, wenn die Vakuolen Wasser verlieren.
Wie verändern die Größen-Schaltflächen, was ich sehe?
Sie machen Sie kleiner, während die Zelle gleich bleibt. Bei ×10 ist jede Länge vor Ihnen zehnmal größer als vorher, ein Ribosom, das eine Murmel war, wird zum Fußball. Das Maßstabsfeld zeigt immer die aktuelle Vergrößerung, wofür ein Meter steht, und Ihre eigene Größe in echten Einheiten.
Begriffe
- Organell: ein Teil der Zelle mit eigener Aufgabe, etwa der Zellkern oder ein Mitochondrium.
- Cytosol: das wässrige Gel, das die Zelle um die Organellen füllt.
- Phospholipid-Doppelschicht: die zwei Schichten aus Lipidmolekülen, aus denen Zellmembranen bestehen.
- Kernhülle: die Doppelmembran um den Zellkern.
- Kernporenkomplex: ein Proteinring von etwa 120 nm, der einen Kanal durch die Kernhülle bildet.
- Chromatin: DNA, um Histonproteine gewickelt, die Form der DNA im Zellkern.
- Endoplasmatisches Retikulum (ER): ein Netz aus Membransäcken und Röhren. Das raue ER trägt Ribosomen, das glatte nicht.
- Zisterne: ein flacher Sack des ER oder des Golgi-Apparats.
- Cristae: die Falten der inneren Mitochondrienmembran.
- Mikrotubulus: eine hohle Röhre aus Tubulin, etwa 25 nm breit.
- Motorprotein: ein Protein, das sich mit ATP an einem Filament entlangbewegt. Kinesin und Dynein laufen auf Mikrotubuli.
- ATP: Adenosintriphosphat, das kleine Molekül, mit dem Zellen Energie transportieren.
- Vakuole: der große Wassersack einer Pflanzenzelle, umhüllt von einer Membran namens Tonoplast.
- Chloroplast: das Organell, in dem die Photosynthese abläuft, mit Thylakoidstapeln im Inneren.
- Plasmodesmos: ein Kanal durch die Wand der Pflanzenzelle, der zwei Nachbarzellen verbindet.
- Nucleoid: der Bereich eines Bakteriums, in dem sein Chromosom liegt, ohne Membran darum.
- Peptidoglykan: das Netz aus Zuckerketten und kurzen Peptiden, das die Zellwand von Bakterien bildet.
- Geißelmotor: der Drehmotor in der Bakterienhülle, der die Geißel dreht.
- Vergrößerung: wie viel größer das Modell als das Original ist. ×10 und ×100 vervielfachen die anfänglichen 1.000.000.
Quellen
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is a human cell? https://book.bionumbers.org/how-big-is-a-human-cell/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are nuclei? https://book.bionumbers.org/how-big-are-nuclei/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are mitochondria? https://book.bionumbers.org/how-big-are-mitochondria/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is the endoplasmic reticulum of cells? https://book.bionumbers.org/how-big-is-the-endoplasmic-reticulum-of-cells/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the thickness of the cell membrane? https://book.bionumbers.org/what-is-the-thickness-of-the-cell-membrane/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What are the sizes of the cell's filaments? https://book.bionumbers.org/what-are-the-sizes-of-the-cells-filaments/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How fast do molecular motors move on cytoskeletal filaments? https://book.bionumbers.org/how-fast-do-molecular-motors-move-on-cytoskeletal-filaments/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are the molecular machines of the central dogma? https://book.bionumbers.org/how-big-are-the-molecular-machines-of-the-central-dogma/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: The geography of the cell. https://book.bionumbers.org/the-geography-of-the-cell/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big are genomes? https://book.bionumbers.org/how-big-are-genomes/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How many ribosomes are in a cell? https://book.bionumbers.org/how-many-ribosomes-are-in-a-cell/ (abgerufen am 16. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Kinesin. https://pdb101.rcsb.org/motm/64 (abgerufen am 16. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Nuclear Pore Complex. https://pdb101.rcsb.org/motm/205 (abgerufen am 16. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Ribosomal Subunits. https://pdb101.rcsb.org/motm/10 (abgerufen am 16. Oktober 2026)
- Nature Education, Scitable: Mitochondria. https://www.nature.com/scitable/topicpage/mitochondria-14053590/ (abgerufen am 16. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How large are chloroplasts?. https://book.bionumbers.org/how-large-are-chloroplasts/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is an E. coli cell and what is its mass?. https://book.bionumbers.org/how-big-is-an-e-coli-cell-and-what-is-its-mass/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the frequency of rotary molecular motors?. https://book.bionumbers.org/what-is-the-frequency-of-rotary-molecular-motors/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How fast do proteasomes degrade proteins?. https://book.bionumbers.org/how-fast-do-proteasomes-degrade-proteins/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How many ions pass through an ion channel per second?. https://book.bionumbers.org/how-many-ions-pass-through-an-ion-channel-per-second/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What are the rates of membrane transporters?. https://book.bionumbers.org/what-are-the-rates-of-membrane-transporters/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How long do the different stages of the cell cycle take?. https://book.bionumbers.org/how-long-do-the-different-stages-of-the-cell-cycle-take/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How many proteins are in a cell?. https://book.bionumbers.org/how-many-proteins-are-in-a-cell/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: How big is the average protein?. https://book.bionumbers.org/how-big-is-the-average-protein/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is faster, transcription or translation?. https://book.bionumbers.org/what-is-faster-transcription-or-translation/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the pH of a cell?. https://book.bionumbers.org/what-is-the-ph-of-a-cell/ (abgerufen am 17. Oktober 2026)
- Milo, R. and Phillips, R., Cell Biology by the Numbers: What is the range of cell sizes and shapes?. https://book.bionumbers.org/what-is-the-range-of-cell-sizes-and-shapes/ (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 4.3 Eukaryotic Cells. https://openstax.org/books/biology-2e/pages/4-3-eukaryotic-cells (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 4.2 Prokaryotic Cells. https://openstax.org/books/biology-2e/pages/4-2-prokaryotic-cells (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 4.4 The Endomembrane System and Proteins. https://openstax.org/books/biology-2e/pages/4-4-the-endomembrane-system-and-proteins (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 4.5 The Cytoskeleton. https://openstax.org/books/biology-2e/pages/4-5-the-cytoskeleton (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 4.6 Connections between Cells and Cellular Activities. https://openstax.org/books/biology-2e/pages/4-6-connections-between-cells-and-cellular-activities (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 10.2 The Cell Cycle. https://openstax.org/books/biology-2e/pages/10-2-the-cell-cycle (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 10.5 Prokaryotic Cell Division. https://openstax.org/books/biology-2e/pages/10-5-prokaryotic-cell-division (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 15.5 Ribosomes and Protein Synthesis. https://openstax.org/books/biology-2e/pages/15-5-ribosomes-and-protein-synthesis (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 15.2 Prokaryotic Transcription. https://openstax.org/books/biology-2e/pages/15-2-prokaryotic-transcription (abgerufen am 17. Oktober 2026)
- OpenStax, Biology 2e, 3.4 Proteins. https://openstax.org/books/biology-2e/pages/3-4-proteins (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: ATP Synthase. https://pdb101.rcsb.org/motm/72 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Potassium Channels. https://pdb101.rcsb.org/motm/38 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Sodium-Potassium Pump. https://pdb101.rcsb.org/motm/118 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Adrenergic Receptors. https://pdb101.rcsb.org/motm/100 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Aquaporin. https://pdb101.rcsb.org/motm/173 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Clathrin. https://pdb101.rcsb.org/motm/88 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Proteasome. https://pdb101.rcsb.org/motm/166 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Hsp90. https://pdb101.rcsb.org/motm/108 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Chaperones. https://pdb101.rcsb.org/motm/32 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: RNA Polymerase. https://pdb101.rcsb.org/motm/40 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Nucleosome. https://pdb101.rcsb.org/motm/7 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Ribosome. https://pdb101.rcsb.org/motm/121 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Elongation Factors. https://pdb101.rcsb.org/motm/81 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Actin. https://pdb101.rcsb.org/motm/19 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Microtubules. https://pdb101.rcsb.org/motm/175 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Dynein. https://pdb101.rcsb.org/motm/176 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Myosin. https://pdb101.rcsb.org/motm/18 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Rubisco. https://pdb101.rcsb.org/motm/11 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Photosystem II. https://pdb101.rcsb.org/motm/59 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Flagellar Motor. https://pdb101.rcsb.org/motm/300 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Pilus Machine. https://pdb101.rcsb.org/motm/211 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Penicillin-binding Proteins. https://pdb101.rcsb.org/motm/29 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Catalase. https://pdb101.rcsb.org/motm/57 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: SNARE Proteins. https://pdb101.rcsb.org/motm/167 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Vacuolar ATPase. https://pdb101.rcsb.org/motm/219 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Glycogen Phosphorylase. https://pdb101.rcsb.org/motm/24 (abgerufen am 17. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Cellulose Synthase. https://pdb101.rcsb.org/motm/254 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 106729: Diameter of peroxisome (0.1 to 1.0 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=106729 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 113930: Organelle numbers in COS-7 cells (lipid droplets, peroxisomes, lysosomes about 90 to 190 each). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=113930 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 104378: Diameter of late endosome in HeLa cells (0.76 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104378 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 104387: Diameter of late endosome, Rab9-depleted HeLa cells (0.42 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104387 (abgerufen am 17. Oktober 2026)
- Fujimoto and Parton, Not Just Fat: The Structure and Function of the Lipid Droplet, Cold Spring Harb Perspect Biol 2011 (PMC3039932). https://pmc.ncbi.nlm.nih.gov/articles/PMC3039932/ (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 105741: Size of canonical centriole (about 0.5 × 0.2 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=105741 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 106125: Diameter of intermediate filaments (8 to 10 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=106125 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 112144: Number of clathrin-coated structures per cell (about 9,000). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=112144 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 112147: Clathrin-coated pit mean lifetime (about 40 s). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=112147 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 104385: Diameter of endocytic vesicle (100 ± 30 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104385 (abgerufen am 17. Oktober 2026)
- MetaCyc (SRI International): glycogen, β particles about 20 to 30 nm. https://biocyc.org/META/new-image?object=Glycogens (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 107396: Beta hairpin folding time (6 µs). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=107396 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 111269: GFP folding time (600 s). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=111269 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 102727: Diameter of a vesicle (40 to 80 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=102727 (abgerufen am 17. Oktober 2026)
- OpenStax Biology 2e, 5.4 Bulk Transport. https://openstax.org/books/biology-2e/pages/5-4-bulk-transport (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 102983: Diameter of entire mitotic chromosome (1,400 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=102983 (abgerufen am 17. Oktober 2026)
- Betterton and McIntosh, Regulation of chromosome speeds in mitosis, Cell Mol Bioeng 2013 (PMC4578309). https://pmc.ncbi.nlm.nih.gov/articles/PMC4578309/ (abgerufen am 17. Oktober 2026)
- Focus on cell walls, Plant Physiology 2024 (PMC10756750). https://pmc.ncbi.nlm.nih.gov/articles/PMC10756750/ (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 100594: Plasmodesmata diameter (50 nm, 20 to 200). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100594 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 100593: Plasmodesmata per µm² of cell wall (2 to 10). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100593 (abgerufen am 17. Oktober 2026)
- Zeeman et al., Starch Synthesis in Arabidopsis. Granule Synthesis, Composition, and Structure, Plant Physiol 2002 (PMC161669). https://pmc.ncbi.nlm.nih.gov/articles/PMC161669/ (abgerufen am 17. Oktober 2026)
- Goldstein and van de Meent, A physical perspective on cytoplasmic streaming, Interface Focus 2015 (PMC4590424). https://pmc.ncbi.nlm.nih.gov/articles/PMC4590424/ (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 104947: Width of cell envelope of E. coli B (28.7 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=104947 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 108581: Thickness of peptidoglycan (Gram-negative a few nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=108581 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 109343: Diameter of bacterial flagellum (about 20 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=109343 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 100095: Typical length of E. coli flagella (5 to 10 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100095 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 100105: Diameter of E. coli pili (7 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100105 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 100104: Length of E. coli pili (1 to 2 µm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100104 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 101473: Number of pili per E. coli cell (100 to 300). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=101473 (abgerufen am 17. Oktober 2026)
- Briegel et al., Universal architecture of bacterial chemoreceptor arrays, PNAS 2009 (PMC2761316; E. coli array about 53,000 nm², about 5,200 receptors). https://pmc.ncbi.nlm.nih.gov/articles/PMC2761316/ (abgerufen am 17. Oktober 2026)
- OpenStax Microbiology, 3.3 Unique Characteristics of Prokaryotic Cells. https://openstax.org/books/microbiology/pages/3-3-unique-characteristics-of-prokaryotic-cells (abgerufen am 17. Oktober 2026)
- RCSB PDB 3DKN: Sec61 in the canine ribosome-channel complex. https://www.rcsb.org/structure/3dkn (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 100121: Diameter of 70S ribosome (26 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100121 (abgerufen am 17. Oktober 2026)
- BioNumbers BNID 100483: Ribosome diameter (30 nm). https://bionumbers.hms.harvard.edu/bionumber.aspx?id=100483 (abgerufen am 17. Oktober 2026)
Themenpfad 1 von 5
Zu Fuß: von der Zelle bis zum SonnensystemThemenpfad 2 von 3
Vom Herzschlag zur DNAWeitere Exponate
So funktioniert Genom-Editierung mit CRISPR-Cas9
Eine Guide-RNA liest nur 20 Buchstaben der DNA, und das genügt meist, um eine einzige Stelle unter den 3 Milliarden Basenpaaren eines menschlichen Genoms zu finden.
Zwischen Dinosauriern in Originalgröße
Ein 600 m großer Park mit 172 Urzeittieren in Originalgröße, von den ersten Dinosauriern bis T. rex, nach Zeitaltern geordnet.
Wie groß waren Mammuts? Vergleich mit Eiszeittieren
Ein 600 m großer Park mit 65 Tieren der letzten Eiszeit in Lebensgröße, vom Wollhaarmammut bis zur Säbelzahnkatze, mit einem Zeitregler über 50.000 Jahre.
Evolution des Menschen: Zeitstrahl in Lebensgröße erkunden
Lucy war etwa 1,1 m groß. Gehen Sie durch 7 Millionen Jahre menschlicher Verwandter in Lebensgröße, mit sich selbst daneben.
Herzschlag: interaktives Herzmodell Schritt für Schritt
Ihr Herz wirft mit jedem Schlag etwa 70 mL Blut aus und tut das im Ruhetempo etwa 108.000-mal am Tag.
Gewicht und Sprunghöhe auf anderen Planeten und Monden
Ein Sprung von 50 cm auf der Erde wird auf dem Mond 3 m hoch, auf Ceres 18 m und führt vom Asteroiden Bennu endgültig fort.