ABB. 42So funktioniert's
So funktioniert Genom-Editierung mit CRISPR-Cas9
Eine Guide-RNA liest nur 20 Buchstaben der DNA, und das genügt meist, um eine einzige Stelle unter den 3 Milliarden Basenpaaren eines menschlichen Genoms zu finden.
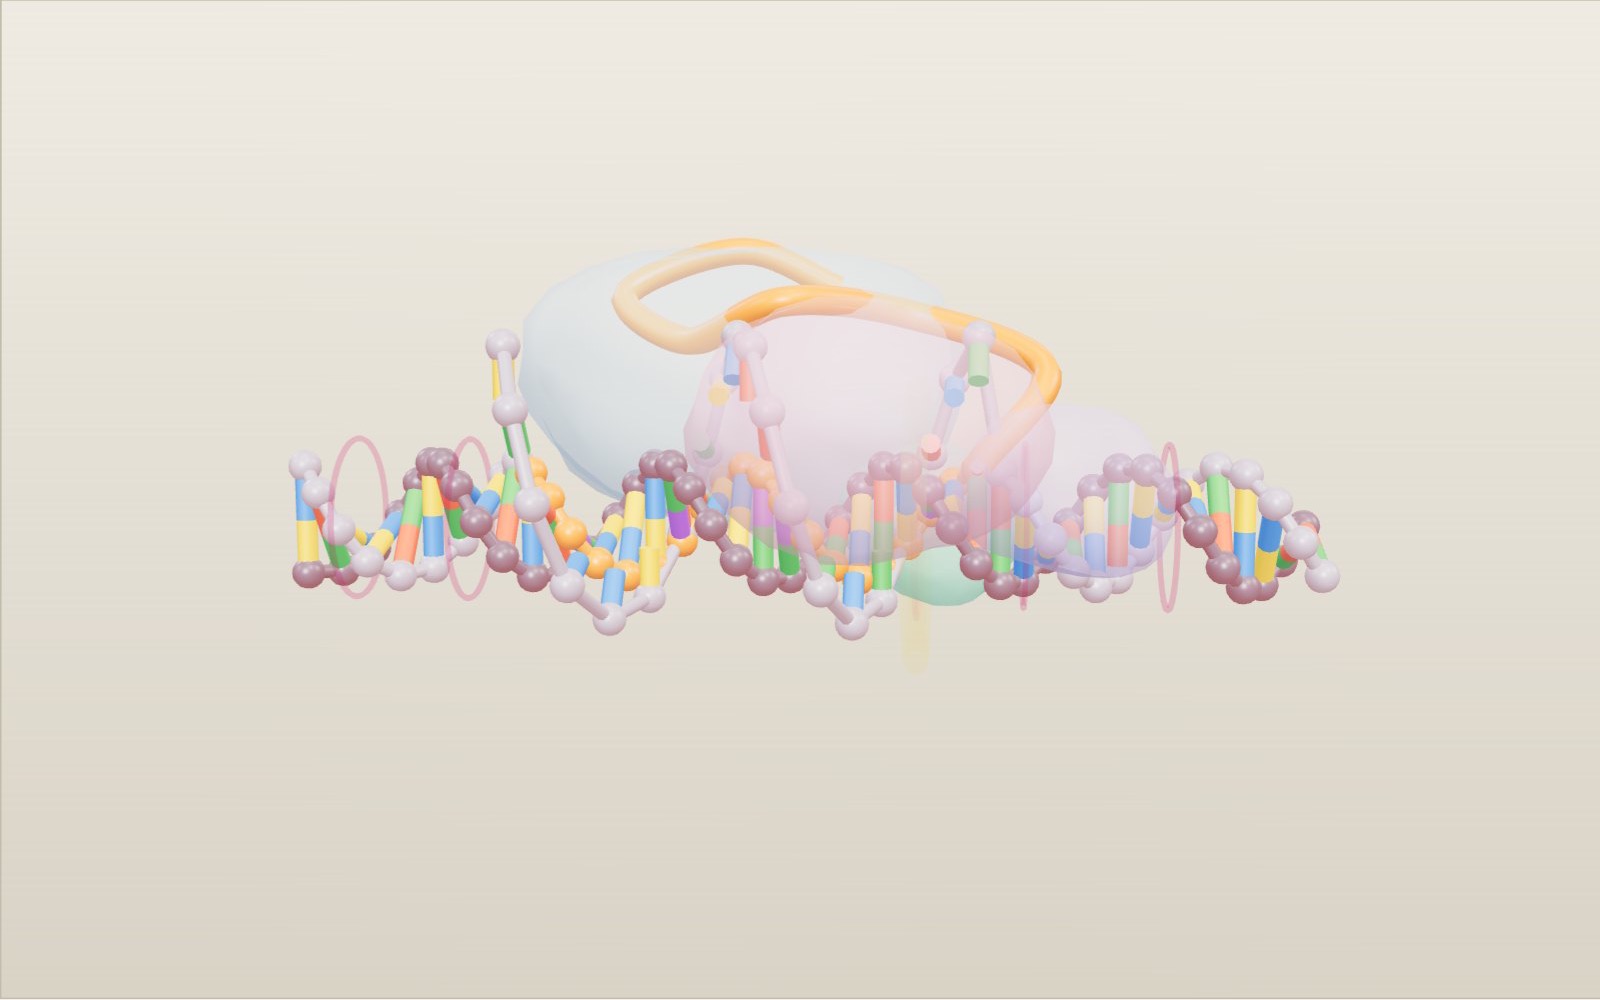
Dieses Gerät kann das 3D-Modell nicht anzeigen. Die Schritte des Rundgangs unten lassen sich als Text lesen.
1 / 8 Ein DNA-Abschnitt im MaßstabDas sind 44 Basenpaare DNA, etwa 15 nm lang. Die schwarzen Balken zeigen den Maßstab: Die Helix ist 2 nm breit und windet sich alle 3,4 nm einmal. Die Sequenz ist ein für das Modell ausgedachtes Beispiel.
Ziehen zum Drehen. Mausrad oder zwei Finger zum Zoomen.
Wie findet ein Protein eine einzige Stelle in einem ganzen Genom?
Eine Kopie des menschlichen Genoms umfasst etwa 3 Milliarden Basenpaare. Angenommen, Sie wollen ein einzelnes Gen verändern. Dann brauchen Sie ein Werkzeug, das die DNA liest, einen kurzen Abschnitt erkennt und genau dort schneidet, alle anderen Abschnitte aber in Ruhe lässt. Frühere Werkzeuge, Zinkfinger-Nukleasen und TALENs, brauchten für jedes Ziel ein neu entworfenes Protein, und Proteindesign ist langsam und schwierig. CRISPR-Cas9 hat das geändert. Das Protein bleibt gleich, neu geschrieben wird nur eine kurze Guide-RNA.
Diese Ausstellung baut das System im molekularen Maßstab nach. Ein kurzes DNA-Stück liegt quer über der Bühne, und Cas9 kommt mit seiner Guide-RNA herein. Sie können verfolgen, wie das Protein ein PAM findet, die Guide-RNA mit 20 DNA-Basen paart, beide Stränge schneidet und die Reparatur des Bruchs der Zelle überlässt. Über dem Modell gibt es ein Feld, in das Sie eine eigene Guide-Sequenz tippen können. Passen die Buchstaben nicht, hört die Paarung auf, und nichts wird geschnitten. Die Zahlen stammen vom Nobelkomitee für Chemie, von OpenStax, von der RCSB Protein Data Bank und vom US-amerikanischen National Human Genome Research Institute. Die Quellen stehen am Ende.
DNA im Maßstab des Modells
DNA besteht aus zwei umeinander gewundenen Strängen. Jeder Strang ist eine Kette aus Zuckern und Phosphaten, und jeder Zucker trägt eine von vier Basen: A, C, G oder T. A auf dem einen Strang paart sich mit T auf dem anderen, C mit G, sodass sich jeder Strang aus seinem Partner ablesen lässt. Im Modell sind die Basen so gefärbt: A grün, T rot, G gelb und C blau. Die RNA-Base U, die in RNA den Platz von T einnimmt, ist violett.
Die häufige Form der DNA, die B-DNA, hat feste Maße. Die Doppelhelix ist 2 nm breit. Benachbarte Basenpaare liegen 0,34 nm auseinander, und die Helix macht alle 3,4 nm eine volle Windung, also alle 10 Basenpaare. Die schwarzen Balken am linken Ende des Modells zeigen die Breite von 2 nm und eine Windung von 3,4 nm. Das Modell hat 44 Basenpaare und ist damit 44 × 0,34 = 15 nm lang.
Die beiden Stränge verlaufen in entgegengesetzte Richtungen. Chemiker bezeichnen die Enden mit 5′ und 3′, und Sequenzen werden von 5′ nach 3′ geschrieben. Im Modell verläuft der graue Strang von links nach rechts von 5′ nach 3′, der dunkle Strang andersherum. Der graue Strang trägt dieselben Buchstaben wie die Guide-RNA (mit T, wo die Guide-RNA U hat), und mit dem dunklen Strang paart sich die Guide-RNA.
Ein bakterielles Gedächtnis für Viren
CRISPR begann als Rätsel in Bakteriengenomen. 1987 bemerkten Forschende ein seltsames Muster in der DNA von Escherichia coli: fünf Kopien einer Sequenz aus 29 Basenpaaren, getrennt durch 32 Basenpaare einer jedes Mal anderen Sequenz. Ähnliche Anordnungen tauchten in vielen Bakterien und Archaeen auf, und für sie wurde der Name CRISPR geprägt, englisch für clustered regularly interspaced short palindromic repeats, also gehäufte, regelmäßig unterbrochene kurze palindromische Wiederholungen. Neben den Arrays lag eine Gruppe von Genen, cas genannt für CRISPR-assoziiert, die für Proteine codierten, die Enzymen zum Entwinden und Schneiden von Nukleinsäuren ähnelten.
2005 berichteten drei Gruppen, dass die Spacer zwischen den Wiederholungen mit der DNA von Viren und Plasmiden übereinstimmten. Bakterien mit einem bestimmten Spacer wurden selten von einem Virus mit der passenden Sequenz infiziert. 2007 zeigte ein Experiment mit Streptococcus thermophilus den Zusammenhang direkt. Bakterien, die den Angriff eines Virus überlebt hatten, hatten neue, von diesem Virus kopierte Spacer gewonnen und waren nun gegen es resistent. Entfernte man den Spacer, verschwand die Resistenz.
Das CRISPR-Array funktioniert also wie ein Verzeichnis früherer Infektionen. Das Array wird in eine lange RNA abgeschrieben, die in kurze CRISPR-RNAs zerschnitten wird, eine pro Spacer. Jede kurze RNA verbindet sich mit Cas-Proteinen und führt sie zu DNA mit der passenden Sequenz. Das System von Streptococcus braucht zum Schneiden nur ein Protein, Cas9, zusammen mit einer zweiten kleinen RNA, der tracrRNA, die die Gruppe von Emmanuelle Charpentier 2011 beschrieb.
Cas9 und seine Guide-RNA
Cas9 aus Streptococcus pyogenes ist ein großes Protein. Die Kette in der Kristallstruktur 4OO8 der Protein Data Bank hat 1372 Aminosäuren und wiegt etwa 159 Kilodalton. Diese Struktur, 2014 mit einer Auflösung von 2,5 Å bestimmt, zeigte zwei Lappen. Der Erkennungslappen (REC) hält die Guide-RNA und das RNA-DNA-Paar. Der Nuklease-Lappen enthält die beiden Schneidedomänen HNH und RuvC und nahe seinem äußeren Ende eine PAM-Interaktionsdomäne.
Im Modell ist das Protein als vier weiche Klumpen an diesen Positionen gezeichnet. Die Formen sind erfunden und durchsichtig, damit Sie RNA und DNA im Inneren verfolgen können. Schalten Sie unter „Steuerung“ „Innen ansehen“ ein, um sie noch blasser zu machen.
In Bakterien trägt Cas9 zwei RNAs, die crRNA mit dem Spacer und die tracrRNA, die sie an ihrem Platz hält. 2012 verbanden Charpentier, Jennifer Doudna und ihre Kollegen die beiden zu einer einzigen Guide-RNA. Die Guide-RNA hat zwei Teile. Die ersten 20 Buchstaben, der Spacer, wählen das Ziel. Der Rest faltet sich zu einem Gerüst, das im Protein sitzt und im Modell als orangefarbener Schlauch gezeichnet ist. Ändern Sie die 20 Buchstaben, und dasselbe Protein geht an eine andere Stelle.
Schritt eins: ein PAM finden
Cas9 prüft nicht jeden DNA-Abschnitt gegen seine Guide-RNA. Zuerst sucht es ein protospacer adjacent motif, kurz PAM. Für Cas9 aus S. pyogenes ist das NGG auf dem grauen Strang, direkt nach der Zielsequenz: eine beliebige Base, dann zwei G. Zwei Arginine in der PAM-Interaktionsdomäne erkennen das GG über Wasserstoffbrücken. Erst wenn das Protein ein PAM gefunden hat, biegt es die DNA daneben und beginnt, die Stränge auseinanderzuziehen.
Das PAM beantwortet auch eine Frage zu den Bakterien. Wenn der Spacer zur Virus-DNA passt, passt er auch zu seiner eigenen Kopie im CRISPR-Array. Das Bakterium schneidet sein eigenes Genom nicht, weil die Spacer im Array nicht neben einem PAM liegen, die passende Sequenz im Virus aber schon.
Im Modell ist das PAM TGG. Schalten Sie „PAM (NGG)“ unter „Steuerung“ aus, und es wird zu TGA. Cas9 schwebt dann über der DNA und treibt davon, ohne sie zu öffnen, obwohl die Guide-RNA noch in allen 20 Basen passt.
Schritt zwei: zwanzig Buchstaben, beginnend beim Seed
Neben dem PAM öffnet sich die DNA Basenpaar für Basenpaar, und die Guide-RNA paart sich mit dem dunklen Strang. Der graue Strang wird zu einer Schleife verdrängt. Diese Struktur aus RNA, gepaart mit einem DNA-Strang, und verdrängtem zweitem Strang heißt R-Schleife. Die Paarung beginnt am PAM-Ende, und die 10 Basen der Guide-RNA, die dem PAM am nächsten liegen, der Seed, sind am wichtigsten. Eine Fehlpaarung im Seed stoppt die Erkennung meist.
Das Feld über dem Modell zeigt die Zielsequenz auf dem grauen Strang von 5′ nach 3′, mit dem PAM am Ende. Die 10 Seed-Positionen sind getönt. Darunter steht die Guide-RNA. Tippen Sie in das Feld oder nutzen Sie die vier Schaltflächen:
- „Passt“: Alle 20 Buchstaben paaren sich. Die R-Schleife reicht bis zum fernen Ende, und Cas9 schneidet.
- „Fehler im Seed“: Position 17 ist verändert. Die R-Schleife öffnet 3 Basenpaare und stoppt.
- „Fehler weit weg“: Position 3 ist verändert. Die R-Schleife öffnet 17 Basenpaare und schließt sich dann wieder.
- „Anderes Gen“: eine Guide-RNA für eine ganz andere Sequenz. Nichts paart sich.
Buchstaben, die sich nicht paaren, erscheinen schwarz. Im Modell stoppt jede Fehlpaarung die Paarung an diesem Buchstaben, die DNA schließt sich, und Cas9 lässt los. Echtes Cas9 ist weniger streng, wie die folgenden Abschnitte erklären.
Schritt drei: zwei Domänen, zwei Schnitte
Hat sich die Guide-RNA entlang aller 20 Basen gepaart, ändert die HNH-Domäne ihre Form und schwenkt an den dunklen Strang. Jede Nukleasedomäne schneidet einen Strang. HNH schneidet den mit der Guide-RNA gepaarten Strang, RuvC den verdrängten grauen. Beide Schnitte liegen 3 Basenpaare vor dem PAM, an derselben Stelle beider Stränge, sodass die beiden Enden meist glatt und nicht versetzt sind.
Im Modell liegt der Schnitt zwischen den Basenpaaren 27 und 28, von links gezählt, sodass drei Basenpaare der Zielsequenz auf der PAM-Seite bleiben. Am Schnitt blitzt ein gelber Ring auf. Dann hebt Cas9 ab, und die beiden Enden rücken auseinander.
Ist eine der beiden Domänen ausgeschaltet, schneidet Cas9 nur einen Strang. Eine solche Nickase wird mit zwei Guide-RNAs eingesetzt, die nahe beieinander auf gegenüberliegende Stränge zielen. So entsteht ein Bruch nur dort, wo beide passen.
Was die Zelle mit einem gebrochenen Chromosom macht
Cas9 erzeugt nur den Bruch. Die eigentliche Änderung nehmen die Reparatursysteme der Zelle vor, die ständig mit gebrochener DNA zu tun haben. Es gibt zwei Hauptwege.
Der erste ist die nicht-homologe Endverknüpfung, kurz NHEJ. Die Zelle klebt die beiden Enden wieder zusammen. Dabei kommen an der Verbindungsstelle meist einige Basen hinzu oder gehen verloren. Innerhalb eines Gens verschiebt eine Änderung um ein oder zwei Basen den Leserahmen aller folgenden Codons, und das Gen stellt sein Protein oft nicht mehr her. Mit dem Regler „Fortschritt“ oder mit Schritt 7 der Führung sehen Sie, wie das Modell die Enden mit einem zusätzlichen Basenpaar verbindet, markiert durch einen Ring.
Der zweite ist die homologiegerichtete Reparatur, kurz HDR. Ist ein DNA-Stück vorhanden, das zu beiden Seiten des Bruchs passt, kann die Zelle es als Vorlage nutzen und über die Lücke kopieren. Liefern Forschende eine Vorlage mit veränderten Buchstaben in der Mitte, können sie eine gewählte Änderung ins Genom schreiben. Schalten Sie „Reparaturvorlage“ ein, dann erscheint die grüne Vorlage neben dem Bruch; wenn sich die Enden verbinden, übernehmen drei Basenpaare am Schnitt die Buchstaben der Vorlage.
Die Zahlen nachgeprüft
Warum genügen 20 Buchstaben? An jeder Position gibt es 4 Möglichkeiten, es gibt also 4^20 = 1.099.511.627.776 verschiedene Sequenzen aus 20 Buchstaben, etwa 1,1 × 10^12. Ein menschliches Genom hat etwa 3 × 10^9 Basenpaare, und eine Sequenz kann auf jedem der beiden Stränge liegen, also gibt es etwa 6 × 10^9 Stellen zum Suchen. Wäre das Genom zufällig, käme eine bestimmte Sequenz aus 20 Buchstaben zufällig etwa 6 × 10^9 ÷ 1,1 × 10^12 ≈ 0,005-mal vor. Unter diesem Zufallsmodell ist eine weitere exakte Kopie unwahrscheinlich; für ein reales Genom ist das keine Garantie.
Beim Seed sieht es anders aus. Zehn Seed-Buchstaben plus die zwei G des PAM legen 12 Buchstaben fest, und 4^12 = 16.777.216. Eine zufällige Sequenz enthielte dieses Muster etwa 6 × 10^9 ÷ 1,7 × 10^7 ≈ 360-mal. Cas9 kann solche Stellen manchmal schneiden, auch wenn das ferne Ende der Guide-RNA nicht gut passt. Deshalb werden Guide-Sequenzen vor dem Einsatz mit dem ganzen Genom abgeglichen. Echte Genome sind außerdem voller wiederholter Sequenzen, die wahren Zahlen sind also schlechter als die Zufallsschätzung.
Im Modell ist die Zielsequenz 20 × 0,34 = 6,8 nm lang, zwei volle Windungen der Helix. Der Schnitt liegt 3 Basenpaare, etwa 1 nm, vom PAM entfernt.
Am Bildschirm ausprobieren
Das Modell beginnt mit der Suche. Cas9 gleitet an einem kurzen, ausgedachten DNA-Stück entlang, hält an jeder NGG-Marke, und nur dort, wo die Guide passt, öffnet sich die Doppelhelix und wird geschnitten. Die Buchstaben sind für das Bild erfunden: Es zeigt die Idee, keine Labormethode.
- Drücke eine NGG-Marke in der Buchstabenzeile auf der Bühne. Cas9 fährt dorthin, und wo die Guide nicht paart, lässt es los und zieht weiter.
- Ziehe Cas9 selbst an der DNA entlang und lege es auf eine NGG-Marke.
- Wähle eine Guide mit einem falschen Buchstaben nahe der PAM oder schalte die PAM aus und sieh zu, wie Cas9 nicht schneidet.
- Drücke die Teile des Proteins, um zu lesen, was die HNH- und RuvC-Domänen, der REC-Lappen und die PAM-bindende Domäne tun.
- Öffne die Bakteriengeschichte: Ein Bakterium speichert ein Stück Virus-DNA und nutzt es, wenn das Virus wiederkommt.
- Unter den Reglern gibt es Aufgaben, versteckte Dinge, einen Größenvergleich mit einem Haar und einer Zelle und eine Geschichte von CRISPR von 1987 bis zum ersten zugelassenen Medikament.
Was das Modell weglässt
Das Protein besteht aus vier Klumpen, nicht aus der gemessenen Oberfläche, und die HNH-Domäne gleitet einfach von einer Stelle zur anderen. Die DNA ist eine gerade, regelmäßige Helix mit genau 10 Basenpaaren pro Windung, während echte DNA dort geknickt ist, wo Cas9 sie neben dem PAM greift. Die R-Schleife öffnet sich sauber Basenpaar für Basenpaar; der echte Vorgang wächst zwar auch in Schritten, aber nicht gleichmäßig. Cas9 hebt nach dem Schnitt ab, damit Sie die Enden sehen, und das Modell zeigt nicht, wie lange das echte Protein gebunden bleibt.
Auch die Regel für Fehlpaarungen ist einfacher als die echte. Echtes Cas9 toleriert einige Fehlpaarungen fern vom PAM und kann solche Stellen außerhalb des Ziels schneiden. Die Reparatur zeigt nur je ein Beispiel für jeden Weg: ein zusätzliches Basenpaar für NHEJ und drei veränderte Basenpaare für HDR. In Zellen ergibt NHEJ eine Mischung aus kleinen Insertionen und Deletionen, kein festes Ergebnis. Die Sequenz im Modell ist erfunden und gehört zu keinem echten Gen.
Vom bakteriellen Rätsel zum Laborwerkzeug
Charpentier untersuchte Streptococcus pyogenes und fand die tracrRNA, veröffentlicht im März 2011. Im selben Frühjahr lernte sie auf einer Konferenz in Puerto Rico Doudna kennen, eine Biochemikerin an der University of California, Berkeley, und die beiden beschlossen, gemeinsam an Cas9 zu arbeiten. Im Reagenzglas schnitt Cas9 mit crRNA allein keine DNA. Als sie tracrRNA hinzufügten, wurde die DNA geschnitten. Dann verschmolzen sie die beiden RNAs zu einer einzigen Guide-RNA und zeigten, dass sie durch Ändern ihrer Sequenz DNA an selbst gewählten Stellen schneiden konnten. Die Arbeit erschien 2012. Anfang 2013 zeigten andere Gruppen, dass das System Genome in menschlichen Zellen und Mauszellen editiert.
Die Königlich Schwedische Akademie der Wissenschaften verlieh den Nobelpreis für Chemie 2020 an Emmanuelle Charpentier und Jennifer A. Doudna „für die Entwicklung einer Methode zur Genom-Editierung“.
Wo es eingesetzt wird
Nach Angaben des Nobelkomitees ist CRISPR-Cas9 heute ein Standardwerkzeug der Grundlagenforschung, wo man damit Gene in Zellen und Versuchstieren verändert, um herauszufinden, was sie tun. Es wird auch in der Pflanzenzüchtung eingesetzt; die Zusammenfassung des Komitees nennt als Beispiel Reissorten, die so editiert wurden, dass sie weniger Cadmium und Arsen aus dem Boden aufnehmen. MedlinePlus von der US National Library of Medicine weist darauf hin, dass Genom-Editierung in Forschung und klinischen Studien für viele Krankheiten untersucht wird und dass das Editieren von Eizellen, Spermien oder Embryonen in den USA und vielen anderen Ländern derzeit verboten ist.
In der Europäischen Union ist ein mit CRISPR-Cas9 hergestelltes Arzneimittel zugelassen. Die Europäische Arzneimittel-Agentur erteilte Casgevy (Exagamglogen-Autotemcel) am 9. Februar 2024 eine bedingte Zulassung für Menschen ab 12 Jahren mit transfusionsabhängiger Beta-Thalassämie oder schwerer Sichelzellkrankheit. Es wird aus den eigenen Blutstammzellen der Patientin oder des Patienten hergestellt, die außerhalb des Körpers so editiert werden, dass sie mehr fetales Hämoglobin bilden. Eine bedingte Zulassung bedeutet, dass das Unternehmen nach der Zulassung weitere Nachweise liefern muss. Diese Ausstellung macht keine Aussage darüber, wie gut oder wie sicher eine Behandlung wirkt; die Seite der Agentur enthält die Einzelheiten.
Warum eine eindeutige Adresse Fehlziel-Schnitte nicht ausschließt
Die Zufallsrechnung zählt exakte Treffer, nicht alles, was das Enzym akzeptiert. Erlaubt man einen falschen Buchstaben im 20-Basen-Guide, gibt es 20 Positionen mit jeweils 3 Alternativen: 20 × 3 = 60 Nachbarsequenzen, mit dem Original also 61. Ein beispielhaftes Genom mit 3.200.000.000 Basenpaaren bietet auf beiden Strängen etwa 6.400.000.000 Startpositionen. Bei unabhängigen, gleich häufigen Basen wären 6.400.000.000 ÷ 4^20 ≈ 0,0058 zufällige exakte Treffer zu erwarten. Mit den 60 Nachbarn steigt der Wert vor Berücksichtigung eines PAM auf etwa 0,36.
Bei NGG darf N jede Base sein; jedes G hat im fiktiven Genom die Wahrscheinlichkeit 1/4. Die zusätzliche NGG-Bedingung multipliziert den Erwartungswert mit 1/16: etwa 0,022 für die 61 Sequenzen. Das sind erwartete Anzahlen zufälliger Muster, keine klinischen Risikoprozente oder gemessenen Schnittraten. Die beabsichtigte Zielstelle, die wegen ihrer Existenz ausgewählt wurde, ist darin nicht enthalten. Auch wird nicht jeder tolerierte Fehler geschnitten. Wiederholungen, ungleiche Basenhäufigkeiten, DNA-Verpackung, Patientenvarianten und Fehlerpositionen verletzen die Annahmen. Ein dupliziertes Gen kann eine fast identische Zielstelle liefern, obwohl die Zufallsrechnung wenige Treffer vorhersagt.
Deshalb beginnt das Guide-Design mit einer Suche im relevanten Genom und geht mit experimentellen Messungen weiter. Ein vorhergesagtes Fehlziel ist ein Untersuchungskandidat, kein bewiesener Schaden; fehlende Nachweise hängen auch von der Empfindlichkeit des Tests ab. Kleinstiver und Kollegen beschrieben 2016 SpCas9-HF1 mit abgeschwächten unspezifischen DNA-Kontakten. Bei vielen getesteten Guides blieb die Zielaktivität hoch und nachweisbare Fehlzielaktivität sank. „Nicht nachweisbar“ gilt für diese Versuche, nicht für jede Zelle und jeden Guide. Höhere Genauigkeit kann an manchen Zielen gewünschte Aktivität kosten; Spezifität und Effizienz sind gemeinsam zu messen. Die strenge Fehlerregel des Modells ist didaktisch und simuliert dieses veränderte Protein nicht.
Buchstaben ändern, ohne beide Stränge zu brechen
Der Vorlagenschalter zeigt HDR nach einem Bruch, nicht jede präzise Editierung. Komor und Kollegen verbanden 2016 eine DNA-adressierende Cas9-Komponente mit einer Cytidin-Desaminase. Diese wandelt Cytidin in freiliegender DNA in Uridin um; weitere Verarbeitung kann C zu T machen, vom Gegenstrang aus G zu A. Spätere Konstruktionen nutzen eine Nickase, die einen Strang schneidet, um das gewünschte Ergebnis zu begünstigen. Ein vermiedener absichtlicher Doppelstrangbruch bedeutet weder völligen Verzicht auf Einzelstrangschnitte noch das Fehlen unerwünschter Produkte.
Ein Baseneditor wirkt in einem Editierfenster, nicht auf jeden beliebigen Buchstaben neben dem Guide. Weitere geeignete Basen im Fenster können als Begleitveränderungen ebenfalls editiert werden. Das PAM begrenzt weiterhin die Bindestellen. Transport in die richtigen Zellen, Änderungen anderswo und der Anteil korrekt editierter Zellen bleiben Versuchsfragen. Die Technik passt, wenn ihre chemische Umwandlung zur benötigten Änderung passt; sie ist keine beliebige Rechtschreibkorrektur des Genoms.
Beim 2019 von Anzalone und Kollegen beschriebenen Prime Editing ist eine Cas9-Nickase mit einer reversen Transkriptase verbunden. Die verlängerte Guide-RNA, pegRNA, trägt Zieladresse und Vorlage für die Änderung. Das Enzym kopiert RNA-Information in DNA; danach muss die Zelle das Zwischenprodukt auflösen. So sind Basenaustausche sowie kleine Insertionen und Deletionen ohne separate Spender-DNA und absichtlichen Doppelstrangbruch möglich. Zelluläre Reparatur bleibt nötig; Effizienz und Nebenprodukte hängen von Ziel und Konstruktion ab. Beide Verfahren werden hier nicht animiert. Das grüne Vorlagenobjekt ist DNA für HDR, keine pegRNA; der Schnitt beider Stränge gehört zur herkömmlichen Cas9-Editierung.
Was Casgevy in Patientenzellen verändert
Casgevy ist ein Beispiel für Editierung außerhalb des Körpers. Die britische MHRA meldete die Zulassung am 16. November 2023; ihre Mitteilung nennt den 15. November als Entscheidungsdatum. Die US-FDA genehmigte Casgevy am 8. Dezember 2023 für Menschen ab 12 Jahren mit Sichelzellkrankheit und wiederkehrenden vasookklusiven Krisen. Indikationen und Zugangsbedingungen müssen bei jeder Behörde nachgelesen werden und sind nicht automatisch länderübergreifend gleich. Diese Daten bezeichnen Erstentscheidungen, keine vollständige Liste späterer Zulassungen.
Abnormes adultes Hämoglobin kann rote Blutkörperchen sichelförmig versteifen und den Blutfluss behindern. Casgevy ersetzt nicht unmittelbar die Sichelzellmutation in sämtlichen Körperzellen. Blutbildende Stammzellen werden entnommen, außerhalb des Körpers mit CRISPR-Cas9 editiert und zurückinfundiert. Die Änderung betrifft die Regulation fetalen Hämoglobins, sodass die roten Nachkommen der behandelten Stammzellen mehr davon bilden. Fetales Hämoglobin kann die Sichelbildung trotz weiter bestehender erblicher Mutation reduzieren. Ein veränderter Regulator kann eine Krankheit ausgleichen, ohne ihren ursprünglichen DNA-Buchstaben zu korrigieren.
Die Infusion ist nur ein Teil einer aufwendigen Behandlung. Laut FDA bereitet zunächst hoch dosierte Chemotherapie das Knochenmark vor. Entnahme, Herstellung, Konditionierung, Anwachsen und Nachsorge beeinflussen das Ergebnis; die Guide-Sequenz allein ist keine Therapie. Eigene Zellen beseitigen weder Chemotherapierisiken noch die Notwendigkeit langfristiger Überwachung. Es ist eine somatische Behandlung: Die editierten Blutzellen werden nicht zu Ei- oder Samenzellen; eine Vererbung an Kinder ist nicht beabsichtigt. Das Modell verwendet eine erfundene Zielsequenz und zeigt weder das Casgevy-Ziel noch klinische Herstellung, Eignung oder individuelle Erfolgsaussichten.
Was der Bildschirm über vererbbare Eingriffe nicht entscheidet
Blutstammzell- und Embryoeditierung werfen unterschiedliche Fragen auf. Ein Eingriff im Embryo könnte viele Gewebe erreichen, einschließlich späterer Vorläufer von Ei- oder Samenzellen. Veränderungen könnten Nachkommen betreffen, die nicht einwilligen konnten. Werden nur einige frühe Zellen editiert, entsteht möglicherweise ein Mosaik mit unterschiedlichen Änderungen in Zellpopulationen. Eine unauffällige Probe beweist keine einheitliche Editierung sämtlicher Gewebe. Selbst eine korrekt platzierte Änderung belegt weder medizinische Rechtfertigung noch gerechten Zugang.
Die WHO-Empfehlungen von 2021 unterscheiden somatische, Keimbahn- und vererbbare Editierung. Sie verlangen Aufsicht, Register, internationale Zusammenarbeit und Meldewege für illegale, unregistrierte, unethische oder unsichere Forschung. Das ist ein Rahmen für Aufsicht, keine weltweite Erlaubnis oder ein automatischer Ersatz nationaler Gesetze. Der Chemienobelpreis 2020 würdigte Charpentiers und Doudnas Methodenentwicklung, nicht jede mögliche Anwendung.
Beginnen Sie auf dem Bildschirm mit „Passt“ und aktiviertem PAM (NGG); bewegen Sie den Fortschritt durch Schnitt und Reparatur. Deaktivieren Sie PAM bei gleichem Guide: Die passende Adresse allein reicht nicht. Aktivieren Sie es wieder und vergleichen Sie „Fehler im Seed“ und „Fehler weit weg“. Beide verhindern hier den Schnitt, stoppen die Paarung aber an verschiedenen Stellen; gleiche biologische Risiken sind damit nicht belegt. Vergleichen Sie die Reparatur mit und ohne Vorlage. Die Produkte zeigen Reparaturwege, keine Häufigkeiten in Zellen. Notieren Sie PAM-Zustand, Stoppstelle und Reparaturprodukt. Das misst weder Therapiesicherheit noch Embryonenviabilität oder Einwilligung.
Fragen
Wofür steht CRISPR?
Für clustered regularly interspaced short palindromic repeats, gehäufte, regelmäßig unterbrochene kurze palindromische Wiederholungen. Der Name beschreibt die Arrays in Bakteriengenomen, in denen kurze Wiederholungen mit Spacern abwechseln. Das Editierwerkzeug ist nach ihnen benannt, und Cas9 ist das CRISPR-assoziierte Protein Nummer 9.
Warum braucht Cas9 ein PAM?
Damit kann das Bakterium Virus-DNA von seinem eigenen CRISPR-Array unterscheiden. Das Array enthält dieselben Spacer-Sequenzen, aber kein PAM daneben, deshalb lässt Cas9 es in Ruhe. Für das Werkzeug bedeutet das, dass ein Ziel neben NGG liegen muss.
Was passiert, wenn die Guide-RNA einen falschen Buchstaben hat?
Das hängt davon ab, wo der Buchstabe steht. Eine Fehlpaarung in den 10 Seed-Basen neben dem PAM stoppt die Erkennung meist. Fehlpaarungen weiter weg werden manchmal toleriert, und das ist eine Ursache für Schnitte an unbeabsichtigten Stellen. Das Modell wendet eine einfachere Regel an: Jede Fehlpaarung stoppt die Paarung.
Verändert Cas9 selbst die DNA-Sequenz?
Nein. Cas9 schneidet nur beide Stränge. Die Änderung entsteht durch die Reparatur der Zelle: Die Endverknüpfung fügt meist einige Basen hinzu oder entfernt sie, und die Reparatur nach Vorlage kopiert eine Sequenz, die Forschende bereitstellen.
Warum schneiden die HNH- und die RuvC-Domäne verschiedene Stränge?
Sie sitzen auf verschiedenen Seiten der geöffneten DNA. HNH liegt dem mit der Guide-RNA gepaarten Strang gegenüber, RuvC dem verdrängten Strang. Beide schneiden 3 Basenpaare vom PAM entfernt, sodass der Bruch sauber durch beide Stränge geht.
Wie groß ist Cas9 im Vergleich zur DNA?
Die Kette in der PDB-Struktur 4OO8 hat 1372 Aminosäuren, etwa 159 Kilodalton. Sie hält die Guide-RNA und das RNA-DNA-Paar aus 20 Basenpaaren in einer Furche zwischen ihren beiden Lappen. Dieses Paar entspricht zwei Helixwindungen, etwa 6,8 nm lang, während die DNA selbst 2 nm breit ist.
Wer hat CRISPR entdeckt?
Viele Gruppen haben beigetragen. Die Wiederholungen wurden 1987 zuerst beschrieben, ihr Zusammenhang mit Viren 2005 und ihre Rolle in der Immunität 2007. Charpentier und Doudna zeigten 2012, dass sich Cas9 mit einer einzigen Guide-RNA so programmieren lässt, dass es DNA an einer gewählten Stelle schneidet, und teilten sich den Nobelpreis für Chemie 2020.
Garantiert hochgenaues Cas9 das Ausbleiben von Fehlziel-Editierungen?
Nein. Gemessene Reduktionen hängen von Guide, Zelltyp und Nachweisgrenze ab. Auch SpCas9-HF1 muss mit dem vorgesehenen Ziel und Transportverfahren geprüft werden.
Ist die grüne Reparaturvorlage ein Prime-Editing-Guide?
Nein. Sie ist Spender-DNA für HDR nach dem Doppelstrangbruch. Eine pegRNA ist RNA mit Zieladresse und Information, die eine reverse Transkriptase für die Änderung nutzt.
Vererbt Casgevy die Änderung an Kinder des Patienten?
Es editiert Blutstammzellen, keine Ei- oder Samenzellen. Die somatische Behandlung erhöht fetales Hämoglobin und korrigiert die Sichelzellmutation nicht vererbbar.
Begriffe
- CRISPR-Array: ein Abschnitt eines Bakteriengenoms, in dem kurze Wiederholungen mit Spacern aus Viren und Plasmiden abwechseln.
- Cas9: das CRISPR-assoziierte Protein, das in Typ-II-Systemen wie dem von Streptococcus pyogenes die DNA schneidet.
- Guide-RNA: eine einzelne RNA mit einem Spacer aus 20 Buchstaben und einem Gerüst; sie vereint die crRNA und die tracrRNA des bakteriellen Systems.
- Protospacer: die 20 Basenpaare der Ziel-DNA, die zum Spacer passen.
- PAM: protospacer adjacent motif, eine kurze Sequenz neben dem Ziel (NGG für dieses Cas9), die Cas9 finden muss, bevor es die DNA öffnet.
- Seed: die 10 Basen der Guide-RNA, die dem PAM am nächsten liegen; dort stoppt eine Fehlpaarung die Erkennung am leichtesten.
- R-Schleife: die Struktur, in der RNA sich mit einem DNA-Strang paart und der andere Strang verdrängt wird.
- NHEJ: nicht-homologe Endverknüpfung, eine Reparatur, die gebrochene Enden direkt verbindet, oft mit kleinen Insertionen oder Deletionen.
- HDR: homologiegerichtete Reparatur, eine Reparatur, die eine passende DNA-Vorlage über den Bruch kopiert.
Quellen
- Nobel Committee for Chemistry, Scientific Background on the Nobel Prize in Chemistry 2020: A tool for genome editing (Wiederholungen 1987, Spacer 2005 und 2007, PAM, Seed, HNH und RuvC, Schnitt 3 bp vom PAM, NHEJ und HDR). https://www.nobelprize.org/uploads/2020/10/advanced-chemistryprize2020.pdf (abgerufen am 16. Oktober 2026)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, summary. https://www.nobelprize.org/prizes/chemistry/2020/summary/ (abgerufen am 16. Oktober 2026)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, press release. https://www.nobelprize.org/prizes/chemistry/2020/press-release/ (abgerufen am 16. Oktober 2026)
- NobelPrize.org, Popular science background: Genetic scissors, a tool for rewriting the code of life (Treffen 2011, tracrRNA, Einsatz in Forschung und Pflanzenzüchtung). https://www.nobelprize.org/prizes/chemistry/2020/popular-information/ (abgerufen am 16. Oktober 2026)
- OpenStax, Biology 2e, 14.2 DNA Structure and Sequencing (2 nm Breite, 0,34 nm pro Basenpaar, 3,4 nm pro Windung). https://openstax.org/books/biology-2e/pages/14-2-dna-structure-and-sequencing (abgerufen am 16. Oktober 2026)
- National Human Genome Research Institute, Talking Glossary: Base Pair (etwa 3 Milliarden Basenpaare im menschlichen Genom). https://www.genome.gov/genetics-glossary/Base-Pair (abgerufen am 16. Oktober 2026)
- National Human Genome Research Institute, Talking Glossary: Double Helix. https://www.genome.gov/genetics-glossary/Double-Helix (abgerufen am 16. Oktober 2026)
- National Human Genome Research Institute, Talking Glossary: CRISPR. https://www.genome.gov/genetics-glossary/CRISPR (abgerufen am 16. Oktober 2026)
- RCSB Protein Data Bank, entry 4OO8: Crystal structure of Streptococcus pyogenes Cas9 in complex with guide RNA and target DNA (Nishimasu et al., Cell, 2014). https://www.rcsb.org/structure/4OO8 (abgerufen am 16. Oktober 2026)
- RCSB PDB-101, Molecule of the Month: Cascade and CRISPR. https://pdb101.rcsb.org/motm/181 (abgerufen am 16. Oktober 2026)
- MedlinePlus, US National Library of Medicine, What are genome editing and CRISPR-Cas9? https://medlineplus.gov/genetics/understanding/genomicresearch/genomeediting/ (abgerufen am 16. Oktober 2026)
- European Medicines Agency, Casgevy: EPAR (bedingte Zulassung, 9. Februar 2024). https://www.ema.europa.eu/en/medicines/human/EPAR/casgevy (abgerufen am 16. Oktober 2026)
- FDA: erste Casgevy-Zulassung, 8. Dezember 2023. https://www.fda.gov/news-events/press-announcements/fda-approves-first-gene-therapies-treat-patients-sickle-cell-disease (2026-10-23)
- MHRA: Mitteilung zur Casgevy-Zulassung, 16. November 2023. https://www.gov.uk/government/news/mhra-authorises-world-first-gene-therapy-that-aims-to-cure-sickle-cell-disease-and-transfusion-dependent-thalassemia (2026-10-23)
- WHO: Empfehlungen zur menschlichen Genomeditierung, 2021. https://www.who.int/news/item/12-07-2021-who-issues-new-recommendations-on-human-genome-editing-for-the-advancement-of-public-health (2026-10-23)
- Komor und Kollegen: Baseneditierung, 2016. https://www.nature.com/articles/nature17946 (2026-10-23)
- Anzalone und Kollegen: Prime Editing, 2019. https://www.nature.com/articles/s41586-019-1711-4 (2026-10-23)
- Kleinstiver und Kollegen: SpCas9-HF1, 2016. https://www.nature.com/articles/nature16526 (2026-10-23)
Themenpfad 3 von 3
Vom Herzschlag zur DNAWeitere Exponate
Spaziergang durch eine Zelle: Tier, Pflanze und Bakterium
Millionenfach vergrößert ist ein Mitochondrium etwa so groß wie ein Sofa, ein ganzes E. coli ist 2 m lang, und das Kinesin, das neben Ihnen ein Vesikel schleppt, läuft mit 0,8 Metern pro Sekunde.
Herzschlag: interaktives Herzmodell Schritt für Schritt
Ihr Herz wirft mit jedem Schlag etwa 70 mL Blut aus und tut das im Ruhetempo etwa 108.000-mal am Tag.
Zwischen Dinosauriern in Originalgröße
Ein 600 m großer Park mit 172 Urzeittieren in Originalgröße, von den ersten Dinosauriern bis T. rex, nach Zeitaltern geordnet.
Wie groß waren Mammuts? Vergleich mit Eiszeittieren
Ein 600 m großer Park mit 65 Tieren der letzten Eiszeit in Lebensgröße, vom Wollhaarmammut bis zur Säbelzahnkatze, mit einem Zeitregler über 50.000 Jahre.
Ames-Raum und optische Täuschungen: warum das Auge sich irrt
Feld A wirkt dunkel und Feld B hell, doch Ihr Bildschirm schickt von beiden dasselbe Grau ins Auge.
Evolution des Menschen: Zeitstrahl in Lebensgröße erkunden
Lucy war etwa 1,1 m groß. Gehen Sie durch 7 Millionen Jahre menschlicher Verwandter in Lebensgröße, mit sich selbst daneben.