図 42しくみ館
CRISPR-Cas9ゲノム編集を動かして見るシミュレーター
ガイド RNA が読むのは DNA のわずか 20 文字。それだけで、ヒトゲノムの 30 億塩基対の中からたいてい 1 か所を選び出せます。
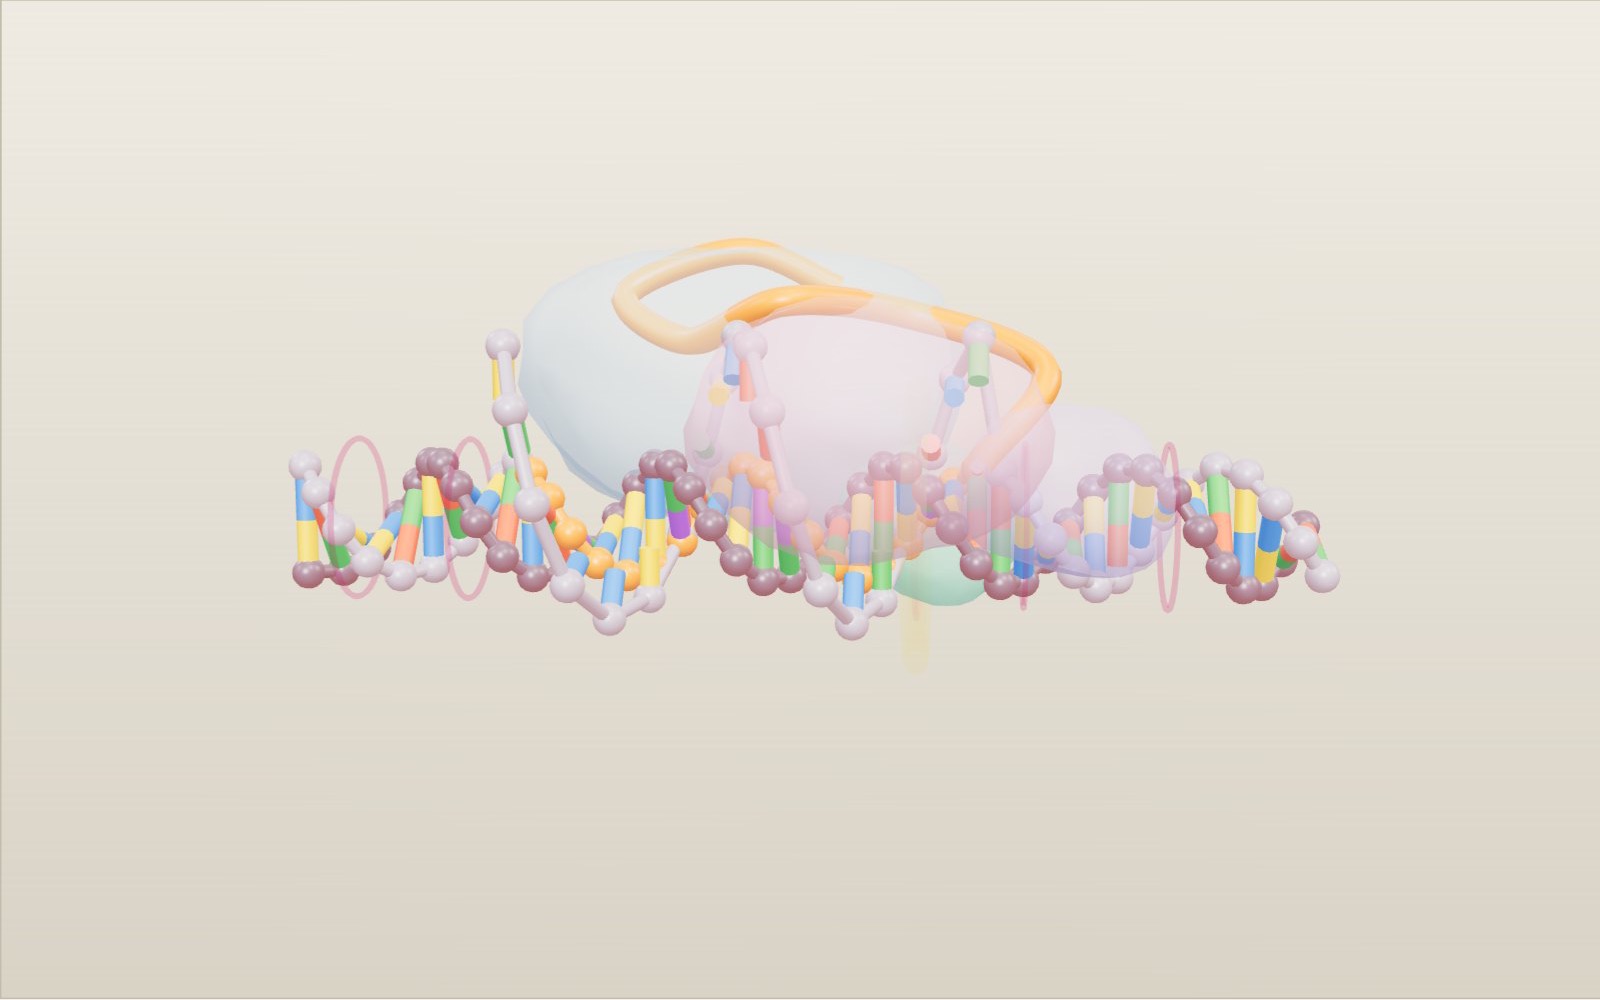
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 8 実際の比率で見る DNA の一部これは 44 塩基対の DNA で、長さは約 15 nm です。黒い棒が縮尺を示しています。らせんの幅は 2 nm で、3.4 nm ごとに 1 回転します。配列は模型のために作った例です。
ドラッグで回転、ホイールか二本指で拡大します。
タンパク質はゲノム全体からどうやって 1 か所を見つけるのか
ヒトゲノム 1 セットには約 30 億塩基対があります。たった一つの遺伝子を変えたいとしましょう。必要なのは、DNA を読み、短い一区間を見分けてそこだけを切り、ほかの区間には一切手を出さない道具です。それまでの道具であるジンクフィンガーヌクレアーゼや TALEN は、標的ごとに新しくタンパク質を設計しなければならず、タンパク質の設計は時間がかかって難しい作業でした。CRISPR-Cas9 はそれを変えました。タンパク質はそのままで、書き換えるのは短いガイド RNA だけです。
この展示では、そのしくみを分子の大きさで組み立てています。短い DNA が舞台を横切り、Cas9 がガイド RNA を抱えてやってきます。Cas9 が PAM を見つけ、ガイドを DNA の 20 塩基と対合させ、両方の鎖を切り、切れ目の修復を細胞に任せるまでを追えます。模型の上には、自分でガイドを入力できる欄があります。文字が一致しなければガイドは対合をやめ、何も切られません。数値はノーベル化学委員会、OpenStax、RCSB Protein Data Bank、米国国立ヒトゲノム研究所によるもので、出典は最後にまとめてあります。
模型の大きさで見る DNA
DNA は 2 本の鎖が巻き合ったものです。それぞれの鎖は糖とリン酸がつながった鎖で、糖には A、C、G、T の 4 種類の塩基のどれかが一つずつついています。一方の鎖の A はもう一方の T と、C は G と対になるので、どちらの鎖も相手から読み取れます。模型の塩基の色は、A が緑、T が赤、G が黄、C が青です。RNA で T の代わりに使われる塩基 U は紫です。
ふつうの形の DNA である B 型 DNA は、寸法が決まっています。二重らせんの幅は 2 nm です。となり合う塩基対の間隔は 0.34 nm で、らせんは 3.4 nm、つまり 10 塩基対ごとに 1 回転します。模型の左端の黒い棒は、2 nm の幅と 3.4 nm の 1 回転を示しています。模型は 44 塩基対なので、長さは 44 × 0.34 = 15 nm です。
2 本の鎖は互いに逆向きに走っています。化学者は鎖の端を 5′ と 3′ と呼び、配列は 5′ から 3′ の向きに書きます。模型では、灰色の鎖が左から右へ 5′ から 3′ に、濃い色の鎖がその逆向きに走っています。灰色の鎖はガイドと同じ文字をもち(ガイドの U が T になります)、濃い色の鎖がガイドと対合する鎖です。
細菌がもつウイルスの記憶
CRISPR は、細菌ゲノムの中の謎として始まりました。1987 年、研究者たちは大腸菌(Escherichia coli)の DNA に奇妙な並びがあることに気づきました。29 塩基対の配列が 5 回くり返され、そのあいだを毎回異なる 32 塩基対の配列が隔てていたのです。よく似た並びは多くの細菌や古細菌で見つかり、英語で「規則的な間隔をもってクラスター化された短い回文配列のくり返し」を意味する CRISPR という名がつけられました。その並びの隣には、CRISPR 関連(CRISPR-associated)を意味する cas と名づけられた遺伝子群があり、核酸をほどいたり切ったりする酵素に似たタンパク質をコードしていました。
2005 年、三つの研究グループが、反復配列のあいだのスペーサーがウイルスやプラスミドの DNA と一致すると報告しました。あるスペーサーをもつ細菌は、それと一致する配列をもつウイルスにはほとんど感染しませんでした。2007 年には、Streptococcus thermophilus を使った実験がその関係を直接示しました。ウイルスの攻撃を生きのびた細菌は、そのウイルスから写し取った新しいスペーサーを獲得していて、以後そのウイルスに抵抗性を示したのです。スペーサーを取り除くと、抵抗性も消えました。
つまり CRISPR アレイは、過去の感染の記録として働いています。アレイは長い RNA に写され、それがスペーサーごとに短い CRISPR RNA に切り分けられます。短い RNA はそれぞれ Cas タンパク質と組み、一致する配列をもつ DNA へと導きます。Streptococcus のしくみでは、切断に必要なタンパク質は Cas9 一つだけで、これに 2 つ目の小さな RNA である tracrRNA が加わります。tracrRNA は 2011 年にエマニュエル・シャルパンティエのグループが報告しました。
Cas9 とガイド RNA
化膿レンサ球菌(Streptococcus pyogenes)の Cas9 は大きなタンパク質です。Protein Data Bank の結晶構造 4OO8 のタンパク質鎖は 1,372 個のアミノ酸からなり、重さは約 159 キロダルトンです。2014 年に分解能 2.5 Å で解かれたこの構造から、2 つのローブがあることがわかりました。認識ローブ(REC)はガイド RNA と RNA-DNA の対を抱えています。ヌクレアーゼローブには 2 つの切断ドメイン HNH と RuvC があり、その先端近くに PAM 結合ドメインがあります。
模型では、タンパク質をそれぞれの位置に置いた 4 つのやわらかな塊として描いています。形は想像によるもので、内部の RNA と DNA を追えるよう透けて見えるようにしてあります。「操作」タブで「内部を見る」をオンにすると、さらに薄くなります。
細菌の中の Cas9 は、スペーサーをもつ crRNA と、それを固定する tracrRNA の 2 つの RNA を運んでいます。2012 年、シャルパンティエとジェニファー・ダウドナらは、この 2 つを 1 本のガイド RNA につなぎました。ガイドには 2 つの部分があります。先頭の 20 文字、つまりスペーサーが標的を決めます。残りは折りたたまれてタンパク質の中に収まる足場になり、模型ではオレンジの管として描いています。この 20 文字を変えれば、同じタンパク質が別の場所へ向かいます。
第 1 段階: PAM を見つける
Cas9 は、DNA のすべての区間をガイドと照らし合わせるわけではありません。まず、プロトスペーサー隣接モチーフ、略して PAM を探します。S. pyogenes の Cas9 では、灰色の鎖で標的のすぐ後ろにある NGG がそれで、任意の塩基のあとに G が 2 つ続きます。PAM 結合ドメインにある 2 つのアルギニンが、水素結合で GG を見分けます。タンパク質は PAM を見つけて初めて、その隣の DNA を曲げ、2 本の鎖を引き離しはじめます。
PAM は細菌についての疑問にも答えてくれます。スペーサーがウイルスの DNA と一致するなら、CRISPR アレイの中の自分自身のコピーとも一致するはずです。細菌が自分のゲノムを切らずにすむのは、アレイの中のスペーサーの隣には PAM がなく、ウイルスの中の一致する配列の隣には PAM があるからです。
模型の PAM は TGG です。「操作」タブで「PAM(NGG)」をオフにすると TGA に変わります。すると Cas9 は、ガイドが 20 塩基すべてと一致したままでも、DNA の上を漂うだけで、開かずに離れていきます。
第 2 段階: シードから始まる 20 文字
PAM の隣で DNA が 1 塩基対ずつ開き、ガイド RNA が濃い色の鎖と対合します。灰色の鎖は押しのけられて輪になります。RNA が DNA の片方の鎖と対合し、もう片方の鎖が押しのけられたこの構造を R ループといいます。対合は PAM の側から始まり、ガイドのうち PAM に最も近い 10 塩基、つまりシードがいちばん重要です。シードに不一致があると、たいてい認識はそこで止まります。
模型の上の欄には、灰色の鎖の標的が 5′ から 3′ の向きに、末尾に PAM をつけて表示されています。シードの 10 か所には色がついています。その下がガイドです。欄に入力するか、4 つのボタンを使ってください。
- 「一致」: 20 文字すべてが対合します。R ループが遠い端まで達し、Cas9 が切断します。
- 「シード不一致」: 17 番目の文字を変えてあります。R ループは 3 塩基対開いたところで止まります。
- 「遠い側の不一致」: 3 番目の文字を変えてあります。R ループは 17 塩基対開いたあと、また閉じます。
- 「別の遺伝子」: ほかの配列のために書いたガイドです。何も対合しません。
対合しない文字は黒で表示されます。模型では、どこかに不一致があると対合はその文字で止まり、DNA が閉じて Cas9 は離れます。実際の Cas9 はこれほど厳密ではありません。そのことは次の節以降で説明します。
第 3 段階: 2 つのドメインで 2 か所を切る
ガイドが 20 塩基すべてに沿って対合すると、HNH ドメインが形を変え、濃い色の鎖に向かって回りこみます。それぞれのヌクレアーゼドメインが 1 本ずつ鎖を切ります。HNH はガイドと対合した鎖を、RuvC は押しのけられた灰色の鎖を切ります。どちらの切断も PAM の 3 塩基対手前、2 本の鎖の同じ位置に入るので、2 つの末端はずれた形ではなく、たいてい平滑になります。
模型では、左から数えて 27 番目と 28 番目の塩基対のあいだで切れ、PAM の側に標的の 3 塩基対が残ります。切断部位で黄色の輪が光ります。そのあと Cas9 が離れ、2 つの末端が遠ざかります。
2 つのドメインのどちらかを働かなくすると、Cas9 は片方の鎖だけを切ります。このニッカーゼは、近くにある互いに逆の鎖をねらう 2 本のガイドと組み合わせて使われ、両方のガイドが一致する場所でだけ切れ目をつくります。
切れた染色体を細胞はどうするか
Cas9 がするのは切ることだけです。実際の編集は、壊れた DNA をいつも直している細胞自身の修復のしくみが行います。おもな道は 2 つあります。
1 つ目は非相同末端結合、略して NHEJ です。細胞は 2 つの末端をそのままつなぎ直します。このとき、つなぎ目で数塩基が増えたり減ったりすることがよくあります。遺伝子の中で 1 塩基や 2 塩基が変わると、その後ろのすべてのコドンの読み枠がずれ、遺伝子がタンパク質をつくれなくなることが少なくありません。「進行」スライダーかガイドの手順 7 で、模型が 1 塩基対多い状態で末端をつなぐようすを見られます。増えた塩基対は輪で示しています。
2 つ目は相同組換え修復、略して HDR です。切れ目の両側と一致する DNA 断片があれば、細胞はそれを鋳型にして、すきまに写し取ることができます。研究者は、真ん中の文字を変えた鋳型を与えることで、選んだ変更をゲノムに書きこめます。「修復の鋳型」をオンにすると緑の鋳型が切れ目の隣に現れ、末端がつながるとき、切断部位の 3 塩基対が鋳型の文字に変わります。
数字を確かめる
なぜ 20 文字で足りるのでしょう。それぞれの位置に 4 通りの選択肢があるので、20 文字の配列は 4^20 = 1,099,511,627,776 通り、約 1.1 × 10^12 通りあります。ヒトゲノムは約 3 × 10^9 塩基対で、配列はどちらの鎖にもありうるので、探す場所は約 6 × 10^9 か所です。ゲノムがでたらめな配列だとすると、ある 20 文字の配列が偶然現れる回数は約 6 × 10^9 ÷ 1.1 × 10^12 ≈ 0.005 回です。 この無作為モデルでは追加の完全一致はまれと予想されますが、実際のゲノムで唯一という保証ではありません。
シードで考えると話が変わります。シードの 10 文字に PAM の G 2 つを加えると 12 文字が決まり、4^12 = 16,777,216 です。でたらめな配列なら、この並びは約 6 × 10^9 ÷ 1.7 × 10^7 ≈ 360 回現れます。Cas9 は、ガイドの遠い側がうまく一致しなくても、こうした場所を切ってしまうことがあります。そのためガイド配列は、使う前にゲノム全体と照らし合わせて確かめます。しかも実際のゲノムにはくり返し配列が多いので、本当の数字はでたらめな配列での見積もりより悪くなります。
模型では、標的の長さは 20 × 0.34 = 6.8 nm で、らせんのちょうど 2 回転分です。切断部位は PAM から 3 塩基対、約 1 nm のところにあります。
画面で試す
模型は探す場面から始まります。Cas9 が短い架空の DNA に沿って滑り、NGG の印ごとに止まり、ガイドが合う場所でだけ二重らせんが開いて切られます。文字は図のために作ったものです。考え方を見せる画面で、実験の方法ではありません。
- 舞台の文字列で NGG の印を押してください。Cas9 がそこへ行き、ガイドが対を作れない所では離れて先へ進みます。
- Cas9 そのものをドラッグして DNA の上を動かし、NGG の印の上に置いてみてください。
- PAM の近くで文字が一つ違うガイドを選ぶか、PAM を切ると、Cas9 が切れない様子が見られます。
- タンパク質の部品を押すと、HNH と RuvC ドメイン、REC ローブ、PAM 結合ドメインの働きが出ます。
- 細菌の物語を開くと、細菌がウイルス DNA の断片を保存し、ウイルスが再び来たときに使う流れが見られます。
- 操作の下には、課題、隠れた見どころ、髪の毛や細胞との大きさ比べ、1987年から最初に承認された薬までのクリスパーの歴史があります。
この模型で省いていること
タンパク質は実測の表面ではなく 4 つの塊で、HNH ドメインはある位置から別の位置へ滑るだけです。DNA はまっすぐで規則正しいらせんで、1 回転がちょうど 10 塩基対ですが、実際の DNA は、Cas9 が PAM の隣でつかむところで折れ曲がっています。R ループは 1 塩基対ずつきれいに開きます。実際の過程も段階的に進みますが、一定の速さではありません。Cas9 は末端が見えるよう切断後に離れていきますが、実際のタンパク質がどれだけ長く結合したままかは示していません。
不一致の規則も実際より単純です。実際の Cas9 は PAM から遠い不一致をある程度許し、そうした標的外の場所を切ることがあります。修復はそれぞれの道について一例だけを示しています。NHEJ では 1 塩基対の増加、HDR では 3 塩基対の変更です。細胞の中の NHEJ では、決まった一つの結果ではなく、小さな挿入や欠失が混ざって生じます。模型の配列は作ったもので、実在の遺伝子のものではありません。
細菌の謎から実験室の道具へ
シャルパンティエは化膿レンサ球菌を研究し、tracrRNA を見つけて 2011 年 3 月に発表しました。その春、プエルトリコの学会で、カリフォルニア大学バークレー校の生化学者ダウドナと出会い、二人は Cas9 を共同で研究することにしました。試験管の中では、crRNA だけをもつ Cas9 は DNA を切りませんでした。tracrRNA を加えると、DNA が切れました。二人は次に 2 つの RNA を 1 本のガイドにつなぎ、その配列を変えることで、選んだ場所で DNA を切れることを示しました。論文は 2012 年に出ました。2013 年の初めには、ほかのグループが、このしくみでヒトやマウスの細胞のゲノムを編集できることを示しました。
スウェーデン王立科学アカデミーは、2020 年のノーベル化学賞を「ゲノム編集の手法の開発」に対してエマニュエル・シャルパンティエとジェニファー・A・ダウドナに贈りました。
どこで使われているか
ノーベル委員会によると、CRISPR-Cas9 はいまでは基礎研究の標準的な道具で、細胞や実験動物の遺伝子を変えてその働きを調べるのに使われています。植物の品種改良にも使われており、委員会の要約では、土壌からカドミウムやヒ素を吸収しにくくなるよう編集したイネの品種が例に挙げられています。米国国立医学図書館の MedlinePlus は、ゲノム編集が多くの病気について研究や臨床試験で検討されていること、そして卵子、精子、胚の編集は米国をはじめ多くの国で現在違法であることを述べています。
CRISPR-Cas9 でつくられた医薬品が、欧州連合で一つ承認されています。欧州医薬品庁は 2024 年 2 月 9 日、輸血依存性 β サラセミアまたは重症の鎌状赤血球症をもつ 12 歳以上の人を対象に、Casgevy(exagamglogene autotemcel)に条件付き販売承認を与えました。患者自身の造血幹細胞を体外で編集し、胎児ヘモグロビンを多くつくるようにしたものです。条件付き承認とは、承認後も企業がさらに証拠を提出しなければならないという意味です。この展示は、どの治療についても効き目や安全性を主張するものではありません。詳しくは同庁のページをご覧ください。
標的が一か所でもオフターゲット切断が起きる理由
前の無作為配列の計算は完全一致だけを数え、酵素が許容する配列すべてを数えてはいません。20 塩基のガイドに 1 文字の違いを許すと、20 か所にそれぞれ 3 通りの置換があり、20 × 3 = 60 通りの近い配列ができます。元の配列を含めると 61 通りです。計算用のゲノムを 3,200,000,000 塩基対とすれば、両鎖で約 6,400,000,000 か所の開始位置があります。各塩基が独立で同じ頻度という非現実的な仮定では、偶然の完全一致の期待値は 6,400,000,000 ÷ 4^20 ≈ 0.0058 です。60 通りの近い配列も数えると、PAM 条件を加える前で約 0.36 になります。
NGG の N はどの塩基でもよく、この仮想ゲノムでは各 G の確率は 1/4 です。NGG も必要とすると期待値に 1/16 を掛け、61 通りでは約 0.022 になります。これは偶然の配列パターンの期待個数であり、臨床リスクの百分率や実測切断率ではありません。存在するから選んだ本来の標的は含まず、許容した配列がすべて切れるわけでもありません。反復配列、塩基頻度の偏り、DNA の包装状態、患者の変異、不一致の位置は仮定を崩します。無作為計算で一致が少なくても、重複遺伝子にはほぼ同じ標的があり得ます。
そのためガイド設計では該当ゲノムを検索し、実験で確認します。予測されたオフターゲットは調査候補で、損傷の証拠ではありません。切断が検出されない場合も検査の感度が制限になります。2016 年、Kleinstiver らは DNA との非特異的接触を弱めた SpCas9-HF1 を報告しました。試した多くのガイドで標的活性を保ちつつ、検出できるオフターゲット活性を減らしました。「検出されない」はその試験条件での結果であり、全細胞・全ガイドへの保証ではありません。高忠実度酵素でも標的によって望む活性が落ちるため、特異性と効率を一緒に測る必要があります。不一致が一つでも止まる模型は教育用の単純化で、この改変酵素のシミュレーションではありません。
二本鎖を切断せず文字を変える
この展示の修復鋳型は切断後の HDR を示し、精密編集のすべてを表すものではありません。2016 年、Komor らは DNA を標的にする Cas9 成分にシチジンデアミナーゼを結合した塩基編集器を報告しました。露出した DNA のシチジンをウリジンに変え、その後の処理で C から T、反対鎖から見れば G から A への置換が起こり得ます。後の設計では一本鎖を切るニッカーゼを使い、望む結果を促します。意図的な二本鎖切断を避けても、一本鎖の切断や望ましくない産物がなくなるわけではありません。
塩基編集器は編集窓の範囲で働き、ガイド近くのどの文字でも自由に変えるわけではありません。窓内に別の編集可能な塩基があれば、巻き添えの編集も起こり得ます。PAM は結合できる位置を制限します。適切な細胞への送達、別の場所の編集、望む変化が生じる細胞の割合は実験で調べます。必要な変化と化学反応が合うときに使える道具で、ゲノム全体の万能な校正装置ではありません。
2019 年に Anzalone らが報告したプライム編集は、Cas9 ニッカーゼに逆転写酵素を結合します。延長されたガイド RNA の pegRNA が標的と変更内容の鋳型情報を持ちます。酵素は RNA の情報を DNA に写し、その後、細胞が編集途中の構造を処理します。別のドナー DNA や意図的な二本鎖切断なしに、置換と小さな挿入・欠失を起こせます。ただし細胞の修復に依存し、効率や望ましくない産物は標的と設計に左右されます。この画面は塩基編集もプライム編集も動かしません。修復鋳型の緑色の物体は HDR 用 DNA で、pegRNA ではありません。二本鎖の切断は通常の Cas9 編集です。
カスゲビーが患者の細胞で変えるもの
カスゲビーは体外で細胞を編集する実例です。英国 MHRA は 2023 年 11 月 16 日に承認を発表し、発表文には承認自体は 11 月 15 日と記載されています。米国 FDA は 2023 年 12 月 8 日、血管閉塞性発作を繰り返す 12 歳以上の鎌状赤血球症患者にカスゲビーを承認しました。適応と利用条件は各規制機関で確認し、国をまたいで同一とは考えないでください。これらは初回の決定日で、その後の全承認を列挙したものではありません。
鎌状赤血球症では異常な成人ヘモグロビンのために赤血球が鎌状に硬くなり、血流を妨げることがあります。カスゲビーは体中の全細胞で原因変異を直接置き換えません。患者の造血幹細胞を採取し、体外で CRISPR-Cas9 編集して注入します。胎児ヘモグロビンの調節を変え、治療した幹細胞から生まれる赤血球がこれを多く作るようにします。元の遺伝性変異が残っていても、胎児ヘモグロビンは鎌状化を減らせます。原因 DNA の文字を直さず、調節部位を変えて病気を補う方法です。
注入は負担の大きい治療過程の一部です。FDA によると、先に高用量の化学療法で骨髄を準備します。採取、製造、前処置、生着、追跡が結果を左右し、ガイド配列だけが治療ではありません。自己細胞でも化学療法の危険や編集細胞の長期観察は不要になりません。体細胞治療なので、編集された造血細胞は卵子や精子にはならず、子に編集を伝えることを目的にしません。模型は架空の標的一つを使い、カスゲビーの標的、臨床製造、適格性、個人の利益の確率を示してはいません。
遺伝する編集について画面で判断できないこと
造血幹細胞と胚の編集では問題が異なります。胚の編集は多くの組織や、後に卵子・精子を作る細胞に届く可能性があります。同意できなかった子孫にも変化が遺伝し得ます。初期細胞の一部だけが編集されれば、細胞集団によって DNA の変化が違うモザイクになる可能性があります。一つの試料の配列がきれいでも、全組織が同じ編集を持つ証拠ではありません。正確な位置の変更でも、医学的妥当性や公平な利用まで証明できません。
WHO の 2021 年勧告は体細胞、生殖細胞系列、遺伝可能な編集を区別し、監督、登録、国際協力、違法・未登録・非倫理的・危険な研究の通報手段を求めます。監督の枠組みであって世界的な許可証や各国法を自動で置き換える法律ではありません。2020 年ノーベル化学賞はシャルパンティエとダウドナによる方法の開発を評価したもので、すべての応用を承認したのではありません。
画面で「一致」と「PAM(NGG)」を有効にし、進行を切断と修復まで動かします。ガイドを変えず PAM を無効にすると、一致する住所だけでは足りないことが分かります。PAM を戻し「シード不一致」と「遠い側の不一致」を比べます。どちらも切断を止めますが、対合が止まる位置は違い、生物学的危険が等しい証拠ではありません。最後に修復鋳型の有無を比べます。産物は修復経路の例で、細胞内での頻度ではありません。PAM の有無、対合の停止位置、修復産物を記録してください。どの観察も治療の安全性、胚の生存、同意を測るものではありません。
よくある質問
CRISPR は何の略ですか?
Clustered regularly interspaced short palindromic repeats の略で、「規則的な間隔をもってクラスター化された短い回文配列のくり返し」という意味です。短い反復配列とスペーサーが交互に並ぶ、細菌ゲノムの中の並びを表す名前です。編集の道具はこの並びにちなんで名づけられ、Cas9 は CRISPR 関連タンパク質の 9 番です。
Cas9 にはなぜ PAM が必要なのですか?
細菌がウイルスの DNA と自分の CRISPR アレイを見分けるためです。アレイにも同じスペーサー配列がありますが、隣に PAM がないので、Cas9 は手を出しません。道具として使う場合は、標的が NGG の隣にある必要があるということになります。
ガイドの文字が 1 つ違っていたらどうなりますか?
その文字の位置によります。PAM の隣にあるシードの 10 塩基に不一致があると、たいてい認識は止まります。もっと遠い位置の不一致は許されることがあり、それが意図しない場所が切られる原因の一つです。模型では、不一致があれば必ず対合が止まるという単純な規則を使っています。
Cas9 そのものが DNA の配列を変えるのですか?
いいえ。Cas9 は 2 本の鎖を切るだけです。変化は細胞の修復によって生まれます。末端結合では数塩基が増えたり減ったりしやすく、鋳型をもとにした修復では研究者が与えた配列が写し取られます。
HNH ドメインと RuvC ドメインはなぜ別々の鎖を切るのですか?
開いた DNA の別々の側にあるからです。HNH はガイドと対合した鎖に、RuvC は押しのけられた鎖に向き合っています。どちらも PAM から 3 塩基対のところを切るので、切れ目は 2 本の鎖をきれいに横切ります。
Cas9 は DNA と比べてどれくらいの大きさですか?
PDB の構造 4OO8 のタンパク質鎖は 1,372 個のアミノ酸からなり、約 159 キロダルトンです。2 つのローブのあいだの溝に、ガイド RNA と 20 塩基対の RNA-DNA の対を抱えています。この対はらせん 2 回転分で長さ約 6.8 nm、一方 DNA そのものの幅は 2 nm です。
CRISPR を発見したのはだれですか?
多くのグループが貢献しました。反復配列が初めて報告されたのは 1987 年、ウイルスとの関係は 2005 年、免疫での役割は 2007 年です。シャルパンティエとダウドナは 2012 年、Cas9 を 1 本のガイド RNA でプログラムして選んだ場所の DNA を切れることを示し、2020 年のノーベル化学賞を共同で受賞しました。
高忠実度 Cas9 ならオフターゲット編集は絶対にありませんか?
保証はできません。測定での低下はガイド、細胞種、検出限界に依存します。SpCas9-HF1 でも実際の標的と送達方法での試験が必要です。
緑色の修復鋳型はプライム編集のガイドですか?
違います。二本鎖切断後の HDR 用ドナー DNA です。pegRNA は標的の住所と逆転写酵素が変更を書き込む情報を持つ RNA です。
カスゲビーの編集は患者の子に遺伝しますか?
卵子や精子ではなく造血幹細胞を編集します。胎児ヘモグロビンを増やす体細胞治療で、鎌状赤血球変異を遺伝的に修正するものではありません。
用語
- CRISPR アレイ: 細菌ゲノムの中で、短い反復配列と、ウイルスやプラスミドから取りこんだスペーサーが交互に並ぶ区間。
- Cas9: 化膿レンサ球菌のような II 型のしくみで DNA を切る、CRISPR 関連タンパク質。
- ガイド RNA: 20 文字のスペーサーと足場をもつ 1 本の RNA。細菌のしくみの crRNA と tracrRNA を 1 本にしたもの。
- プロトスペーサー: 標的 DNA のうち、スペーサーと一致する 20 塩基対。
- PAM: プロトスペーサー隣接モチーフ。標的の隣にある短い配列(この Cas9 では NGG)で、Cas9 が DNA を開く前に見つけなければならないもの。
- シード: ガイドのうち PAM に最も近い 10 塩基。ここに不一致があると最も認識が止まりやすい。
- R ループ: RNA が DNA の片方の鎖と対合し、もう片方の鎖が押しのけられた構造。
- NHEJ: 非相同末端結合。切れた末端を直接つなぐ修復で、小さな挿入や欠失を伴うことが多い。
- HDR: 相同組換え修復。一致する DNA の鋳型を切れ目に写し取る修復。
参考資料
- Nobel Committee for Chemistry, Scientific Background on the Nobel Prize in Chemistry 2020: A tool for genome editing (1987 年の反復配列、2005 年と 2007 年のスペーサー、PAM、シード、HNH と RuvC、PAM から 3 bp の切断、NHEJ と HDR). https://www.nobelprize.org/uploads/2020/10/advanced-chemistryprize2020.pdf (2026年10月16日確認)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, summary. https://www.nobelprize.org/prizes/chemistry/2020/summary/ (2026年10月16日確認)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, press release. https://www.nobelprize.org/prizes/chemistry/2020/press-release/ (2026年10月16日確認)
- NobelPrize.org, Popular science background: Genetic scissors, a tool for rewriting the code of life (2011 年の出会い、tracrRNA、研究と品種改良での利用). https://www.nobelprize.org/prizes/chemistry/2020/popular-information/ (2026年10月16日確認)
- OpenStax, Biology 2e, 14.2 DNA Structure and Sequencing (幅 2 nm、塩基対あたり 0.34 nm、1 回転 3.4 nm). https://openstax.org/books/biology-2e/pages/14-2-dna-structure-and-sequencing (2026年10月16日確認)
- National Human Genome Research Institute, Talking Glossary: Base Pair (ヒトゲノムの約 30 億塩基対). https://www.genome.gov/genetics-glossary/Base-Pair (2026年10月16日確認)
- National Human Genome Research Institute, Talking Glossary: Double Helix. https://www.genome.gov/genetics-glossary/Double-Helix (2026年10月16日確認)
- National Human Genome Research Institute, Talking Glossary: CRISPR. https://www.genome.gov/genetics-glossary/CRISPR (2026年10月16日確認)
- RCSB Protein Data Bank, entry 4OO8: Crystal structure of Streptococcus pyogenes Cas9 in complex with guide RNA and target DNA (Nishimasu et al., Cell, 2014). https://www.rcsb.org/structure/4OO8 (2026年10月16日確認)
- RCSB PDB-101, Molecule of the Month: Cascade and CRISPR. https://pdb101.rcsb.org/motm/181 (2026年10月16日確認)
- MedlinePlus, US National Library of Medicine, What are genome editing and CRISPR-Cas9? https://medlineplus.gov/genetics/understanding/genomicresearch/genomeediting/ (2026年10月16日確認)
- European Medicines Agency, Casgevy: EPAR (条件付き販売承認、2024年2月9日). https://www.ema.europa.eu/en/medicines/human/EPAR/casgevy (2026年10月16日確認)
- FDA:カスゲビー初回承認、2023 年 12 月 8 日. https://www.fda.gov/news-events/press-announcements/fda-approves-first-gene-therapies-treat-patients-sickle-cell-disease (2026-10-23)
- MHRA:カスゲビー承認発表、2023 年 11 月 16 日. https://www.gov.uk/government/news/mhra-authorises-world-first-gene-therapy-that-aims-to-cure-sickle-cell-disease-and-transfusion-dependent-thalassemia (2026-10-23)
- WHO:ヒトゲノム編集の勧告、2021 年. https://www.who.int/news/item/12-07-2021-who-issues-new-recommendations-on-human-genome-editing-for-the-advancement-of-public-health (2026-10-23)
- Komor ら:塩基編集、2016 年. https://www.nature.com/articles/nature17946 (2026-10-23)
- Anzalone ら:プライム編集、2019 年. https://www.nature.com/articles/s41586-019-1711-4 (2026-10-23)
- Kleinstiver ら:SpCas9-HF1、2016 年. https://www.nature.com/articles/nature16526 (2026-10-23)
コース 3 / 3
心拍から DNA までほかの展示
細胞の中を歩く:動物細胞・植物細胞・細菌
百万倍に拡大すると、ミトコンドリアはソファほどの大きさになり、大腸菌は丸ごと 2 m、すぐ横で小胞を引いていくキネシンは秒速 0.8 メートルで歩きます。
心臓の拍動を動かして見る:心拍数シミュレーター
心臓は一拍ごとに約 70 mL の血液を送り出し、安静時の速さなら一日に約 108,000 回これを繰り返します。
実物大の恐竜のあいだを歩く
幅 600 m の園内に、最初の恐竜からティラノサウルスまで、172 種の古生物が実物大で時代順に並んでいます。
マンモスの大きさをゾウや氷河期の動物と比較
ケナガマンモスから剣歯ネコまで、最終氷期の 65 種を実物大で並べた幅 600 m の園内を歩けます。50,000 年を動かす時間スライダーもあります。
錯視はなぜ起こるのか:チェッカーの影、エイムズの部屋、大きさと動き
マス A は暗く、マス B は明るく見えます。けれども画面が目に送っている灰色は、どちらもまったく同じです。
人類の進化の年表を歩く:実物大の身長と脳の比較展示
Lucy の身長は約1.1 m。700万年の人類の近縁種を実物大で見ながら、自分の像を隣に置いて歩けます。