図 91探検館
人類の進化の年表を歩く:実物大の身長と脳の比較展示
Lucy の身長は約1.1 m。700万年の人類の近縁種を実物大で見ながら、自分の像を隣に置いて歩けます。
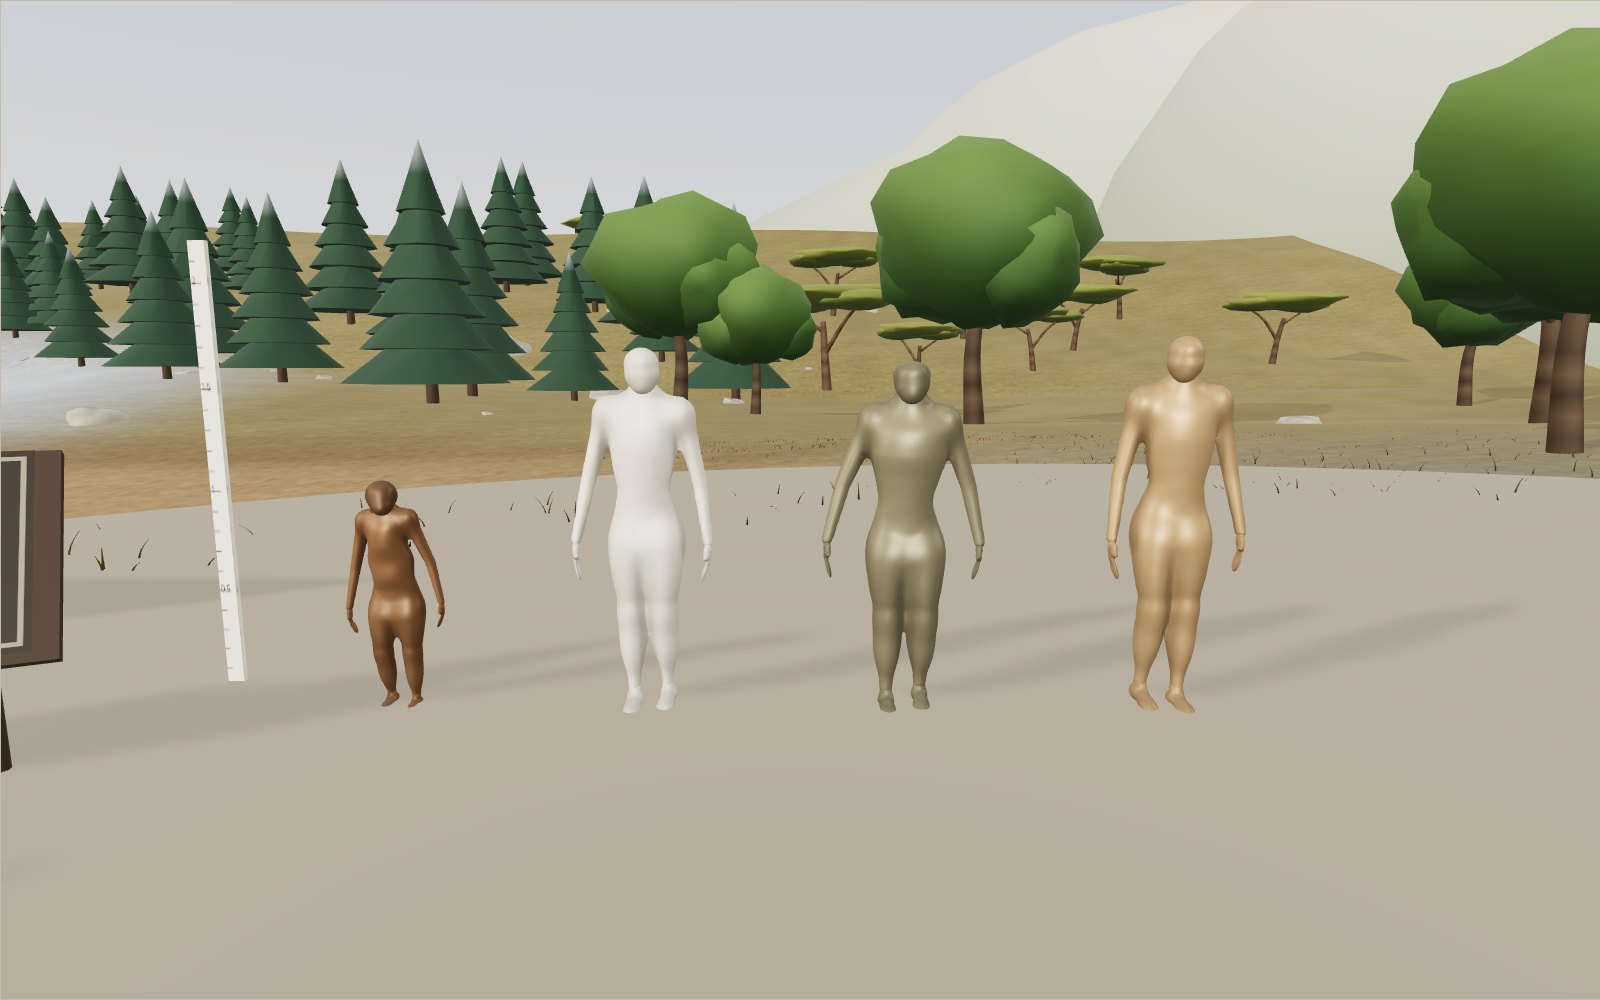
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 13 Lucy、あなた、近縁種時間の道の現在側に3体が実物大で並びます。Lucy は約1.1 m、あなたは設定した身長、ネアンデルタール人男性は1.64 m です。物差しは10 cm 刻みです。WASD やジョイスティックで歩き、ドラッグで見回します。
ドラッグで回転、ホイールか二本指で拡大します。
人類の進化を年表に沿って歩く
人類の進化の年表を、約700万年前から現在まで26種の人類と近縁種を実物大で並べて確かめられます。博物館では初期人類をガラスケースの頭骨で見ることが多いですが、棚の頭骨だけでは体の大きさも、隣に立ったときの感じもなかなか分かりません。この展示では地面の上を、生きていた時代の順に歩いて通り過ぎます。
最初に見えるのは広場の像です。Australopithecus afarensis の骨格としてよく知られる Lucy は、身長約1.1 m です。その隣には自分の身長に合わせた像があります。操作欄で設定すると、このブラウザーに記憶されます。さらに1.64 m のネアンデルタール人男性と、1.75 m の Homo sapiens が並びます。列の端の物差しは10 cm 刻みです。Lucy の小ささと、隣に立つネアンデルタール人のがっしりした体格が分かります。
広場から西へ、時代をさかのぼる道が延びています。沿道には化石の発見地と時代に合わせた十三か所があります。最初の直立する類人猿の森、Laetoli の足跡がある東アフリカ大地溝帯、Olduvai Gorge、南アフリカの洞窟、アジア、スペインの Atapuerca、モロッコの Jebel Irhoud、Rising Star 洞窟、シベリアの Denisova Cave、Flores 島と Luzon 島、氷期のヨーロッパ、Bering 陸橋です。
像の形は、脚や腕の長さ、胸郭の形、骨盤の幅、脳頭蓋の大きさなど、骨格の比率をもとにしています。顔、皮膚、毛は化石に残らないため、顔の造作のない滑らかなブロンズや石膏のマネキン像に仕上げています。どの像にも「復元(推定)」の表示があります。頭骨や数本の歯しか知られていない種は、近縁種の大きさで像を作り、カードにもその旨を記しています。
時間の道の配置
700万年という長さは想像しにくく、多くの種は最後の数十万年に集中しています。1万年につき1 m の道にすると、最初のネアンデルタール人から現在までが、全長700 m の道の端の40 m に収まります。そこで尺度を均一にはしていません。道の各地点までの距離は、年代を700万年で割った値の平方根に600 m を掛けています。現在は広場、10万年前は72 m、100万年前は227 m、Lucy の時代の320万年前は406 m、700万年前は最も遠い600 m の地点です。
道沿いの柱は切りのよい年代を示し、左上のパネルには現在地と時代が出ます。道の上では足元の年代、各場所ではその場所の年代範囲を示します。下のミニマップには道全体が表示され、タップやクリックで移動できます。
パソコンでは WASD または矢印キー、スマートフォンではジョイスティックで歩きます。ドラッグで見回し、Shift で走ります。道が長いので、図鑑やミニマップから種や場所へ直接移動することもできます。
自分の身長で Lucy と並ぶ
Lucy は1974年、エチオピアの Hadar で Donald Johanson と Maurice Taieb によって発見されました。約320万年前に生きていた成人女性で、身長は約1.1 m でした。発見の夜、キャンプで Beatles の「Lucy in the Sky with Diamonds」が流れていたことから名付けられました。エチオピアでは、アムハラ語で「あなたはすばらしい」を意味する Dinknesh と呼ばれます。
彼女の種 Australopithecus afarensis は、よく知られている初期人類の一つです。300個体以上の遺骨が見つかり、約385万年前から295万年前まで生存しました。私たちの種がこれまで存在してきた期間のおよそ3倍です。Smithsonian による平均身長は女性1.05 m、男性1.51 m、平均体重はそれぞれ29 kg と42 kg です。男女の体格差は現在の人類より大きかったのです。
Lucy の骨格には二つの暮らし方が見えます。短く幅広い骨盤と、膝へ向かって内側に傾く大腿骨は、直立して歩く際に体重を足の上に保ちました。一方、長い腕、上腕骨の胸筋が付く部分の発達した稜、長く曲がった足指の骨は、木登りに適した特徴です。展示の像には、上部より下部が広いアウストラロピテクス類の漏斗状の胸郭、短い首、長い腕を表現しています。
操作欄で自分の身長を設定すると、隣の像が変わります。図鑑で彼女のカードを開くと、その種の平均身長と比べて自分がどのくらい高いか低いか、さらに自分の年齢と同じ長さの人生を何回重ねると彼女の時代まで届くかが分かります。
古い順に並ぶ種
園内の全種を示します。身長は Smithsonian または Australian Museum の平均値で、男女差がある場合は女性、男性の順です。脳容積も同じ資料、またはカードに名を記した個別の頭骨に基づきます。資料に数値がない場合は、作り出さず「不明」としています。
| 種 | 生存年代 | 発見地 | 平均身長(女性–男性) | 脳容積 |
|---|---|---|---|---|
| Sahelanthropus (Sahelanthropus tchadensis) | 700万~600万年前 | チャド | 不明 | 350 cm³ |
| Orrorin (Orrorin tugenensis) | 620万~580万年前 | ケニア | 不明 | 不明 |
| Ardipithecus kadabba (Ardipithecus kadabba) | 580万~520万年前 | エチオピア | 不明 | 不明 |
| Ardipithecus ramidus (Ardipithecus ramidus) | 約440万年前 | エチオピア | 1.20 m | 325 cm³ |
| Australopithecus anamensis (Australopithecus anamensis) | 420万~380万年前 | ケニア、エチオピア | 不明 | 370 cm³ |
| Australopithecus afarensis (Australopithecus afarensis) | 385万~295万年前 | エチオピア、ケニア、タンザニア | 1.05–1.51 m | 430 cm³ |
| Kenyanthropus (Kenyanthropus platyops) | 350万~320万年前 | ケニア | 不明 | 430 cm³ |
| Australopithecus africanus (Australopithecus africanus) | 330万~210万年前 | 南アフリカ | 1.15–1.38 m | 480 cm³ |
| Australopithecus garhi (Australopithecus garhi) | 約250万年前 | エチオピア | 不明 | 450 cm³ |
| Australopithecus sediba (Australopithecus sediba) | 約198万年前 | 南アフリカ | 1.30 m | 420 cm³ |
| Paranthropus aethiopicus (Paranthropus aethiopicus) | 270万~230万年前 | ケニア、エチオピア | 不明 | 410 cm³ |
| Paranthropus boisei (Paranthropus boisei) | 230万~120万年前 | エチオピア、ケニア、タンザニア、マラウイ | 1.24–1.37 m | 505 cm³ |
| Paranthropus robustus (Paranthropus robustus) | 180万~120万年前 | 南アフリカ | 1.00–1.20 m | 不明 |
| Homo habilis (Homo habilis) | 240万~140万年前 | タンザニア、ケニア、南アフリカ | 1.00–1.35 m | 610 cm³ |
| Homo rudolfensis (Homo rudolfensis) | 190万~180万年前 | ケニア | 不明 | 775 cm³ |
| Homo ergaster (Homo ergaster) | 190万~150万年前 | ケニア | 1.60–1.80 m | 860 cm³ |
| Homo erectus (Homo erectus) | 189万~110,000年前 | ジャワ、 中国、ケニア、ジョージア | 1.45–1.85 m | 1,050 cm³ |
| Homo antecessor (Homo antecessor) | 120万~800,000年前 | スペイン | 1.60–1.80 m | 1,000 cm³ |
| Homo heidelbergensis (Homo heidelbergensis) | 700,000~200,000年前 | ドイツ、ザンビア、ヨーロッパ | 1.57–1.75 m | 1,300 cm³ |
| ネアンデルタール人 (Homo neanderthalensis) | 400,000~40,000年前 | ヨーロッパ、西アジア、シベリア、ドイツ、フランス、スペイン | 1.55–1.64 m | 1,500 cm³ |
| デニソワ人 (Denisovans(種の学名は未定)) | 500,000~30,000年前 | シベリア、チベット | 不明 | 不明 |
| Homo naledi (Homo naledi) | 335,000~236,000年前 | 南アフリカ | 1.44 m | 560 cm³ |
| Homo floresiensis (Homo floresiensis) | 100,000~50,000年前 | Flores | 1.06 m | 400 cm³ |
| Homo luzonensis (Homo luzonensis) | 67,000~50,000年前 | Luzon | 不明 | 不明 |
| 初期 Homo sapiens (Homo sapiens (Jebel Irhoud)) | 315,000~300,000年前 | モロッコ | 個体差あり | 不明 |
| Homo sapiens (Homo sapiens) | 300,000年前~現在 | 世界各地 | 個体差あり | 1,300 cm³ |
二つの項目には補足が必要です。Homo ergaster を別に載せたのは、Australian Museum が独立した種として扱う一方、Smithsonian は Turkana Boy を含む同じ化石を Homo erectus に分類するためです。デニソワ人には、種を記載できるだけの骨がないため、まだ学名がありません。
最初の直立する類人猿
道の最も古い部分は森です。チャドの Djurab 砂漠の Sahelanthropus tchadensis は、主に変形した頭骨1点から知られ、年代は700万~600万年前です。チンパンジーのような小さな脳と傾斜した顔を持ち、Australian Museum は脳容積を320~380 cm³ と推定しています。直立歩行したかは議論中です。2022年、同じ遺跡の大腿骨と前腕骨2本を調べた研究は直立歩行と結論しましたが、木登りする類人猿の骨だと解釈する研究者もいます。ここでは検討対象の説に合わせて直立させ、カードに異論も記しています。
ケニアの Tugen Hills の Orrorin tugenensis は620万~580万年前に生存しました。大腿骨は二足歩行を示唆し、Lucy の約1.5倍の大きさです。Smithsonian は、雌のチンパンジーほどの30~50 kg の体を推定しています。
Ardipithecus kadabba はエチオピアの Middle Awash の歯と少数の骨から知られ、580万~520万年前のものです。後の近縁種 Ardipithecus ramidus は、440万年前の女性部分骨格「Ardi」のおかげで詳しく分かっています。身長約1.2 m、体重約50 kg でした。地上では直立歩行しましたが、足の親指は手の親指のように横に開き、足で枝をつかめました。像の足を見ると、園内でこの親指があるのは彼女だけです。
森の端の石膏像には別の役割があります。人類はチンパンジーから進化したとよく言われますが、そうではありません。チンパンジーとボノボ、ゴリラ、人類は、Smithsonian によれば800万~600万年前の共通祖先を持ちます。その後は各系統が別々に変化しました。チンパンジーは現生の最も近い親戚であって、祖先ではありません。
Lucy の種と Laetoli の足跡
東アフリカ大地溝帯には Lucy の種と、その祖先の候補 Australopithecus anamensis、Kenyanthropus platyops がいます。エチオピアの Woranso-Mille で2016年に発見された380万年前の anamensis の頭骨により、この種の顔が初めて分かりました。ケニアの West Turkana の Kenyanthropus は350万~320万年前の平らな顔の頭骨で、名は「ケニアの平らな顔の人」を意味します。発見者は Homo rudolfensis の祖先の候補と見ますが、納得していない研究者もいます。
黒い灰の場所では3体の像が往復しています。360万年前、タンザニアの Laetoli で3人の初期人類が湿った火山灰を横切りました。後の噴火が足跡を覆って保存しました。Mary Leakey のチームが1976年に動物の足跡を発見し、1978年に Paul Abell が人類の足跡列を見つけました。長さはほぼ27 m、約70個の足跡です。親指は私たちと同じく他の指と並び、かかとが先に着き、最後につま先で蹴っています。歩幅の短さは短い脚と合います。この場所と時代で知られている初期人類は、同じ地層に化石がある Australopithecus afarensis だけです。
2016年、Laetoli の別の地点で見つかった新しい足跡は、ずっと大きな個体のもので、種内の体格差が大きかったことを示唆します。
「足跡を残す」をオンにして灰を歩くと、身長に応じた長さと間隔の足跡が後ろに現れます。自分の歩幅と化石の足跡列を比べられます。
多くの近縁種:Paranthropus と初期 Homo
約270万~120万年前、東部と南部アフリカには複数の初期人類が同時に暮らしていました。そのうち3種は「頑丈型」のアウストラロピテクス類 Paranthropus に属します。巨大な臼歯、厚い顎、外へ張る頬骨を持ち、男性には大きな咀嚼筋が付く頭頂部の稜がありました。
最も古い Paranthropus aethiopicus は、1985年に West Turkana で見つかった「黒い頭骨」で知られます。生前は普通の骨と同じ白色でしたが、地中の鉱物で黒くなりました。脳容積は約410 cm³ です。1959年に Olduvai Gorge で初めて見つかった Paranthropus boisei は、初期人類で最大の臼歯を持ちました。ケニアの Koobi Fora の頭骨は約500 cm³ と510 cm³ です。Paranthropus robustus は約180万~120万年前、初期 Homo とともに南アフリカの洞窟にいました。
同時期に私たちの属の最初の仲間も現れます。「器用な人」を意味する Homo habilis は、1960年に Olduvai Gorge で初発見され、近くに石器もありました。身長1.0~1.35 m、体重約32 kg です。頭骨 KNM-ER 1813 は510 cm³ にすぎませんが、Australian Museum は種の平均を約610 cm³ としています。Turkana 湖岸の Homo rudolfensis はより大きな脳頭蓋を持ち、KNM-ER 1470 は Smithsonian の値で約775 cm³ です。rudolfensis と habilis が本当に別種かは議論中です。
南アフリカの Malapa の縦穴で見つかった Australopithecus sediba は、最初の Homo より新しく、約420 cm³ の小さな脳と、私たちに近い手や骨盤という新旧の特徴を併せ持ちます。12~13歳の少年の骨格 MH1 は、身長が最大でも1.3 m でした。
Lomekwi から Levallois までの石器
Olduvai Gorge の石板には4種の石器があり、手前の石核を打ち欠けます。「石器」のスライダーで技法を選び、「打つ」で剥片を落とします。
最古の既知の石器はケニアの West Turkana の Lomekwi 3 にあり、約330万年前のものです。これまで発見された Homo 化石より古いので、アウストラロピテクス類や Kenyanthropus など、私たちの属以外が作った可能性があります。台石に打ち付けた、大きく単純な石器です。
Olduvai に由来するオルドワン石器群は約260万年前までに現れます。エチオピアの Gona 遺跡には約250万~260万年前の石器があります。ハンマー石、一つ以上の縁に剥離痕がある石核、切れ味のよい鋭い剥片からなります。
約176万年前、ケニアの Kokiselei に新しい形の握斧が現れます。両面を加工したしずく形で、尖った先端と長い刃があります。このアシュール型の握斧は、アフリカ、ヨーロッパ、アジアで100万年以上作られました。
約400,000年前から石器作りの変化が速まります。アフリカの一部では少なくとも285,000年前までに、ヨーロッパと西アジアでは250,000~200,000年前に、石核を先に整え、一打で尖頭器など予定した形の剥片を取るようになりました。ネアンデルタール人や初期 Homo sapiens が用いた、ルヴァロワ技法または調整石核技法です。
アフリカを出る Homo erectus
Homo erectus は約189万~110,000年前まで、園内のどの人類種より長く存続しました。化石はアフリカ北部、東部、南部、ジョージアの Dmanisi、中国、インドネシアから見つかります。1891年にジャワで見つかった頭蓋冠は、ヨーロッパ以外で初めて認められた初期人類化石でした。Smithsonian は、初期人類がアフリカからアジアへ初めて出たのは200万~180万年前、ヨーロッパ到達は150万~100万年前と推定しています。
体の比率は私たちに近く、長い脚、樽形の胸、アウストラロピテクス類より狭い骨盤がありました。大きさは1.45~1.85 m、40~68 kg と大きく異なります。ケニアの Nariokotome のほぼ全身の骨格 Turkana Boy は、死亡時約1.6 m、48 kg でした。歯から約8歳と考えられます。脳容積は880 cm³ で、成人なら約909 cm³ に達したと推定されます。Olduvai の約140万年前の頭骨 OH 9 は、脳が1000 cm³ を超える最古の既知の初期人類化石です。アジアの Homo erectus の平均は約1050 cm³ でした。
火
園内の火は炉を使った場所を表しています。火の管理の最も確かな古い証拠は、南アフリカの Wonderwerk Cave の約100万年前の地層にある、焼けた骨と植物灰です。洞窟の奥で燃えたため、野火では説明しにくいものです。後の炉跡はネアンデルタール人の遺跡や氷期ヨーロッパの洞窟に多く見られます。「火」をオフにすると、火のない状態が見られます。
実物大の脳
「実物大の脳」をオンにすると像が透け、カードの容積に合わせた脳が頭の中に現れます。広場の棚にも、容積が分かる各種の脳が古い順に左から並びます。
脳容積は脳頭蓋の内部から測ります。内側の型であるエンドキャストの体積を測るか、頭骨をスキャンし、内部の空間をコンピューターで計測します。脳そのものは化石になりませんが、脳頭蓋には大きさと形の一部が残ります。
値は時代とともに増えますが、滑らかな一直線ではありません。最初の種はチンパンジーほどの300~400 cm³、Lucy の種は平均約430 cm³ でした。Homo habilis は約610 cm³、Homo erectus は約1050 cm³、私たちの種は平均約1300 cm³ です。Smithsonian は、気候が激しく変動した約800,000~200,000年前に、脳容積の増加が最も速かったとしています。
この傾向には例外があります。ネアンデルタール人の脳は平均約1500 cm³ と私たちより大きく、イスラエルの Amud の頭骨は約1740 cm³ です。一方、後の2種は小さく、Homo naledi は約465~560 cm³、Homo floresiensis は約400 cm³ です。脳の大きさだけでは思考のあり方は測れません。体格、脳の形、内部の構成も重要です。
島の小柄な人類
インドネシアの Flores 島の Liang Bua 洞窟で、2003年に骨格 LB1 が発見されました。成人女性で身長約1.06 m、体重約30 kg、脳容積約400 cm³ でした。Homo floresiensis は短い脚、前向きの肩、あご先のない顎、体の割に大きな足を持ちました。約100,000~50,000年前まで Flores に生存し、そのころ私たちの種はすでにアジアの他の地域にいました。
フィリピンの Luzon 島の Callao Cave の Homo luzonensis は、少なくとも50,000~67,000年前の歯や手足の骨から2019年に命名されました。手足の指の骨は、ずっと古い種のように曲がっています。身長を知る証拠がないため、像は Homo floresiensis の大きさで作り、名札にもその旨を示しています。
この場所の洞窟には壁画があります。Flores から遠くない Sulawesi 島の Leang Karampuang では、人と豚の絵が少なくとも51,200年前に描かれました。知られている最古の絵画場面です。ここに描かれた絵はその趣旨をくんだもので、模写ではありません。
Rising Star と Homo naledi
2013年、南アフリカの Rising Star 洞窟群を探検していた人々が、狭い垂直の通路でしか入れない部屋で骨を見つけました。その後、少なくとも15個体、約1,550点の骨標本が回収され、2015年に Homo naledi と命名されました。
Homo naledi は身長約1.44 m、体重約40~56 kg でした。手首と親指は現代的でも他の指は曲がり、肩は木登り、足は歩行に適していました。意外だったのは年代で、335,000~236,000年前にすぎません。465~560 cm³ の脳を持つ種が、初期 Homo sapiens と同じ時期のアフリカにいたのです。
遺体がどう洞窟の奥に入ったかは議論中です。発見チームは意図的に置かれたと提案しますが、他の研究者は納得せず、洞窟に骨が集まる別の経路を指摘しています。
ネアンデルタール人
氷期ヨーロッパの場所には壁画のある洞窟、炉、そのそばにしゃがむネアンデルタール人がいます。約400,000~40,000年前、ヨーロッパと南西~中央アジアに生存しました。短く頑丈な体、厚い骨、広い骨盤、厚みのある胸は、寒冷地で熱を保つのに役立ちます。Smithsonian の平均値は男性1.64 m、65 kg、女性1.55 m、54 kg です。
頭骨は長く低く、目の上の大きな眉弓、大きな鼻、あご先のない顎、後方の「後頭部隆起」があります。最初の化石は1829年にベルギーの Engis、1848年に Gibraltar で見つかりましたが、認識されたのは1856年にドイツの Neander Valley で発見され、種名が付いた後です。
ネアンデルタール人と現生人類は出会い、子をもうけました。アフリカ以外に祖先を持つ人は、その出身地域に応じて最大1~4%のゲノムをネアンデルタール人から受け継ぎます。約40,000年前の現生人類には最大6~9%の例があります。よく引用される2%は、大まかな中間値です。
スペインの Maltravieso Cave の手形は64,000年以上前、Homo sapiens がヨーロッパへ来る前と測定されています。年代が正しければネアンデルタール人が作りました。測定法を疑問視する研究者もいるため、発見カードにも記しています。
DNA から知られるデニソワ人
Denisova Cave はシベリアの Altai Mountains にあります。2010年、小さな指の骨の DNA が、未記載の人類集団のものと分かり、同年に全ゲノムも報告されました。デニソワ人と呼ばれる集団です。遺伝子からネアンデルタール人の近縁と分かり、Australian Museum は両者の分岐を約400,000~500,000年前としています。
知られている骨はごく少数です。Denisova Cave の歯、指骨、断片、標高3,280 m のチベット高原の Baishiya Karst Cave の顎、ラオスの歯などです。そのためまだ種の学名がなく、像はネアンデルタール人の大きさで作っています。中国の頭骨の一部がデニソワ人と分かる可能性もありますが、化石と DNA の対応なしには確定が難しいのです。
Denisova Cave の骨片の一つは、死亡時少なくとも13歳の少女のものでした。母はネアンデルタール人、父はデニソワ人でした。デニソワ人の DNA は現在も、東南アジアと太平洋の一部集団に最大4~6%残っています。
Homo sapiens:Jebel Irhoud、出アフリカ、アメリカへ
Smithsonian は Homo sapiens の起源を約300,000年前としています。モロッコの Jebel Irhoud の約315,000年前の頭骨と石器は、私たちに似た顔と、より長く低い脳頭蓋を示します。アフリカの離れた端々の化石は、私たちの種が一地点でなく、大陸全体で形作られたことを示唆します。
現生人類は何度もアフリカを出ました。イスラエルの Misliya Cave の177,000~194,000年前の顎は、アフリカ外の最古級の Homo sapiens 化石です。現在アフリカ外に住む人の多くは、より後の移動の子孫です。Smithsonian は、オーストラリアへの到達を過去60,000年以内、アメリカへは過去約30,000年以内と推定します。
Beringia の場所では二つの海に乾いた陸地が挟まれています。最終氷期の寒さのピークには海面が低く、広い平原がシベリアとアラスカをつなぎました。ここでの足跡は、ニューメキシコの White Sands の約23,000~21,000年前の足跡を表します。水草の種子に基づく年代は異論を受けましたが、2023年、別の二つの方法でも同じ年代が得られました。
広場の Homo sapiens は、1868年にフランスで見つかった約30,000年前の Cro-Magnon 1 を表します。人や集団の身長差が大きく種の平均を一つにできないため、名札には模型身長1.75 m と記しています。
年代の調べ方
園内の年代は骨だけでなく地層から得ています。二種類の方法を組み合わせます。
相対年代測定は順序を決めます。堆積物は重なってたまるため下の層ほど古くなります。一定の時代だけにいた動物の化石、示準化石により、離れた地層を対応させられます。Lucy の骨格とともに、各々の生存期間が分かる絶滅したブタ類3種が見つかりました。3種が同時にいたのは350万~290万年前だけなので、Lucy もその年代だと分かりました。
絶対年代測定は年数を与えます。東アフリカの多くの遺跡は火山灰層の間にあります。灰にはカリウムが含まれ、その一形態はゆっくりアルゴンガスに変わります。冷却後は結晶内に閉じ込められるため、蓄積量から噴火後の時間が分かります。こうした方法による Lucy の現在の年代は約318万年前で、ブタ化石からの予測範囲に入ります。
新しい遺跡には別の時計が必要です。半減期5,730年の放射性炭素は約50,000年前までの遺物に使えます。ルミネッセンス法は、埋もれた砂粒や焼けたフリントに、最後の加熱や日光への露出以来たまったエネルギーを測り、放射性炭素の限界より古い堆積物や炉を測定できます。White Sands の足跡は種子で年代測定し、花粉と石英粒のルミネッセンスでも確認しました。
園内に年代範囲が多いのはそのためです。通常、化石の上下の層を測定し、真の年代はその間にあります。
体と気候
体形には祖先だけでなく気候も影響します。背が高く細い Homo erectus の体は、広い皮膚表面から熱を逃がせる暑い開けた土地に適していました。Homo heidelbergensis などが寒い地域へ進むと、体はコンパクトになり、皮膚表面を減らして熱を保ちました。短い前腕とすね、広い胸、頑丈な体を持つネアンデルタール人で最も顕著です。園内で自分の像を両者の隣に置くと、同じ身長でも違いが分かります。
同じ時代に生きる
「時代」スライダーを動かすと、その時点の道が光ります。当時生存した種の像は明るく、他は暗くなり、パネルに同時にいた人類種の数が出ます。
過去200万年の大半で、その数は一つより多くなります。180万年前には Paranthropus boisei と robustus、Homo habilis、Homo rudolfensis、Homo ergaster、Homo erectus がデータ上重なります。300,000年前には Homo erectus、Homo heidelbergensis、ネアンデルタール人、デニソワ人、Homo naledi、初期 Homo sapiens が重なります。50,000年前にも Homo sapiens、ネアンデルタール人、デニソワ人、Homo floresiensis、Homo luzonensis の5種がいました。人類が1種だけだったのは、その歴史の短い部分です。
範囲は、これまで見つかった化石について資料が示すものです。既知の化石より早く現れ、遅くまで生存した可能性もあり、新発見で数は変わり得ます。
よくある誤解
進化ははしごではありません。 類人猿から人へ並ぶ絵は、各種が次の種に変わったように見せます。実際は茂みのように枝分かれし、多くの枝は子孫を残さず終わりました。Smithsonian は、初期人類種の大半は現生の子孫を残さず、科学者は約15~20種を認める一方、互いの関係では一致していないとしています。
人類はチンパンジーから進化したのではありません。 両系統は800万~600万年前の共通祖先から分かれました。
歩行が先で、大きな脳はずっと後です。 二足歩行は400万年以上前に確立しました。大きな脳は後に現れ、美術、複雑な象徴、精緻な文化は主に過去100,000年に見られます。
ネアンデルタール人は私たちの失敗作ではありません。 厳しい気候のもとで数十万年生存した別系統で、火と調整石核の石器を使い、DNA の一部を私たちに残しました。
像の作り方
像はページの読み込み時に形を組み立て、完成した模型をダウンロードする方式ではありません。種ごとに、身長、股関節の高さ、腕の長さ、肩幅と骨盤幅、胸郭の形、四肢の太さを設定しています。頭には別に、脳容積、頭蓋冠の長さ、幅、高さ、眉弓の大きさ、顔の突出、頬骨幅、あご先や稜、後頭部隆起の有無があります。
これらの数値から滑らかな三次元形状を距離場として表し、表面に変換します。胴体、頭、手足を異なる細かさで取り出し、16本の骨を持つ一つのメッシュにつなげています。そのため歩いたり、こちらを見たり、火のそばにしゃがんだりしても、描画命令は一回です。脳頭蓋の内部空間は種の脳容積に合わせ、透けて見える脳にも同じ値を使います。
骨から分かるのは比率であり、唇、耳、肌の色、体毛の量ではありません。博物館の造形作家は頭骨に筋肉や組織を重ねて顔を復元しますが、結果は作家により異なります。この展示はそれを試みません。像は滑らかなマネキン仕上げで、頭は目、鼻、口、耳のない卵形です。種によって低いまたは高い頭蓋冠、緩い眉の膨らみ、前に出る顔など、比率だけが変わります。手足も単純で滑らかです。ブロンズは古い種ほど暗く、Homo sapiens に近づくほど明るい色調です。石膏仕上げでは、肖像でなく彫像だとさらに分かります。身長不明の種は近縁種の大きさを使い、名札に「模型」と示します。
科学者の見解が分かれる点
カードには未解決の問いを示しています。園内の主なものは次のとおりです。
- Sahelanthropus は直立歩行したか。
- Kenyanthropus は独立した属か。
- Homo rudolfensis は Homo habilis とは別種か。
- Homo ergaster は独立種か、アフリカの Homo erectus か。
- Homo antecessor と Homo heidelbergensis は系統樹のどこに位置するか。
- デニソワ人の姿と、どの化石が彼らのものか。
- Homo naledi の遺体はどう Rising Star の奥に入ったか。
- ヨーロッパ最古の洞窟美術の年代と作者は誰か。
こうした不一致は通常の科学であり、証拠の弱さを意味しません。新しい化石は枝を確認し、位置を変え、あるいは分け直すことがあります。
課題と隠れた発見
「課題」ボタンには、種のカードと同じ数値から答えを求める10問があります。自分より脳が大きい種、最も小さい種、50,000年前に共存した種、最古の石器、Laetoli の足跡の主、スペインの手形を作った可能性のある種、最も背が高い種、最初に脳が1000 cm³ を超えた種、100,000年前の種数、自分と身長が最も近い種です。解いた課題の星はこのブラウザーに残ります。
園内には十九個の小さな物が隠れています。Lucy の近くのラジオ、Denisova Cave の骨片、Taung Child の近くのワシ、洞窟壁の手形などです。近づくとカードが開きます。「発見」パネルには、関係する場所へ初めて入ったときに開く8枚の「実は」のカードも集まります。
広場東端の扉から、恐竜の散策や同じ展示室の他の散策へ進めます。
よくある質問
人類はチンパンジーから進化しましたか?
いいえ。人類、チンパンジーとボノボ、ゴリラには800万~600万年前の共通祖先があります。チンパンジーは現生の最も近い親戚であり、祖先ではありません。
Lucy の身長は?
約1.1 m で、成人女性でした。Smithsonian は種の平均身長を女性1.05 m、男性1.51 m としています。
なぜ Lucy という名なのですか?
発見の夜、キャンプで Beatles の「Lucy in the Sky with Diamonds」が流れていたため、調査チームが名付けました。エチオピアでは、アムハラ語で「あなたはすばらしい」を意味する Dinknesh と呼ばれます。
ネアンデルタール人と Homo sapiens は同時に生きていましたか?
はい。ヨーロッパと西アジアで数万年間重なり、子ももうけました。アフリカ外に祖先を持つ人は最大1~4%のネアンデルタール人 DNA を受け継いでいます。
ネアンデルタール人の脳は私たちより大きかったのですか?
平均ではそうです。現生人類の約1300 cm³ に対し約1500 cm³ です。ただし脳容積だけでは思考のあり方は分かりません。
最も小さな人類種は?
身長の推定値がある種では Homo floresiensis です。骨格 LB1 の身長は約1.06 m でした。
同時に何種の人類がいましたか?
時点によります。約50,000年前には少なくとも Homo sapiens、ネアンデルタール人、デニソワ人、Homo floresiensis、Homo luzonensis の5種がいました。「時代」スライダーで各時点の数を見られます。
最古の石器は誰が作りましたか?
分かっていません。約330万年前の Lomekwi 3 の石器は全ての Homo 化石より古いため、アウストラロピテクス類や Kenyanthropus など別の初期人類が作った可能性があります。
人類が最初に火を使ったのはいつですか?
最も確かな古い証拠は、南アフリカの Wonderwerk Cave の約100万年前のものです。もっと古い説もありますが、自然火災との区別が難しくなります。
デニソワ人とは?
ネアンデルタール人の近縁の人類集団で、2010年にシベリアの Denisova Cave の指骨の DNA から初めて認識されました。骨が少なく、種の学名はありません。東南アジアと太平洋の一部の現生集団には最大4~6%のデニソワ人 DNA があります。
名札に身長がない像があるのはなぜですか?
頭骨、顎、歯しか知られておらず、身長の資料がない種もあります。その像は近縁種の大きさで作り、名札とカードに「模型」と示しています。
顔は本物の姿ですか?
いいえ。顔、皮膚、毛は推定による復元です。像は顔の造作のない、滑らかなブロンズや石膏のマネキンで、肖像のように見せずに体と頭の比率を示しています。
進化は類人猿から人への一直線ですか?
いいえ。茂みのように枝分かれし、多くの枝は途絶えました。複数の人類種が長い期間、隣り合って生存しました。
人類がアメリカに到達したのはいつですか?
ニューメキシコの White Sands の足跡は約23,000~21,000年前です。Smithsonian の一般的な推定は過去約30,000年以内です。
時間の道の尺度が不均一なのはなぜですか?
多くの種は最後の数十万年に生存しました。均一の尺度では数十 m に押し込まれるため、年代の平方根を使い、最近の時代を広げ、古い時代を近くに詰めています。
用語
- ホミニン:チンパンジーへ続く系統から分かれた後の、人類側の系統の仲間です。
- 二足歩行:2本の脚で直立して歩くことです。
- アウストラロピテクス類:Australopithecus または近縁の仲間で、小さな脳と直立歩行が特徴です。約420万~120万年前に生存しました。
- Paranthropus:非常に大きな臼歯と顎を持つ頑丈な近縁群です。
- エンドキャスト:脳容積の測定に使う、脳頭蓋の内側の型です。
- オルドワン:約260万年前までに現れる、ハンマー石、石核、剥片からなる石器群です。
- アシュール:約176万年前からの、両面加工の握斧など大型石器を含む石器群です。
- ルヴァロワ:石核を整え、一打で予定した形の剥片を取る技法です。
- 後頭部隆起:ネアンデルタール人に典型的な、頭骨後部の膨らみです。
- 遺伝子浸透:交雑を通じて DNA が一つの集団から別の集団へ移ることです。
参考資料
- Smithsonian Human Origins, Sahelanthropus tchadensis. https://humanorigins.si.edu/evidence/human-fossils/species/sahelanthropus-tchadensis (checked 19 October 2026)
- Smithsonian Human Origins, Orrorin tugenensis. https://humanorigins.si.edu/evidence/human-fossils/species/orrorin-tugenensis (checked 19 October 2026)
- Smithsonian Human Origins, Ardipithecus kadabba. https://humanorigins.si.edu/evidence/human-fossils/species/ardipithecus-kadabba (checked 19 October 2026)
- Smithsonian Human Origins, Ardipithecus ramidus. https://humanorigins.si.edu/evidence/human-fossils/species/ardipithecus-ramidus (checked 19 October 2026)
- Smithsonian Human Origins, ARA-VP-6/500 "Ardi". https://humanorigins.si.edu/evidence/human-fossils/fossils/ara-vp-6500 (checked 19 October 2026)
- Smithsonian Human Origins, Australopithecus anamensis. https://humanorigins.si.edu/evidence/human-fossils/species/australopithecus-anamensis (checked 19 October 2026)
- Smithsonian Human Origins, Australopithecus afarensis. https://humanorigins.si.edu/evidence/human-fossils/species/australopithecus-afarensis (checked 19 October 2026)
- Smithsonian Human Origins, AL 288-1 "Lucy". https://humanorigins.si.edu/evidence/human-fossils/fossils/al-288-1 (checked 19 October 2026)
- Smithsonian Human Origins, Laetoli Footprint Trails. https://humanorigins.si.edu/evidence/behavior/footprints/laetoli-footprint-trails (checked 19 October 2026)
- Smithsonian Human Origins, Kenyanthropus platyops. https://humanorigins.si.edu/evidence/human-fossils/species/kenyanthropus-platyops (checked 19 October 2026)
- Smithsonian Human Origins, Australopithecus africanus. https://humanorigins.si.edu/evidence/human-fossils/species/australopithecus-africanus (checked 19 October 2026)
- Smithsonian Human Origins, Taung Child. https://humanorigins.si.edu/evidence/human-fossils/fossils/taung-child (checked 19 October 2026)
- Smithsonian Human Origins, Australopithecus garhi. https://humanorigins.si.edu/evidence/human-fossils/species/australopithecus-garhi (checked 19 October 2026)
- Smithsonian Human Origins, BOU-VP-12/1. https://humanorigins.si.edu/evidence/human-fossils/fossils/bou-vp-121 (checked 19 October 2026)
- Smithsonian Human Origins, Australopithecus sediba. https://humanorigins.si.edu/evidence/human-fossils/species/australopithecus-sediba (checked 19 October 2026)
- Smithsonian Human Origins, Paranthropus aethiopicus. https://humanorigins.si.edu/evidence/human-fossils/species/paranthropus-aethiopicus (checked 19 October 2026)
- Smithsonian Human Origins, KNM-WT 17000 "Black Skull". https://humanorigins.si.edu/evidence/human-fossils/fossils/knm-wt-17000 (checked 19 October 2026)
- Smithsonian Human Origins, Paranthropus boisei. https://humanorigins.si.edu/evidence/human-fossils/species/paranthropus-boisei (checked 19 October 2026)
- Smithsonian Human Origins, KNM-ER 406. https://humanorigins.si.edu/evidence/human-fossils/fossils/knm-er-406 (checked 19 October 2026)
- Smithsonian Human Origins, Paranthropus robustus. https://humanorigins.si.edu/evidence/human-fossils/species/paranthropus-robustus (checked 19 October 2026)
- Smithsonian Human Origins, Homo habilis. https://humanorigins.si.edu/evidence/human-fossils/species/homo-habilis (checked 19 October 2026)
- Smithsonian Human Origins, KNM-ER 1813. https://humanorigins.si.edu/evidence/human-fossils/fossils/knm-er-1813 (checked 19 October 2026)
- Smithsonian Human Origins, Homo rudolfensis. https://humanorigins.si.edu/evidence/human-fossils/species/homo-rudolfensis (checked 19 October 2026)
- Smithsonian Human Origins, Homo erectus. https://humanorigins.si.edu/evidence/human-fossils/species/homo-erectus (checked 19 October 2026)
- Smithsonian Human Origins, KNM-WT 15000 "Turkana Boy". https://humanorigins.si.edu/evidence/human-fossils/fossils/knm-wt-15000 (checked 19 October 2026)
- Smithsonian Human Origins, Homo heidelbergensis. https://humanorigins.si.edu/evidence/human-fossils/species/homo-heidelbergensis (checked 19 October 2026)
- Smithsonian Human Origins, Kabwe 1. https://humanorigins.si.edu/evidence/human-fossils/fossils/kabwe-1 (checked 19 October 2026)
- Smithsonian Human Origins, Homo neanderthalensis. https://humanorigins.si.edu/evidence/human-fossils/species/homo-neanderthalensis (checked 19 October 2026)
- Smithsonian Human Origins, Homo naledi. https://humanorigins.si.edu/evidence/human-fossils/species/homo-naledi (checked 19 October 2026)
- Smithsonian Human Origins, Homo floresiensis. https://humanorigins.si.edu/evidence/human-fossils/species/homo-floresiensis (checked 19 October 2026)
- Smithsonian Human Origins, LB1. https://humanorigins.si.edu/evidence/human-fossils/fossils/lb-1 (checked 19 October 2026)
- Smithsonian Human Origins, Homo sapiens. https://humanorigins.si.edu/evidence/human-fossils/species/homo-sapiens (checked 19 October 2026)
- Smithsonian Human Origins, Cro-Magnon 1. https://humanorigins.si.edu/evidence/human-fossils/fossils/cro-magnon-1 (checked 19 October 2026)
- Smithsonian Human Origins, Ancient DNA and Neanderthals. https://humanorigins.si.edu/evidence/genetics/ancient-dna-and-neanderthals (checked 19 October 2026)
- Smithsonian Human Origins, Introduction to Human Evolution. https://humanorigins.si.edu/education/introduction-human-evolution (checked 19 October 2026)
- Smithsonian Human Origins, Early Stone Age Tools. https://humanorigins.si.edu/evidence/behavior/stone-tools/early-stone-age-tools (checked 19 October 2026)
- Smithsonian Human Origins, Middle Stone Age Tools. https://humanorigins.si.edu/evidence/behavior/stone-tools/middle-stone-age-tools (checked 19 October 2026)
- Smithsonian Human Origins, Humans Change the World. https://humanorigins.si.edu/human-characteristics/humans-change-world (checked 19 October 2026)
- Smithsonian Human Origins, Dating. https://humanorigins.si.edu/evidence/dating (checked 19 October 2026)
- Smithsonian Human Origins, Brains. https://humanorigins.si.edu/human-characteristics/brains (checked 19 October 2026)
- Australian Museum, Sahelanthropus tchadensis. https://australian.museum/learn/science/human-evolution/sahelanthropus-tchadensis/ (checked 19 October 2026)
- Australian Museum, Ardipithecus ramidus. https://australian.museum/learn/science/human-evolution/ardipithecus-ramidus/ (checked 19 October 2026)
- Australian Museum, Australopithecus anamensis. https://australian.museum/learn/science/human-evolution/australopithecus-anamensis/ (checked 19 October 2026)
- Australian Museum, Australopithecus afarensis. https://australian.museum/learn/science/human-evolution/australopithecus-afarensis/ (checked 19 October 2026)
- Australian Museum, Kenyanthropus platyops. https://australian.museum/learn/science/human-evolution/kenyanthropus-platyops/ (checked 19 October 2026)
- Australian Museum, Australopithecus africanus. https://australian.museum/learn/science/human-evolution/australopithecus-africanus/ (checked 19 October 2026)
- Australian Museum, Australopithecus garhi. https://australian.museum/learn/science/human-evolution/australopithecus-garhi/ (checked 19 October 2026)
- Australian Museum, Australopithecus sediba. https://australian.museum/learn/science/human-evolution/australopithecus-sediba/ (checked 19 October 2026)
- Australian Museum, Homo habilis. https://australian.museum/learn/science/human-evolution/homo-habilis/ (checked 19 October 2026)
- Australian Museum, Homo rudolfensis. https://australian.museum/learn/science/human-evolution/homo-rudolfensis/ (checked 19 October 2026)
- Australian Museum, Homo ergaster. https://australian.museum/learn/science/human-evolution/homo-ergaster/ (checked 19 October 2026)
- Australian Museum, Homo erectus. https://australian.museum/learn/science/human-evolution/homo-erectus/ (checked 19 October 2026)
- Australian Museum, Homo antecessor. https://australian.museum/learn/science/human-evolution/homo-antecessor/ (checked 19 October 2026)
- Australian Museum, Homo heidelbergensis. https://australian.museum/learn/science/human-evolution/homo-heidelbergensis/ (checked 19 October 2026)
- Australian Museum, Homo neanderthalensis. https://australian.museum/learn/science/human-evolution/homo-neanderthalensis/ (checked 19 October 2026)
- Australian Museum, Homo floresiensis. https://australian.museum/learn/science/human-evolution/homo-floresiensis/ (checked 19 October 2026)
- Australian Museum, Homo naledi. https://australian.museum/learn/science/human-evolution/homo-naledi/ (checked 19 October 2026)
- Australian Museum, The Denisovans. https://australian.museum/learn/science/human-evolution/the-denisovans/ (checked 19 October 2026)
- Détroit, F. et al., A new species of Homo from the Late Pleistocene of the Philippines, Nature (2019). https://doi.org/10.1038/s41586-019-1067-9 (checked 19 October 2026)
- Hublin, J.-J. et al., New fossils from Jebel Irhoud, Morocco and the pan-African origin of Homo sapiens, Nature (2017). https://doi.org/10.1038/nature22336 (checked 19 October 2026)
- Richter, D. et al., The age of the hominin fossils from Jebel Irhoud, Morocco, Nature (2017). https://doi.org/10.1038/nature22335 (checked 19 October 2026)
- Reich, D. et al., Genetic history of an archaic hominin group from Denisova Cave in Siberia, Nature (2010). https://doi.org/10.1038/nature09710 (checked 19 October 2026)
- Krause, J. et al., The complete mitochondrial DNA genome of an unknown hominin from southern Siberia, Nature (2010). https://doi.org/10.1038/nature08976 (checked 19 October 2026)
- Slon, V. et al., The genome of the offspring of a Neanderthal mother and a Denisovan father, Nature (2018). https://doi.org/10.1038/s41586-018-0455-x (checked 19 October 2026)
- Chen, F. et al., A late Middle Pleistocene Denisovan mandible from the Tibetan Plateau, Nature (2019). https://doi.org/10.1038/s41586-019-1139-x (checked 19 October 2026)
- Bennett, M. R. et al., Evidence of humans in North America during the Last Glacial Maximum, Science (2021). https://doi.org/10.1126/science.abg7586 (checked 19 October 2026)
- Pigati, J. S. et al., Independent age estimates resolve the controversy of ancient human footprints at White Sands, Science (2023). https://doi.org/10.1126/science.adh5007 (checked 19 October 2026)
- Harmand, S. et al., 3.3-million-year-old stone tools from Lomekwi 3, West Turkana, Kenya, Nature (2015). https://doi.org/10.1038/nature14464 (checked 19 October 2026)
- Semaw, S. et al., 2.5-million-year-old stone tools from Gona, Ethiopia, Nature (1997). https://doi.org/10.1038/385333a0 (checked 19 October 2026)
- Lepre, C. J. et al., An earlier origin for the Acheulian, Nature (2011). https://doi.org/10.1038/nature10372 (checked 19 October 2026)
- Berna, F. et al., Microstratigraphic evidence of in situ fire in the Acheulean strata of Wonderwerk Cave, PNAS (2012). https://doi.org/10.1073/pnas.1117620109 (checked 19 October 2026)
- Oktaviana, A. A. et al., Narrative cave art in Indonesia by 51,200 years ago, Nature (2024). https://doi.org/10.1038/s41586-024-07541-7 (checked 19 October 2026)
- Aubert, M. et al., Pleistocene cave art from Sulawesi, Indonesia, Nature (2014). https://doi.org/10.1038/nature13422 (checked 19 October 2026)
- Hoffmann, D. L. et al., U-Th dating of carbonate crusts reveals Neandertal origin of Iberian cave art, Science (2018). https://doi.org/10.1126/science.aap7778 (checked 19 October 2026)
- White, T. D. et al., Ardipithecus ramidus and the paleobiology of early hominids, Science (2009). https://doi.org/10.1126/science.1175802 (checked 19 October 2026)
- Daver, G. et al., Postcranial evidence of late Miocene hominin bipedalism in Chad, Nature (2022). https://doi.org/10.1038/s41586-022-04901-z (checked 19 October 2026)
- Haile-Selassie, Y. et al., A 3.8-million-year-old hominin cranium from Woranso-Mille, Ethiopia, Nature (2019). https://doi.org/10.1038/s41586-019-1513-8 (checked 19 October 2026)
- Berger, L. R. et al., Homo naledi, a new species of the genus Homo from the Dinaledi Chamber, South Africa, eLife (2015). https://elifesciences.org/articles/09560 (checked 19 October 2026)
- Dirks, P. H. G. M. et al., The age of Homo naledi and associated sediments in the Rising Star Cave, South Africa, eLife (2017). https://elifesciences.org/articles/24231 (checked 19 October 2026)
- Hershkovitz, I. et al., The earliest modern humans outside Africa, Science (2018). https://doi.org/10.1126/science.aap8369 (checked 19 October 2026)
- Masao, F. T. et al., New footprints from Laetoli (Tanzania) provide evidence for marked body size variation in early hominins, eLife (2016). https://elifesciences.org/articles/19568 (checked 19 October 2026)
- Dean, M. C. and Smith, B. H., Growth and development of the Nariokotome youth, KNM-WT 15000, in The First Humans (2009). https://doi.org/10.1007/978-1-4020-9980-9_10 (checked 19 October 2026)
- Berger, L. R. and Clarke, R. J., Eagle involvement in accumulation of the Taung child fauna, Journal of Human Evolution (1995). https://doi.org/10.1006/jhev.1995.1068 (checked 19 October 2026)
- Chimpanzee Sequencing and Analysis Consortium, Initial sequence of the chimpanzee genome and comparison with the human genome, Nature (2005). https://doi.org/10.1038/nature04072 (checked 19 October 2026)
- Green, R. E. et al., A draft sequence of the Neandertal genome, Science (2010). https://doi.org/10.1126/science.1188021 (checked 19 October 2026)
- Natural Earth 1:110m land (public domain), base of the migration map. https://www.naturalearthdata.com/ (checked 19 October 2026)
ほかの展示
実物大の恐竜のあいだを歩く
幅 600 m の園内に、最初の恐竜からティラノサウルスまで、172 種の古生物が実物大で時代順に並んでいます。
マンモスの大きさをゾウや氷河期の動物と比較
ケナガマンモスから剣歯ネコまで、最終氷期の 65 種を実物大で並べた幅 600 m の園内を歩けます。50,000 年を動かす時間スライダーもあります。
翼竜の飛び方のしくみ、実物大の翼竜と白亜紀の空を飛ぶ
Quetzalcoatlus の翼開長は約10 m、Cessna 172 の11 m に近く、立つとキリンほどの高さです。白亜紀の崖を越える姿を見て、3つの時代の35種と飛べます。
CRISPR-Cas9ゲノム編集を動かして見るシミュレーター
ガイド RNA が読むのは DNA のわずか 20 文字。それだけで、ヒトゲノムの 30 億塩基対の中からたいてい 1 か所を選び出せます。
振り子時計のしくみ:長さが時を決める理由
振り子時計は長さ 99.4 cm の棒で秒を数えます。長さや温度、地球上の場所を変え、四つの脱進機を交換して、一日に生じる誤差を比較できます。
手動タイプライターのしくみ
パイカのタイプライターでは、文字も空白もピリオドも、1 打ごとにキャリッジを同じ 2.54 mm だけ左へ動かします。