FIG. 42Cómo funciona
CRISPR-Cas9 interactivo: simulador de edición genética
Un ARN guía lee solo 20 letras de ADN, y eso suele bastar para elegir un único punto entre los 3000 millones de pares de bases de un genoma humano.
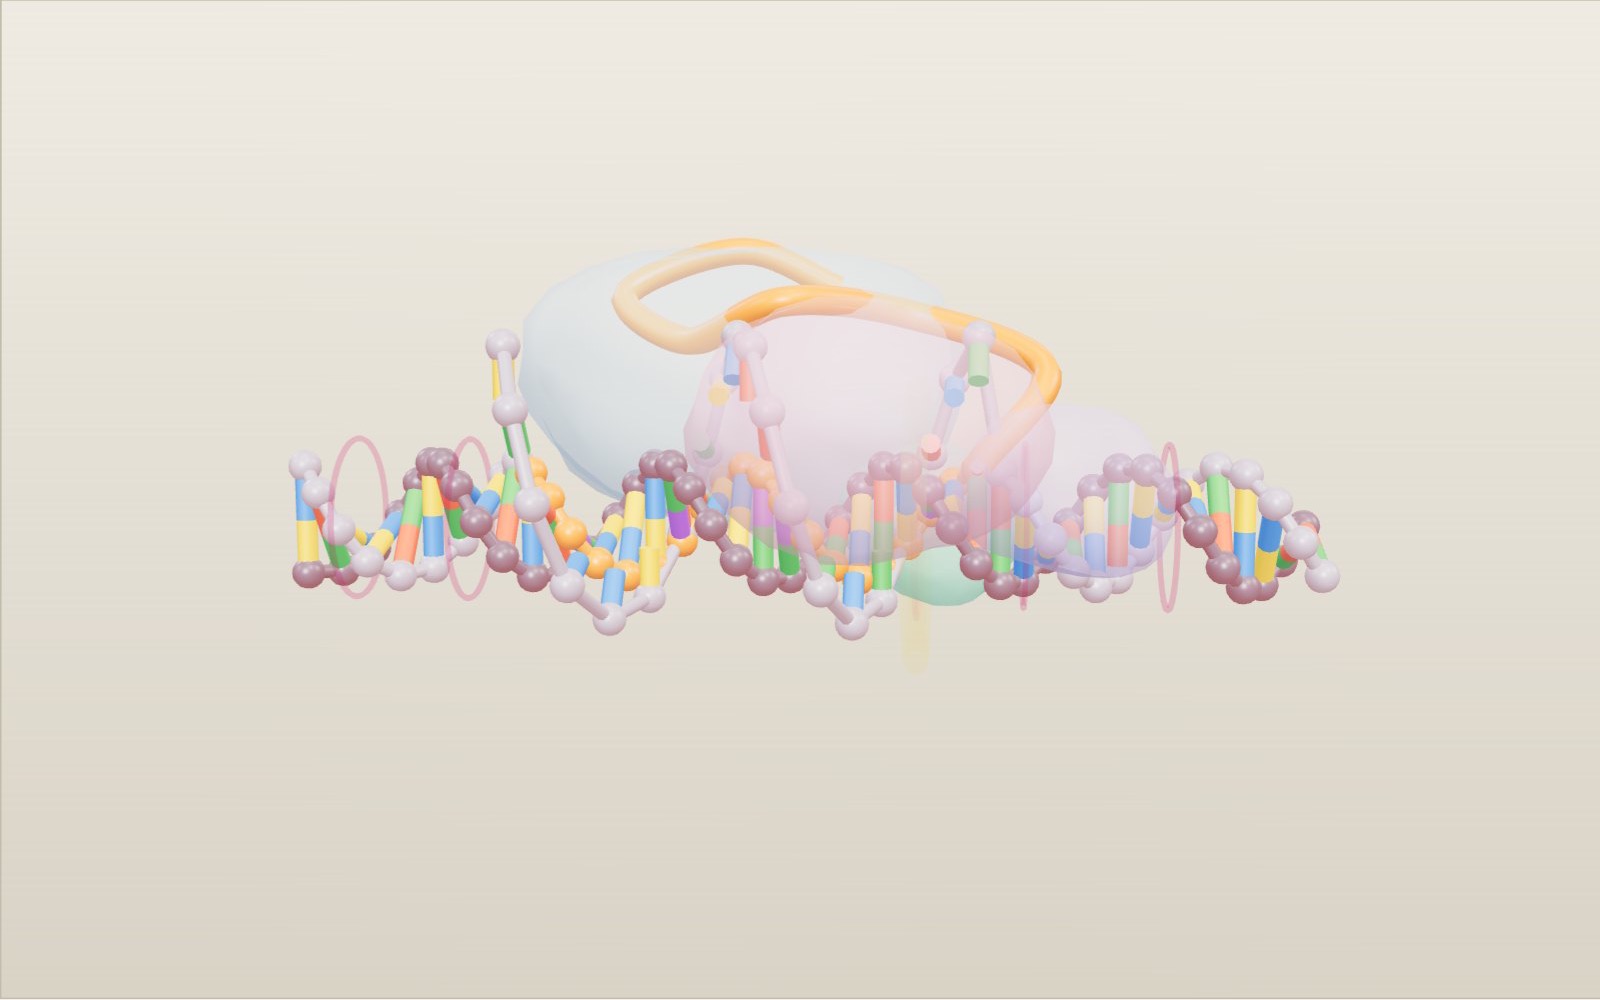
Este dispositivo no puede mostrar el modelo 3D. Abajo puedes leer los pasos de la guía como texto.
1 / 8 Un tramo de ADN a escalaSon 44 pares de bases de ADN, unos 15 nm de largo. Las barras negras dan la escala: la hélice mide 2 nm de ancho y da una vuelta cada 3,4 nm. La secuencia es un ejemplo inventado para el modelo.
Arrastra para girar. Usa la rueda o pellizca para ampliar.
¿Cómo encuentra una proteína un solo punto en todo un genoma?
Una copia del genoma humano contiene unos 3000 millones de pares de bases. Supón que quieres cambiar un único gen. Necesitas una herramienta que lea el ADN, reconozca un tramo corto y lo corte justo ahí, sin tocar ningún otro tramo. Las herramientas anteriores, las nucleasas de dedos de zinc y las TALEN, exigían diseñar una proteína nueva para cada diana, y diseñar proteínas es lento y difícil. CRISPR-Cas9 cambió eso. La proteína sigue siendo la misma y solo se reescribe una guía corta de ARN.
Esta exposición monta el sistema a escala molecular. Un trozo corto de ADN atraviesa el escenario y Cas9 llega sujetando su ARN guía. Puedes seguirla mientras encuentra un PAM, aparea la guía con 20 bases de ADN, corta las dos cadenas y deja que la célula repare el corte. Sobre el modelo hay un recuadro donde puedes escribir tu propia guía. Si las letras no coinciden, la guía deja de aparearse y no se corta nada. Las cifras proceden del Comité Nobel de Química, de OpenStax, del Protein Data Bank del RCSB y del Instituto Nacional de Investigación del Genoma Humano de Estados Unidos. Las fuentes aparecen al final.
El ADN a la escala del modelo
El ADN son dos cadenas enrolladas una sobre otra. Cada cadena es una sucesión de azúcares y fosfatos, y cada azúcar lleva una de cuatro bases: A, C, G o T. La A de una cadena se aparea con la T de la otra, y la C con la G, así que cada cadena puede leerse a partir de su pareja. En el modelo, las bases tienen estos colores: A verde, T rojo, G amarillo y C azul. La base U del ARN, que ocupa el lugar de la T en el ARN, es morada.
La forma habitual del ADN, el ADN B, tiene medidas fijas. La doble hélice mide 2 nm de ancho. Los pares de bases vecinos están a 0,34 nm, y la hélice da una vuelta completa cada 3,4 nm, es decir, cada 10 pares de bases. Las barras negras del extremo izquierdo del modelo muestran los 2 nm de ancho y una vuelta de 3,4 nm. El modelo tiene 44 pares de bases, así que mide 44 × 0,34 = 15 nm de largo.
Las dos cadenas van en sentidos opuestos. Los químicos llaman 5′ y 3′ a los extremos, y las secuencias se escriben de 5′ a 3′. En el modelo, la cadena gris va de 5′ a 3′ de izquierda a derecha y la oscura en sentido contrario. La cadena gris tiene las mismas letras que la guía (con T donde la guía tiene U), y la oscura es la que se aparea con la guía.
Una memoria bacteriana de los virus
CRISPR empezó como un enigma en los genomas bacterianos. En 1987, unos investigadores observaron un patrón raro en el ADN de Escherichia coli: cinco copias de una secuencia de 29 pares de bases, separadas por 32 pares de bases de una secuencia distinta cada vez. Aparecieron matrices parecidas en muchas bacterias y arqueas, y para ellas se acuñó el nombre CRISPR, siglas en inglés de repeticiones palindrómicas cortas agrupadas y regularmente interespaciadas. Junto a las matrices había un grupo de genes, llamados cas por estar asociados a CRISPR, que codificaban proteínas parecidas a enzimas que desenrollan y cortan ácidos nucleicos.
En 2005, tres grupos publicaron que los espaciadores situados entre las repeticiones coincidían con el ADN de virus y plásmidos. Las bacterias que llevaban un espaciador determinado rara vez se infectaban con un virus de secuencia coincidente. En 2007, un experimento con Streptococcus thermophilus mostró la relación de forma directa. Las bacterias que sobrevivían al ataque de un virus habían ganado espaciadores nuevos copiados de ese virus, y ahora lo resistían. Al quitar el espaciador, desaparecía la resistencia.
Así pues, la matriz CRISPR funciona como un registro de infecciones pasadas. La matriz se copia en un ARN largo, que se corta en ARN CRISPR cortos, uno por espaciador. Cada ARN corto se une a proteínas Cas y las conduce hasta el ADN de secuencia coincidente. El sistema de Streptococcus solo necesita una proteína para cortar, Cas9, junto con un segundo ARN pequeño, el tracrRNA, que el grupo de Emmanuelle Charpentier describió en 2011.
Cas9 y su ARN guía
La Cas9 de Streptococcus pyogenes es una proteína grande. La cadena de la estructura cristalina 4OO8 del Protein Data Bank tiene 1372 aminoácidos y pesa unos 159 kilodaltons. Esa estructura, resuelta con una resolución de 2,5 Å en 2014, mostró dos lóbulos. El lóbulo de reconocimiento (REC) sujeta el ARN guía y el par ARN-ADN. El lóbulo nucleasa contiene los dos dominios de corte, HNH y RuvC, y un dominio de interacción con el PAM cerca de su extremo.
En el modelo, la proteína se dibuja como cuatro masas blandas en esas posiciones. Las formas son inventadas y transparentes para que puedas seguir el ARN y el ADN del interior. Activa «Ver por dentro» en la pestaña «Controles» para hacerlas aún más tenues.
En las bacterias, Cas9 lleva dos ARN: el crRNA, con el espaciador, y el tracrRNA, que lo mantiene en su sitio. En 2012, Charpentier, Jennifer Doudna y sus colegas unieron los dos en un único ARN guía. La guía tiene dos partes. Las primeras 20 letras, el espaciador, eligen la diana. El resto se pliega en un andamio que encaja dentro de la proteína, dibujado como un tubo naranja en el modelo. Cambia las 20 letras y la misma proteína irá a otro sitio.
Primer paso: encontrar un PAM
Cas9 no compara cada tramo de ADN con su guía. Primero busca un motivo adyacente al protoespaciador, o PAM. Para la Cas9 de S. pyogenes es NGG en la cadena gris, justo después de la diana: una base cualquiera y luego dos G. Dos argininas del dominio de interacción con el PAM reconocen las GG mediante puentes de hidrógeno. Solo cuando la proteína ha encontrado un PAM dobla el ADN a su lado y empieza a separar las cadenas.
El PAM también resuelve una pregunta sobre las bacterias. Si el espaciador coincide con el ADN del virus, también coincide con su propia copia en la matriz CRISPR. La bacteria no corta su propio genoma porque los espaciadores de la matriz no están junto a un PAM, mientras que la secuencia coincidente del virus sí lo está.
En el modelo, el PAM es TGG. Desactiva «PAM (NGG)» en la pestaña «Controles» y pasa a ser TGA. Cas9 entonces sobrevuela el ADN y se aleja sin abrirlo, aunque la guía siga coincidiendo en las 20 bases.
Segundo paso: veinte letras, empezando por la semilla
Junto al PAM, el ADN se abre par de bases a par de bases y el ARN guía se aparea con la cadena oscura. La cadena gris queda apartada formando un bucle. Esta estructura, con el ARN apareado con una cadena de ADN y la otra desplazada, se llama bucle R. El apareamiento empieza por el extremo del PAM, y las 10 bases de la guía más cercanas al PAM, la semilla, son las que más importan. Un desapareamiento en la semilla suele detener el reconocimiento.
El recuadro sobre el modelo muestra la diana en la cadena gris, de 5′ a 3′, con el PAM al final. Las 10 posiciones de la semilla están sombreadas. Debajo está la guía. Escribe en el recuadro o usa los cuatro botones:
- «Coincide»: las 20 letras se aparean. El bucle R llega al extremo lejano y Cas9 corta.
- «Fallo en la semilla»: la posición 17 está cambiada. El bucle R abre 3 pares de bases y se detiene.
- «Fallo lejano»: la posición 3 está cambiada. El bucle R abre 17 pares de bases y luego vuelve a cerrarse.
- «Otro gen»: una guía escrita para otra secuencia. No se aparea nada.
Las letras que no se aparean aparecen en negro. En el modelo, cualquier desapareamiento detiene el apareamiento en esa letra, el ADN se cierra y Cas9 se suelta. La Cas9 real es menos estricta, como explican los apartados siguientes.
Tercer paso: dos dominios, dos cortes
Cuando la guía se ha apareado a lo largo de las 20 bases, el dominio HNH cambia de forma y gira hasta colocarse contra la cadena oscura. Cada dominio nucleasa corta una cadena. HNH corta la cadena apareada con la guía y RuvC corta la cadena gris desplazada. Los dos cortes caen 3 pares de bases antes del PAM, en la misma posición en ambas cadenas, así que los dos extremos suelen quedar romos y no escalonados.
En el modelo, el corte cae entre los pares de bases 27 y 28, contando desde la izquierda, y deja tres pares de bases de la diana del lado del PAM. Un anillo amarillo destella en el corte. Después Cas9 se retira y los dos extremos se separan.
Si se desactiva uno de los dos dominios, Cas9 corta solo una cadena. Esta nickasa se usa con dos guías dirigidas a cadenas opuestas y cercanas, lo que produce un corte solo donde coinciden las dos guías.
Qué hace la célula con un cromosoma roto
Cas9 solo produce el corte. La edición en sí la hacen los sistemas de reparación de la propia célula, que se ocupan de ADN roto continuamente. Hay dos vías principales.
La primera es la unión de extremos no homólogos, o NHEJ. La célula vuelve a pegar los dos extremos. Esto suele añadir o quitar unas pocas bases en la unión. Dentro de un gen, un cambio de una o dos bases desplaza el marco de lectura de todos los codones que vienen después, y a menudo el gen deja de producir su proteína. Usa el deslizador «Avance» o el paso 7 de la guía para ver cómo el modelo une los extremos con un par de bases de más, marcado con un anillo.
La segunda es la reparación dirigida por homología, o HDR. Si hay un trozo de ADN que coincide con los dos lados del corte, la célula puede usarlo como molde y copiarlo a través del hueco. Si aportan un molde con letras cambiadas en el centro, los investigadores pueden escribir en el genoma el cambio que elijan. Activa «Molde de reparación» y el molde verde aparece junto al corte; cuando los extremos se unen, tres pares de bases del corte toman las letras del molde.
Comprobar las cifras
¿Por qué bastan 20 letras? Hay 4 opciones en cada posición, así que existen 4^20 = 1 099 511 627 776 secuencias distintas de 20 letras, unos 1,1 × 10^12. Un genoma humano tiene unos 3 × 10^9 pares de bases, y una secuencia puede estar en cualquiera de las dos cadenas, así que hay unos 6 × 10^9 lugares donde buscar. Si el genoma fuera aleatorio, una secuencia concreta de 20 letras aparecería por azar unas 6 × 10^9 ÷ 1,1 × 10^12 ≈ 0,005 veces. En este modelo aleatorio es poco probable otra copia exacta de la diana; no es una garantía para un genoma real.
La semilla cuenta otra historia. Las diez letras de la semilla más las dos G del PAM fijan 12 letras, y 4^12 = 16 777 216. Una secuencia aleatoria contendría ese patrón unas 6 × 10^9 ÷ 1,7 × 10^7 ≈ 360 veces. Cas9 a veces puede cortar sitios así aunque el extremo lejano de la guía no coincida bien, y por eso las secuencias guía se comparan con todo el genoma antes de usarlas. Además, los genomas reales están llenos de secuencias repetidas, así que las cifras verdaderas son peores que la estimación aleatoria.
En el modelo, la diana mide 20 × 0,34 = 6,8 nm, dos vueltas completas de la hélice. El corte está a 3 pares de bases del PAM, aproximadamente 1 nm.
Probarlo en la pantalla
El modelo empieza con la búsqueda. Cas9 se desliza por un trozo corto de ADN inventado, se detiene en cada marca NGG y solo donde la guía coincide se abre la doble hélice y se corta. Las letras son inventadas para el dibujo: muestra la idea, no un método de laboratorio.
- Pulsa una marca NGG en la fila de letras del escenario. Cas9 va allí y, donde la guía no se aparea, se suelta y sigue.
- Arrastra el propio Cas9 a lo largo del ADN y suéltalo sobre una marca NGG.
- Elige una guía con una letra equivocada cerca del PAM, o apaga el PAM, y mira cómo Cas9 no corta.
- Pulsa las partes de la proteína para leer qué hacen los dominios HNH y RuvC, el lóbulo REC y el dominio que reconoce el PAM.
- Abre la historia de la bacteria para ver cómo guarda un trozo de ADN del virus y lo usa cuando el virus vuelve.
- Debajo de los controles hay retos, cosas ocultas, una comparación de tamaño con un pelo y una célula, y una historia de CRISPR desde 1987 hasta el primer medicamento aprobado.
Lo que el modelo deja fuera
La proteína son cuatro masas, no la superficie medida, y el dominio HNH simplemente se desliza de un sitio a otro. El ADN es una hélice recta y regular con exactamente 10 pares de bases por vuelta, mientras que el ADN real se dobla donde Cas9 lo sujeta junto al PAM. El bucle R se abre ordenadamente par de bases a par de bases; el proceso real también avanza por pasos, pero no a un ritmo uniforme. Cas9 se retira después de cortar para que veas los extremos, y el modelo no muestra cuánto tiempo permanece unida la proteína real.
La regla de los desapareamientos también es más simple que la real. La Cas9 real tolera algunos desapareamientos lejos del PAM y puede cortar esos sitios no deseados. La reparación muestra solo un ejemplo de cada vía: un par de bases de más para NHEJ y tres pares de bases cambiados para HDR. En las células, NHEJ da una mezcla de pequeñas inserciones y deleciones, no un resultado fijo. La secuencia del modelo es inventada y no pertenece a ningún gen real.
De un enigma bacteriano a una herramienta de laboratorio
Charpentier estudiaba Streptococcus pyogenes y descubrió el tracrRNA, publicado en marzo de 2011. Esa primavera conoció a Doudna, bioquímica de la Universidad de California en Berkeley, en un congreso en Puerto Rico, y decidieron trabajar juntas en Cas9. En tubos de ensayo, Cas9 con solo el crRNA no cortaba el ADN. Cuando añadieron el tracrRNA, el ADN se cortó. Después fusionaron los dos ARN en una sola guía y demostraron que, cambiando su secuencia, podían cortar el ADN en los sitios que eligieran. El artículo se publicó en 2012. A principios de 2013, otros grupos demostraron que el sistema edita genomas en células humanas y de ratón.
La Real Academia Sueca de Ciencias concedió el Premio Nobel de Química 2020 a Emmanuelle Charpentier y Jennifer A. Doudna «por el desarrollo de un método para la edición del genoma».
Dónde se usa
Según el Comité Nobel, CRISPR-Cas9 es hoy una herramienta habitual en la investigación básica, donde se usa para cambiar genes en células y animales de laboratorio y averiguar qué hacen. También se usa en la mejora de plantas; el resumen del comité pone el ejemplo de variedades de arroz editadas para absorber menos cadmio y arsénico del suelo. MedlinePlus, de la Biblioteca Nacional de Medicina de Estados Unidos, señala que la edición del genoma se estudia en investigaciones y ensayos clínicos para muchas enfermedades, y que editar óvulos, espermatozoides o embriones es ilegal actualmente en Estados Unidos y en muchos otros países.
En la Unión Europea se ha autorizado un medicamento hecho con CRISPR-Cas9. La Agencia Europea de Medicamentos concedió a Casgevy (exagamglogén autotemcel) una autorización de comercialización condicional el 9 de febrero de 2024 para personas de 12 años o más con beta talasemia dependiente de transfusiones o enfermedad de células falciformes grave. Se fabrica con las propias células madre sanguíneas del paciente, editadas fuera del cuerpo para que produzcan más hemoglobina fetal. Una autorización condicional significa que la empresa debe aportar más pruebas después de la aprobación. Esta exposición no afirma nada sobre la eficacia o la seguridad de ningún tratamiento; la página de la agencia tiene los detalles.
Por qué una dirección única no impide los cortes fuera del objetivo
El cálculo aleatorio anterior cuenta coincidencias exactas, no todo lo que la enzima acepta. Si permitimos una letra incorrecta en una guía de 20 bases, hay 20 posiciones con 3 alternativas cada una: 20 × 3 = 60 secuencias vecinas, o 61 contando la original. En un genoma ilustrativo de 3 200 000 000 pares de bases, ambas hebras ofrecen unos 6 400 000 000 puntos de inicio. Si las bases fueran independientes e igualmente frecuentes, las coincidencias accidentales exactas esperadas serían 6 400 000 000 ÷ 4^20 ≈ 0,0058. Al incluir los 60 vecinos, el resultado ronda 0,36 antes de exigir un PAM.
En NGG, N es cualquier base y cada G tiene probabilidad 1/4 en este genoma ficticio. Exigir NGG multiplica la expectativa por 1/16: unas 0,022 coincidencias para las 61 secuencias. Son cantidades esperadas de patrones accidentales, no porcentajes de riesgo clínico ni tasas medidas de corte. No incluyen el objetivo intencionado, elegido porque existe, ni implican que todos los errores admitidos permitan cortar. Repeticiones, frecuencias desiguales, empaquetamiento del ADN, variantes del paciente y posición de los errores invalidan estas hipótesis. Un gen duplicado puede aportar un objetivo casi idéntico aunque el cálculo aleatorio prediga pocas coincidencias.
Por eso el diseño empieza buscando en el genoma pertinente y continúa con mediciones experimentales. Un posible sitio fuera del objetivo es un candidato que investigar, no una lesión demostrada; no detectar cortes también depende de la sensibilidad del ensayo. En 2016 Kleinstiver y sus colegas presentaron SpCas9-HF1, con contactos inespecíficos con el ADN debilitados. Conservó buena actividad con muchas guías ensayadas y redujo la actividad no deseada detectable. «No detectable» describe esos ensayos, no todas las células y guías. La alta fidelidad puede reducir la actividad deseada en ciertos objetivos: hay que medir especificidad y eficiencia juntas. La regla del modelo que detiene cualquier error es didáctica, no una simulación de esa proteína modificada.
Cambiar letras sin romper las dos hebras
El control de plantilla representa HDR tras una rotura, no toda edición precisa. En 2016 Komor y sus colegas combinaron un componente Cas9 dirigido al ADN con una citidina desaminasa. Esta transforma citidina en uridina en ADN expuesto; el procesamiento posterior puede producir C a T, o G a A visto desde la hebra opuesta. Diseños posteriores usan una nickasa que corta una hebra para favorecer el resultado. Evitar una rotura deliberada de doble hebra no significa evitar toda mella ni todo producto no deseado.
El editor actúa en una ventana de edición, no sobre cualquier letra junto a la guía. Otras bases susceptibles dentro de esa ventana pueden cambiar como ediciones acompañantes. El PAM sigue limitando dónde puede unirse la maquinaria. La entrega a las células adecuadas, los cambios en otros lugares y la proporción de células correctamente editadas requieren experimentos. Sirve si su conversión química coincide con el cambio necesario; no corrige cualquier error del genoma.
La edición de calidad, o prime editing, descrita por Anzalone y sus colegas en 2019, une una nickasa Cas9 a una transcriptasa inversa. El ARN guía extendido, pegRNA, indica el objetivo y contiene la plantilla del cambio. La enzima copia esa información del ARN al ADN y la célula resuelve el intermediario. Permite sustituciones y pequeñas inserciones o deleciones sin ADN donante separado ni rotura deliberada de doble hebra. Sigue dependiendo de reparación celular; eficiencia y productos indeseados varían con el objetivo y el diseño. Aquí no se animan editores de bases ni prime editing. El objeto verde de la plantilla es ADN para HDR, no pegRNA; el corte de ambas hebras representa Cas9 convencional.
Qué cambia Casgevy en las células del paciente
Casgevy ilustra la edición fuera del cuerpo. La MHRA británica anunció su autorización el 16 de noviembre de 2023; el anuncio fecha la decisión el 15 de noviembre. El 8 de diciembre de 2023, la FDA estadounidense aprobó Casgevy para pacientes de 12 años o más con enfermedad falciforme y crisis vasooclusivas recurrentes. Las indicaciones y condiciones de acceso deben consultarse en cada regulador, no suponerse iguales entre países. Son decisiones iniciales, no una lista completa de aprobaciones posteriores.
La hemoglobina adulta anormal puede endurecer los glóbulos rojos en forma de hoz y obstruir el flujo sanguíneo. Casgevy no sustituye directamente la mutación falciforme en todas las células. Se extraen células madre hematopoyéticas del paciente, se editan con CRISPR-Cas9 fuera del cuerpo y se reinfunden. La edición modifica la regulación de la hemoglobina fetal para que los descendientes eritroides produzcan más. Esa hemoglobina puede reducir la deformación aunque persista la mutación heredada. Modificar un regulador puede compensar la enfermedad sin corregir su letra original.
La infusión es solo una parte de un tratamiento exigente. La FDA explica que primero se administra quimioterapia a dosis altas para preparar la médula ósea. Extracción, fabricación, acondicionamiento, injerto y seguimiento influyen en el resultado; la guía por sí sola no es el tratamiento. Usar células propias no elimina los riesgos de la quimioterapia ni la vigilancia prolongada de las células editadas. Es tratamiento somático: estas células no forman óvulos ni espermatozoides y no se pretende transmitir la edición a los hijos. El modelo usa una secuencia inventada; no representa el objetivo de Casgevy, su fabricación clínica, la elegibilidad ni la probabilidad individual de beneficio.
Lo que la pantalla no decide sobre la edición heredable
Editar una célula madre sanguínea no plantea las mismas cuestiones que editar un embrión. Una edición embrionaria podría alcanzar muchos tejidos, incluidas las células que después producen gametos, y transmitirse a descendientes incapaces de consentir. Si solo se editan algunas células tempranas, puede haber mosaicismo, con cambios distintos entre poblaciones celulares. Una muestra aparentemente limpia no demuestra una edición uniforme en todos los tejidos. Tampoco un cambio bien situado demuestra justificación médica o acceso equitativo.
Las recomendaciones de la OMS de 2021 distinguen edición somática, germinal y heredable. Piden supervisión, registros, cooperación internacional y vías para denunciar investigación ilegal, no registrada, poco ética o insegura. Son un marco de gobernanza, no un permiso mundial ni una ley que sustituya automáticamente las normas nacionales. El Nobel de Química de 2020 reconoció el desarrollo del método por Charpentier y Doudna, no todas sus aplicaciones posibles.
En la pantalla, empieza con «Coincide» y PAM (NGG) activado; lleva el avance hasta el corte y la reparación. Desactiva después PAM sin cambiar la guía: una dirección coincidente no basta. Restáuralo y compara «Fallo en la semilla» con «Fallo lejano». Ambos detienen el corte aquí, pero en distintas posiciones; no demuestra riesgos biológicos iguales. Compara la reparación con y sin plantilla: son ejemplos de rutas, no frecuencias celulares. Anota PAM presente o ausente, dónde se detiene el apareamiento y qué producto aparece. Nada de eso mide seguridad terapéutica, viabilidad embrionaria ni consentimiento.
Preguntas
¿Qué significa CRISPR?
Son las siglas en inglés de repeticiones palindrómicas cortas agrupadas y regularmente interespaciadas. El nombre describe las matrices de los genomas bacterianos en las que repeticiones cortas se alternan con espaciadores. La herramienta de edición lleva su nombre, y Cas9 es la proteína asociada a CRISPR número 9.
¿Por qué necesita Cas9 un PAM?
Permite a la bacteria distinguir el ADN del virus de su propia matriz CRISPR. La matriz contiene las mismas secuencias espaciadoras, pero sin un PAM al lado, así que Cas9 la deja en paz. Para la herramienta, significa que una diana tiene que estar junto a NGG.
¿Qué pasa si la guía tiene una letra equivocada?
Depende de dónde esté la letra. Un desapareamiento en las 10 bases de la semilla, junto al PAM, suele detener el reconocimiento. Los desapareamientos más lejanos a veces se toleran, y esa es una de las causas de cortes en sitios no deseados. El modelo aplica una regla más simple: cualquier desapareamiento detiene el apareamiento.
¿Cambia Cas9 por sí misma la secuencia del ADN?
No. Cas9 solo corta las dos cadenas. El cambio viene de la reparación de la célula: la unión de extremos tiende a añadir o quitar unas pocas bases, y la reparación con molde copia una secuencia que aportan los investigadores.
¿Por qué los dominios HNH y RuvC cortan cadenas distintas?
Están a lados distintos del ADN abierto. HNH mira hacia la cadena apareada con la guía y RuvC hacia la cadena desplazada. Los dos cortan a 3 pares de bases del PAM, así que el corte atraviesa limpiamente las dos cadenas.
¿Qué tamaño tiene Cas9 comparada con el ADN?
La cadena de la estructura 4OO8 del PDB tiene 1372 aminoácidos, unos 159 kilodaltons. Sujeta el ARN guía y el par ARN-ADN de 20 pares de bases en un surco entre sus dos lóbulos. Ese par equivale a dos vueltas de hélice, unos 6,8 nm de largo, mientras que el ADN en sí mide 2 nm de ancho.
¿Quién descubrió CRISPR?
Contribuyeron muchos grupos. Las repeticiones se describieron por primera vez en 1987, su relación con los virus en 2005 y su papel en la inmunidad en 2007. Charpentier y Doudna demostraron en 2012 que Cas9 puede programarse con un único ARN guía para cortar el ADN en un sitio elegido, y compartieron el Premio Nobel de Química 2020.
¿Cas9 de alta fidelidad garantiza ausencia de ediciones fuera del objetivo?
No. La reducción medida depende de la guía, el tipo celular y el límite de detección. SpCas9-HF1 requiere pruebas con el objetivo y la entrega previstos.
¿La plantilla verde es una guía de prime editing?
No. Es ADN donante para HDR tras la rotura de ambas hebras. El pegRNA es ARN que contiene la dirección y la información que una transcriptasa inversa utiliza para escribir el cambio.
¿Casgevy transmite la edición a los hijos del paciente?
Edita células madre hematopoyéticas, no óvulos ni espermatozoides. Es tratamiento somático para aumentar hemoglobina fetal, no una corrección heredable de la mutación falciforme.
Términos
- Matriz CRISPR: un tramo de un genoma bacteriano en el que repeticiones cortas se alternan con espaciadores tomados de virus y plásmidos.
- Cas9: la proteína asociada a CRISPR que corta el ADN en los sistemas de tipo II, como el de Streptococcus pyogenes.
- ARN guía: un único ARN que contiene un espaciador de 20 letras y un andamio; une el crRNA y el tracrRNA del sistema bacteriano.
- Protoespaciador: los 20 pares de bases del ADN diana que coinciden con el espaciador.
- PAM: motivo adyacente al protoespaciador, una secuencia corta junto a la diana (NGG para esta Cas9) que Cas9 debe encontrar antes de abrir el ADN.
- Semilla: las 10 bases de la guía más cercanas al PAM, donde un desapareamiento detiene con más facilidad el reconocimiento.
- Bucle R: la estructura en la que el ARN se aparea con una cadena de ADN y la otra cadena queda apartada.
- NHEJ: unión de extremos no homólogos, una reparación que une directamente los extremos rotos, a menudo con pequeñas inserciones o deleciones.
- HDR: reparación dirigida por homología, una reparación que copia un molde de ADN coincidente a través del corte.
Fuentes
- Nobel Committee for Chemistry, Scientific Background on the Nobel Prize in Chemistry 2020: A tool for genome editing (repeticiones en 1987, espaciadores en 2005 y 2007, PAM, semilla, HNH y RuvC, corte a 3 bp del PAM, NHEJ y HDR). https://www.nobelprize.org/uploads/2020/10/advanced-chemistryprize2020.pdf (consultado el 16 de octubre de 2026)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, summary. https://www.nobelprize.org/prizes/chemistry/2020/summary/ (consultado el 16 de octubre de 2026)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, press release. https://www.nobelprize.org/prizes/chemistry/2020/press-release/ (consultado el 16 de octubre de 2026)
- NobelPrize.org, Popular science background: Genetic scissors, a tool for rewriting the code of life (encuentro de 2011, tracrRNA, usos en investigación y mejora de plantas). https://www.nobelprize.org/prizes/chemistry/2020/popular-information/ (consultado el 16 de octubre de 2026)
- OpenStax, Biology 2e, 14.2 DNA Structure and Sequencing (2 nm de ancho, 0,34 nm por par de bases, 3,4 nm por vuelta). https://openstax.org/books/biology-2e/pages/14-2-dna-structure-and-sequencing (consultado el 16 de octubre de 2026)
- National Human Genome Research Institute, Talking Glossary: Base Pair (unos 3000 millones de pares de bases en el genoma humano). https://www.genome.gov/genetics-glossary/Base-Pair (consultado el 16 de octubre de 2026)
- National Human Genome Research Institute, Talking Glossary: Double Helix. https://www.genome.gov/genetics-glossary/Double-Helix (consultado el 16 de octubre de 2026)
- National Human Genome Research Institute, Talking Glossary: CRISPR. https://www.genome.gov/genetics-glossary/CRISPR (consultado el 16 de octubre de 2026)
- RCSB Protein Data Bank, entry 4OO8: Crystal structure of Streptococcus pyogenes Cas9 in complex with guide RNA and target DNA (Nishimasu et al., Cell, 2014). https://www.rcsb.org/structure/4OO8 (consultado el 16 de octubre de 2026)
- RCSB PDB-101, Molecule of the Month: Cascade and CRISPR. https://pdb101.rcsb.org/motm/181 (consultado el 16 de octubre de 2026)
- MedlinePlus, US National Library of Medicine, What are genome editing and CRISPR-Cas9? https://medlineplus.gov/genetics/understanding/genomicresearch/genomeediting/ (consultado el 16 de octubre de 2026)
- European Medicines Agency, Casgevy: EPAR (autorización de comercialización condicional, 9 de febrero de 2024). https://www.ema.europa.eu/en/medicines/human/EPAR/casgevy (consultado el 16 de octubre de 2026)
- FDA: aprobación inicial de Casgevy, 8 de diciembre de 2023. https://www.fda.gov/news-events/press-announcements/fda-approves-first-gene-therapies-treat-patients-sickle-cell-disease (2026-10-23)
- MHRA: anuncio de autorización de Casgevy, 16 de noviembre de 2023. https://www.gov.uk/government/news/mhra-authorises-world-first-gene-therapy-that-aims-to-cure-sickle-cell-disease-and-transfusion-dependent-thalassemia (2026-10-23)
- OMS: recomendaciones sobre edición del genoma humano, 2021. https://www.who.int/news/item/12-07-2021-who-issues-new-recommendations-on-human-genome-editing-for-the-advancement-of-public-health (2026-10-23)
- Komor y colaboradores: edición de bases, 2016. https://www.nature.com/articles/nature17946 (2026-10-23)
- Anzalone y colaboradores: prime editing, 2019. https://www.nature.com/articles/s41586-019-1711-4 (2026-10-23)
- Kleinstiver y colaboradores: SpCas9-HF1, 2016. https://www.nature.com/articles/nature16526 (2026-10-23)
Itinerario 3 de 3
Del latido al ADNMás exposiciones
Paseo por dentro de una célula: animal, vegetal y bacteria
Agrandada un millón de veces, una mitocondria tiene más o menos el tamaño de un sofá, una E. coli entera mide 2 m y la cinesina que remolca una vesícula a tu lado camina a 0,8 metros por segundo.
Latido del corazón: modelo interactivo paso a paso
Tu corazón expulsa unos 70 mL de sangre en cada latido y, al ritmo de reposo, lo hace unas 108 000 veces al día.
Pasea entre dinosaurios de tamaño real
Un parque de 600 m con 172 animales prehistóricos a su tamaño real, de los primeros dinosaurios a T. rex, ordenados por época.
Animales de la edad de hielo en la vida real y a escala
Un parque de 600 m con 65 animales de la última edad de hielo a tamaño real, desde mamuts lanudos hasta felinos dientes de sable, y un deslizador que recorre 50 000 años.
Por qué vemos ilusiones ópticas: sombra, sala de Ames, tamaño y movimiento
La casilla A parece oscura y la B clara, pero tu pantalla le manda a tu ojo el mismo gris desde las dos.
Evolución humana: sus etapas y especies a tamaño real
Lucy medía unos 1,1 m. Recorre 7 millones de años de parientes humanos a tamaño real, con tu figura a su lado.