FIG. 42Como funciona
CRISPR-Cas9: simulador interativo de edição genética
Um RNA guia lê só 20 letras de DNA, e isso costuma bastar para escolher um único ponto entre os 3 bilhões de pares de bases de um genoma humano.
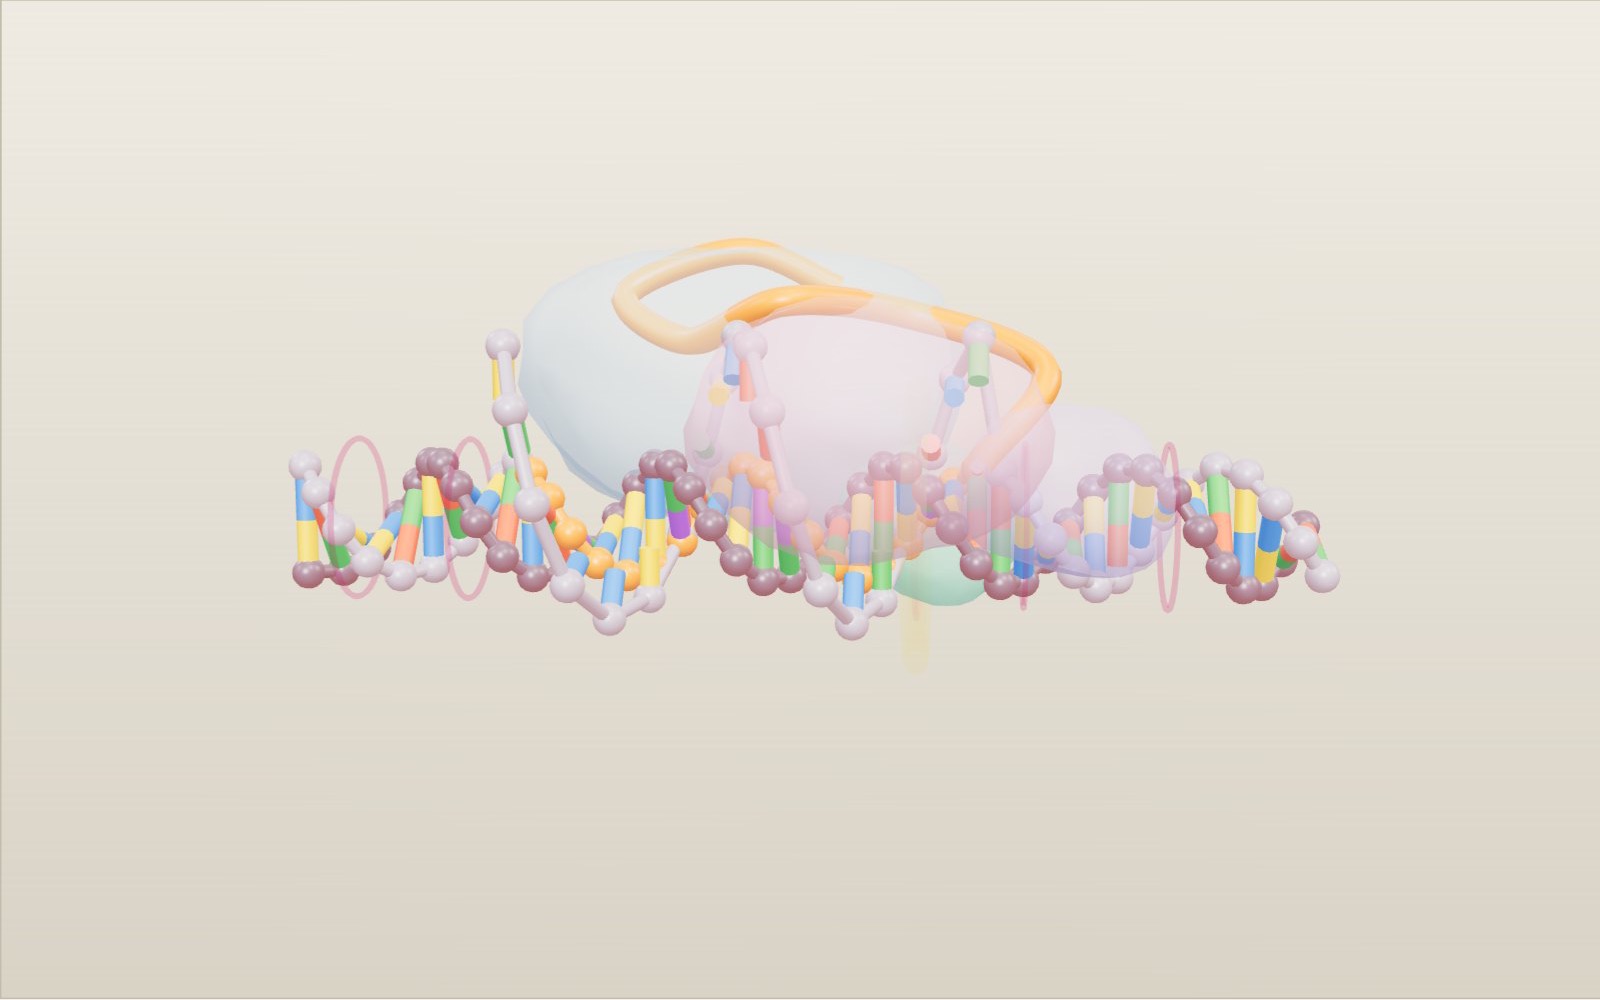
Este dispositivo não consegue mostrar o modelo 3D. Abaixo, você pode ler as etapas do guia em texto.
1 / 8 Um trecho de DNA em escalaSão 44 pares de bases de DNA, cerca de 15 nm de comprimento. As barras pretas dão a escala: a hélice tem 2 nm de largura e dá uma volta a cada 3,4 nm. A sequência é um exemplo inventado para o modelo.
Arraste para girar. Use a rolagem ou o gesto de pinça para ampliar.
Como uma proteína encontra um único ponto em um genoma inteiro?
Uma cópia do genoma humano tem cerca de 3 bilhões de pares de bases. Suponha que você queira mudar um único gene. É preciso uma ferramenta que leia o DNA, reconheça um trecho curto e corte exatamente ali, sem mexer em nenhum outro trecho. As ferramentas anteriores, as nucleases de dedo de zinco e as TALENs, exigiam projetar uma proteína nova para cada alvo, e projetar proteínas é lento e difícil. O CRISPR-Cas9 mudou isso. A proteína continua a mesma, e só uma guia curta de RNA é reescrita.
Esta exposição monta o sistema em escala molecular. Um pedaço curto de DNA atravessa o palco, e a Cas9 chega segurando seu RNA guia. Você pode acompanhá-la enquanto ela encontra um PAM, pareia a guia com 20 bases de DNA, corta as duas fitas e deixa a célula reparar a quebra. Acima do modelo há uma caixa onde você pode digitar sua própria guia. Se as letras não combinam, a guia para de parear e nada é cortado. Os números vêm do Comitê Nobel de Química, da OpenStax, do Protein Data Bank do RCSB e do Instituto Nacional de Pesquisa do Genoma Humano dos Estados Unidos. As fontes estão listadas no fim.
O DNA na escala do modelo
O DNA são duas fitas enroladas uma na outra. Cada fita é uma cadeia de açúcares e fosfatos, e cada açúcar carrega uma de quatro bases: A, C, G ou T. O A de uma fita pareia com o T da outra, e o C pareia com o G, então cada fita pode ser lida a partir da sua parceira. No modelo, as bases têm estas cores: A verde, T vermelho, G amarelo e C azul. A base U do RNA, que ocupa o lugar do T no RNA, é roxa.
A forma comum do DNA, o DNA B, tem medidas fixas. A dupla hélice tem 2 nm de largura. Pares de bases vizinhos ficam a 0,34 nm um do outro, e a hélice dá uma volta completa a cada 3,4 nm, ou seja, a cada 10 pares de bases. As barras pretas na ponta esquerda do modelo mostram os 2 nm de largura e uma volta de 3,4 nm. O modelo tem 44 pares de bases, então mede 44 × 0,34 = 15 nm de comprimento.
As duas fitas correm em sentidos opostos. Os químicos chamam as pontas de 5′ e 3′, e as sequências são escritas de 5′ para 3′. No modelo, a fita cinza vai de 5′ para 3′ da esquerda para a direita, e a fita escura vai no sentido contrário. A fita cinza tem as mesmas letras que a guia (com T onde a guia tem U), e a escura é a que pareia com a guia.
Uma memória bacteriana dos vírus
O CRISPR começou como um enigma nos genomas de bactérias. Em 1987, pesquisadores notaram um padrão estranho no DNA de Escherichia coli: cinco cópias de uma sequência de 29 pares de bases, separadas por 32 pares de bases de uma sequência diferente a cada vez. Arranjos parecidos apareceram em muitas bactérias e arqueias, e para eles foi criado o nome CRISPR, sigla em inglês para repetições palindrômicas curtas agrupadas e regularmente interespaçadas. Ao lado dos arranjos havia um grupo de genes, chamados cas por serem associados ao CRISPR, que codificavam proteínas parecidas com enzimas que desenrolam e cortam ácidos nucleicos.
Em 2005, três grupos relataram que os espaçadores entre as repetições combinavam com o DNA de vírus e plasmídeos. Bactérias que tinham um certo espaçador raramente eram infectadas por um vírus com a sequência correspondente. Em 2007, um experimento com Streptococcus thermophilus mostrou a ligação diretamente. Bactérias que sobreviveram ao ataque de um vírus tinham ganhado espaçadores novos copiados desse vírus e passavam a resistir a ele. Quando o espaçador era removido, a resistência desaparecia.
Assim, o arranjo CRISPR funciona como um registro de infecções passadas. O arranjo é copiado em um RNA longo, que é cortado em RNAs CRISPR curtos, um por espaçador. Cada RNA curto se junta a proteínas Cas e as leva até um DNA com a sequência correspondente. O sistema do Streptococcus precisa de uma só proteína para cortar, a Cas9, junto com um segundo RNA pequeno, o tracrRNA, que o grupo de Emmanuelle Charpentier descreveu em 2011.
A Cas9 e seu RNA guia
A Cas9 de Streptococcus pyogenes é uma proteína grande. A cadeia da estrutura cristalina 4OO8 do Protein Data Bank tem 1372 aminoácidos e pesa cerca de 159 quilodaltons. Essa estrutura, resolvida com resolução de 2,5 Å em 2014, mostrou dois lobos. O lobo de reconhecimento (REC) segura o RNA guia e o par RNA-DNA. O lobo nuclease contém os dois domínios de corte, HNH e RuvC, e um domínio de interação com o PAM perto da sua extremidade.
No modelo, a proteína é desenhada como quatro massas macias nessas posições. As formas são inventadas e transparentes, para você acompanhar o RNA e o DNA lá dentro. Ative "Ver por dentro" na aba "Controles" para deixá-las ainda mais claras.
Nas bactérias, a Cas9 carrega dois RNAs: o crRNA, com o espaçador, e o tracrRNA, que o mantém no lugar. Em 2012, Charpentier, Jennifer Doudna e colegas juntaram os dois em um único RNA guia. A guia tem duas partes. As primeiras 20 letras, o espaçador, escolhem o alvo. O resto se dobra em um arcabouço que fica dentro da proteína, desenhado como um tubo laranja no modelo. Mude as 20 letras e a mesma proteína vai para outro lugar.
Primeiro passo: encontrar um PAM
A Cas9 não compara cada trecho de DNA com sua guia. Primeiro ela procura um motivo adjacente ao protoespaçador, ou PAM. Para a Cas9 de S. pyogenes, ele é NGG na fita cinza, logo depois do alvo: uma base qualquer e depois dois G. Duas argininas do domínio de interação com o PAM reconhecem o GG por ligações de hidrogênio. Só quando a proteína encontra um PAM ela dobra o DNA ao lado e começa a separar as fitas.
O PAM também responde a uma pergunta sobre as bactérias. Se o espaçador combina com o DNA do vírus, ele também combina com a sua própria cópia no arranjo CRISPR. A bactéria não corta o próprio genoma porque os espaçadores do arranjo não ficam ao lado de um PAM, enquanto a sequência correspondente no vírus fica.
No modelo, o PAM é TGG. Desligue "PAM (NGG)" na aba "Controles" e ele vira TGA. A Cas9 então paira sobre o DNA e se afasta sem abri-lo, mesmo que a guia ainda combine com as 20 bases.
Segundo passo: vinte letras, começando pela semente
Ao lado do PAM, o DNA se abre um par de bases por vez e o RNA guia pareia com a fita escura. A fita cinza é empurrada para o lado, formando uma alça. Essa estrutura, com o RNA pareado com uma fita de DNA e a outra fita deslocada, se chama alça R. O pareamento começa pela ponta do PAM, e as 10 bases da guia mais próximas do PAM, a semente, são as que mais importam. Um erro de pareamento na semente costuma interromper o reconhecimento.
A caixa acima do modelo mostra o alvo na fita cinza, de 5′ para 3′, com o PAM no fim. As 10 posições da semente estão destacadas. Embaixo fica a guia. Digite na caixa ou use os quatro botões:
- "Combina": as 20 letras pareiam. A alça R chega à ponta mais distante e a Cas9 corta.
- "Erro na semente": a posição 17 foi trocada. A alça R abre 3 pares de bases e para.
- "Erro distante": a posição 3 foi trocada. A alça R abre 17 pares de bases e depois se fecha de novo.
- "Outro gene": uma guia escrita para outra sequência. Nada pareia.
As letras que não pareiam aparecem em preto. No modelo, qualquer erro de pareamento interrompe o pareamento naquela letra, o DNA se fecha e a Cas9 se solta. A Cas9 real é menos rigorosa, como explicam as seções seguintes.
Terceiro passo: dois domínios, dois cortes
Quando a guia pareou ao longo das 20 bases, o domínio HNH muda de forma e gira até encostar na fita escura. Cada domínio nuclease corta uma fita. O HNH corta a fita pareada com a guia, e o RuvC corta a fita cinza deslocada. Os dois cortes caem 3 pares de bases antes do PAM, na mesma posição nas duas fitas, então as duas pontas costumam ficar cegas, e não desencontradas.
No modelo, o corte cai entre os pares de bases 27 e 28, contando da esquerda, e deixa três pares de bases do alvo do lado do PAM. Um anel amarelo pisca no corte. Depois a Cas9 se afasta e as duas pontas se separam.
Se um dos dois domínios for desativado, a Cas9 corta só uma fita. Essa nickase é usada com duas guias que miram fitas opostas bem próximas, o que produz uma quebra só onde as duas guias combinam.
O que a célula faz com um cromossomo quebrado
A Cas9 só faz a quebra. A edição em si é feita pelos sistemas de reparo da própria célula, que lidam com DNA quebrado o tempo todo. Há dois caminhos principais.
O primeiro é a junção de extremidades não homólogas, ou NHEJ. A célula cola as duas pontas de novo. Isso costuma acrescentar ou perder algumas bases na emenda. Dentro de um gene, uma mudança de uma ou duas bases desloca a fase de leitura de todos os códons seguintes, e muitas vezes o gene deixa de produzir sua proteína. Use o controle "Andamento" ou o passo 7 do guia para ver o modelo juntar as pontas com um par de bases a mais, marcado por um anel.
O segundo é o reparo direcionado por homologia, ou HDR. Se houver um pedaço de DNA que combine com os dois lados da quebra, a célula pode usá-lo como molde e copiá-lo através da lacuna. Fornecendo um molde com letras alteradas no meio, os pesquisadores podem escrever uma mudança escolhida no genoma. Ligue "Molde de reparo" e o molde verde aparece ao lado da quebra; quando as pontas se juntam, três pares de bases no corte assumem as letras do molde.
Conferindo os números
Por que 20 letras bastam? Há 4 opções em cada posição, então existem 4^20 = 1.099.511.627.776 sequências diferentes de 20 letras, cerca de 1,1 × 10^12. Um genoma humano tem cerca de 3 × 10^9 pares de bases, e uma sequência pode estar em qualquer uma das duas fitas, então há cerca de 6 × 10^9 lugares para procurar. Se o genoma fosse aleatório, uma sequência específica de 20 letras apareceria por acaso cerca de 6 × 10^9 ÷ 1,1 × 10^12 ≈ 0,005 vez. Nesse modelo aleatório, outra cópia exata do alvo é improvável; isso não é garantia para um genoma real.
A semente conta outra história. As dez letras da semente mais os dois G do PAM fixam 12 letras, e 4^12 = 16.777.216. Uma sequência aleatória teria esse padrão cerca de 6 × 10^9 ÷ 1,7 × 10^7 ≈ 360 vezes. A Cas9 às vezes consegue cortar locais assim mesmo quando a ponta distante da guia não combina bem, e é por isso que as sequências guia são comparadas com o genoma inteiro antes do uso. Além disso, genomas reais estão cheios de sequências repetidas, então os números verdadeiros são piores que a estimativa aleatória.
No modelo, o alvo tem 20 × 0,34 = 6,8 nm de comprimento, duas voltas completas da hélice. O corte fica a 3 pares de bases do PAM, cerca de 1 nm.
Experimentar na tela
O modelo começa pela busca. A Cas9 desliza por um pedaço curto de DNA inventado, para em cada marca NGG e só onde o guia combina a dupla hélice se abre e é cortada. As letras são inventadas para a imagem: ela mostra a ideia, não um método de laboratório.
- Toque numa marca NGG na fileira de letras do palco. A Cas9 vai até lá e, onde o guia não se emparelha, solta e segue adiante.
- Arraste a própria Cas9 ao longo do DNA e solte-a sobre uma marca NGG.
- Escolha um guia com uma letra errada perto do PAM, ou desligue o PAM, e veja a Cas9 não cortar.
- Toque nas partes da proteína para ler o que fazem os domínios HNH e RuvC, o lobo REC e o domínio que reconhece o PAM.
- Abra a história da bactéria para ver como ela guarda um pedaço do DNA do vírus e o usa quando o vírus volta.
- Abaixo dos controles há desafios, coisas escondidas, uma comparação de tamanho com um fio de cabelo e uma célula, e uma história do CRISPR de 1987 até o primeiro medicamento aprovado.
O que o modelo deixa de fora
A proteína são quatro massas, não a superfície medida, e o domínio HNH simplesmente desliza de um ponto a outro. O DNA é uma hélice reta e regular com exatamente 10 pares de bases por volta, enquanto o DNA real se dobra onde a Cas9 o segura ao lado do PAM. A alça R se abre com ordem, um par de bases por vez; o processo real também avança em etapas, mas não em ritmo constante. A Cas9 se afasta depois de cortar para você ver as pontas, e o modelo não mostra quanto tempo a proteína real continua ligada.
A regra para erros de pareamento também é mais simples que a real. A Cas9 real tolera alguns erros longe do PAM e pode cortar esses locais fora do alvo. O reparo mostra só um exemplo de cada caminho: um par de bases a mais no NHEJ e três pares de bases trocados no HDR. Nas células, o NHEJ dá uma mistura de pequenas inserções e deleções, e não um resultado fixo. A sequência do modelo foi inventada e não pertence a um gene real.
De um enigma bacteriano a uma ferramenta de laboratório
Charpentier estudava Streptococcus pyogenes e encontrou o tracrRNA, publicado em março de 2011. Naquela primavera do hemisfério norte, ela conheceu Doudna, bioquímica da Universidade da Califórnia em Berkeley, em um congresso em Porto Rico, e as duas decidiram trabalhar juntas na Cas9. Em tubos de ensaio, a Cas9 só com o crRNA não cortava o DNA. Quando elas acrescentaram o tracrRNA, o DNA foi cortado. Depois fundiram os dois RNAs em uma única guia e mostraram que, mudando sua sequência, conseguiam cortar o DNA nos locais que escolhessem. O artigo saiu em 2012. No início de 2013, outros grupos mostraram que o sistema edita genomas em células humanas e de camundongo.
A Real Academia Sueca de Ciências concedeu o Prêmio Nobel de Química de 2020 a Emmanuelle Charpentier e Jennifer A. Doudna "pelo desenvolvimento de um método de edição de genoma".
Onde é usado
Segundo o Comitê Nobel, o CRISPR-Cas9 é hoje uma ferramenta padrão na pesquisa básica, onde é usado para mudar genes em células e animais de laboratório e descobrir o que eles fazem. Também é usado no melhoramento de plantas; o resumo do comitê dá o exemplo de variedades de arroz editadas para absorver menos cádmio e arsênio do solo. O MedlinePlus, da Biblioteca Nacional de Medicina dos Estados Unidos, observa que a edição de genoma está sendo estudada em pesquisas e ensaios clínicos para muitas doenças, e que editar óvulos, espermatozoides ou embriões é atualmente ilegal nos Estados Unidos e em muitos outros países.
Um medicamento feito com CRISPR-Cas9 foi autorizado na União Europeia. A Agência Europeia de Medicamentos concedeu ao Casgevy (exagamglogene autotemcel) uma autorização de comercialização condicional em 9 de fevereiro de 2024 para pessoas com 12 anos ou mais com beta-talassemia dependente de transfusão ou doença falciforme grave. Ele é feito com as próprias células-tronco do sangue do paciente, editadas fora do corpo para produzirem mais hemoglobina fetal. Uma autorização condicional significa que a empresa precisa apresentar mais evidências depois da aprovação. Esta exposição não faz nenhuma afirmação sobre a eficácia ou a segurança de qualquer tratamento; a página da agência traz os detalhes.
Por que um endereço único ainda permite cortes fora do alvo
O cálculo aleatório anterior conta correspondências exatas, não tudo que a enzima aceita. Permitindo uma letra errada numa guia de 20 bases, há 20 posições com 3 alternativas: 20 × 3 = 60 sequências vizinhas, ou 61 com a original. Num genoma ilustrativo de 3.200.000.000 pares de bases, ambas as fitas oferecem cerca de 6.400.000.000 posições iniciais. Com bases independentes e igualmente frequentes, a expectativa de correspondências exatas acidentais é 6.400.000.000 ÷ 4^20 ≈ 0,0058. Incluindo os 60 vizinhos, chega a aproximadamente 0,36 antes de exigir PAM.
Em NGG, N é qualquer base e cada G tem probabilidade 1/4 nesse genoma fictício. Exigir NGG multiplica a expectativa por 1/16, dando cerca de 0,022 para as 61 sequências. São contagens esperadas de padrões acidentais, não porcentagens de risco clínico nem taxas medidas de corte. Não incluem o alvo pretendido, escolhido porque existe, nem significam que toda sequência tolerada será cortada. Repetições, frequências desiguais, empacotamento do DNA, variantes do paciente e posição dos erros violam as hipóteses. Um gene duplicado pode oferecer um alvo quase idêntico mesmo quando a previsão aleatória é baixa.
Por isso a escolha da guia começa com buscas no genoma relevante e continua com medições experimentais. Um local previsto fora do alvo é candidato a investigação, não prova de dano; a ausência de detecção também depende da sensibilidade do ensaio. Em 2016 Kleinstiver e colegas descreveram SpCas9-HF1, projetada para enfraquecer contatos inespecíficos com DNA. Manteve boa atividade com muitas guias testadas e reduziu atividade indesejada detectável. «Não detectável» vale para aqueles ensaios, não para toda célula e guia. A alta fidelidade pode reduzir a atividade desejada em certos alvos: especificidade e eficiência precisam ser medidas juntas. A regra do modelo que interrompe qualquer erro é didática, não uma simulação dessa proteína modificada.
Trocar letras sem romper as duas fitas
O controle do molde representa HDR após uma quebra, não todas as formas de edição precisa. Em 2016 Komor e colegas combinaram um componente Cas9 direcionado ao DNA com uma citidina desaminase. Ela converte citidina em uridina no DNA exposto; o processamento posterior pode gerar C para T, ou G para A visto da fita oposta. Projetos posteriores usam uma nickase, que corta uma fita, para favorecer o resultado. Evitar uma quebra deliberada de fita dupla não significa ausência de cortes simples ou de produtos indesejados.
O editor atua numa janela de edição, não em qualquer letra perto da guia. Outras bases suscetíveis dentro da janela podem mudar como edições acompanhantes. O PAM ainda limita onde a maquinaria se liga. Entrega às células certas, mudanças em outros locais e proporção de células corretamente editadas exigem experimentos. A técnica serve quando sua conversão química corresponde à mudança necessária; não é um corretor irrestrito do genoma.
A edição prime, descrita por Anzalone e colegas em 2019, liga uma nickase Cas9 a uma transcriptase reversa. O RNA-guia estendido, pegRNA, indica o alvo e contém o molde da alteração. A enzima copia a informação do RNA para o DNA, e a célula resolve o intermediário. Isso permite substituições e pequenas inserções ou deleções sem DNA doador separado nem quebra deliberada de fita dupla. Ainda depende de reparo celular; eficiência e produtos indesejados variam com alvo e projeto. Nenhum desses editores é animado aqui. O objeto verde do molde é DNA para HDR, não pegRNA; o corte das duas fitas representa Cas9 convencional.
O que Casgevy muda nas células do paciente
Casgevy é um exemplo de edição fora do corpo. A MHRA britânica anunciou a autorização em 16 de novembro de 2023; o comunicado registra a decisão em 15 de novembro. Em 8 de dezembro de 2023, a FDA dos Estados Unidos aprovou Casgevy para pacientes com 12 anos ou mais com doença falciforme e crises vaso-oclusivas recorrentes. Indicações e condições de acesso devem ser consultadas em cada regulador, não presumidas iguais entre países. São decisões iniciais, não uma lista completa das aprovações posteriores.
A hemoglobina adulta anormal pode enrijecer hemácias em forma de foice e obstruir o sangue. Casgevy não substitui diretamente a mutação falciforme em todas as células. Células-tronco formadoras do sangue são coletadas do paciente, editadas com CRISPR-Cas9 fora do corpo e reinfundidas. A edição altera a regulação da hemoglobina fetal para que os descendentes eritroides produzam mais dela. Essa hemoglobina pode reduzir a falcização mesmo com a mutação herdada ainda presente. Alterar um regulador pode compensar uma doença sem corrigir sua letra original.
A infusão é apenas parte de um tratamento exigente. A FDA explica que primeiro se faz quimioterapia em altas doses para preparar a medula óssea. Coleta, fabricação, condicionamento, enxertia e acompanhamento influem no resultado; a sequência da guia sozinha não é o tratamento. Usar células próprias não elimina os riscos da quimioterapia nem a vigilância prolongada das células editadas. É tratamento somático: essas células não formam óvulos ou espermatozoides e não se pretende transmitir a edição aos filhos. O modelo usa um alvo inventado; não representa o alvo de Casgevy, a fabricação clínica, a elegibilidade nem a chance individual de benefício.
O que a tela não decide sobre edição hereditária
Editar uma célula-tronco sanguínea e editar um embrião levantam questões distintas. A edição embrionária pode alcançar muitos tecidos, inclusive células que depois originam gametas, e passar a descendentes que não puderam consentir. Se apenas algumas células iniciais forem editadas, pode haver mosaicismo, com alterações diferentes entre populações celulares. Uma amostra aparentemente limpa não demonstra uniformidade em todos os tecidos. Uma alteração bem posicionada também não demonstra justificativa médica nem acesso justo.
As recomendações da OMS de 2021 distinguem edição somática, germinativa e hereditária. Pedem supervisão, registros, cooperação internacional e canais para denunciar pesquisa ilegal, não registrada, antiética ou insegura. São um marco de governança, não uma licença mundial nem uma lei que substitua automaticamente regras nacionais. O Nobel de Química de 2020 reconheceu o desenvolvimento do método por Charpentier e Doudna, não todas as suas aplicações possíveis.
Na tela, comece com «Combina» e PAM (NGG) ativado; avance até corte e reparo. Desative PAM sem mudar a guia: o endereço correspondente não basta. Restaure e compare «Erro na semente» com «Erro distante». Ambos impedem o corte aqui, mas em posições diferentes; isso não demonstra riscos biológicos iguais. Compare reparo com e sem molde: são exemplos de rotas, não frequências celulares. Anote presença do PAM, posição onde o pareamento para e produto formado. Nada disso mede segurança terapêutica, viabilidade embrionária ou consentimento.
Perguntas
O que significa CRISPR?
É a sigla em inglês para repetições palindrômicas curtas agrupadas e regularmente interespaçadas. O nome descreve os arranjos nos genomas de bactérias em que repetições curtas se alternam com espaçadores. A ferramenta de edição leva esse nome, e Cas9 é a proteína associada ao CRISPR número 9.
Por que a Cas9 precisa de um PAM?
Ele permite que a bactéria diferencie o DNA do vírus do seu próprio arranjo CRISPR. O arranjo tem as mesmas sequências espaçadoras, mas sem PAM ao lado, então a Cas9 o deixa em paz. Para a ferramenta, isso significa que um alvo precisa ficar ao lado de NGG.
O que acontece se a guia tiver uma letra errada?
Depende de onde está a letra. Um erro de pareamento nas 10 bases da semente, ao lado do PAM, costuma interromper o reconhecimento. Erros mais distantes às vezes são tolerados, e essa é uma das causas de cortes em locais não desejados. O modelo usa uma regra mais simples: qualquer erro interrompe o pareamento.
A própria Cas9 muda a sequência do DNA?
Não. A Cas9 só corta as duas fitas. A mudança vem do reparo da célula: a junção de extremidades tende a acrescentar ou remover algumas bases, e o reparo com molde copia uma sequência fornecida pelos pesquisadores.
Por que os domínios HNH e RuvC cortam fitas diferentes?
Eles ficam em lados diferentes do DNA aberto. O HNH fica de frente para a fita pareada com a guia, e o RuvC para a fita deslocada. Os dois cortam a 3 pares de bases do PAM, então a quebra atravessa as duas fitas de forma limpa.
Qual é o tamanho da Cas9 comparada ao DNA?
A cadeia da estrutura 4OO8 do PDB tem 1372 aminoácidos, cerca de 159 quilodaltons. Ela segura o RNA guia e o par RNA-DNA de 20 pares de bases em um sulco entre seus dois lobos. Esse par corresponde a duas voltas de hélice, cerca de 6,8 nm de comprimento, enquanto o próprio DNA tem 2 nm de largura.
Quem descobriu o CRISPR?
Muitos grupos contribuíram. As repetições foram descritas pela primeira vez em 1987, sua ligação com os vírus em 2005 e seu papel na imunidade em 2007. Charpentier e Doudna mostraram em 2012 que a Cas9 pode ser programada com um único RNA guia para cortar o DNA em um local escolhido, e dividiram o Prêmio Nobel de Química de 2020.
Cas9 de alta fidelidade garante ausência de edição fora do alvo?
Não. A redução medida depende da guia, do tipo celular e do limite de detecção. SpCas9-HF1 exige testes com o alvo e a entrega pretendidos.
O molde verde é uma guia de edição prime?
Não. É DNA doador para HDR após a quebra das duas fitas. O pegRNA é RNA com o endereço e a informação que a transcriptase reversa usa para escrever a alteração.
Casgevy transmite a edição aos filhos do paciente?
Edita células-tronco sanguíneas, não óvulos nem espermatozoides. É tratamento somático para aumentar hemoglobina fetal, não correção hereditária da mutação falciforme.
Termos
- Arranjo CRISPR: um trecho de um genoma bacteriano em que repetições curtas se alternam com espaçadores tirados de vírus e plasmídeos.
- Cas9: a proteína associada ao CRISPR que corta o DNA em sistemas do tipo II, como o de Streptococcus pyogenes.
- RNA guia: um único RNA com um espaçador de 20 letras e um arcabouço; junta o crRNA e o tracrRNA do sistema bacteriano.
- Protoespaçador: os 20 pares de bases do DNA alvo que combinam com o espaçador.
- PAM: motivo adjacente ao protoespaçador, uma sequência curta ao lado do alvo (NGG para esta Cas9) que a Cas9 precisa encontrar antes de abrir o DNA.
- Semente: as 10 bases da guia mais próximas do PAM, onde um erro de pareamento interrompe o reconhecimento com mais facilidade.
- Alça R: a estrutura em que o RNA pareia com uma fita de DNA e a outra fita é empurrada para o lado.
- NHEJ: junção de extremidades não homólogas, reparo que une diretamente as pontas quebradas, muitas vezes com pequenas inserções ou deleções.
- HDR: reparo direcionado por homologia, reparo que copia um molde de DNA correspondente através da quebra.
Fontes
- Nobel Committee for Chemistry, Scientific Background on the Nobel Prize in Chemistry 2020: A tool for genome editing (repetições em 1987, espaçadores em 2005 e 2007, PAM, semente, HNH e RuvC, corte a 3 bp do PAM, NHEJ e HDR). https://www.nobelprize.org/uploads/2020/10/advanced-chemistryprize2020.pdf (consultado em 16 de outubro de 2026)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, summary. https://www.nobelprize.org/prizes/chemistry/2020/summary/ (consultado em 16 de outubro de 2026)
- NobelPrize.org, The Nobel Prize in Chemistry 2020, press release. https://www.nobelprize.org/prizes/chemistry/2020/press-release/ (consultado em 16 de outubro de 2026)
- NobelPrize.org, Popular science background: Genetic scissors, a tool for rewriting the code of life (encontro de 2011, tracrRNA, usos em pesquisa e melhoramento de plantas). https://www.nobelprize.org/prizes/chemistry/2020/popular-information/ (consultado em 16 de outubro de 2026)
- OpenStax, Biology 2e, 14.2 DNA Structure and Sequencing (2 nm de largura, 0,34 nm por par de bases, 3,4 nm por volta). https://openstax.org/books/biology-2e/pages/14-2-dna-structure-and-sequencing (consultado em 16 de outubro de 2026)
- National Human Genome Research Institute, Talking Glossary: Base Pair (cerca de 3 bilhões de pares de bases no genoma humano). https://www.genome.gov/genetics-glossary/Base-Pair (consultado em 16 de outubro de 2026)
- National Human Genome Research Institute, Talking Glossary: Double Helix. https://www.genome.gov/genetics-glossary/Double-Helix (consultado em 16 de outubro de 2026)
- National Human Genome Research Institute, Talking Glossary: CRISPR. https://www.genome.gov/genetics-glossary/CRISPR (consultado em 16 de outubro de 2026)
- RCSB Protein Data Bank, entry 4OO8: Crystal structure of Streptococcus pyogenes Cas9 in complex with guide RNA and target DNA (Nishimasu et al., Cell, 2014). https://www.rcsb.org/structure/4OO8 (consultado em 16 de outubro de 2026)
- RCSB PDB-101, Molecule of the Month: Cascade and CRISPR. https://pdb101.rcsb.org/motm/181 (consultado em 16 de outubro de 2026)
- MedlinePlus, US National Library of Medicine, What are genome editing and CRISPR-Cas9? https://medlineplus.gov/genetics/understanding/genomicresearch/genomeediting/ (consultado em 16 de outubro de 2026)
- European Medicines Agency, Casgevy: EPAR (autorização de comercialização condicional, 9 de fevereiro de 2024). https://www.ema.europa.eu/en/medicines/human/EPAR/casgevy (consultado em 16 de outubro de 2026)
- FDA: aprovação inicial de Casgevy, 8 de dezembro de 2023. https://www.fda.gov/news-events/press-announcements/fda-approves-first-gene-therapies-treat-patients-sickle-cell-disease (2026-10-23)
- MHRA: anúncio de autorização de Casgevy, 16 de novembro de 2023. https://www.gov.uk/government/news/mhra-authorises-world-first-gene-therapy-that-aims-to-cure-sickle-cell-disease-and-transfusion-dependent-thalassemia (2026-10-23)
- OMS: recomendações sobre edição do genoma humano, 2021. https://www.who.int/news/item/12-07-2021-who-issues-new-recommendations-on-human-genome-editing-for-the-advancement-of-public-health (2026-10-23)
- Komor e colegas: edição de bases, 2016. https://www.nature.com/articles/nature17946 (2026-10-23)
- Anzalone e colegas: edição prime, 2019. https://www.nature.com/articles/s41586-019-1711-4 (2026-10-23)
- Kleinstiver e colegas: SpCas9-HF1, 2016. https://www.nature.com/articles/nature16526 (2026-10-23)
Roteiro 3 de 3
Do batimento cardíaco ao DNAMais exposições
Passeio dentro de uma célula: animal, vegetal e bactéria
Ampliada um milhão de vezes, uma mitocôndria fica mais ou menos do tamanho de um sofá, uma E. coli inteira mede 2 m e a cinesina que reboca uma vesícula ao seu lado anda a 0,8 metro por segundo.
Batidas do coração: modelo interativo passo a passo
Seu coração ejeta cerca de 70 mL de sangue a cada batimento e, no ritmo de repouso, faz isso cerca de 108.000 vezes por dia.
Passeie entre dinossauros em tamanho real
Um parque de 600 m com 172 animais pré-históricos em tamanho real, dos primeiros dinossauros ao T. rex, organizados por período.
Animais da era do gelo na vida real: compare tamanhos
Um parque de 600 m com 65 animais da última era do gelo em tamanho real, de mamutes-lanosos a felinos dentes de sabre, e um seletor que percorre 50.000 anos.
Ilusões de ótica: sombra, sala de Ames, tamanho e movimento
A casa A parece escura e a casa B parece clara, mas a sua tela manda o mesmo cinza para o seu olho a partir das duas.
Evolução humana: linha do tempo e espécies em tamanho real
Lucy media cerca de 1,1 m. Percorra 7 milhões de anos de parentes humanos em tamanho real, com sua figura ao lado.