РИС. 32Как это устроено
Как бежит лошадь: сравните шаг, рысь, кентер и галоп
В 1878 году камеры Muybridge показали, что лошадь на галопе отрывает все четыре ноги от земли, собрав их под телом. Некоторые быстрые животные вообще не отрываются от земли.
На этом устройстве не получается показать 3D-модель. Шаги экскурсии ниже можно прочитать текстом.
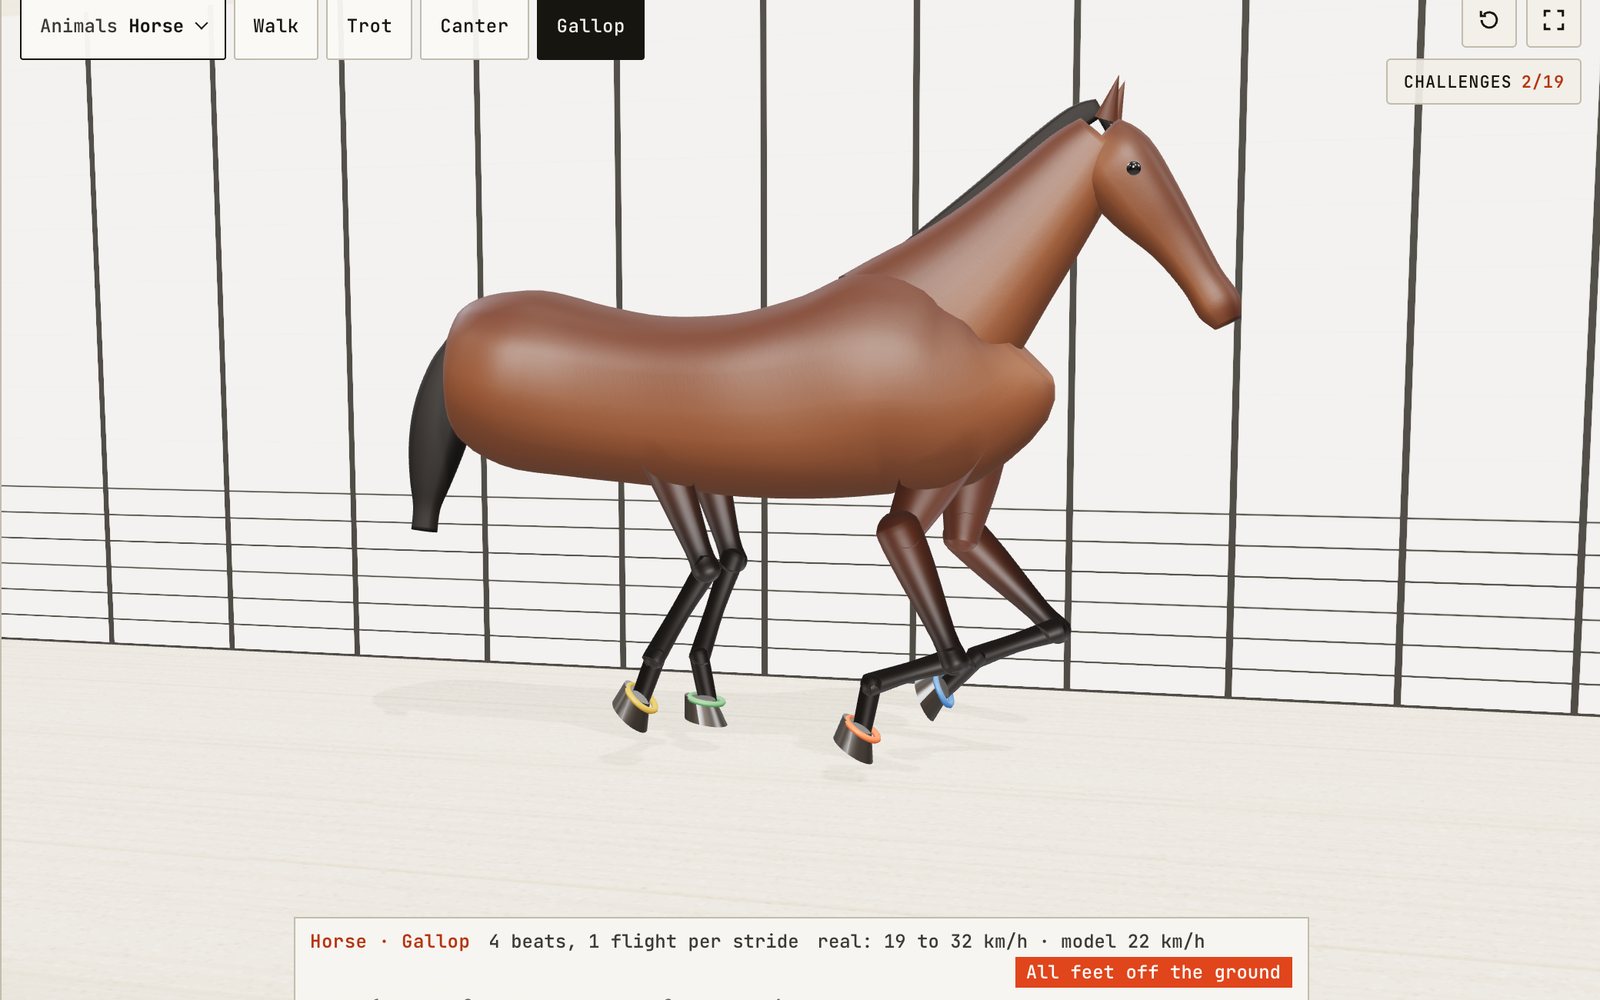
1 / 17 Лошадь с прозрачным теломЛошадь построена геометрически: гладкая кожа покрывает основные мышечные объёмы плеча, туловища и крупа, внутри находится скелет. Показ начинается с медленного галопа с короткой остановкой, когда все четыре ноги в воздухе. Лошадь бежит на месте, а земля уходит назад, поэтому опорное копыто остаётся неподвижным на песке. Кнопка «Животные» над лошадью позволяет выбрать одно из 52 животных.
Тяните для поворота. Колесо или щипок меняют масштаб.
Что показывает модель
Как бежит лошадь? У лошади четыре основных аллюра, и самый быстрый из них галоп. На галопе ноги приземляются поочерёдно в четырёхтактном ритме, а раз за цикл все четыре отрываются от земли, собравшись под телом. Поэтому лошадь, бегущая во весь опор, скачет галопом.
Посмотрите на пробегающую рысью лошадь: ноги сливаются в мелькание. Ритм слышен, но разглядеть, какая нога когда приземляется, трудно. Большую часть истории это никому не удавалось, и художники строили догадки. Здесь четыре основных аллюра лошади замедлены так, чтобы можно было проследить каждое касание: шаг, рысь, кентер и галоп. Затем тот же опыт повторяется с 19 другими животными, от кошки до слона, чтобы сравнить распространённые и редкие аллюры.
Лошадь построена геометрически. Гладкая кожа покрывает главные мышечные объёмы плеча, туловища и крупа; у неё есть грива, хвост и внутренний скелет. Она бежит на месте, а песок и фон движутся назад, как на беговой дорожке. Показ начинается с медленного галопа, который ненадолго останавливается, когда все четыре ноги в воздухе. Нажмите «Животные» в левом верхнем углу сцены, чтобы выбрать одно из 52 животных по силуэту, через поиск или по группе, а затем аллюр соседними кнопками. Под сценой находится диаграмма опоры: каждой ноге соответствует строка, а цветная полоса показывает время её контакта с землёй за цикл. Движущаяся вертикальная линия отмечает текущий момент. Цветной ободок каждого копыта лошади соответствует строке диаграммы, а индикатор над ней считает ноги на земле. Когда их число достигает нуля, он сообщает об этом.
На вкладке управления есть и другие возможности. Скорость показа можно снизить до десятой доли реальной. Ползунок положения в цикле останавливает животное и позволяет вручную пройти весь цикл. Вид изнутри делает кожу прозрачной, открывая скелет. Следы копыт оставляют отметку при каждом касании, звук шагов щёлкает при приземлении, а «Человек 1,75 м» ставит рядом человека для масштаба. Ниже находятся 19 заданий, кнопки вида сбоку, сверху и спереди и траекторий копыт, 18 пород лошадей с 17 аллюрами, редактор аллюров, таблица всех 52 животных и 108 аллюров, забег на 100 м с таблицей рекордов и лента из двенадцати кадров в стиле камер Muybridge.
Удары и число опорных ног
Конники описывают аллюр по числу ударов: сколько отдельных касаний копыт слышно за один цикл. Если две ноги приземляются одновременно, получается один удар. Цикл начинается с приземления выбранной ноги и заканчивается следующим приземлением той же ноги.
Ещё два числа объясняют большую часть диаграммы. Первое показывает, какую долю цикла каждая нога стоит на земле. В биомеханике это коэффициент опоры. Для шага лошади в модели он равен 0,62, то есть каждое копыто находится на земле 62% цикла. Для рыси и кентера принято 0,40, для галопа 0,30. Второе число описывает порядок касаний и промежутки между ними. Milton Hildebrand, снимавший аллюры многих лошадей в 1960-х годах, показал, что симметричный аллюр, например шаг, рысь или иноходь, можно описать лишь двумя числами: коэффициентом опоры и отставанием передней ноги от задней на той же стороне.
Вместе они позволяют предсказать моменты полёта. Если каждая нога стоит на земле больше половины цикла, как на шаге, промежутков совсем без опоры не возникает. Когда опора длится меньше половины цикла, такие промежутки возможны, но их появление зависит от расстановки касаний. Индикатор считает их: «без полёта», «1 полёт за цикл» или «Полётов за цикл: 2».
Шаг: всегда две или три ноги на земле
Шаг представляет собой четырёхтактный аллюр. Каждая нога приземляется на отдельный удар: левая задняя, левая передняя, правая задняя, правая передняя. В руководстве Montana State University Extension уточняется, что на земле всегда две или три ноги и фазы подвисания нет. Модель показывает именно это: включите шаг, и счётчик будет переключаться между двумя и тремя ногами, никогда не опускаясь ниже.
Удары расположены равномерно, через четверть цикла, поэтому под лошадью всегда есть треугольник опоры или пара ног. Поэтому шаг наиболее устойчив и подходит для дальних переходов и неровной земли. Montana State указывает от 3,5 до 5 mph, примерно от 5,6 до 8 км/ч.
Рысь: две диагональные пары
У рыси два удара. Левая передняя и правая задняя ноги приземляются вместе, затем правая передняя и левая задняя. Каждая диагональная пара работает почти как одна нога, поддерживая тело вдоль диагональной линии. Посмотрите на рысь спереди под углом в пошаговом показе: две пары меняются местами, как лезвия ножниц.
Между парами есть короткое подвисание без контакта с землёй. В модели на рыси около 20% цикла приходится на воздух, в двух отдельных промежутках. Montana State отмечает, что подвисание дольше всего у стандартбредной лошади на прибавленной рыси, а некоторые породы, например хакнэ с высоким собранным движением, могут идти рысью вообще без подвисания. Средняя скорость рыси по Montana State составляет от 7 до 10 mph, около 11–16 км/ч. Всадника на рыси трясёт: тело немного опускается при каждом приземлении и снова подбрасывается следующей парой.
Кентер: три удара и ведущая нога
У кентера три удара. Для лошади, идущей с правой ноги, Montana State приводит такую последовательность: левая задняя, затем вместе правая задняя и левая передняя, затем правая передняя; после отрыва правой передней следует подвисание. Нога, приземляющаяся последней, здесь правая передняя, называется ведущей, поскольку выносится дальше вперёд. Поворачивая направо, лошадь обычно идёт с правой ноги.
Ведущую ногу видно на диаграмме. Переключитесь на кентер и посмотрите на третий удар: правая передняя приземляется одна, а следующий промежуток представляет собой единственный полёт за цикл. Montana State считает его лучшим моментом, чтобы всадник попросил сменить ведущую ногу: ни одна нога не касается земли и не удерживает прежнюю последовательность. Средняя скорость кентера по Montana State составляет от 6 до 10 mph, около 10–16 км/ч; его называют собранным или сдержанным галопом.
Галоп: четвёртый удар и момент полёта
Галоп похож на быстрый кентер и во многом им является. Разница в среднем ударе. При кентере внутренняя задняя и наружная передняя ноги приземляются вместе. На галопе задняя касается земли на долю секунды раньше, поэтому один удар разделяется на два, а всего их четыре: левая задняя, правая задняя, левая передняя, правая передняя при движении с правой ноги. Подвисание следует после отрыва последней передней ноги.
В модели каждое копыто находится на земле лишь 30% цикла, а примерно четверть цикла лошадь проводит в воздухе. Откройте шаг 6 показа, чтобы увидеть этот момент при десятой доле реальной скорости. Передние ноги только что оттолкнулись и складываются назад под грудью, а задние переносятся вперёд под животом. Все четыре копыта собраны под телом. Montana State указывает для галопа от 12 до 20 mph, около 19–32 км/ч. Скаковые лошади превышают это среднее значение, поэтому индикатор обозначает его как обычный диапазон, а не предельную скорость.
Скорость каждого аллюра
Ниже приведены значения Montana State с индикатора и их пересчёт из миль в час.
| Аллюр | Удары | Полёты за цикл | Montana State | В km/h |
|---|---|---|---|---|
| Шаг | 4 | 0 | от 3,5 до 5 mph | от 5,6 до 8 |
| Рысь | 2 | 2 | от 7 до 10 mph | от 11 до 16 |
| Кентер | 3 | 1 | от 6 до 10 mph | от 10 до 16 |
| Галоп | 4 | 1 | от 12 до 20 mph | от 19 до 32 |
Диапазоны кентера и рыси перекрываются. Лошадь не меняет аллюр при одной строго заданной скорости, и тренированный рысак может идти рысью быстрее, чем другая лошадь кентером.
Сама модель движется медленнее. Её скорости относительно земли составляют 3,5, 9,3, 11,6 и 22,4 км/ч для четырёх аллюров, поскольку каждое копыто проходит под телом меньшее расстояние, чем у настоящей лошади. Индикатор показывает оба значения с пометками «в природе» и «модель». Важна именно последовательность касаний, и диаграмма отображает её при любой скорости.
Почему лошадь меняет аллюр
В принципе лошадь могла бы ускорять шаг, не переходя на рысь. В 1981 году Donald Hoyt и Richard Taylor обучили пони двигаться на беговой дорожке и измерили потребление кислорода на заданной дистанции. У каждого аллюра нашлась скорость с минимальными затратами на перемещение; более быстрый или медленный шаг либо рысь требовали больше энергии. При свободном движении те же пони выбирали скорости, близкие к этим наиболее экономичным точкам, и меняли аллюр между ними.
Поэтому у каждого аллюра есть экономичный диапазон, а лошадь меняет его примерно там, где один диапазон переходит в другой. Полёты тоже важны. На рыси и галопе ноги работают как пружины: при приземлении сухожилия растягиваются, а при подъёме сокращаются обратно, сохраняя энергию, которая иначе терялась бы.
Размер, цикл и число Фруда
Запустите по очереди кошку и слона: ноги кошки мелькают, а у слона словно движутся в замедленной съёмке. Маленькие животные делают больше циклов в секунду. Norman Heglund и Richard Taylor сравнили животных от мышей до лошадей и установили, что при переходе с рыси на галоп маленькое животное делает гораздо больше циклов в секунду, чем крупное. При сопоставимых скоростях расход энергии за цикл на килограмм тела оказался примерно одинаковым у животных разных размеров.
Robert McNeill Alexander и Alan Jayes предложили способ корректно сравнивать животных разных размеров. Квадрат скорости делят на произведение ускорения свободного падения и длины ноги, получая безразмерное число Фруда. Животные разного размера с одинаковым числом Фруда обычно используют одинаковый аллюр с одинаковыми пропорциями, подобно малому и большому маятникам при соответствующем масштабировании длины. Модель использует эту идею: период цикла растёт пропорционально квадратному корню из длины ноги, поэтому мышь и жираф двигаются в темпе, естественном для их размеров.
Люди переходят с ходьбы на бег примерно при 2 м/с, что при длине человеческой ноги соответствует числу Фруда около 0,5. Alexander показал, что при приближении числа Фруда к 1 ходьба становится механически невозможной: тело, перекатывающееся через жёсткую ногу, должно оторваться от земли.
Аллюры, которым люди обучают лошадей
Montana State относит шаг, рысь, иноходь и галоп к естественным аллюрам диких лошадей. При одомашнивании некоторые превратились в приобретённые аллюры, в том числе медленный лоп, бегущий шаг, рэк, шаговую иноходь и фокстрот. Три таких варианта есть в меню животных.
Иноходь имеет два удара, как рысь, но вместе движутся обе ноги одной стороны: левая задняя и левая передняя, затем правая задняя и правая передняя. Montana State считает её естественным аллюром, а стандартбредные лошади участвуют в бегах и рысью, и иноходью. Сравните оба аллюра стандартбредной лошади на диаграмме: длина полос одинакова, меняются только пары.
У исландской лошади, согласно Montana State, пять естественных аллюров, включая тёльт и иноходь, способную, по приведённым сведениям, достигать 40 mph (64 км/ч) на коротких отрезках. Тёльт сохраняет четырёхтактный порядок шага, но каждая нога стоит на земле меньше времени, поэтому лошадь опирается на одну или две ноги и никогда не отрывается от земли. Всадник сидит почти неподвижно. Бегущий шаг теннесийской прогулочной лошади похож на него, но шаги длиннее. Robilliard, Pfau и Wilson классифицировали аллюры, включая аллюры специализированных пород, по времени касаний, то есть по тем же данным, что показывает диаграмма.
52 животных на одной диаграмме
Таблица под управлением перечисляет всех животных и аллюры с числом ударов, полётов за цикл и скоростью из источника, если она указана. Выберите строку, чтобы поставить животное на сцену. Можно отфильтровать группу: копыта, подушечки, лапы, приматы, две ноги, расставленные ноги или шесть ног, либо воспользоваться поиском по названию. Кнопка «Животные» над сценой предлагает тот же выбор в виде силуэтов, построенных по длинам ног каждого животного.
При сравнении диаграмм видны закономерности. Почти все четвероногие ходят в том же порядке, что лошадь: левая задняя, левая передняя, правая задняя, правая передняя. Hildebrand назвал это боковой последовательностью и обнаружил её у млекопитающих самых разных размеров. Кошка в меню тоже ходит так. Различия проявляются на скорости, когда животные переходят на рысь, иноходь, галоп или прыжковый бег.
Верблюд идёт иноходью
Переключитесь на одногорбого верблюда: обе левые ноги переносятся вперёд вместе, затем обе правые. Тело раскачивается из стороны в сторону. В исследовании Anne Innis Dagg 1974 года одногорбые верблюды обычно шли иноходью и никогда не были замечены на рыси; галоп использовали редко, а иноходь позволяла быстро преодолевать расстояния. Одно из объяснений иноходи у длинноногих животных состоит в том, что задняя нога не ударяет переднюю на той же стороне: они движутся вперёд вместе, а не навстречу.
Быстро, но без полёта: жирафы и слоны
Не каждое животное отрывается от земли, когда спешит. Christopher Basu с коллегами снимали свободно передвигающихся жирафов в South Africa с дрона. Взрослые бежали круговым галопом от 3,4 до 6,9 м/с, около 12–25 км/ч, и ни один взрослый не отрывал все четыре ноги от земли. Короткие полёты видели только у молодых жирафов. Их ходьба, измеренная в более ранней работе, имеет ту же боковую последовательность, что шаг лошади.
Слоны дают самый явный пример. John Hutchinson с коллегами измерили движения азиатских слонов при скоростях до 6,8 м/с, около 24 км/ч, и установили, что все четыре ноги никогда не отрываются от земли. Однако подъём и опускание тела при этих скоростях больше напоминали бег, чем ходьбу. Позднейшее исследование азиатских и африканских слонов показало сохранение боковой последовательности касаний во всём диапазоне скоростей. В модели коэффициент опоры быстрого шага слона равен 0,52, и на диаграмме никогда нет промежутка без опоры.
Два полёта за цикл: собаки, грейхаунды и гепарды
У лошади поперечный галоп: касания переходят с одной стороны на другую, левая задняя, правая задняя, левая передняя, правая передняя. Многие собаки и кошки скачут иначе. При круговом галопе передние лапы приземляются в порядке, обратном задним, поэтому последовательность замыкает круг: левая задняя, правая задняя, правая передняя, левая передняя.
Быстрые бегуны, например грейхаунд и гепард, добавляют второй полёт. После толчка задних лап животное летит с вытянутыми ногами, после отрыва передних снова летит, собрав ноги под телом. Гибкая спина растягивается и сгибается при каждом полёте, удлиняя цикл перемещения. Выберите галоп гепарда и найдите два затенённых промежутка на диаграмме. Ошейники диких гепардов, установленные группой Alan Wilson в Botswana, зафиксировали максимальную скорость 25,9 м/с, около 93 км/ч. James Usherwood и Wilson обнаружили, что грейхаунды на повороте сохраняют скорость, хотя ногам приходится толкать сильнее. Это позволяет предположить, что предельная сила ноги не определяет их максимальную скорость.
Прыжки: кролики, белки и кенгуру
Маленькие животные часто используют аллюры, в которых пара ног работает вместе. При прыжковом беге обе задние лапы приземляются вместе, затем обе передние вместе: два удара и два полёта. При полупрыжке, аллюре кролика в меню, задние лапы приземляются вместе, а передние по очереди: три удара. Hildebrand относил оба варианта, как и галоп, к асимметричным аллюрам, поскольку левая и правая ноги пары движутся не с разницей в половину цикла.
Рыжий кенгуру доводит принцип до предела: обе задние ноги движутся как одна, поэтому прыжок имеет один удар и один полёт. Terence Dawson и Richard Taylor поставили рыжих кенгуру на беговую дорожку и выяснили, что после перехода на прыжки расход энергии в минуту не увеличивается с ростом скорости. У бегающих животных он растёт. Длинные сухожилия задних ног накапливают и возвращают энергию при каждом приземлении.
Две ноги: люди и страусы
При ходьбе человека хотя бы одна нога всегда на земле, а при смене опоры обе стоят на ней. При беге за цикл возникают два полёта, после отталкивания каждой ноги. Peter Weyand с коллегами выяснили, что быстрые спринтеры не переносят ноги вперёд быстрее медленных; они сильнее давят на землю и потому проходят большее расстояние за шаг. Рекорд на 100 м, 9,58 с в Berlin в 2009 году, соответствует средней скорости 37,58 км/ч; именно она используется на человеческой дорожке забега.
Страусы показывают, что бег и полёт не одно и то же. Jonas Rubenson с коллегами измеряли страусов на беговой дорожке от 0,8 до 6,7 м/с. При умеренных скоростях они бежали без полёта, пружиня на согнутых ногах и всегда сохраняя одну опору. Этот аллюр называется бегом без фазы полёта. При более высоких скоростях появлялся короткий полёт. В меню есть все три аллюра страуса для сравнения.
Расставленные ноги: крокодилы и ящерицы
Крокодилы и ящерицы держат верхние части ног по сторонам тела. Ящерицы бегут рысью, одновременно двигая диагональными ногами и изгибая тело из стороны в сторону. Claire Farley и Tim Ko измерили силы при рыси ящериц и обнаружили такое же пружинящее изменение энергии, как у бегающих млекопитающих. Крокодилы обычно идут высоким шагом, подняв тело над землёй, но небольшие особи могут скакать галопом, который George Zug в 1974 году назвал почти неизвестным у рептилий. В модели их ноги движутся в плоских плоскостях, как у остальных, поэтому расставленное положение отражено только широкой постановкой.
Почему ноги складываются при переносе
Посмотрите на переднюю ногу лошади при переносе вперёд: нижняя часть резко складывается назад в суставе, который конники называют передним коленом. Он соответствует нашему запястью. Скакательный сустав задней ноги соответствует нашему голеностопу, а высоко расположенный сустав, направленный вперёд, нашему колену. Ниже запястья и скакательного сустава у лошади почти нет мышц: только длинная пястная или плюсневая кость, кости бабки и копыто, представляющее собой ноготь единственного опорного пальца.
Высоко расположенные мышцы облегчают нижнюю часть ноги, поэтому её можно переносить вперёд много раз в секунду с небольшими усилиями. Сгибание укорачивает ногу, что тоже ускоряет перенос и не даёт копыту задевать землю. Модель делает то же: чем быстрее аллюр, тем сильнее сгибаются запястье и скакательный сустав. Включите вид изнутри, чтобы увидеть кости под кожей.
Необычно устроено и плечо. У лошади нет ключицы, поэтому лопатку удерживают у туловища только мышцы. Выберите лопатку в списке частей, чтобы увидеть её положение у рёбер.
Muybridge и лошадь в воздухе
Пока фотография не научилась останавливать движение, художники часто изображали галопирующих лошадей в позе, теперь называемой летящим галопом: передние ноги вытянуты вперёд, задние назад, все четыре в воздухе. Действительно ли лошадь полностью отрывается от земли и в какой позе, было предметом спора.
Согласно Science Museum Group, Leland Stanford, бывший губернатор California и президент Central Pacific Railroad, нанял фотографа Eadweard Muybridge в 1872 году, чтобы разрешить спор. В 1877 году Muybridge возобновил работу на ферме Stanford в Palo Alto с двенадцатью камерами в ряд, срабатывавшими электрически при прохождении лошади. В описании книги The Horse in Motion 1882 года Science Museum Group говорится, что лошади разрывали тонкие нити, запуская затворы.
В книге Stillman 1882 года описана установка 1878 года. На западной стороне частной дорожки Leland Stanford в Palo Alto возвели здание и разместили в нём двенадцать камер с интервалом в двадцать один дюйм, каждую с двойными затворами. Время получения каждого снимка оценивалось не более чем в одну пятитысячную секунды. Линии фона модели нанесены с тем же интервалом в 21 дюйм, а лента под управлением делит один цикл на двенадцать кадров по тому же принципу.
Снимки показали: у лошади на галопе действительно все четыре ноги одновременно отрываются от земли, но только когда собраны под телом. Когда ноги вытянуты, хотя бы одна ещё стоит на земле. В истории серии от Khan Academy говорится, что после этого летящий галоп исчез из искусства и иллюстраций в скаковых газетах.
Muybridge продолжил снимать движения многих животных и людей и в 1887 году опубликовал Animal Locomotion, 781 таблицу. Друг Stanford, J. D. B. Stillman, написал в 1882 году книгу о работе в Palo Alto; Internet Archive хранит её целиком.
Породы лошадей и их аллюры
Большинство лошадей ходят шагом, бегают рысью, кентером и галопом. У некоторых пород есть дополнительные аллюры; таких лошадей называют лошадьми с особыми аллюрами. Andersson с коллегами в 2012 году обнаружили, что единственное изменение гена DMRT3 делает эти аллюры возможными, а также помогает рысакам на бегах в упряжи. Затем Promerová с коллегами исследовали 4396 лошадей 141 породы и обнаружили мутацию у 68 пород. Все породы, в которых частота мутации превышала 50%, либо имели особые аллюры, либо были выведены для бегов в упряжи.
В разделе «Породы и аллюры» можно выбрать одну из 18 пород, от чистокровной верховой до лошади Jeju, а затем её аллюр. Лошадь на сцене получает масть выбранной породы и движется этим аллюром. Таблица показывает боковое опережение постановки (LAP), долю цикла между приземлением задней и передней ноги на одной стороне, коэффициент опоры и диапазон скоростей из источников.
LAP позволяет чётко различать аллюры. В обзоре Vincelette 2023 года у шага оно близко к 0,25, то есть четыре ноги приземляются равномерно через четверть цикла. У рыси оно равно 0,5, и диагональные ноги приземляются вместе. У чистой иноходи оно близко к нулю, когда обе ноги одной стороны приземляются почти одновременно. Аллюры специализированных пород лежат между этими значениями.
Равномерные четырёхтактные аллюры: тёльт, рэк и бегущий шаг
Тёльт исландской лошади, рэк американской верховой и рэкинг-хорс и бегущий шаг теннесийской прогулочной сохраняют порядок обычного шага: левая задняя, левая передняя, правая задняя, правая передняя. Это равномерные четырёхтактные аллюры, иногда называемые одноопорными. Меняются скорость и длительность контакта каждой ноги с землёй.
Zips с коллегами измерили движения 23 исландских лошадей под всадником на тёльте при 2,9, 3,7 и 4,7 м/с. Как и предполагает определение, тёльт чередовал опору на одну и две ноги, но при самой высокой скорости 60% циклов превратились в четырёхтактную иноходь. У тёльта в модели LAP равно 0,21, а каждая нога опирается на землю 42% цикла, поэтому число опор падает до одной, но никогда до нуля.
Vincelette приводит для бегущего шага LAP от 0,23 до 0,17 и скорости от 2,2 до 4,0 м/с при длительности цикла от 0,85 до 0,65 с. Рэк быстрее: от 2,5 до 6,0 м/с и до 10,6 м/с у скаковых лошадей, с более частыми циклами. Классическое фино породы Paso Fino представляет собой очень собранный рэк: крошечные шаги, циклы от 0,35 до 0,39 с и почти никакого продвижения вперёд. Пасо-льяно перуанского пасо представляет собой разновидность бегущего шага.
Раздельная рысь и раздельная иноходь
Ещё два аллюра делят двухтактную последовательность на четыре неравномерных удара. При фокстроте миссурийского фокстроттера диагональные ноги отрываются вместе, но передняя приземляется чуть раньше задней, образуя тесные пары ударов. Vincelette указывает LAP от 0,41 до 0,32 и скорости от 3,2 до 3,7 м/с. При шаговой иноходи, также называемой раздельной иноходью, обе ноги одной стороны поднимаются вместе, но задняя приземляется первой. LAP составляет от 0,18 до 0,13, скорость от 2,9 до 6,2 м/с. Собреандандо перуанского пасо тоже относится к раздельной иноходи.
У бразильской породы Mangalarga Marchador есть два вида марши. При марша-батида лошадь дольше опирается на диагональные пары, при марша-пикада на боковые; в обоих случаях бывают моменты тройной опоры. Simonato с коллегами измерили марша-батида при скоростях от 3,34 до 3,85 м/с.
Сама чистая иноходь представляет собой двухтактный боковой аллюр со скоростями от 3,5 до 8,1 м/с, а скаковая, или летящая, иноходь достигает от 10,5 до 14 м/с с фазой полёта. Иноходью ходят несколько восточноазиатских пород, включая лошадей Jeju, Hokkaido и монгольскую.
Редактор аллюров и площадь опоры
Редактор позволяет самостоятельно задать аллюр. Три ползунка устанавливают моменты приземления левой передней, правой задней и правой передней ног как доли цикла после левой задней, четвёртый задаёт длительность опоры каждой ноги. Кнопка запуска на сцене сразу переносит последовательность на лошадь. Редактор называет совпадающий с ней аллюр из каталога или ближайший к нему.
Рядом с ползунками показан вид ног сверху. Опорные ноги соединены в многоугольник опоры, а точка обозначает центр масс, который в этой модели расположен немного впереди середины туловища. Когда опираются три ноги или больше, а точка лежит внутри контура, лошадь могла бы стоять в этой позе неподвижно и не падать: она статически устойчива. При двух опорных ногах лошадь балансирует на линии и должна продолжать движение.
Cartmill, Lemelin и Schmitt использовали этот принцип для сравнения шагающих аллюров. Медленный шаг с боковой последовательностью и долгой опорой удерживает центр масс внутри треугольника из трёх ног большую часть цикла. В редакторе шаг с опорой каждой ноги в течение 80% цикла устойчив примерно четыре пятых цикла. При сокращении опоры доля устойчивого времени падает, пока на рыси и иноходи устойчивых поз вообще не остаётся. Быстрые аллюры опираются на движение, а не на равновесие стоящего тела.
Тяжёлые рысаки: бегемоты и носороги
Бегемоты входят в число крупнейших наземных млекопитающих, но их аллюры были плохо изучены. Hutchinson и Pringle исследовали 169 циклов 32 бегемотов по сетевым видео и собственным съёмкам двух животных из зоопарка. Каждый цикл оказался рысью или близким к ней аллюром. На самых высоких скоростях у бегемотов были короткие моменты полного отрыва от земли, прежде не описанные. Слоны сходного размера никогда не отрываются от земли, что показывает и слон в меню.
Приматы ходят в обратном порядке
Большинство млекопитающих ходят в боковой последовательности: за задней ногой следует передняя той же стороны. Большинство приматов делают наоборот. После левой задней приземляется правая передняя: это диагональная последовательность. Hildebrand описал её в 1967 году; шимпанзе, горилла и павиан в меню используют именно её.
Причины такой ходьбы приматов остаются предметом спора. По одной из идей Cartmill с коллегами задняя нога оказывается под телом, когда передняя тянется к новой ветке, что помогает на тонких опорах. Shapiro и Raichlen проверили это на детёнышах павианов, использующих больше видов аллюров, чем взрослые, и обнаружили, что боковая последовательность по этому показателю даёт такую же устойчивость. Pontzer, Raichlen и Rodman установили, что энергетические затраты шимпанзе при ходьбе на двух и четырёх ногах сходны.
Птицы: бег без полёта
Птица бежит на двух ногах, как человек, но может бежать без отрыва от земли. Gatesy и Biewener сравнили птиц и людей и обнаружили, что птицы сильнее сгибают ноги. Страус в меню бежит обоими способами, как измерили Rubenson с коллегами: без полёта на умеренной скорости и с коротким полётом на высокой. Animal Diversity Web указывает для эму длительно поддерживаемую скорость до 13,4 м/с.
Цыплята позволяют проверить, какая часть этих движений приобретается с опытом. Muir с коллегами измеряли их в первые две недели жизни. Только что вылупившиеся цыплята уже умели бегать, но при ходьбе потенциальная и кинетическая энергия ещё не обменивались так, как у взрослых; к двум неделям такой обмен появлялся. Пингвины ходят вразвалку, раскачиваясь в стороны. Griffin и Kram обнаружили, что эти колебания не напрасны: они помогают возвращать энергию с каждым шагом.
Рептилии: расставленные ноги, галоп и бег по воде
Ящерицы держат ноги по сторонам и изгибают тело при движении. Farley и Ko измерили движения полосатого геккона и сцинка: оба бежали рысью, одновременно двигая диагональными ногами. Зеброхвостая ящерица на самых высоких скоростях поднимается на две ноги; Irschick и Jayne сравнили её бег на двух и четырёх ногах.
Неожиданность преподносят крокодиловые. Hutchinson с коллегами сняли 42 особи 15 видов при скоростях от 0,15 до 4,35 м/с. Крокодилы скакали галопом и прыжковым аллюром, а аллигаторы нет. Это позволяет предположить, что способность либо исчезла у линии аллигаторов, либо появилась у линии крокодилов. Renous с коллегами подробно описали галоп молодых крокодилов Джонстона.
Ящерица-василиск бежит по воде на задних ногах. Glasheen и McMahon объяснили механизм: каждая стопа ударяет по поверхности, затем движется вниз и назад, открывая воздушную полость, из которой нога выходит до её закрытия. Hsieh и Lauder измерили силы у молодых василисков и обнаружили большие боковые силы при каждом шаге, которые могут помогать сохранять вертикальное положение. В модели василиск бежит по песку той же двухногой последовательностью.
Шесть ног: чередующиеся треножники
У насекомых шесть ног, и на большинстве скоростей они ходят на двух треножниках: передняя и задняя ноги одной стороны движутся со средней другой, поэтому на земле всегда три ноги. Full и Tu измерили такой аллюр у американских тараканов от 0,44 до 1,0 м/с. Выше 1 м/с вертикальная сила временами падала почти до нуля, а при 1,0–1,5 м/с, около 50 длин тела в секунду, тараканы бежали на четырёх или даже двух ногах.
Пустынные муравьи рода Cataglyphis входят в число самых быстрых. Wahl, Pfeffer и Wittlinger изучали ходьбу и бег Cataglyphis fortis, а Pfeffer с коллегами установили, что сахарский серебряный муравей компенсирует более короткие ноги частотой свыше 40 циклов в секунду, фазами опоры всего 7 мс и скоростью переноса ног до 1,4 м/с. Насекомые показаны увеличенными; множитель указан на индикаторе, который делит скорость модели на то же число. Выберите самый медленный показ, чтобы проследить за ногами.
Забег и таблица рекордов
Выберите до восьми животных и начните забег. Каждое бежит с максимальной скоростью из своего источника: верхней границей диапазона, измеренным максимумом или средней скоростью рекорда. Чистокровная верховая бежит при 19 м/с, верхней границе диапазона 17–19 м/с, который Vincelette приводит для скачек. После финиша время каждого животного на 100 м попадает в таблицу, хранящуюся в этом браузере; показаны десять лучших результатов.
Больший размер не всегда означает большую скорость. Hirt с коллегами сопоставили максимальные скорости 474 видов массой от 30 микрограммов до 100 тонн и получили горбообразную кривую: скорость сначала растёт с размером, затем у самых крупных животных падает, поскольку им не хватает времени для разгона. Поэтому слон финиширует ближе к концу, а гепард, животное среднего размера, побеждает.
Попробуйте сами
19 заданий под управлением проверяют происходящее на сцене. Одни предлагают остановить животное в нужный момент: найти полный отрыв четырёх ног лошади или остановить галоп с опорой ровно на одну ногу. Другие задают вопросы, на которые отвечает сцена: каким аллюром быстро движется верблюд, какой аллюр лошади быстрее всех и отрывается ли быстрый слон от земли. Одно задание предлагает показать любой трёхтактный аллюр. Девять используют редактор: восстановить шаг, рысь и иноходь верблюда, создать прыжковый или одноопорный аллюр, аллюр с полётом, с постоянной опорой на три ноги, устойчивый весь цикл и с моментом опоры на одну ногу без полёта. Другие предлагают показать породу с особым аллюром или шестиногое животное, а последнее угадать победителя до старта забега.
Забег использует только числа из источников: верхнюю границу диапазона, измеренную максимальную скорость, среднюю скорость мирового рекорда или наибольшую скорость в исследовании. Это не равное соревнование: предел дорожки для страусов не равен предельной скорости животного, и примечания в таблице поясняют, какое число использует каждая дорожка. Животные без измеренной скорости в источниках не участвуют, вместо того чтобы получать выдуманное значение.
Чем модель отличается от настоящих животных
Скелет упрощён. У лошади 13 пар рёбер, меньше, чем в действительности, а каждому отделу ноги соответствует одна кость, хотя у настоящей ноги в запястье и скакательном суставе несколько мелких костей. Шея и голова движутся вместе с туловищем. На шаге настоящая лошадь немного опускает и поднимает их для равновесия, а на кентере голова поднимается при подведении задних ног и опускается ниже всего при приземлении ведущей передней ноги. Мышцы показаны гладкими объёмами, а не отдельными мышцами.
Другие животные составлены из тех же растянутых и перекрашенных частей. У приматов круглая голова и короткая морда вместо длинной лошадиной; птицы и пингвин представляют собой масштабированные варианты одного вертикального тела, а насекомые отдельный набор гладких частей с двухзвенными ногами. У остальных изменены признаки: длинная шея жирафа и верблюда, горб верблюда, хобот и большие уши слона, пятна гепарда. Внутреннего скелета у них нет, морды упрощены. Ноги используют тот же механизм с двумя суставами, что у лошади, поэтому лапа кошки или собаки больше похожа на маленькое копыто, чем в действительности.
Движение тоже упрощено. Длительности циклов, коэффициенты опоры и высота переноса каждой ноги округлены и подобраны по описаниям аллюров в источниках, а не по измерениям отдельного животного. Ноги движутся в плоских плоскостях, тело поднимается и качается с постоянной амплитудой, тогда как у живого животного ритм меняется от цикла к циклу. Опорная нога удерживается строго неподвижно относительно песка, что близко к реальному поведению на большей части опоры. В модели смена аллюра плавно смешивает последовательности менее чем за полсекунды; настоящему животному требуется несколько циклов.
Вопросы
Бывает ли, что все четыре ноги лошади в воздухе?
Да. На рыси между диагональными парами есть короткий полёт, а на кентере и галопе один момент полёта за цикл. Фотографии Muybridge 1878 года показали, что на галопе ноги в это время собраны под телом.
Почему на шаге нет полного отрыва от земли?
Каждая нога опирается больше половины цикла, а четыре касания разделены четвертью цикла, поэтому на земле всегда две или три ноги. Это даёт устойчивую опору на неровной поверхности.
Что такое ведущая нога на кентере и галопе?
Ведущая сторона та, чьи передняя и задняя ноги выносятся дальше вперёд. При движении с правой ноги правая передняя приземляется последней за цикл. На поворотах лошади обычно ведут внутренней стороной и могут сменить её в полёте.
Рысь быстрее кентера?
Не всегда. Montana State указывает от 7 до 10 mph для рыси и от 6 до 10 mph для кентера, поэтому диапазоны перекрываются. Рысаков для бегов в упряжи разводят и тренируют для рыси гораздо быстрее среднего кентера.
Как быстро лошадь скачет галопом?
Montana State указывает от 12 до 20 mph, около 19–32 км/ч, для среднего галопа. Скаковые породы быстрее на коротких дистанциях, а летящая иноходь исландской лошади, по приведённым сведениям, достигает 40 mph.
Почему художники неверно рисовали галоп?
Ноги движутся слишком быстро, чтобы глаз различал отдельные положения. Художники рисовали позу, казавшуюся самой быстрой, со всеми четырьмя вытянутыми ногами. Фотография 1878 года показала, что в такой позе одна нога всегда на земле.
Чем рысь отличается от иноходи?
В обоих случаях два удара. На рыси вместе движутся диагональные ноги, на иноходи обе ноги одной стороны. Выберите стандартбредную лошадь, чтобы сравнить диаграммы.
Какие животные ходят иноходью?
В этой экспозиции это верблюд, стандартбредная и исландская лошади. Dagg установила, что одногорбые верблюды обычно идут иноходью и никогда рысью.
Слоны бегают?
Это зависит от определения бега. При измеренных скоростях до 6,8 м/с слоны никогда не отрывали все четыре ноги от земли, но их тело пружинило, как у бегущего животного.
Почему гепард дважды летит за цикл?
На его галопе задние и передние ноги отталкиваются парами, после каждой пары следует полёт. Спина сгибается и распрямляется вместе с ними, удлиняя перемещение за цикл.
Почему маленькие животные так быстро перебирают ногами?
Короткие ноги переносятся быстрее, как короткий маятник качается быстрее длинного. Heglund и Taylor установили, что при сопоставимых скоростях мышь делает гораздо больше циклов в секунду, чем лошадь.
Почему скорость на индикаторе отличается от скорости модели?
Ноги модели проходят под телом меньшее расстояние, чем у настоящего животного, поэтому за цикл она продвигается меньше. Время касаний следует источникам, а индикатор показывает реальное значение рядом с модельным.
Что такое лошадь с особыми аллюрами?
Это лошадь с естественным дополнительным аллюром помимо шага, рыси, кентера и галопа. Обычно это равномерный четырёхтактный аллюр, например тёльт, рэк или бегущий шаг, либо иноходь. Большинство таких пород несут мутацию гена DMRT3, которую Andersson с коллегами выявили в 2012 году.
Что такое тёльт?
Четырёхтактный аллюр исландской лошади с порядком касаний обычного шага. Полёта нет: лошадь опирается на одну или две ноги, поэтому всадника почти не подбрасывает. Zips с коллегами измерили скорости от 2,9 до 4,7 м/с.
Чем рэк отличается от бегущего шага?
Оба аллюра равномерные четырёхтактные с порядком обычного шага. Бегущий шаг представляет собой удлинённый шаг с далеко переступающими ногами при 2,2–4,0 м/с. По обзору Vincelette рэк чаще и быстрее, от 2,5 до 6,0 м/с, с более короткими шагами задних ног и более пружинистым движением.
Бегемот может скакать галопом?
В 169 циклах бегемотов, исследованных Hutchinson и Pringle, галопа не наблюдалось. Бегемоты используют рысь на всех скоростях, а на самых высоких ненадолго отрывают все четыре ноги от земли.
Почему приматы ходят с диагональной последовательностью?
Точного ответа нет. По одной из гипотез задняя нога удерживается под телом, когда рука тянется к новой ветке. Опыты с детёнышами павианов не разрешили вопрос.
Насекомые бегают?
Да. У тараканов с треножным аллюром выше 1 м/с бывают моменты почти нулевой вертикальной силы, а при 1,0–1,5 м/с они переходят на бег на четырёх или двух ногах, как измерили Full и Tu.
Можно услышать аллюр?
Включите звук шагов. Каждое приземление сопровождается щелчком, более высоким для передних ног. На шаге слышны четыре равномерных щелчка, на рыси два, на кентере три с паузой.
Термины
- Аллюр: повторяющийся за каждый цикл порядок движения ног, например шаг или рысь.
- Удар: одно касание ноги или несколько одновременных касаний.
- Цикл: полный оборот движений ног, от приземления выбранной ноги до следующего приземления той же ноги.
- Коэффициент опоры: доля цикла, в течение которой нога стоит на земле.
- Подвисание, или полёт: момент цикла, когда ни одна нога не касается земли.
- Ведущая сторона: сторона, чьи ноги приземляются последними и выносятся дальше вперёд на кентере и галопе.
- Иноходь: двухтактный аллюр, при котором обе ноги одной стороны движутся вместе.
- Боковая последовательность: порядок, при котором за задней ногой следует передняя той же стороны, как на шаге.
- Поперечный галоп: галоп с переходом касаний с одной стороны на другую, как у лошади.
- Круговой галоп: галоп, при котором передние ноги приземляются в порядке, обратном задним, как у собак и гепардов.
- Прыжковый бег: аллюр, в котором обе задние ноги приземляются вместе, затем обе передние вместе.
- Бег без полёта: пружинящий аллюр без полного отрыва от земли, используемый страусами на умеренных скоростях.
- Число Фруда: квадрат скорости, делённый на произведение ускорения свободного падения и длины ноги; позволяет сравнивать животных разного размера.
- Диаграмма опоры: график со строкой для каждой ноги, отмечающий время её контакта с землёй.
- Пястная или плюсневая кость: длинная кость между запястьем либо скакательным суставом и путовым суставом.
- Скакательный сустав: сустав задней ноги, соответствующий голеностопу человека.
- Холка: высшая точка спины над лопатками.
- Лошадь с особыми аллюрами: лошадь с естественным дополнительным аллюром, например тёльтом, рэком, бегущим шагом или иноходью.
- Боковое опережение постановки (LAP): доля цикла от приземления задней ноги до передней на той же стороне; 0,25 для равномерного четырёхтактного аллюра, 0,5 для рыси.
- Одноопорный аллюр: равномерный четырёхтактный аллюр с порядком шага, например тёльт, рэк или бегущий шаг.
- Раздельная рысь и раздельная иноходь: четырёхтактные аллюры с небольшим разрывом между касаниями диагональной пары при фокстроте или боковой пары при шаговой иноходи.
- Диагональная последовательность: порядок, при котором за задней ногой следует передняя противоположной стороны, как у большинства приматов.
- Чередующиеся треножники: аллюр насекомых, при котором передняя и задняя ноги одной стороны движутся со средней ногой другой.
- Площадь опоры: контур опорных ног при взгляде сверху.
- Статическая устойчивость: поза, в которой центр масс лежит внутри площади опоры, так что животное могло бы стоять неподвижно.
Источники
- Montana State University Extension, Horse Locomotion. https://animalrangeextension.montana.edu/equine/locomotion.html (checked 18 October 2026)
- Hildebrand, M. (1965). Symmetrical gaits of horses. Science 150, 701-708. https://doi.org/10.1126/science.150.3697.701 (checked 18 October 2026)
- Hildebrand, M. (1989). The quadrupedal gaits of vertebrates. BioScience 39, 766-775. https://doi.org/10.2307/1311182 (checked 18 October 2026)
- Hoyt, D. F. and Taylor, C. R. (1981). Gait and the energetics of locomotion in horses. Nature 292, 239-240. https://doi.org/10.1038/292239a0 (checked 18 October 2026)
- Heglund, N. C. and Taylor, C. R. (1988). Speed, stride frequency and energy cost per stride: how do they change with body size and gait? Journal of Experimental Biology 138, 301-318. https://doi.org/10.1242/jeb.138.1.301 (checked 18 October 2026)
- Alexander, R. McN. and Jayes, A. S. (1983). A dynamic similarity hypothesis for the gaits of quadrupedal mammals. Journal of Zoology 201, 135-152. https://doi.org/10.1111/j.1469-7998.1983.tb04266.x (checked 18 October 2026)
- Alexander, R. McN. (1989). Optimization and gaits in the locomotion of vertebrates. Physiological Reviews 69, 1199-1227. https://doi.org/10.1152/physrev.1989.69.4.1199 (checked 18 October 2026)
- Robilliard, J. J., Pfau, T. and Wilson, A. M. (2007). Gait characterisation and classification in horses. Journal of Experimental Biology 210, 187-197. https://doi.org/10.1242/jeb.02611 (checked 18 October 2026)
- Dagg, A. I. (1974). The locomotion of the camel (Camelus dromedarius). Journal of Zoology 174, 67-78. https://doi.org/10.1111/j.1469-7998.1974.tb03144.x (checked 18 October 2026)
- Basu, C. K., Deacon, F., Hutchinson, J. R. and Wilson, A. M. (2019). The running kinematics of free-roaming giraffes, measured using a low cost unmanned aerial vehicle (UAV). PeerJ 7, e6312. https://doi.org/10.7717/peerj.6312 (checked 18 October 2026)
- Basu, C., Wilson, A. M. and Hutchinson, J. R. (2019). The locomotor kinematics and ground reaction forces of walking giraffes. Journal of Experimental Biology 222, jeb159277. https://doi.org/10.1242/jeb.159277 (checked 18 October 2026)
- Hutchinson, J. R., Famini, D., Lair, R. and Kram, R. (2003). Are fast-moving elephants really running? Nature 422, 493-494. https://doi.org/10.1038/422493a (checked 18 October 2026)
- Hutchinson, J. R. et al. (2006). The locomotor kinematics of Asian and African elephants: changes with speed and size. Journal of Experimental Biology 209, 3812-3827. https://doi.org/10.1242/jeb.02443 (checked 18 October 2026)
- Wilson, A. M. et al. (2013). Locomotion dynamics of hunting in wild cheetahs. Nature 498, 185-189. https://doi.org/10.1038/nature12295 (checked 18 October 2026)
- Usherwood, J. R. and Wilson, A. M. (2005). No force limit on greyhound sprint speed. Nature 438, 753-754. https://doi.org/10.1038/438753a (checked 18 October 2026)
- Dawson, T. J. and Taylor, C. R. (1973). Energetic cost of locomotion in kangaroos. Nature 246, 313-314. https://doi.org/10.1038/246313a0 (checked 18 October 2026)
- Rubenson, J., Heliams, D. B., Lloyd, D. G. and Fournier, P. A. (2004). Gait selection in the ostrich: mechanical and metabolic characteristics of walking and running with and without an aerial phase. Proceedings of the Royal Society B 271, 1091-1099. https://doi.org/10.1098/rspb.2004.2702 (checked 18 October 2026)
- Weyand, P. G. et al. (2000). Faster top running speeds are achieved with greater ground forces not more rapid leg movements. Journal of Applied Physiology 89, 1991-1999. https://doi.org/10.1152/jappl.2000.89.5.1991 (checked 18 October 2026)
- World Athletics, World records, men's 100 m, 9.58 s (Berlin, 16 August 2009). https://worldathletics.org/records/by-category/world-records (checked 18 October 2026)
- Lindstedt, S. L. et al. (1991). Running energetics in the pronghorn antelope. Nature 353, 748-750. https://doi.org/10.1038/353748a0 (checked 18 October 2026)
- Herbin, M. et al. (2007). Gait parameters of treadmill versus overground locomotion in mouse. Behavioural Brain Research 181, 173-179. https://doi.org/10.1016/j.bbr.2007.04.001 (checked 18 October 2026)
- Zug, G. R. (1974). Crocodilian galloping: an unique gait for reptiles. Copeia 1974, 550-552. https://doi.org/10.2307/1442557 (checked 18 October 2026)
- Farley, C. T. and Ko, T. C. (1997). Mechanics of locomotion in lizards. Journal of Experimental Biology 200, 2177-2188. https://doi.org/10.1242/jeb.200.16.2177 (checked 18 October 2026)
- Science Museum Group Collection, The Horse in Motion (book by J. D. B. Stillman with photographs by Eadweard Muybridge, 1882). https://collection.sciencemuseumgroup.org.uk/objects/co8452654/the-horse-in-motion (checked 16 October 2026)
- Science Museum Group Collection, Eadweard Muybridge. https://collection.sciencemuseumgroup.org.uk/people/ap28178/muybridge-eadweard (checked 16 October 2026)
- Khan Academy (Smarthistory), Eadweard Muybridge, The Horse in Motion. https://www.khanacademy.org/humanities/becoming-modern/early-photo/early-photo-france/a/eadweard-muybridge-the-horse-in-motion (checked 16 October 2026)
- Internet Archive, J. D. B. Stillman, The Horse in Motion as Shown by Instantaneous Photography (1882). https://archive.org/details/horseinmotionass00stilrich (checked 16 October 2026)
- Vincelette, A. (2023). The characteristics, distribution, function, and origin of alternative lateral horse gaits. Animals 13, 2557. https://doi.org/10.3390/ani13162557 (checked 26 October 2026)
- Zips, S., Peham, C., Scheidl, M., Licka, T. and Girtler, D. (2001). Motion pattern of the toelt of Icelandic horses at different speeds. Equine Veterinary Journal 33 (S33), 109-111. https://doi.org/10.1111/j.2042-3306.2001.tb05371.x (checked 26 October 2026)
- Nicodemus, M. C. and Clayton, H. M. (2003). Temporal variables of four-beat, stepping gaits of gaited horses. Applied Animal Behaviour Science 80, 133-142. https://doi.org/10.1016/S0168-1591(02)00219-8 (checked 26 October 2026)
- Nicodemus, M. C. and Slater, J. K. (2009). Forelimb kinematics of the flat walk and fox trot of the Missouri Fox Trotter. Comparative Exercise Physiology 6, 149-156. https://doi.org/10.1017/S1755254010000048 (checked 26 October 2026)
- Simonato, S. P. et al. (2021). 3D kinematic of the thoracolumbar spine in Mangalarga Marchador horses performing the marcha batida gait and being led by hand. PLOS ONE 16, e0253697. https://doi.org/10.1371/journal.pone.0253697 (checked 26 October 2026)
- Andersson, L. S. et al. (2012). Mutations in DMRT3 affect locomotion in horses and spinal circuit function in mice. Nature 488, 642-646. https://doi.org/10.1038/nature11399 (checked 26 October 2026)
- Promerová, M. et al. (2014). Worldwide frequency distribution of the 'Gait keeper' mutation in the DMRT3 gene. Animal Genetics 45, 274-282. https://doi.org/10.1111/age.12120 (checked 26 October 2026)
- Paso Fino Horse Association, The gaits. https://pfha.org/the-breed/the-gaits/ (checked 26 October 2026)
- Full, R. J. and Tu, M. S. (1991). Mechanics of a rapid running insect: two-, four- and six-legged locomotion. Journal of Experimental Biology 156, 215-231. https://doi.org/10.1242/jeb.156.1.215 (checked 26 October 2026)
- Wahl, V., Pfeffer, S. E. and Wittlinger, M. (2015). Walking and running in the desert ant Cataglyphis fortis. Journal of Comparative Physiology A 201, 645-656. https://doi.org/10.1007/s00359-015-0999-2 (checked 26 October 2026)
- Pfeffer, S. E., Wahl, V. L., Wittlinger, M. and Wolf, H. (2019). High-speed locomotion in the Saharan silver ant, Cataglyphis bombycina. Journal of Experimental Biology 222, jeb198705. https://doi.org/10.1242/jeb.198705 (checked 26 October 2026)
- Hsieh, S. T. and Lauder, G. V. (2004). Running on water: three-dimensional force generation by basilisk lizards. PNAS 101, 16784-16788. https://doi.org/10.1073/pnas.0405736101 (checked 26 October 2026)
- Glasheen, J. W. and McMahon, T. A. (1996). A hydrodynamic model of locomotion in the basilisk lizard. Nature 380, 340-342. https://doi.org/10.1038/380340a0 (checked 26 October 2026)
- Irschick, D. J. and Jayne, B. C. (1999). Comparative three-dimensional kinematics of the hindlimb for high-speed bipedal and quadrupedal locomotion of lizards. Journal of Experimental Biology 202, 1047-1065. https://doi.org/10.1242/jeb.202.9.1047 (checked 26 October 2026)
- Renous, S., Gasc, J.-P., Bels, V. L. and Wicker, R. (2002). Asymmetrical gaits of juvenile Crocodylus johnstoni, galloping Australian crocodiles. Journal of Zoology 256, 311-325. https://doi.org/10.1017/S0952836902000353 (checked 26 October 2026)
- Hutchinson, J. R. et al. (2019). Divergent evolution of terrestrial locomotor abilities in extant Crocodylia. Scientific Reports 9, 19302. https://doi.org/10.1038/s41598-019-55768-6 (checked 26 October 2026)
- Hutchinson, J. R. and Pringle, E. V. (2024). Footfall patterns and stride parameters of Common hippopotamus (Hippopotamus amphibius) on land. PeerJ 12, e17675. https://doi.org/10.7717/peerj.17675 (checked 26 October 2026)
- Gatesy, S. M. and Biewener, A. A. (1991). Bipedal locomotion: effects of speed, size and limb posture in birds and humans. Journal of Zoology 224, 127-147. https://doi.org/10.1111/j.1469-7998.1991.tb04794.x (checked 26 October 2026)
- Griffin, T. M. and Kram, R. (2000). Penguin waddling is not wasteful. Nature 408, 929. https://doi.org/10.1038/35050167 (checked 26 October 2026)
- Muir, G. D., Gosline, J. M. and Steeves, J. D. (1996). Ontogeny of bipedal locomotion: walking and running in the chick. Journal of Physiology 493, 589-601. https://doi.org/10.1113/jphysiol.1996.sp021406 (checked 26 October 2026)
- Pontzer, H., Raichlen, D. A. and Rodman, P. S. (2014). Bipedal and quadrupedal locomotion in chimpanzees. Journal of Human Evolution 66, 64-82. https://doi.org/10.1016/j.jhevol.2013.10.002 (checked 26 October 2026)
- Hildebrand, M. (1967). Symmetrical gaits of primates. American Journal of Physical Anthropology 26, 119-130. https://doi.org/10.1002/ajpa.1330260203 (checked 26 October 2026)
- Shapiro, L. J. and Raichlen, D. A. (2004). Lateral sequence walking in infant Papio cynocephalus. American Journal of Physical Anthropology 126, 205-213. https://doi.org/10.1002/ajpa.20049 (checked 26 October 2026)
- Cartmill, M., Lemelin, P. and Schmitt, D. (2002). Support polygons and symmetrical gaits in mammals. Zoological Journal of the Linnean Society 136, 401-420. https://doi.org/10.1046/j.1096-3642.2002.00038.x (checked 26 October 2026)
- Biewener, A. A. (1983). Allometry of quadrupedal locomotion: the scaling of duty factor, bone curvature and limb orientation to body size. Journal of Experimental Biology 105, 147-171. https://doi.org/10.1242/jeb.105.1.147 (checked 26 October 2026)
- Garland, T. (1983). The relation between maximal running speed and body mass in terrestrial mammals. Journal of Zoology 199, 157-170. https://doi.org/10.1111/j.1469-7998.1983.tb02087.x (checked 26 October 2026)
- Hirt, M. R., Jetz, W., Rall, B. C. and Brose, U. (2017). A general scaling law reveals why the largest animals are not the fastest. Nature Ecology & Evolution 1, 1116-1122. https://doi.org/10.1038/s41559-017-0241-4 (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Eudorcas thomsonii (Thomson's gazelle). https://animaldiversity.org/accounts/Eudorcas_thomsonii/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Odocoileus virginianus (white-tailed deer). https://animaldiversity.org/accounts/Odocoileus_virginianus/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Alces alces (moose). https://animaldiversity.org/accounts/Alces_alces/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Bison bison (American bison). https://animaldiversity.org/accounts/Bison_bison/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Canis lupus (grey wolf). https://animaldiversity.org/accounts/Canis_lupus/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Vulpes vulpes (red fox). https://animaldiversity.org/accounts/Vulpes_vulpes/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Lycaon pictus (African wild dog). https://animaldiversity.org/accounts/Lycaon_pictus/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Crocuta crocuta (spotted hyena). https://animaldiversity.org/accounts/Crocuta_crocuta/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Procyon lotor (raccoon). https://animaldiversity.org/accounts/Procyon_lotor/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Dromaius novaehollandiae (emu). https://animaldiversity.org/accounts/Dromaius_novaehollandiae/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Struthio camelus (ostrich). https://animaldiversity.org/accounts/Struthio_camelus/ (checked 26 October 2026)
- Animal Diversity Web, University of Michigan Museum of Zoology, Macropus rufus (red kangaroo). https://animaldiversity.org/accounts/Macropus_rufus/ (checked 26 October 2026)
Текст и симуляция: CC BY-NC-SA 4.0, если не указано иное.
Другие экспонаты

Размеры динозавров в сравнении с человеком: 172 вида
Парк шириной 600 м, где 172 доисторических животных стоят в натуральную величину, от первых динозавров до тираннозавра, по порядку эпох.
Размеры мамонта и слона: сравнение животных ледникового периода
Парк шириной 600 м с 65 животными последнего ледникового периода в натуральную величину, от мамонтов до саблезубых кошек. Ползунок охватывает 50 000 лет.
Эволюция человека: таблица видов и прогулка в полный рост
Рост Lucy был около 1,1 м. Пройдите 7 миллионов лет среди родственников человека в натуральную величину, поставив себя рядом.
Как работают маятниковые часы и почему важна длина
Маятниковые часы считают секунды стержнем длиной 99,4 cm. Измените длину, температуру и место на Земле, сравните четыре спуска и их суточную ошибку.
Как устроен готический собор: своды, аркбутаны и распор
Каменный свод Амьенского собора находится в 42,3 метра над полом, а стены под ним почти целиком состоят из цветного стекла.

Как работает редактирование генов CRISPR-Cas9
Направляющая РНК читает всего 20 букв ДНК. Обычно этого хватает, чтобы выбрать одно место среди 3 миллиардов пар оснований человеческого генома.