图 32原理馆
马怎样奔跑:慢步、快步、跑步与袭步
1878 年,迈布里奇的相机表明,袭步的马确实会四足同时离地,但腿收拢在躯体下方。有些快速移动的动物却从不离地。
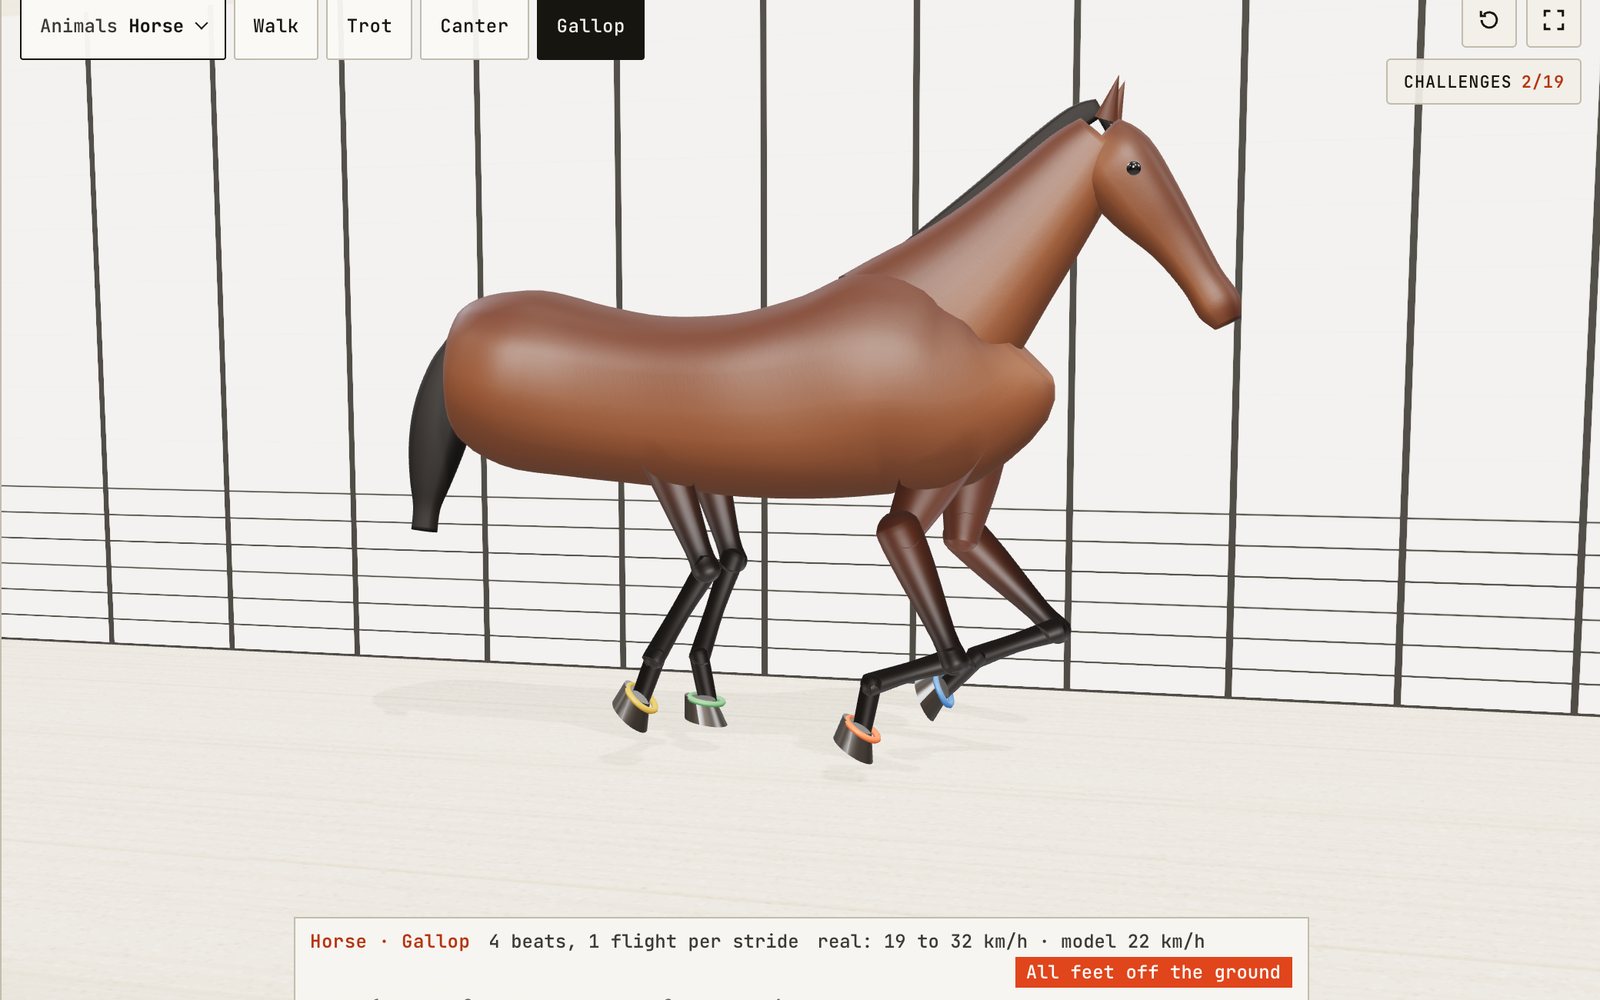
这台设备无法显示 3D 模型。下面的讲解步骤可以直接阅读文字。
1 / 17 一匹能看透躯体的马这匹马用代码构建:平滑皮肤包覆肩部、胸腹部和臀部的主要肌肉团,内部有骨架。开始时它以缓慢的袭步运动,四足同时离地时会短暂停住。它原地奔跑,地面在下方向后滑动,因此着地蹄会保持在沙地原处。在马上方选择「动物」,从 52 种动物中选择一种。
拖动可旋转,滚轮或双指缩放。
模型展示什么
马是怎样奔跑的?马移动四肢的方式称为步态,在它的四种自然步态(慢步、快步、跑步和袭步)中,袭步是奔跑最快的方式。袭步时,四足以四拍节奏依次着地,每个步态周期都有一次四足同时离地、收拢在躯体下方的时刻。因此,马全速奔跑时用的就是袭步。
看一匹马以快步经过,四肢会变得模糊。你能听见节奏,却看不清哪只脚在何时着地。在历史上的大部分时期,没有人看得清,画家只能猜测。本展项将马的四种自然步态放慢,直到每一次落足都能看清:慢步、快步、跑步和袭步。随后,它让从猫到大象的另外 19 种动物接受同样的观察,让你看见哪些步态是共有的,哪些较为少见。
这匹马用代码构建。平滑的皮肤曲面包覆着肩部、胸腹部和臀部的主要肌肉团,配有鬃毛、尾巴以及内部的骨架。它原地奔跑,而沙地与背景向后滑动,原理和跑步机相同。参观从放慢的袭步开始,四足同时离地时会短暂停住。在场景左上角选择「动物」,通过轮廓、搜索或分组从 52 种动物中选择一种,再用旁边的按钮选择步态。下方的面板是落足图:每条腿占一行,彩色条带标出一个步态周期内该足接触地面的时段。横穿图表的竖线表示当前时刻。每只马蹄都有与对应行相同颜色的色带,图表上方的读数统计着地足数。数量达到零时,读数会提示。
「控制」标签页还有更多选项。「播放速度」最低可降至实际速度的十分之一。「步态周期位置」能停住动物,让你手动拖动它走过一个步态周期。「查看内部」让马的皮肤淡出,露出骨架。「蹄印」在每次落足处留下痕迹,「落足声」在每次着地时发出咔嗒声,「身高 1.75 m 的人」在动物旁放置一个人作为比例参照。控制项下方有 19 个任务,侧视、俯视、正视和蹄部轨迹按钮,18 个马品种的 17 种步态,步态编辑器,包含全部 52 种动物和 108 种步态的表格,带成绩表的 100 m 赛跑,以及模仿迈布里奇相机的十二帧连续画面。
数节拍与着地足数
马术人士通过节拍描述步态,也就是一个步态周期内能听到多少次独立的蹄击。如果两足同时着地,就算一拍。一个步态周期是一次完整循环,从某只脚着地到同一只脚再次着地。
另外两个数值能解释图中大部分现象。第一个是每只脚着地的时间占整个步态周期的比例。生物力学研究者称它为支撑相比例。模型中,马的慢步采用 0.62,因此每只蹄在一个步态周期内有 62% 的时间接触地面。快步和跑步采用 0.40,袭步采用 0.30。第二个是落足的顺序以及各次落足间隔有多远。Milton Hildebrand 在 1960 年代拍摄了许多马的步态,他指出,慢步、快步或对侧步这样的对称步态,只用两个数值就能描述:支撑相比例,以及前足比同侧后足晚着地多少。
把这些信息结合起来,就能预测腾空的时刻。如果每只脚的着地时间都超过步态周期的一半,就像慢步那样,就不会出现无足着地的时刻。一旦每只脚的着地时间少于步态周期的一半,就可能出现空隙,是否出现取决于落足的间隔。读数会替你统计这些空隙:「无腾空相」、「每周期 1 次腾空」或「每周期 2 次腾空」。
慢步:始终两足或三足着地
慢步是四拍步态。每只脚各占一拍,依次为左后足、左前足、右后足、右前足。蒙大拿州立大学推广部的指南补充说,始终有两足或三足着地,不存在悬空时刻。模型准确展示了这一点:播放慢步,读数在两足和三足之间切换,从不更少。
由于各拍均匀间隔,相隔四分之一个步态周期,马的身下始终有三条腿构成三角形,或有一对腿支撑。这就是慢步最稳定的原因,也是马在长途行进和崎岖地面上采用它的原因。蒙大拿州立大学给出的速度为 3.5 至 5 mph,约为 5.6 至 8 km/h。
快步:两组对角足
快步有两拍。左前足和右后足同时着地,随后是右前足和左后足。每组对角足几乎像一条腿那样工作,因此躯体沿一条对角线得到支撑。在导览中从前侧斜视角观察快步,两组足像剪刀的刀片那样交替。
两组足之间有短暂的悬空,此时无足着地。模型中,快步在每个步态周期约有 20% 的时间处于空中,分为两段空隙。蒙大拿州立大学指出,标准竞赛马的伸长快步悬空时间最长,而某些品种,例如动作高抬、收缩的哈克尼马,快步时可能完全没有悬空。蒙大拿州立大学给出的平均快步速度为 7 至 10 mph,约为 11 至 16 km/h。快步让骑手感到颠簸:每次落地时躯体略微下沉,随后又被下一组足向上抛起。
跑步:三拍与领步侧
跑步有三拍。对于右领步的马,蒙大拿州立大学列出的顺序是左后足,随后右后足与左前足同时着地,再是右前足,右前足离地后进入一段悬空期。最后着地的腿,这里是右前腿,称为领步腿,因为它向前伸得最远。向右转弯的马通常以右侧腿领步。
你可以在图中看见领步侧。切换至跑步并观察第三拍:右前足单独着地,其后的空隙是这个步态周期内唯一的腾空时刻。蒙大拿州立大学说,这一刻最适合骑手要求换领步侧,因为没有脚接触地面来维持旧的模式。蒙大拿州立大学给出的跑步平均速度为 6 至 10 mph,约为 10 至 16 km/h,并称其为收缩或受约束的袭步。
袭步:第四拍与腾空时刻
袭步看起来像快速的跑步,在许多方面也确实如此。区别在中间那一拍。跑步时,内侧后足与外侧前足同时着地。袭步时,后足早着地一瞬间,于是一拍变成两拍,步态共有四拍:右领步时依次为左后足、右后足、左前足、右前足。悬空发生在最后一只前足离地之后。
模型中,每只蹄的着地时间仅占步态周期的 30%,马约有四分之一的时间在空中。打开导览第 6 步,以实际速度的十分之一观察这一刻。前腿刚刚蹬地,向后折叠至胸部下方,后腿则向前摆到腹部下方。四只蹄都收拢在躯体下面。蒙大拿州立大学给出的袭步速度为 12 至 20 mph,约为 19 至 32 km/h。赛马跑得比这个平均范围更快,因此读数将其标为典型范围,而不是最高速度。
各种步态有多快
以下是读数采用的蒙大拿州立大学数据,由英里每小时换算而来。
| 步态 | 节拍数 | 每周期腾空次数 | 蒙大拿州立大学 | 以 km/h 计 |
|---|---|---|---|---|
| 慢步 | 4 | 0 | 3.5 至 5 mph | 5.6 至 8 |
| 快步 | 2 | 2 | 7 至 10 mph | 11 至 16 |
| 跑步 | 3 | 1 | 6 至 10 mph | 10 至 16 |
| 袭步 | 4 | 1 | 12 至 20 mph | 19 至 32 |
跑步与快步的速度范围重叠。马不会在某个固定速度换步态,受训的快步马以快步前进的速度,可以超过另一匹马跑步的速度。
模型本身移动得更慢。四种步态的地面速度分别为 3.5、9.3、11.6 和 22.4 km/h,因为每只蹄在躯体下方扫过的距离短于真马。读数同时显示这两组数值,标为「实际」和「模型」。落足时序是模型中重要的部分,图表在任何速度下都能展示它。
马为什么换步态
原则上,马可以越走越快,而不转入快步。1981 年,Donald Hoyt 和 Richard Taylor 训练矮种马在跑步机上运动,并测量它们走过给定距离所消耗的氧气。每种步态都有一个移动成本最低的速度;比这个速度更快或更慢地慢步或快步,都更费能量。同一批矮种马自由活动时,会选择接近这些最低成本点的速度,并在它们之间切换步态。
因此,每种步态都有较省力的速度范围,马大致在一个范围交接到下一个范围的位置换步态。腾空时刻也是其中的一环。快步和袭步时,腿像弹簧一样工作:躯体落下时肌腱伸长,上升时回弹,储存原本会损失的能量。
体型、步幅与弗劳德数
依次播放猫和大象,猫的腿模糊成一片,大象的腿却像在慢动作中移动。小动物每秒完成的步态周期更多。Norman Heglund 和 Richard Taylor 比较了从小鼠到马的动物,发现各自从快步变为袭步的速度下,小动物每秒完成的步态周期远多于大动物。他们还发现,在相当的速度下,每千克体重每个步态周期消耗的能量在不同体型间很接近。
Robert McNeill Alexander 和 Alan Jayes 提出了一种公平比较不同体型动物的方法。将速度的平方除以重力加速度与腿长的乘积,就得到一个没有单位的数值,称为弗劳德数。不同体型的动物以相同弗劳德数移动时,往往采用比例相同的同一种步态,就像小摆和大摆在长度按比例缩放后以相似方式摆动。模型采用这个想法:动物的步态周期时长随腿长的平方根增大,因此小鼠和长颈鹿都能以符合各自体型的自然节奏移动。
人约在 2 m/s 时从行走转为奔跑,对人的腿长而言,对应的弗劳德数接近 0.5。Alexander 指出,弗劳德数接近 1 时,行走在力学上就不再可能,因为绕着一条挺直的腿翻越的躯体会离开地面。
人教给马的步态
蒙大拿州立大学将慢步、快步、对侧步和袭步列为野生马的自然步态。在驯养条件下,一些步态被改造成后天习得的步态,包括慢跑步、疾走步、高抬四拍步、分拍对侧步和狐步。动物菜单中有其中三种模式。
对侧步像快步一样是两拍步态,但同一侧的两条腿一起移动:先是左后腿与左前腿,再是右后腿与右前腿。蒙大拿州立大学将它列为自然步态,标准竞赛马既参加快步赛,也参加对侧步赛。在图中比较标准竞赛马的这两种步态:条带长度相同,改变的只是配对方式。
按蒙大拿州立大学的描述,冰岛马有五种自然步态,包括托尔特步以及据说短距离可达 40 mph(64 km/h)的对侧步。托尔特步保持慢步的四拍顺序,但每足着地的时间更短,因此马一次由一足或两足支撑,从不离地。骑手几乎能保持静坐不动。田纳西走马的疾走步与之相似,但步子更长。Robilliard、Pfau 和 Wilson 按落足时序对马的步态进行分类,包括特殊步态品种的步态,这与图表展示的是同一种信息。
52 种动物,同一张图
控制项下方的表格列出展项中每种动物和每种步态的节拍数、每周期腾空次数,以及来源提供的速度,如有提供。选择一行,就能将该动物放入场景。按分组筛选(蹄、肉垫、爪、灵长类、两足、外展腿或六足),或按名称搜索。场景上方的「动物」按钮以一排轮廓提供同样的选择,每个轮廓都根据该动物自身的腿长绘制。
阅读许多图表后,有些模式会变得明显。几乎所有四足动物的行走顺序都与马相同:左后足、左前足、右后足、右前足。Hildebrand 称之为同侧序列慢步,并在体型差异很大的哺乳动物中发现了它。菜单中的猫也这样走。差异出现在速度较高时,动物会分成采用快步、对侧步、袭步和双足成对跳跃的几类。
骆驼采用对侧步
切换到单峰骆驼,左侧两条腿一起前摆,随后是右侧两条腿。躯体左右摇晃。在 Anne Innis Dagg 的 1974 年研究中,单峰骆驼经常采用对侧步,从未被观察到采用快步;它们很少袭步,而以对侧步快速行进。关于长腿动物采用对侧步,一种解释是它能避免后足撞到同侧前足,因为这两条腿一起前摆,而不是彼此迎面相遇。
快却不腾空:长颈鹿与大象
并非所有动物加速时都会离地。Christopher Basu 及同事用无人机拍摄了南非自由活动的长颈鹿。成年长颈鹿以 3.4 至 6.9 m/s、约 12 至 25 km/h 的速度采用旋转袭步奔跑,没有一只成年个体四足同时离地。只有幼年长颈鹿出现短暂腾空。较早研究测得的行走步态与马一样,属于同侧序列慢步。
大象是最清楚的例子。John Hutchinson 及同事测得亚洲象最高移动速度为 6.8 m/s、约 24 km/h,并发现它们从未四足同时离地。尽管如此,在这些速度下,躯体起伏的方式更接近奔跑而不是行走。后来一项关于亚洲象与非洲象的研究发现,它们在整个速度范围内都保持同侧序列的落足顺序。模型中,大象快速行走时的支撑相比例为 0.52,图表从不出现空隙。
一个周期两次腾空:狗、灵缇与猎豹
马的袭步是横向袭步:落足顺序从一侧交叉到另一侧,依次为左后、右后、左前、右前。许多犬科和猫科动物的袭步不同。旋转袭步中,前足的落足顺序与后足相反,因此序列绕成一圈:左后、右后、右前、左前。
灵缇和猎豹等快速奔跑的动物还会增加第二次腾空。后足蹬地后,动物四肢伸展着腾空;前足离地后,它又四肢收拢在躯体下方腾空。柔韧的背部随着每次腾空伸展与卷曲,增加步幅。选择猎豹的袭步,在图中找出两段阴影空隙。Alan Wilson 的团队给博茨瓦纳野生猎豹佩戴的项圈记录到最高速度为 25.9 m/s,约 93 km/h。James Usherwood 和 Wilson 发现,灵缇在弯道赛跑时虽然腿必须更用力推地,仍能保持速度,这提示腿能产生的力并不决定它们的最高速度。
成对跳与跳跃:兔、松鼠和袋鼠
小动物常采用一对腿协同工作的步态。双足成对跳中,两只后足同时着地,随后两只前足同时着地,形成两拍与两次腾空。半成对跳,也就是菜单中兔的步态,后足同时着地,前足则依次着地,形成三拍。Hildebrand 将这两种步态都与袭步一样归为非对称步态,因为一对左右腿的动作并不相隔半个步态周期。
红大袋鼠将这一点推到极致:两条后腿像一条腿那样移动,因此一次跳跃只有一拍与一次腾空。Terence Dawson 和 Richard Taylor 将红大袋鼠放到跑步机上,发现它们开始跳跃后,随着速度加快,每分钟的能量消耗并不上升。奔跑动物的能量消耗则随速度增加。后腿的长肌腱在每次落地时储存并释放能量。
两足:人和鸵鸟
行走的人始终有一足着地,换脚时双足都着地。奔跑会在每个步态周期中出现两次腾空,每只脚蹬地后各有一次。Peter Weyand 及同事发现,更快的短跑运动员并不比慢些的运动员更快地向前摆腿;他们向下推地的力更大,因此每一步前进得更远。有记录的最快 100 m 成绩,是 2009 年柏林的 9.58 s,换算为平均速度是 37.58 km/h,这就是赛跑中人类赛道采用的数值。
鸵鸟表明,奔跑与腾空是两回事。Jonas Rubenson 及同事在跑步机上测量了速度为 0.8 至 6.7 m/s 的鸵鸟。中等速度下,它们奔跑时没有腾空,弯曲的腿弹跳运动,但始终有一足着地,这种步态称为无腾空跑。速度更高时会出现短暂腾空。菜单中有鸵鸟的全部三种步态,供你比较。
外展腿:鳄鱼与蜥蜴
鳄鱼与蜥蜴的大腿向两侧伸出。蜥蜴采用快步,对角腿一起移动,躯体同时左右弯曲;Claire Farley 和 Tim Ko 测量了快步蜥蜴所受的力,发现其能量呈现与奔跑哺乳动物相同的弹跳模式。鳄鱼通常采用高姿行走,将躯体抬离地面,但小型鳄鱼也会袭步,George Zug 在 1974 年将它描述为爬行动物中几乎不为人知的步态。模型像绘制其他动物一样,将它们的腿画在平面内,因此外展只体现在宽大的站距上。
腿为什么在摆动时折叠
观察马前腿向前摆动,下半段会在马术人士称为膝的关节处明显向后折叠。这个关节相当于我们的腕关节。后腿的跗关节相当于我们的踝关节,而后腿高处朝前的膝关节则相当于我们的膝。在前膝和跗关节以下,马几乎没有肌肉:只有一根长管骨、系骨以及蹄,蹄就是马站立所依靠的那一根脚趾的趾甲。
将肌肉集中在高处会让下腿更轻,因此每秒多次向前摆腿所需的力很小。摆动时折叠腿会缩短腿长,也有助于快速摆动,并让蹄避开地面。模型同样如此:步态越快,前膝与跗关节折叠得越多。打开「查看内部」,观察皮肤内的骨骼。
肩部也不同寻常。马没有锁骨,因此肩胛骨只靠肌肉连接在躯干上。在「部位」列表中选择肩胛骨,查看它贴着肋骨的位置。
迈布里奇与腾空的马
在摄影能够定格动作之前,艺术家常把袭步的马画成一种如今称为飞驰姿态的样子:前腿向前伸,后腿向后伸,四足全部离地。马是否真的会完全离地,以及以什么姿态离地,当时确实存在争论。
据科学博物馆集团介绍,加利福尼亚州前州长、中央太平洋铁路总裁 Leland Stanford 于 1872 年雇用了摄影师埃德沃德·迈布里奇来解决这一问题。1877 年,迈布里奇在 Stanford 位于帕洛阿尔托的农场恢复工作,将十二台相机排成一列,马经过时逐台以电力触发。科学博物馆集团对 1882 年书籍《The Horse in Motion》的记录描述了马扯断细线来触发快门。
Stillman 的 1882 年著作描述了 1878 年的装置。在 Leland Stanford 位于帕洛阿尔托的私人跑道西侧建起一座建筑,里面每隔二十一英寸放一台相机,共十二台,每台都有双快门。每张照片的曝光时间估计不超过五千分之一秒。模型背景上的线条按相同的 21 英寸间距绘制,控制项下方的连续画面也以同样的思路将一个步态周期分成十二张图片。
照片表明,袭步的马确实会四足同时离地,但只在腿收拢至躯体下方时如此。四肢伸展时,至少还有一足着地。可汗学院关于这组照片的历史介绍说,随后飞驰姿态从艺术作品和赛马报刊插图中消失了。
迈布里奇后来继续拍摄许多运动中的动物与人,并在 1887 年出版了含 781 幅图版的《Animal Locomotion》。Stanford 的朋友 J. D. B. Stillman 撰写了 1882 年那本关于帕洛阿尔托工作的书,互联网档案馆保存着全文。
马的品种与步态
多数马会慢步、快步、跑步和袭步。一些品种还多一种自己的步态,骑手称它们为特殊步态马。Andersson 及同事在 2012 年发现,一个基因 DMRT3 的单一变化使这些额外步态成为可能,也有助于挽车赛中的快步马。Promerová 及同事随后检测了 141 个品种的 4,396 匹马,在其中 68 个品种中发现了这一突变。突变频率高于 50% 的每个品种,要么是特殊步态品种,要么是为挽车赛培育的品种。
在「马的品种与步态」中,你可以从纯血马到济州马的 18 个品种中选择一个,再选择它的一种步态。场景中的马会采用该品种的毛色,并以该步态移动。表格列出每种步态的同侧前足着地延迟比例(LAP),也就是从后足着地到同侧前足着地之间的时间占步态周期的比例,以及支撑相比例和来源给出的速度范围。
LAP 能清楚地排列这些步态。在 Vincelette 于 2023 年对这些步态的综述中,慢步接近 0.25,因此四足以均匀的四分之一周期间隔着地。快步为 0.5,对角足同时着地。硬对侧步接近零,同侧两足几乎同时着地。特殊步态马的所有动作都位于其间。
单足四拍步:托尔特步、高抬四拍步与疾走步
冰岛马的托尔特步、美国鞍马与高抬四拍步马的高抬四拍步,以及田纳西走马的疾走步,都保持慢步的落足顺序:左后足、左前足、右后足、右前足。它们是均匀的四拍步态,有时称为单足四拍步。改变的是速度和每足着地的时长。
Zips 及同事测量了 23 匹有人骑乘的冰岛马以 2.9、3.7 和 4.7 m/s 进行托尔特步的情况。托尔特步如其定义所述,在单足支撑和双足支撑的时刻间交替,但在最高速度下,60% 的步态周期已变成四拍对侧步。模型中托尔特步的 LAP 为 0.21,每足着地时间占步态周期的 42%,因此支撑足数会降至一足,却从不为零。
Vincelette 给出的疾走步 LAP 从 0.23 降至 0.17,速度为 2.2 至 4.0 m/s,步态周期时长为 0.85 至 0.65 s。高抬四拍步更快,为 2.5 至 6.0 m/s,赛马可达 10.6 m/s,步频也更高。帕索菲诺马的经典菲诺步是一种高度收缩的高抬四拍步:步子很小,步态周期为 0.35 至 0.39 s,几乎没有前进速度。秘鲁帕索马的平稳帕索步是其疾走步形式。
分拍快步与分拍对侧步
另外两种步态将两拍步态分成不均匀的四拍。密苏里狐步马的狐步中,对角腿同时离地,但前足略早于后足着地,因此节拍成对紧密出现。Vincelette 给出的 LAP 为 0.41 至 0.32,速度为 3.2 至 3.7 m/s。分拍对侧步(也称断续对侧步或缓行步)中,同侧足同时抬起,但后足先着地,LAP 为 0.18 至 0.13,速度为 2.9 至 6.2 m/s。秘鲁帕索马的索布雷安丹多步也是分拍对侧步。
巴西的曼加拉加行进马有两种行进步。对角行进步中,马以对角足对支撑的时间更长;同侧行进步中,同侧足对支撑的时间更长,两种都有三足支撑的时刻。Simonato 及同事测量了以 3.34 至 3.85 m/s 进行对角行进步的马。
硬对侧步本身是速度为 3.5 至 8.1 m/s 的两拍同侧步态,而竞速或飞行对侧步可达 10.5 至 14 m/s,并有一个腾空时刻。几个东亚品种会对侧步,包括济州马、北海道马和蒙古马。
步态编辑器与支撑区域
步态编辑器让你自行编写步态。三个滑块设置左前足、右后足和右前足在左后足之后何时着地,以占一个步态周期的比例表示,第四个滑块设置每足着地多久。「在场景中运行」立即将这一模式应用到马身上。编辑器会给出与它匹配的目录步态名称,或最接近的名称。
滑块旁边是足部的俯视图。着地足连接形成支撑区域,一个圆点标出质心,在本模型中位于躯干中点略偏前的位置。三足或更多足着地,且圆点落在它们的轮廓内时,马可以以这种姿态静止站立而不倒下:它是静态稳定的。双足着地时,马在一条线上保持平衡,必须继续运动。
Cartmill、Lemelin 和 Schmitt 用这一思路比较行走步态。支撑相较长的缓慢同侧序列慢步,会在步态周期的大部分时间里让质心留在三足构成的三角形内。编辑器中,每足着地时间占周期 80% 的慢步,约有五分之四的时间保持稳定。缩短支撑相,稳定比例便下降,直到快步与对侧步完全没有处于稳定姿态的时间。更快的步态依靠运动,而不是站立平衡。
沉重的快步动物:河马与犀牛
河马是最大的陆生哺乳动物之一,其步态过去了解得很少。Hutchinson 和 Pringle 利用网络视频及自己拍摄的两只动物园河马影像,研究了 32 只河马的 169 个步态周期。每个周期都是快步或接近快步。速度最高时,河马会短暂四足同时腾空,此前从未有人描述过这一点。体型相似的大象从不离地,菜单中的大象就展示了这一点。
灵长类按另一种顺序行走
多数哺乳动物采用同侧序列行走:后足着地后,同侧前足接着着地。多数灵长类恰恰相反。左后足着地后,接下来是右前足:这就是对角序列慢步。Hildebrand 在 1967 年描述了它,菜单中的黑猩猩、大猩猩和狒狒采用的就是这种方式。
灵长类为什么这样走仍有争论。Cartmill 及同事提出的一种想法是,在一只前足伸向新树枝时,这种方式能让一只后足位于躯体下方,有助于在细窄支撑物上行走。Shapiro 和 Raichlen 用比成年个体步态更多样的幼年狒狒测试这一点,发现按这一衡量标准,同侧序列慢步提供的稳定性同样高。Pontzer、Raichlen 和 Rodman 发现,黑猩猩用两足或四足行走时能量成本相近。
鸟类:没有腾空相的奔跑
鸟像人一样用两条腿跑,但可以没有腾空时刻。Gatesy 和 Biewener 比较鸟类与人,发现鸟的腿保持更蹲屈的姿态。菜单中的鸵鸟有两种跑法,正如 Rubenson 及同事所测得:中等速度下无腾空,较高速度下有短暂腾空。动物多样性网给出的鸸鹋持续速度最高为 13.4 m/s。
雏鸡是检验这些动作有多少来自学习的好对象。Muir 及同事在雏鸡出生后最初两周进行了测量。刚孵化的雏鸡已经会跑,但行走时还不会像成年鸟那样交换势能与动能;到两周时就会了。企鹅左右摇摆着蹒跚行走。Griffin 和 Kram 发现,这种摇摆不是浪费动作:它有助于每一步回收能量。
爬行动物:外展腿、袭步与水面奔跑
蜥蜴的腿伸向两侧,移动时躯体弯曲。Farley 和 Ko 测量了一只带纹壁虎和一只石龙子,两者都采用对角腿一起移动的快步。斑尾蜥在最高速度时会抬起前身改用两足;Irschick 和 Jayne 比较了它的两足与四足奔跑。
鳄类有出人意料之处。Hutchinson 及同事拍摄了 15 个物种的 42 只个体,速度为 0.15 至 4.35 m/s。鳄会袭步和双足成对跳,但短吻鳄不会,这提示这种能力要么在短吻鳄支系中丢失,要么在鳄支系中获得。Renous 及同事详细描述了幼年澳洲淡水鳄的袭步。
冠蜥用后腿在水面奔跑。Glasheen 和 McMahon 揭示了其方式:每足先拍击水面,再向下向后划水,形成一个空气腔,足在空腔闭合前抽出。Hsieh 和 Lauder 测量了幼年冠蜥受力,发现每步都有很大的侧向力,可能有助于保持直立。模型中,冠蜥以同样的两足模式在沙地上奔跑。
六足:交替三足步态
昆虫有六条腿,在多数速度下以两组三足支架行走:一侧的前腿和后腿与另一侧的中腿一起移动,因此始终有三足着地。Full 和 Tu 测量了以这种三足步态在 0.44 至 1.0 m/s 下移动的美洲大蠊。超过 1 m/s 时,垂直力会短暂降至接近零,在 1.0 至 1.5 m/s、约每秒 50 个体长时,蟑螂用四条甚至两条腿奔跑。
沙漠蚁(Cataglyphis 属)是速度最快的昆虫之一。Wahl、Pfeffer 和 Wittlinger 研究了 Cataglyphis fortis 的行走与奔跑,Pfeffer 及同事发现,腿较短的撒哈拉银蚁以每秒超过 40 个步态周期、短至 7 ms 的支撑相和最高 1.4 m/s 的摆腿速度弥补了腿短。昆虫被放大展示(读数给出倍数),读数将模型速度除以同一倍数。选择最慢的播放速度来跟踪腿的动作。
赛跑及成绩表
选择最多八种动物并开始。每种动物都以来源给出的最高速度奔跑:范围的上限、测得的最高速度或纪录平均速度。竞速纯血马以 19 m/s 奔跑,这是 Vincelette 给出的赛马速度 17 至 19 m/s 的上限。比赛结束时,每种动物的 100 m 用时会进入保存在本浏览器的成绩表,列出最快的十条成绩。
更大并不总是更快。Hirt 及同事拟合了从 30 微克到 100 吨的 474 个物种的最高速度,发现一条驼峰形曲线:速度先随体型增大而上升,随后在最大的动物中再次下降,因为它们没有足够时间继续加速。这就是大象在比赛中接近末尾、而中等体型的猎豹获胜的原因。
自己试一试
控制项下方的 19 个任务检验场景里的状态。有些要求你在合适时刻停住动物:找出马四足同时离地的一瞬间,或在袭步恰好一足着地时停住。另一些提出场景能回答的问题:骆驼快速移动时用什么步态,马的哪种步态最快,快速移动的大象是否会离地。其中一个要求你将任意一种三拍步态放到场景中。九个任务使用步态编辑器:重建慢步、快步和骆驼的对侧步,制作双足成对跳或单足四拍步,有腾空相的步态、始终三足着地的步态、整个周期都稳定的步态,以及有单足支撑时刻却无腾空相的步态。其他任务要求你将特殊步态品种或六足行走动物放到场景中,最后一个要求你在比赛开始前猜出获胜者。
赛跑只采用来源中的数值:范围的上限、测得的最高速度、世界纪录的平均速度,或研究测得的最快速度。这并非公平比赛,因为鸵鸟的跑步机测试上限不是最高速度,表中注释会说明每条赛道采用哪类数值。来源没有实测速度的动物不参加比赛,而不是为其猜一个速度。
模型与真实动物的区别
骨架经过简化。马有 13 对肋骨,少于真马,每条腿各段只有一根骨,而真实的腿在前膝与跗关节处有数块小骨。颈部和头部随躯干一起移动。真马慢步时头颈会略微上下运动,以帮助平衡,跑步时则在后腿踏入躯体下方时抬头,并在领步前足着地时将头降至最低点。肌肉是平滑的形状,而不是单独的肌肉。
其他动物由相同部件拉伸、改色构成。灵长类用圆头和短吻代替长马脸,鸟类与企鹅是同一种直立躯体的缩放版本,昆虫则使用另一套平滑躯体部件和两节腿。其余动物中:长颈鹿和骆驼有更长的颈,骆驼有驼峰,大象有象鼻和大耳朵,猎豹有斑点。它们内部没有骨架,面部也很简单。它们的腿与马使用相同的双关节机构,因此猫爪或狗爪画得比真实情况更像小蹄。
运动也经过简化。步态周期时长、支撑相比例和摆动时的抬足高度都是为符合来源中的步态描述而选择的近似值,不是某一只动物的测量值。腿在平面内移动,躯体按固定幅度起伏和摇摆,而真实动物的时序每个周期都会变化。着地足相对沙地完全静止,接近真实足在大部分支撑相中的表现。模型换步态时,在不到半秒内将一种模式混合过渡至另一种;真实动物需要几个步态周期。
常见问题
马会四足同时离地吗?
会。快步时,两组对角足之间有短暂的腾空时刻,跑步和袭步时每个步态周期有一次腾空。迈布里奇的 1878 年照片表明,袭步中这发生在腿收拢于躯体下方时。
为什么慢步从不腾空?
每足着地时间超过步态周期的一半,四次落足相隔四分之一个周期,因此始终有两足或三足着地。这让慢步在崎岖地面上有稳定的支撑基础。
跑步和袭步的领步侧是什么?
领步侧是前腿和后腿向前伸得更远的一侧。右领步时,每个周期右前足最后着地。马转弯时通常以内侧腿领步,可以在腾空时换领步侧。
快步比跑步快吗?
不一定。蒙大拿州立大学给出的快步速度为 7 至 10 mph,跑步为 6 至 10 mph,因此范围重叠。挽车赛马经过选育与训练,快步速度远高于普通跑步。
马袭步能有多快?
蒙大拿州立大学给出的普通袭步速度为 12 至 20 mph,约 19 至 32 km/h。竞速品种短距离内更快,冰岛马的飞行对侧步据说可达 40 mph。
为什么画家画错了袭步?
腿移动太快,肉眼无法分清各个位置。画家画出看起来最快的姿态,即四肢全部伸展。1878 年的摄影表明,伸展姿态始终有一足着地。
快步与对侧步有什么区别?
两者都是两拍。快步时对角腿一起移动;对侧步时同侧两条腿一起移动。选择标准竞赛马,在图中比较。
哪些动物采用对侧步?
展项中有骆驼、标准竞赛马和冰岛马。Dagg 发现单峰骆驼经常采用对侧步,从不采用快步。
大象会跑吗?
这取决于你如何定义奔跑。测得最高速度 6.8 m/s 的大象从未四足同时离地,但在这些速度下,它们的躯体像奔跑者那样弹跳。
为什么猎豹每个周期腾空两次?
它的袭步中,后腿和前腿各自成对蹬地,每对蹬地后都有一次腾空。背部随之弯曲、伸直,增加步幅。
小动物为什么摆腿那么快?
较短的腿摆动用时更少,就像短摆比长摆摆动更快。Heglund 和 Taylor 发现,在相当速度下,小鼠每秒的步态周期数远多于马。
为什么读数中的速度与模型速度不同?
模型的足在躯体下方扫过的距离短于真实动物,因此每个周期前进的距离较少。落足时序才是遵循来源的部分,读数将实际数值与模型数值并列显示。
什么是特殊步态马?
指除了慢步、快步、跑步和袭步以外,还天然具有额外步态的马,通常是托尔特步、高抬四拍步或疾走步等均匀四拍步态,或对侧步。多数特殊步态品种携带 Andersson 及同事于 2012 年识别出的 DMRT3 基因突变。
什么是托尔特步?
冰岛马采用慢步落足顺序的四拍步态。它没有腾空时刻:马一次由一足或两足支撑,因此骑手几乎不颠簸。Zips 及同事测得其速度为 2.9 至 4.7 m/s。
高抬四拍步与疾走步有什么区别?
两者都是采用慢步顺序的均匀四拍步态。疾走步是步子较长、后蹄超过前蹄落点的伸长慢步,速度为 2.2 至 4.0 m/s。根据 Vincelette 的综述,高抬四拍步步频更高、速度更快,为 2.5 至 6.0 m/s,后腿步子较短,动作更有弹性。
河马会袭步吗?
Hutchinson 和 Pringle 研究的 169 个河马步态周期中未见袭步。河马在所有速度下都采用快步,在最高速度下会短暂四足同时离地。
灵长类为什么按对角序列行走?
尚无定论。一种想法是,当前手伸向新树枝时,这能让一只后足踏在躯体下方。对幼年狒狒的测试尚未解决这一问题。
昆虫会跑吗?
会。正如 Full 和 Tu 测得的,采用三足步态的蟑螂在超过 1 m/s 时,会出现垂直力几乎为零的时刻,在 1.0 至 1.5 m/s 时则改用四条或两条腿奔跑。
我能听到步态吗?
打开「落足声」。每次着地发出一声咔嗒,前足的音调更高。慢步时听到均匀的四声,快步两声,跑步三声并带有停顿。
术语
- 步态:每个周期重复一次的腿部运动模式,例如慢步或快步。
- 节拍:一次落足,或数足同时着地。
- 步态周期:腿部的一次完整循环,从一足着地到同一足再次着地。
- 支撑相比例:一足接触地面的时间占步态周期的比例。
- 悬空或腾空相:步态周期中无足着地的时刻。
- 领步侧:跑步与袭步时,腿最后着地并向前伸得最远的一侧。
- 对侧步:同侧两条腿一起移动的两拍步态。
- 同侧序列:后足之后接同侧前足的落足顺序,如慢步。
- 横向袭步:落足从一侧交叉到另一侧的袭步,如马。
- 旋转袭步:前足落足顺序与后足相反的袭步,如狗和猎豹。
- 双足成对跳:两后足同时着地,随后两前足同时着地的步态。
- 无腾空跑:没有腾空相的弹跳步态,鸵鸟在中等速度下采用。
- 弗劳德数:速度的平方除以重力加速度与腿长的乘积,用于比较不同体型的动物。
- 落足图:每条腿占一行、标示各足何时接触地面的图表。
- 管骨:前膝或跗关节与球节之间的长骨。
- 跗关节:后腿上相当于人踝关节的关节。
- 鬐甲:背部最高点,位于肩胛骨上方。
- 特殊步态马:天然具有额外步态的马,如托尔特步、高抬四拍步、疾走步或对侧步。
- 同侧前足着地延迟比例(LAP):从后足着地到同侧前足着地的间隔占步态周期的比例;均匀四拍步态为 0.25,快步为 0.5。
- 单足四拍步:采用慢步顺序的均匀四拍步态,如托尔特步、高抬四拍步或疾走步。
- 分拍快步与分拍对侧步:对角足对(狐步)或同侧足对(分拍对侧步)稍微错开着地的四拍步态。
- 对角序列:后足之后接对侧前足的落足顺序,如多数灵长类。
- 交替三足步态:一侧前腿与后腿和另一侧中腿一起移动的昆虫步态。
- 支撑区域:从上方看,着地足构成的轮廓。
- 静态稳定:质心位于支撑区域内、动物可以保持静止站立的姿态。
参考资料
- Montana State University Extension, Horse Locomotion. https://animalrangeextension.montana.edu/equine/locomotion.html (查阅于 2026 年 10 月 18 日)
- Hildebrand, M. (1965). Symmetrical gaits of horses. Science 150, 701-708. https://doi.org/10.1126/science.150.3697.701 (查阅于 2026 年 10 月 18 日)
- Hildebrand, M. (1989). The quadrupedal gaits of vertebrates. BioScience 39, 766-775. https://doi.org/10.2307/1311182 (查阅于 2026 年 10 月 18 日)
- Hoyt, D. F. and Taylor, C. R. (1981). Gait and the energetics of locomotion in horses. Nature 292, 239-240. https://doi.org/10.1038/292239a0 (查阅于 2026 年 10 月 18 日)
- Heglund, N. C. and Taylor, C. R. (1988). Speed, stride frequency and energy cost per stride: how do they change with body size and gait? Journal of Experimental Biology 138, 301-318. https://doi.org/10.1242/jeb.138.1.301 (查阅于 2026 年 10 月 18 日)
- Alexander, R. McN. and Jayes, A. S. (1983). A dynamic similarity hypothesis for the gaits of quadrupedal mammals. Journal of Zoology 201, 135-152. https://doi.org/10.1111/j.1469-7998.1983.tb04266.x (查阅于 2026 年 10 月 18 日)
- Alexander, R. McN. (1989). Optimization and gaits in the locomotion of vertebrates. Physiological Reviews 69, 1199-1227. https://doi.org/10.1152/physrev.1989.69.4.1199 (查阅于 2026 年 10 月 18 日)
- Robilliard, J. J., Pfau, T. and Wilson, A. M. (2007). Gait characterisation and classification in horses. Journal of Experimental Biology 210, 187-197. https://doi.org/10.1242/jeb.02611 (查阅于 2026 年 10 月 18 日)
- Dagg, A. I. (1974). The locomotion of the camel (Camelus dromedarius). Journal of Zoology 174, 67-78. https://doi.org/10.1111/j.1469-7998.1974.tb03144.x (查阅于 2026 年 10 月 18 日)
- Basu, C. K., Deacon, F., Hutchinson, J. R. and Wilson, A. M. (2019). The running kinematics of free-roaming giraffes, measured using a low cost unmanned aerial vehicle (UAV). PeerJ 7, e6312. https://doi.org/10.7717/peerj.6312 (查阅于 2026 年 10 月 18 日)
- Basu, C., Wilson, A. M. and Hutchinson, J. R. (2019). The locomotor kinematics and ground reaction forces of walking giraffes. Journal of Experimental Biology 222, jeb159277. https://doi.org/10.1242/jeb.159277 (查阅于 2026 年 10 月 18 日)
- Hutchinson, J. R., Famini, D., Lair, R. and Kram, R. (2003). Are fast-moving elephants really running? Nature 422, 493-494. https://doi.org/10.1038/422493a (查阅于 2026 年 10 月 18 日)
- Hutchinson, J. R. et al. (2006). The locomotor kinematics of Asian and African elephants: changes with speed and size. Journal of Experimental Biology 209, 3812-3827. https://doi.org/10.1242/jeb.02443 (查阅于 2026 年 10 月 18 日)
- Wilson, A. M. et al. (2013). Locomotion dynamics of hunting in wild cheetahs. Nature 498, 185-189. https://doi.org/10.1038/nature12295 (查阅于 2026 年 10 月 18 日)
- Usherwood, J. R. and Wilson, A. M. (2005). No force limit on greyhound sprint speed. Nature 438, 753-754. https://doi.org/10.1038/438753a (查阅于 2026 年 10 月 18 日)
- Dawson, T. J. and Taylor, C. R. (1973). Energetic cost of locomotion in kangaroos. Nature 246, 313-314. https://doi.org/10.1038/246313a0 (查阅于 2026 年 10 月 18 日)
- Rubenson, J., Heliams, D. B., Lloyd, D. G. and Fournier, P. A. (2004). Gait selection in the ostrich: mechanical and metabolic characteristics of walking and running with and without an aerial phase. Proceedings of the Royal Society B 271, 1091-1099. https://doi.org/10.1098/rspb.2004.2702 (查阅于 2026 年 10 月 18 日)
- Weyand, P. G. et al. (2000). Faster top running speeds are achieved with greater ground forces not more rapid leg movements. Journal of Applied Physiology 89, 1991-1999. https://doi.org/10.1152/jappl.2000.89.5.1991 (查阅于 2026 年 10 月 18 日)
- World Athletics, World records, men's 100 m, 9.58 s (Berlin, 16 August 2009). https://worldathletics.org/records/by-category/world-records (查阅于 2026 年 10 月 18 日)
- Lindstedt, S. L. et al. (1991). Running energetics in the pronghorn antelope. Nature 353, 748-750. https://doi.org/10.1038/353748a0 (查阅于 2026 年 10 月 18 日)
- Herbin, M. et al. (2007). Gait parameters of treadmill versus overground locomotion in mouse. Behavioural Brain Research 181, 173-179. https://doi.org/10.1016/j.bbr.2007.04.001 (查阅于 2026 年 10 月 18 日)
- Zug, G. R. (1974). Crocodilian galloping: an unique gait for reptiles. Copeia 1974, 550-552. https://doi.org/10.2307/1442557 (查阅于 2026 年 10 月 18 日)
- Farley, C. T. and Ko, T. C. (1997). Mechanics of locomotion in lizards. Journal of Experimental Biology 200, 2177-2188. https://doi.org/10.1242/jeb.200.16.2177 (查阅于 2026 年 10 月 18 日)
- Science Museum Group Collection, The Horse in Motion (book by J. D. B. Stillman with photographs by Eadweard Muybridge, 1882). https://collection.sciencemuseumgroup.org.uk/objects/co8452654/the-horse-in-motion (查阅于 2026 年 10 月 16 日)
- Science Museum Group Collection, Eadweard Muybridge. https://collection.sciencemuseumgroup.org.uk/people/ap28178/muybridge-eadweard (查阅于 2026 年 10 月 16 日)
- Khan Academy (Smarthistory), Eadweard Muybridge, The Horse in Motion. https://www.khanacademy.org/humanities/becoming-modern/early-photo/early-photo-france/a/eadweard-muybridge-the-horse-in-motion (查阅于 2026 年 10 月 16 日)
- Internet Archive, J. D. B. Stillman, The Horse in Motion as Shown by Instantaneous Photography (1882). https://archive.org/details/horseinmotionass00stilrich (查阅于 2026 年 10 月 16 日)
- Vincelette, A. (2023). The characteristics, distribution, function, and origin of alternative lateral horse gaits. Animals 13, 2557. https://doi.org/10.3390/ani13162557 (查阅于 2026 年 10 月 26 日)
- Zips, S., Peham, C., Scheidl, M., Licka, T. and Girtler, D. (2001). Motion pattern of the toelt of Icelandic horses at different speeds. Equine Veterinary Journal 33 (S33), 109-111. https://doi.org/10.1111/j.2042-3306.2001.tb05371.x (查阅于 2026 年 10 月 26 日)
- Nicodemus, M. C. and Clayton, H. M. (2003). Temporal variables of four-beat, stepping gaits of gaited horses. Applied Animal Behaviour Science 80, 133-142. https://doi.org/10.1016/S0168-1591(02)00219-8 (查阅于 2026 年 10 月 26 日)
- Nicodemus, M. C. and Slater, J. K. (2009). Forelimb kinematics of the flat walk and fox trot of the Missouri Fox Trotter. Comparative Exercise Physiology 6, 149-156. https://doi.org/10.1017/S1755254010000048 (查阅于 2026 年 10 月 26 日)
- Simonato, S. P. et al. (2021). 3D kinematic of the thoracolumbar spine in Mangalarga Marchador horses performing the marcha batida gait and being led by hand. PLOS ONE 16, e0253697. https://doi.org/10.1371/journal.pone.0253697 (查阅于 2026 年 10 月 26 日)
- Andersson, L. S. et al. (2012). Mutations in DMRT3 affect locomotion in horses and spinal circuit function in mice. Nature 488, 642-646. https://doi.org/10.1038/nature11399 (查阅于 2026 年 10 月 26 日)
- Promerová, M. et al. (2014). Worldwide frequency distribution of the 'Gait keeper' mutation in the DMRT3 gene. Animal Genetics 45, 274-282. https://doi.org/10.1111/age.12120 (查阅于 2026 年 10 月 26 日)
- Paso Fino Horse Association, The gaits. https://pfha.org/the-breed/the-gaits/ (查阅于 2026 年 10 月 26 日)
- Full, R. J. and Tu, M. S. (1991). Mechanics of a rapid running insect: two-, four- and six-legged locomotion. Journal of Experimental Biology 156, 215-231. https://doi.org/10.1242/jeb.156.1.215 (查阅于 2026 年 10 月 26 日)
- Wahl, V., Pfeffer, S. E. and Wittlinger, M. (2015). Walking and running in the desert ant Cataglyphis fortis. Journal of Comparative Physiology A 201, 645-656. https://doi.org/10.1007/s00359-015-0999-2 (查阅于 2026 年 10 月 26 日)
- Pfeffer, S. E., Wahl, V. L., Wittlinger, M. and Wolf, H. (2019). High-speed locomotion in the Saharan silver ant, Cataglyphis bombycina. Journal of Experimental Biology 222, jeb198705. https://doi.org/10.1242/jeb.198705 (查阅于 2026 年 10 月 26 日)
- Hsieh, S. T. and Lauder, G. V. (2004). Running on water: three-dimensional force generation by basilisk lizards. PNAS 101, 16784-16788. https://doi.org/10.1073/pnas.0405736101 (查阅于 2026 年 10 月 26 日)
- Glasheen, J. W. and McMahon, T. A. (1996). A hydrodynamic model of locomotion in the basilisk lizard. Nature 380, 340-342. https://doi.org/10.1038/380340a0 (查阅于 2026 年 10 月 26 日)
- Irschick, D. J. and Jayne, B. C. (1999). Comparative three-dimensional kinematics of the hindlimb for high-speed bipedal and quadrupedal locomotion of lizards. Journal of Experimental Biology 202, 1047-1065. https://doi.org/10.1242/jeb.202.9.1047 (查阅于 2026 年 10 月 26 日)
- Renous, S., Gasc, J.-P., Bels, V. L. and Wicker, R. (2002). Asymmetrical gaits of juvenile Crocodylus johnstoni, galloping Australian crocodiles. Journal of Zoology 256, 311-325. https://doi.org/10.1017/S0952836902000353 (查阅于 2026 年 10 月 26 日)
- Hutchinson, J. R. et al. (2019). Divergent evolution of terrestrial locomotor abilities in extant Crocodylia. Scientific Reports 9, 19302. https://doi.org/10.1038/s41598-019-55768-6 (查阅于 2026 年 10 月 26 日)
- Hutchinson, J. R. and Pringle, E. V. (2024). Footfall patterns and stride parameters of Common hippopotamus (Hippopotamus amphibius) on land. PeerJ 12, e17675. https://doi.org/10.7717/peerj.17675 (查阅于 2026 年 10 月 26 日)
- Gatesy, S. M. and Biewener, A. A. (1991). Bipedal locomotion: effects of speed, size and limb posture in birds and humans. Journal of Zoology 224, 127-147. https://doi.org/10.1111/j.1469-7998.1991.tb04794.x (查阅于 2026 年 10 月 26 日)
- Griffin, T. M. and Kram, R. (2000). Penguin waddling is not wasteful. Nature 408, 929. https://doi.org/10.1038/35050167 (查阅于 2026 年 10 月 26 日)
- Muir, G. D., Gosline, J. M. and Steeves, J. D. (1996). Ontogeny of bipedal locomotion: walking and running in the chick. Journal of Physiology 493, 589-601. https://doi.org/10.1113/jphysiol.1996.sp021406 (查阅于 2026 年 10 月 26 日)
- Pontzer, H., Raichlen, D. A. and Rodman, P. S. (2014). Bipedal and quadrupedal locomotion in chimpanzees. Journal of Human Evolution 66, 64-82. https://doi.org/10.1016/j.jhevol.2013.10.002 (查阅于 2026 年 10 月 26 日)
- Hildebrand, M. (1967). Symmetrical gaits of primates. American Journal of Physical Anthropology 26, 119-130. https://doi.org/10.1002/ajpa.1330260203 (查阅于 2026 年 10 月 26 日)
- Shapiro, L. J. and Raichlen, D. A. (2004). Lateral sequence walking in infant Papio cynocephalus. American Journal of Physical Anthropology 126, 205-213. https://doi.org/10.1002/ajpa.20049 (查阅于 2026 年 10 月 26 日)
- Cartmill, M., Lemelin, P. and Schmitt, D. (2002). Support polygons and symmetrical gaits in mammals. Zoological Journal of the Linnean Society 136, 401-420. https://doi.org/10.1046/j.1096-3642.2002.00038.x (查阅于 2026 年 10 月 26 日)
- Biewener, A. A. (1983). Allometry of quadrupedal locomotion: the scaling of duty factor, bone curvature and limb orientation to body size. Journal of Experimental Biology 105, 147-171. https://doi.org/10.1242/jeb.105.1.147 (查阅于 2026 年 10 月 26 日)
- Garland, T. (1983). The relation between maximal running speed and body mass in terrestrial mammals. Journal of Zoology 199, 157-170. https://doi.org/10.1111/j.1469-7998.1983.tb02087.x (查阅于 2026 年 10 月 26 日)
- Hirt, M. R., Jetz, W., Rall, B. C. and Brose, U. (2017). A general scaling law reveals why the largest animals are not the fastest. Nature Ecology & Evolution 1, 1116-1122. https://doi.org/10.1038/s41559-017-0241-4 (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Eudorcas thomsonii (Thomson's gazelle). https://animaldiversity.org/accounts/Eudorcas_thomsonii/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Odocoileus virginianus (white-tailed deer). https://animaldiversity.org/accounts/Odocoileus_virginianus/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Alces alces (moose). https://animaldiversity.org/accounts/Alces_alces/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Bison bison (American bison). https://animaldiversity.org/accounts/Bison_bison/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Canis lupus (grey wolf). https://animaldiversity.org/accounts/Canis_lupus/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Vulpes vulpes (red fox). https://animaldiversity.org/accounts/Vulpes_vulpes/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Lycaon pictus (African wild dog). https://animaldiversity.org/accounts/Lycaon_pictus/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Crocuta crocuta (spotted hyena). https://animaldiversity.org/accounts/Crocuta_crocuta/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Procyon lotor (raccoon). https://animaldiversity.org/accounts/Procyon_lotor/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Dromaius novaehollandiae (emu). https://animaldiversity.org/accounts/Dromaius_novaehollandiae/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Struthio camelus (ostrich). https://animaldiversity.org/accounts/Struthio_camelus/ (查阅于 2026 年 10 月 26 日)
- Animal Diversity Web, University of Michigan Museum of Zoology, Macropus rufus (red kangaroo). https://animaldiversity.org/accounts/Macropus_rufus/ (查阅于 2026 年 10 月 26 日)
解说文章与模拟采用 CC BY-NC-SA 4.0 许可,另有说明的除外。
更多展品

恐龙大小对比:172 种真实大小的史前动物
一座 600 m 宽的园区,按时代排列 172 种按真实大小呈现的史前动物,从第一批恐龙到霸王龙。
冰河世纪动物有哪些?近看猛犸象与剑齿猫的真实体型
在宽 600 m 的公园里,近看真猛犸象、剑齿猫等 65 种末次冰期动物的真实体型,用时间滑块跨越 50,000 年。
人类进化了多少年?沿时间之路比较古人类的真实身高
Lucy 身高约 1.1 m。沿 700 万年的人类近亲时间线漫步,按真实大小与它们并肩站立。
摆钟原理:调节摆长,观察走时变化
摆钟用一根 99.4 cm 长的摆杆计数秒。改变摆长、温度和地球上的位置,切换四种擒纵机构,比较每天会产生多少秒误差。
风磨和水磨原理:它们是怎样工作的
荷兰风磨的风帆直径相当于八层楼高,但在 7 m/s 时仍只取得约五分之一的风功率。
自动售货机识别假币:跟随硬币进入内部
100 韩元硬币不会被磁铁吸引,但售货机内部正是用磁铁将它与铜制仿币区分。