図 32しくみ館
馬の走り方のしくみ:常歩・速歩・駈歩・襲歩
1878年、マイブリッジのカメラは、襲歩の馬が実際に四肢すべてを宙に浮かせることを示しました。ただし脚は体の下にたたまれています。地面をまったく離れずに速く走る動物もいます。
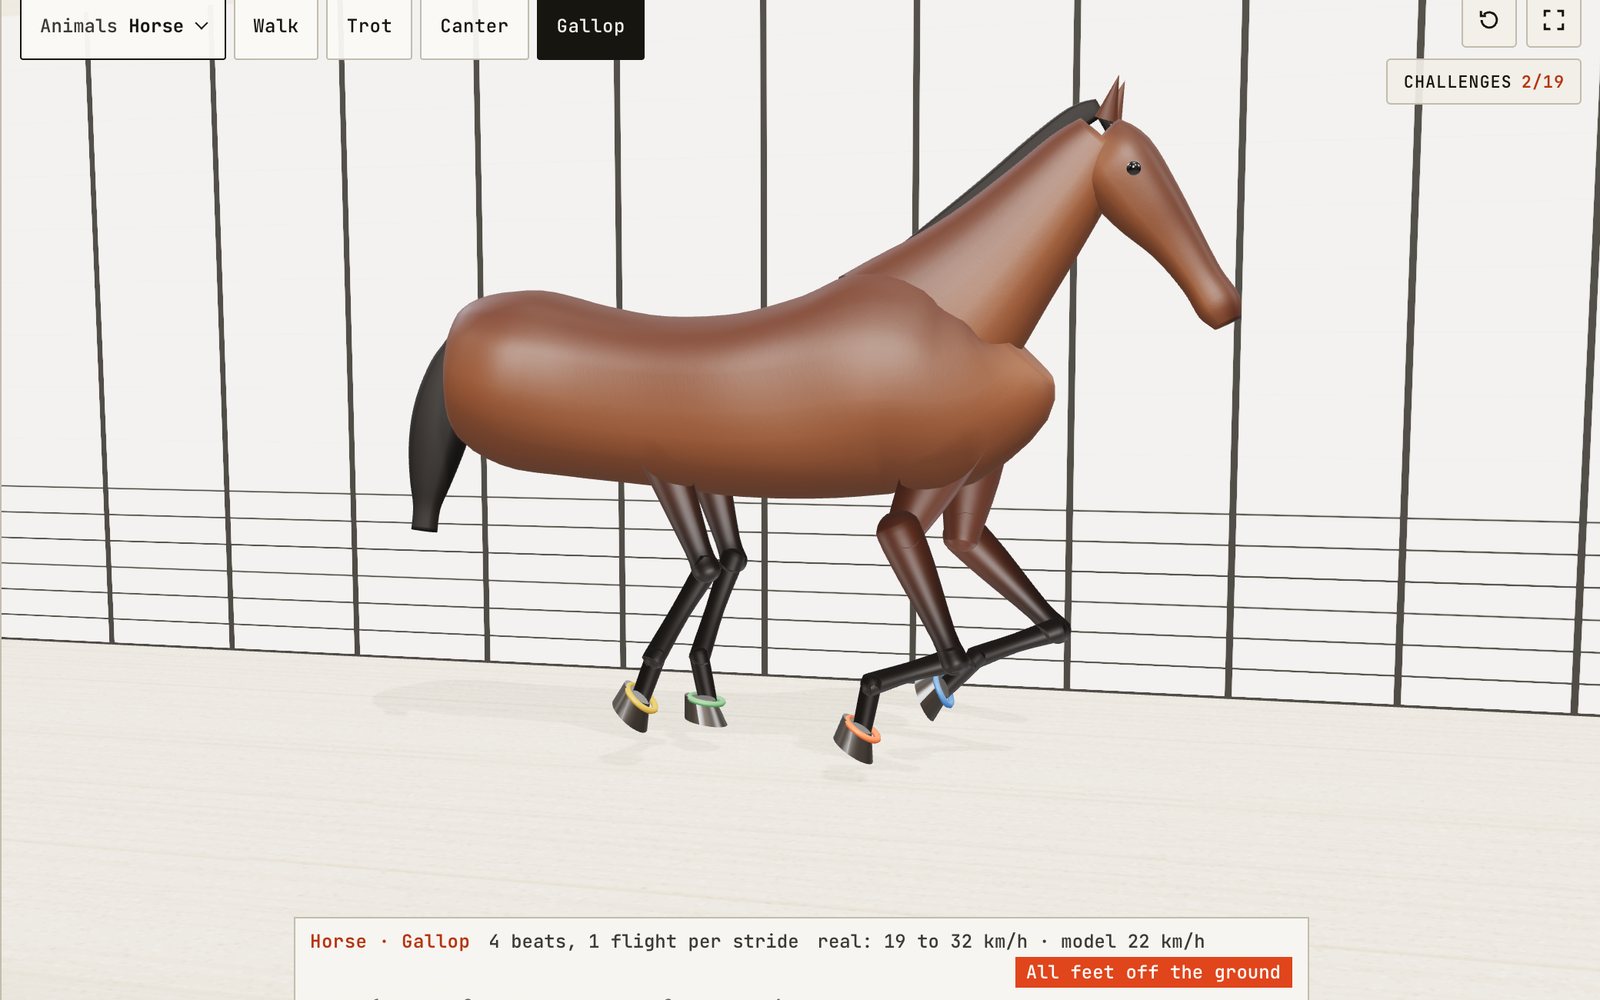
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 17 なかが透けて見える馬馬はコードで組み立てています。肩、胴、尻の主な筋肉のかたまりの上に滑らかな皮膚をかぶせ、内側に骨格があります。最初はゆっくりした襲歩で始まり、四肢がすべて宙に浮いた瞬間に少し止まります。馬はその場で走り、地面が足元を後ろへ流れるので、地面に着いたひづめは砂の上で動きません。馬の上にある「動物」から、52種のうち一つを選べます。
ドラッグで回転、ホイールか二本指で拡大します。
展示が示すこと
馬はどうやって走るのでしょうか。馬には生まれつきの歩様が四つあり、いちばん速く走る方法が襲歩です。襲歩では四本の足が順番に地面に着く四拍のリズムで進み、1ストライドに一度、四本の足がすべて地面を離れて体の下にまとまります。馬が全力で走っているときは、襲歩をしているのです。
馬が目の前を速歩で駆け抜けると、脚はぼやけた影になります。リズムは聞こえても、どの足がいつ着くのかは目で追えません。歴史の大部分で、だれにも見えませんでした。画家たちは想像で描いていたのです。この展示は、馬の四つの自然な歩様、つまり常歩、速歩、駈歩、襲歩を、足の着地一つひとつが追えるところまでゆっくりにします。そのうえで、ネコからゾウまで、ほかの19種の動物にも同じ見方を当てはめるので、どの歩様が共通で、どれが珍しいのかが分かります。
馬はコードで組み立てています。肩、胴、尻の主な筋肉のかたまりの上に滑らかな皮膚をかぶせ、たてがみと尾、内側の骨格を付けました。馬はその場で走り、砂と背景が後ろへ流れていきます。トレッドミルと同じしくみです。最初はゆっくりした襲歩で始まり、四本の足がすべて宙に浮いた瞬間に少し止まります。舞台の左上にある「動物」を選ぶと、シルエット、検索、グループから52種のうち一つを選べ、隣のボタンで歩様を選べます。その下のパネルは着地順の図です。脚ごとに一行があり、1ストライドのあいだにその足が地面に着いている区間に、色の付いた棒が引かれます。図を横切る縦線が現在の時刻です。馬のひづめにはそれぞれ、図の行と同じ色の帯が付いていて、図の上の表示欄は地面に着いている足の数を数えます。数がゼロになると、そう表示されます。
「操作」タブには、さらに機能があります。再生速度は実時間の十分の一まで下げられます。「ストライド位置」は動物を止めて、1ストライドを手で動かせるようにします。「内部を見る」は馬の皮膚を薄れさせて骨格を見せます。「ひづめの跡」は足が着いた場所に印を残し、「着地音」は着地のたびにクリック音を鳴らし、「ヒト 1.75 m」は動物の横に人を立たせて大きさを比べさせます。操作の下には、19の課題、横・上・前からの視点とひづめの軌跡のボタン、17の歩様がある18の馬の品種、歩様エディタ、52種の動物と108の歩様の表、記録表つきの100 m競走、マイブリッジのカメラのような十二コマの帯があります。
拍と接地している足を数える
馬に詳しい人は、歩様を拍で言い表します。1ストライドのあいだに、ひづめが別々に地面を打つ音が何回聞こえるか、ということです。二本の足が同じ瞬間に着けば、一拍になります。ストライドとは脚の動きの完全な一周期で、ある足が着地してから、同じ足がもう一度着地するまでを指します。
図に見えるものの大半は、さらに二つの数で説明できます。一つめは、各足が1ストライドのうちどれだけ地面に着いているかという割合で、バイオメカニクスの研究者はこれを接地率と呼びます。モデルの馬の常歩は 0.62 なので、各ひづめは1ストライドの 62% のあいだ地面に着いています。速歩と駈歩は 0.40、襲歩は 0.30 です。二つめは、着地の順序と、その間隔です。1960年代に多くの馬の歩様を撮影したミルトン・ヒルデブランドは、常歩、速歩、側対歩のような左右対称の歩様は、二つの数だけで表せることを示しました。接地率と、同じ側の後ろ足に対する前足の遅れです。
この二つを合わせると、宙に浮く瞬間を予測できます。常歩のように、どの足も1ストライドの半分より長く着いていれば、足が一本も地面に着かない時間はありません。各足が着いている時間が半分より短くなると隙間が生まれ、それが実際に開くかどうかは、着地の間隔の取り方で決まります。表示欄がこの隙間を数えてくれます。「滞空なし」「1ストライドに滞空1回」「1ストライドに滞空2回」のいずれかです。
常歩: いつも二本か三本が着いている
常歩は四拍の歩様です。各足が別々の拍で、左後、左前、右後、右前の順に着きます。モンタナ州立大学エクステンションの解説は、いつも二本か三本の足が地面に着いていて、浮いている瞬間はないとも記しています。モデルもそのとおりに動きます。常歩を動かすと、表示欄は二本と三本のあいだを行き来し、それより少なくなりません。
拍が四分の一ストライドずつ等間隔に並ぶので、馬の下にはいつも三角形か一組の脚があります。そのため常歩は最も安定した歩様で、馬は長い距離や足場の悪い地面でこれを使います。モンタナ州立大学は時速 3.5〜5 マイルとしていて、およそ 5.6〜8 km/h です。
速歩: 斜めの二組
速歩は二拍です。左前と右後が同時に着き、次に右前と左後が着きます。斜めの組はほとんど一本の脚のように働くので、体は斜めの線で支えられます。解説の前方斜めからの視点で速歩を見ると、二つの組がはさみの刃のように入れ替わります。
二つの組のあいだには、足が一本も地面に着かない短い浮遊があります。モデルの速歩は、1ストライドの約 20% を空中で過ごし、それが二つの隙間に分かれます。モンタナ州立大学は、浮遊がいちばん長いのはスタンダードブレッドの伸長速歩で、ハクニーのように高く上げた、まとまった動きの品種では、浮遊のない速歩になることもあると述べています。平均的な速歩の速さは、同大学によると時速 7〜10 マイル、約 11〜16 km/h です。乗り手にとって速歩は揺れる歩様です。着地のたびに体が少し沈み、次の組で再び押し上げられます。
駈歩: 三拍と手前
駈歩は三拍です。右手前の馬について、モンタナ州立大学は着地の順を、左後、次に右後と左前が同時、最後に右前とし、右前が地面を離れたあとに浮遊の期間が続くと記しています。最後に着く脚は、いちばん前まで伸びるので、先導肢と呼ばれます。右へ曲がる馬は、ふつう右の脚を手前にします。
図で手前が見えます。駈歩に切り替えて三拍めを見てください。右前が単独で着き、その後の隙間が、1ストライドで唯一の滞空です。モンタナ州立大学によると、この瞬間は、乗り手が手前の変更を求めるのにいちばんよい時です。古い型を押さえておく足が地面にないからです。同大学は駈歩の平均の速さを時速 6〜10 マイル、約 10〜16 km/h とし、抑制された襲歩とも呼んでいます。
襲歩: 四拍めと滞空の瞬間
襲歩は速い駈歩のように見えますし、実際、多くの点でそのとおりです。違いは真ん中の拍にあります。駈歩では、内側の後ろ足と外側の前足が同時に着きます。襲歩では後ろ足が一瞬早く着くので、一拍が二拍に分かれ、右手前なら左後、右後、左前、右前の四拍になります。浮遊は、最後の前足が地面を離れたあとに来ます。
モデルでは、各ひづめが地面に着いているのは1ストライドの 30% だけで、馬は約四分の一を空中で過ごします。解説のステップ6を開くと、この瞬間を実際の十分の一の速さで見られます。前脚は地面を蹴ったばかりで、胸の下へ折りたたまれていき、後脚は腹の下へ振り出されています。四つのひづめはすべて体の下に集まっています。モンタナ州立大学は襲歩を時速 12〜20 マイル、約 19〜32 km/h としています。競走馬はこの平均より速く走るので、表示欄は最高速度ではなく、典型的な範囲として示しています。
歩様ごとの速さ
表示欄に出るモンタナ州立大学の数値を、マイル毎時から換算したものです。
| 歩様 | 拍 | 1ストライドの滞空 | モンタナ州立大学 | km/h |
|---|---|---|---|---|
| 常歩 | 4 | 0 | 時速 3.5〜5 マイル | 5.6〜8 |
| 速歩 | 2 | 2 | 時速 7〜10 マイル | 11〜16 |
| 駈歩 | 3 | 1 | 時速 6〜10 マイル | 10〜16 |
| 襲歩 | 4 | 1 | 時速 12〜20 マイル | 19〜32 |
駈歩と速歩の範囲は重なっています。馬は決まった一つの速さで歩様を変えるわけではなく、よく訓練された速歩の馬は、ほかの馬が駈歩で走るより速く速歩できます。
モデル自体の動きはもっとゆっくりです。四つの歩様の地面に対する速さは 3.5、9.3、11.6、22.4 km/h で、これはモデルの各ひづめが、実際の馬より短い距離を体の下で掃くためです。表示欄は両方の数値を「実測」と「モデル」と示します。モデルで大切なのは着地のタイミングで、図はどの速さでもそれを示します。
馬が歩様を変える理由
馬は理屈の上では、速歩に切り替えずに、常歩のままどんどん速くすることもできます。1981年、ドナルド・ホイトとリチャード・テイラーは、ポニーをトレッドミルで訓練し、一定の距離を進むのに使う酸素の量を測りました。各歩様には、移動のコストがいちばん低くなる速さがあり、それより速くても遅くても、コストが上がりました。同じポニーを自由に動かすと、このいちばん低いコストの点に近い速さを選び、その間で歩様を切り替えました。
つまり、各歩様には安上がりな範囲があり、馬はある範囲から次の範囲へ引き継がれるあたりで歩様を変えます。滞空の瞬間も、この話の一部です。速歩と襲歩では脚がばねのように働き、体が着地するときに腱が伸び、体が上がるときに縮んで、そのままでは失われるエネルギーをためます。
大きさ、歩幅、フルード数
ネコとゾウを続けて動かすと、ネコの脚はぼやけ、ゾウの脚はスローモーションのように動きます。小さい動物は、1秒あたりの歩数が多くなります。ノーマン・ヘグランドとリチャード・テイラーは、ハツカネズミから馬までの動物を比べ、速歩から襲歩に変わる速さで、小さな動物のほうが大きな動物よりずっと多くの歩数を刻むことを見つけました。また、同等の速さでは、体重1キログラムあたりの1歩のエネルギーが、大きさによらずほぼ同じであることも分かりました。
ロバート・マクニール・アレクサンダーとアラン・ジェイズは、大きさの違う動物を公平に比べる方法を提案しました。速さの二乗を、重力と脚の長さの積で割ると、単位のない数ができます。これがフルード数です。大きさの違う動物が同じフルード数で動くとき、同じ歩様を同じ割合で使う傾向があります。長さを合わせた小さな振り子と大きな振り子が、同じように揺れるのと似ています。モデルもこの考えを使っていて、動物のストライドの周期は脚の長さの平方根に比例して伸びるので、ハツカネズミもキリンも、その大きさに自然に見える調子で動きます。
ヒトは秒速約 2 m で歩きから走りに変わります。ヒトの脚の長さでは、これはフルード数が 0.5 に近い値です。アレクサンダーは、フルード数が1に近づくと、硬い脚の上を体が弧を描いて越えていくときに体が浮き上がってしまうため、歩くことが力学的に不可能になると示しました。
人が馬に教える歩様
モンタナ州立大学は、野生の馬の自然な歩様として、常歩、速歩、側対歩、襲歩を挙げています。飼いならされるなかで、一部は形を変えて身についた歩様になり、ゆっくりした軽い駈歩、ランニングウォーク、ラック、ステッピングペース、フォックストロットなどがあります。この三つの型は、動物のメニューに入っています。
側対歩は速歩と同じ二拍の歩様ですが、同じ側の二本の脚が一緒に動きます。左後と左前、次に右後と右前です。モンタナ州立大学は、これを自然な歩様に挙げていて、スタンダードブレッドは速歩でも側対歩でも競走に使われます。図でスタンダードブレッドの二つの歩様を比べてください。棒の長さは同じで、組だけが変わります。
アイスランドホースには、モンタナ州立大学の説明で五つの自然な歩様があり、トルトと、短い距離なら時速 40 マイル(64 km/h)に達するといわれる側対歩が含まれます。トルトは常歩の四拍の順を保ちますが、各足が地面に着いている時間が短いので、馬は一本か二本の足で支えられ、地面を離れることはありません。乗り手はほとんど動かずに座っていられます。テネシーウォーキングホースのランニングウォークも似ていて、歩幅がもっと長くなります。ロビヤール、ファウ、ウィルソンは、歩様を持つ品種のものも含めて、馬の歩様を着地のタイミングで分類しました。これは図が示す情報と同じです。
52種の動物、一つの図
操作の下の表には、この展示のすべての動物と歩様が、拍、1ストライドの滞空、出典が示す速さ(ある場合)とともに並んでいます。行を選ぶと、その動物が舞台に出ます。グループ(ひづめ、肉球、足指、霊長類、二本足、横に広げた脚、六本脚)で絞り込むことも、名前で検索することもできます。舞台の上の「動物」ボタンでも、同じ選択をシルエットの並びから行えます。シルエットは、その動物自身の脚の長さから描かれています。
たくさんの図を読むと、いくつかの傾向が目につきます。四本脚の動物は、ほとんどすべてが馬と同じ順、左後、左前、右後、右前で歩きます。ヒルデブランドはこれを側方着地順の常歩と呼び、大きさのまったく違う哺乳類で見つけました。メニューにあるネコも、このように歩きます。違いは速く動くときに現れ、動物は速歩型、側対歩型、襲歩型、バウンド型に分かれます。
ラクダは側対歩
ヒトコブラクダに切り替えると、左の脚が一緒に前へ振れ、続いて右の脚が振れます。体は左右に揺れます。アン・イニス・ダッグの1974年の研究では、ヒトコブラクダはふだんから側対歩で、速歩をするところは一度も見られませんでした。襲歩もめったにせず、速く距離を稼ぐには側対歩を使いました。脚の長い動物が側対歩をする理由の一つとして、同じ側の後ろ足が前足にぶつからないことが挙げられています。二本が出合う代わりに、一緒に前へ振れるからです。
浮かずに速い: キリンとゾウ
急ぐときに、すべての動物が地面を離れるわけではありません。クリストファー・バスたちは、南アフリカで自由に動き回るキリンをドローンで撮影しました。成獣のキリンは、秒速 3.4〜6.9 m、約 12〜25 km/h で、回転襲歩を使って走り、四本の足がすべて地面を離れた成獣はいませんでした。短い滞空が見られたのは、若いキリンだけです。以前の研究で測られたキリンの常歩は、馬と同じ側方着地順の常歩です。
ゾウは最もはっきりした例です。ジョン・ハッチンソンたちは、秒速 6.8 m、約 24 km/h までで動くアジアゾウを測り、四本の足がすべて地面を離れることは決してないことを見つけました。それでも、その速さでの体の上下の動きは、歩きより走りに近いものでした。その後のアジアゾウとアフリカゾウの研究では、速さの全範囲にわたって側方着地順の足運びを保つことが分かりました。モデルのゾウの速い歩きは、接地率が 0.52 で、図に隙間が開くことはありません。
1ストライドに二度の滞空: イヌ、グレイハウンド、チーター
馬の襲歩は横断襲歩です。着地が左右に交差し、後ろ左、後ろ右、前左、前右の順に進みます。多くのイヌやネコは、違う襲歩をします。回転襲歩では、前足が後ろ足と逆の順に着くので、順序が円を描きます。後ろ左、後ろ右、前右、前左です。
グレイハウンドやチーターのような速い走者は、二度めの滞空を加えます。後ろ足が地面を蹴ったあとは脚を伸ばして飛び、前足が離れたあとは、脚を体の下にまとめて、もう一度飛びます。柔らかい背中は滞空のたびに伸び、丸まって、歩幅を伸ばします。チーターの襲歩を選んで、図の中の二つの影の付いた隙間を探してください。アラン・ウィルソンのグループがボツワナの野生のチーターに付けた首輪は、最高秒速 25.9 m、約 93 km/h を記録しました。ジェームズ・アッシャーウッドとウィルソンは、カーブを走るグレイハウンドが、脚により強く押さなければならないのに速さを保つことを見つけ、脚が出せる力が最高速度を決めているわけではないことを示唆しました。
バウンドとホップ: ウサギ、リス、カンガルー
小さな動物は、一対の脚が一緒に働く歩様をよく使います。バウンドでは、後ろ足の二本が一緒に着き、続いて前足の二本が一緒に着くので、二拍で滞空が二回になります。メニューにあるウサギの歩様である半バウンドでは、後ろ足は一緒に着きますが、前足は一本ずつ着くので、三拍になります。ヒルデブランドは、どちらも襲歩と同じく非対称の歩様と呼びました。一対の左右の脚が、半ストライドずれて動かないからです。
アカカンガルーは、これを極限まで進めます。両方の後ろ脚が一体で動くので、1回のホップは一拍で滞空一回です。テレンス・ドーソンとリチャード・テイラーは、アカカンガルーをトレッドミルに乗せ、ホップを始めてからは、速くなっても1分あたりのエネルギー消費が増えないことを見つけました。走る動物では、エネルギー消費は速さとともに増えます。後ろ脚の長い腱が、着地のたびにエネルギーをためて返します。
二本足: ヒトとダチョウ
歩いているヒトは、いつも片足が地面に着いていて、足を替える瞬間には両方が着いています。走ると、1ストライドに二度の滞空が開き、足が地面を蹴るたびに一度ずつです。ピーター・ウェイアンドたちは、速いスプリンターが、遅い人より脚を速く振り出しているのではなく、地面をより強く押していて、それが1歩ごとにより遠くへ進ませていることを見つけました。記録に残る最速の100 mは、2009年にベルリンで出た 9.58 秒で、平均 37.58 km/h になり、これが競走でのヒトのレーンです。
ダチョウは、走ることと飛ぶことが別の考えであることを示します。ヨナス・ルーベンソンたちは、ダチョウをトレッドミルの上で、秒速 0.8〜6.7 m で測りました。中くらいの速さでは、曲げた脚で弾みながら、いつも一本の足を着けて、滞空なしで走りました。この歩様は滞空なしの走りと呼ばれます。速くなると、短い滞空が現れました。メニューにはダチョウの三つの歩様がすべて入っているので、比べられます。
横に広げた脚: ワニとトカゲ
ワニとトカゲは、脚の上部を体の横に張り出しています。トカゲは速歩をし、斜めの脚を一緒に動かしながら、体を左右に曲げます。クレア・ファーリーとティム・コーは、速歩するトカゲにかかる力を測り、走る哺乳類と同じエネルギーの弾み方を見つけました。ワニはふつう、体を地面から持ち上げた高い歩きで歩きますが、小さなワニは襲歩もできます。ジョージ・ズーグが1974年に、爬虫類ではほとんど知られていない歩様と記したものです。モデルではほかの動物と同じく脚を平らな面の中で描いているので、横への張り出しは広い構えにしか現れません。
脚が振りの途中で折れ曲がる理由
馬の前脚が前へ振れるときを見ると、下半分が、馬の世界で膝と呼ばれる関節で鋭く後ろへ折れます。この関節はヒトの手首に当たります。後脚の飛節は足首に当たり、後脚の高い位置で前を向く関節、後膝は、ヒトの膝に当たります。前膝と飛節より下には、筋肉がほとんどありません。長い管骨が一本、繋の骨、そして馬が立っている一本の指の爪にあたる蹄があるだけです。
筋肉を高い位置に集めると、下肢が軽くなるので、1秒に何度も前へ振るのに力がほとんどいりません。振りの途中で脚を折りたたむと脚が短くなり、これも素早く振るのに役立ち、ひづめが地面から離れます。モデルも同じで、歩様が速いほど、前膝と飛節がより深く折れます。「内部を見る」をオンにして、皮膚の内側の骨を見てください。
肩も変わっています。馬には鎖骨がないので、肩甲骨は筋肉だけで胴につながっています。部品の一覧で肩甲骨を選ぶと、肋骨に対してどこにあるかが見えます。
マイブリッジと宙に浮く馬
写真が動きを止められるようになる前、画家はよく襲歩の馬を、いまでは飛翔襲歩と呼ばれる姿勢で描きました。前脚を前へ、後ろ脚を後ろへ伸ばし、四本とも地面を離れた姿です。馬が完全に地面を離れることがあるのか、そのときどんな姿勢なのかは、本当に論争になっていました。
サイエンス・ミュージアム・グループによると、元カリフォルニア州知事でセントラル・パシフィック鉄道の社長だったリーランド・スタンフォードは、これに決着をつけるため、1872年に写真家のエドワード・マイブリッジを雇いました。1877年、マイブリッジはパロアルトのスタンフォードの農場で、十二台のカメラを一列に並べて作業を再開し、馬が通ると電気でそれぞれのシャッターが切れるようにしました。1882年の本『動いている馬』(The Horse in Motion)についてのサイエンス・ミュージアム・グループの記録は、馬が細い糸を切ってシャッターを作動させたと記しています。
スティルマンの1882年の本は、1878年の装置を説明しています。パロアルトにあるリーランド・スタンフォードの私設の走路の西側に建物が建てられ、そのなかに、二重のシャッターを備えた十二台のカメラが、21 インチ間隔で置かれました。一コマごとの撮影時間は、五千分の一秒以下とされています。モデルの背景の線は同じ 21 インチ間隔で描かれていて、操作の下のコマの帯も、同じ考えで1ストライドを十二枚の絵に分けています。
写真は、襲歩の馬が四本の足を同時に宙に浮かせることを示しましたが、それは脚が体の下にまとまっているときだけでした。脚を伸ばしているときには、少なくとも一本の足がまだ地面に着いています。カーン・アカデミーによるこのシリーズの歴史は、その後、飛翔襲歩が美術からも競馬新聞の挿絵からも消えたと述べています。
マイブリッジはその後、動いている多くの動物と人を撮影し、1887年に781枚の図版からなる『動物の運動』(Animal Locomotion)を出しました。スタンフォードの友人J・D・B・スティルマンは、パロアルトでの仕事について1882年に本を書き、インターネット・アーカイブがその全文を所蔵しています。
馬の品種と歩様
たいていの馬は、常歩、速歩、駈歩、襲歩をします。品種によっては、自分だけの歩様が加わり、乗り手はそうした馬を歩様の馬と呼びます。アンデションたちは2012年に、遺伝子 DMRT3 の一か所の変化がこうした特別な歩様を可能にし、繋駕速歩競走の馬も助けることを見つけました。プロメロバーたちは続いて、141品種の4,396頭の馬を調べ、68品種でこの変異を見つけました。変異の頻度が 50% を超えた品種は、いずれも歩様の馬か、繋駕競走用に育てられた品種でした。
「馬の品種と歩様」では、サラブレッドから済州馬まで、18品種のうち一つを選び、続いてその歩様の一つを選べます。舞台の馬は品種の毛色になり、その歩様で動きます。表には、各歩様の側方先行着地(LAP)、つまり後ろ足が着いてから同じ側の前足が着くまでの1ストライドに占める割合と、接地率、出典が示す速さの範囲が載っています。
LAP を使うと、歩様がきれいに並びます。ヴィンセレットの2023年のこれらの歩様についてのレビューでは、常歩は 0.25 に近く、四本の足が四分の一ずつの等間隔で着きます。速歩は 0.5 で、斜めの足が同時に着きます。硬い側対歩は 0 に近く、片側の二本の足がほとんど同時に着きます。歩様の馬がすることは、すべてこのあいだにあります。
シングルフット歩様: トルト、ラック、ランニングウォーク
アイスランドホースのトルト、アメリカン・サドルブレッドとラッキングホースのラック、テネシーウォーキングホースのランニングウォークは、どれも常歩の着地順、左後、左前、右後、右前を保ちます。均等な四拍の歩様で、シングルフットと呼ばれることもあります。変わるのは、速さと、各足が地面に着いている時間です。
ズィップスたちは、23頭のアイスランドホースを、秒速 2.9、3.7、4.7 m のトルトで測りました。トルトは、定義のとおり、一本足の瞬間と二本足の瞬間を交互に繰り返しましたが、最高速度では、ストライドの 60% が四拍の側対歩に変わっていました。モデルのトルトは LAP が 0.21 で、各足は1ストライドの 42% のあいだ地面に着いているので、支持する足の数は一本まで下がり、ゼロにはなりません。
ヴィンセレットは、ランニングウォークの LAP を 0.23 から 0.17、速さを秒速 2.2〜4.0 m、ストライド時間を 0.85〜0.65 秒としています。ラックはもっと速く、秒速 2.5〜6.0 m で、競走馬では秒速 10.6 m に達し、ストライドはもっと速くなります。パソ・フィノのクラシック・フィノは、非常に収縮したラックです。小さな歩幅で、ストライドは 0.35〜0.39 秒、前への速さはほとんどありません。ペルビアン・パソのパソ・リャノは、ランニングウォークの一形態です。
崩れた速歩と崩れた側対歩
二拍の歩様を、不均等な四拍に分ける歩様がさらに二つあります。ミズーリ・フォックストロッターのフォックストロットでは、斜めの脚が一緒に地面を離れますが、前足が後ろ足の少し前に着くので、拍が近い対になります。ヴィンセレットは LAP を 0.41 から 0.32、速さを秒速 3.2〜3.7 m としています。ステッピングペース(崩れた側対歩やアンブルとも呼ばれます)では、片側の足が一緒に上がりますが、後ろ足が先に着き、LAP は 0.18 から 0.13、速さは秒速 2.9〜6.2 m です。ペルビアン・パソのソブレアンダンドも、崩れた側対歩です。
ブラジルのマンガラルガ・マルシャドールのマルシャには二つの形があります。マルシャ・バチーダでは、馬は斜めの足の組で過ごす時間が長く、マルシャ・ピカーダでは側方の組で過ごす時間が長く、どちらにも三本の足で立つ瞬間があります。シモナートたちは、マルシャ・バチーダの馬を秒速 3.34〜3.85 m で測りました。
硬い側対歩自体は、秒速 3.5〜8.1 m の二拍の側方歩様で、競走用の側対歩、つまりフライングペースは、秒速 10.5〜14 m に達し、空中の瞬間があります。済州馬、北海道和種、モンゴル馬など、東アジアのいくつかの品種が側対歩をします。
歩様エディタと支持面
歩様エディタでは、自分で歩様を書けます。三本のスライダーで、左前、右後、右前が、左後のあとの1ストライドに占める割合のどこで着くかを決め、四本めで各足が地面に着いている長さを決めます。「舞台で動かす」を押すと、その型がすぐ馬に反映されます。エディタは、一致する一覧の歩様、なければいちばん近い歩様の名前を示します。
スライダーの横には、足を上から見た図があります。地面に着いている足は結ばれて支持面になり、点は重心を示します。このモデルでは、胴の中央より少し前に置かれています。三本以上の足が着いていて、点がその輪郭の内側にあるとき、馬はその姿勢で倒れずに立ち止まっていられます。静的に安定している、ということです。二本の足しか着いていないときは、馬は線の上でバランスをとっているので、動き続けなければなりません。
カートミル、ルムラン、シュミットは、この考えで歩行の歩様を比べました。接地期の長いゆっくりした側方着地順の常歩では、1ストライドの大部分で、重心が三本の足の三角形の内側に収まります。エディタで、各足を1ストライドの 80% のあいだ着けた常歩は、およそ五分の四のあいだ安定します。接地を短くすると、安定している割合が下がり、速歩と側対歩は、安定した姿勢で過ごす時間がまったくなくなります。速い歩様は、立っているときのバランスではなく、動きに頼っています。
重い速歩の動物: カバとサイ
カバは陸上で最も大きな哺乳類の一つですが、その歩様はよく知られていませんでした。ハッチンソンとプリングルは、ネット上の動画と、動物園のカバ2頭を自分たちで撮影した映像を使って、32頭のカバの169ストライドを調べました。どのストライドも速歩か、それに近いものでした。いちばん速いときには、四本の足がすべて宙に浮く短い瞬間があり、これはそれまで記されていませんでした。同じくらいの大きさのゾウは、メニューのゾウが示すように、地面を離れることがありません。
霊長類は逆の順で歩く
たいていの哺乳類は側方着地順で歩きます。後ろ足が着いたあと、同じ側の前足が続きます。ほとんどの霊長類は逆です。左後が着いたあと、次に来るのは右前です。対角着地順の歩行です。ヒルデブランドは1967年にこれを記し、メニューのチンパンジー、ゴリラ、ヒヒがこれを使います。
霊長類がなぜこう歩くのかは、まだ議論されています。カートミルたちの一つの考えは、前足が新しい枝へ伸びる瞬間に、後ろ足が体の下に来るので、細い足場で役立つというものです。シャピロとライヒレンは、おとなより多くの種類の歩様を使う子どものヒヒでこれを調べ、この尺度では、側方着地順の常歩も同じだけの安定を与えることを見つけました。ポンツァー、ライヒレン、ロッドマンは、チンパンジーが二本足と四本足で、同程度のエネルギーコストで歩くことを見つけました。
鳥: 滞空なしで走る
鳥はヒトのように二本脚で走りますが、空中の瞬間なしで走れます。ゲイティとビーウェナーは、鳥とヒトを比べ、鳥のほうが脚をより曲げた姿勢に保つことを見つけました。メニューのダチョウは、ルーベンソンたちが測ったとおり、両方の走り方をします。中くらいの速さでは滞空なし、速くなると短い滞空ありです。アニマル・ダイバーシティ・ウェブは、エミューが秒速 13.4 m までの速さを保てるとしています。
ひなは、これがどこまで学習によるのかを調べるよい材料です。ミュアたちは、ひなを生後二週間にわたって測りました。孵化したばかりのひなもすでに走れましたが、歩きは、おとなのように位置のエネルギーと運動のエネルギーを交換するところまでは進んでおらず、二週間たつと交換するようになりました。ペンギンはよちよち歩き、左右に揺れます。グリフィンとクラムは、この揺れが無駄な動きではなく、1歩ごとにエネルギーを取り戻すのに役立つことを見つけました。
爬虫類: 横に広げた脚、襲歩、水上走
トカゲは脚を横に張り出し、進むときに体を曲げます。ファーリーとコーは、バンデッドゲッコーとスキンクを測り、どちらも斜めの脚を一緒に動かす速歩でした。ゼブラテールトカゲは、最高速度では二本の脚で立ち上がります。イルシックとジェインは、その二足走行と四足走行を比べました。
ワニ類には意外な点があります。ハッチンソンたちは、15種の42個体を、秒速 0.15〜4.35 m の速さで撮影しました。クロコダイルは襲歩やバウンドをしましたが、アリゲーターはしませんでした。この能力がアリゲーターの系統で失われたのか、クロコダイルの系統で得られたのか、どちらかであることを示しています。ルヌーたちは、ジョンストンクロコダイルの幼体の襲歩を詳しく記しました。
バシリスクは後ろ足の二本で水の上を走ります。グラシーンとマクマホンはそのしくみを示しました。足が水面を打ち、続いて下と後ろへかき、足が引き抜かれてから閉じる空気の空洞を開きます。シーとラウダーは、バシリスクの幼体にかかる力を測り、1歩ごとに大きな横向きの力があることを見つけました。これはトカゲを立たせておくのに役立つのかもしれません。モデルでは、バシリスクは砂の上を、同じ二足の型で走ります。
六本脚: 交互の三点支持
昆虫には六本の脚があり、たいていの速さで、二組の三点で歩きます。片側の前脚と後脚が、反対側の中脚と一緒に動くので、いつも三本の足が地面に着いています。フルとトゥは、アメリカゴキブリがこの三点支持を秒速 0.44〜1.0 m で使うことを測りました。秒速 1 m を超えると、垂直方向の力が一瞬ゼロに近づき、秒速 1.0〜1.5 m、1秒に体長の約50倍では、ゴキブリは四本脚、さらには二本脚で走りました。
サバクアリ属のカタグリフィスは、最も速い部類です。ヴァール、プフェファー、ウィッティンガーは、カタグリフィス・フォルティスの歩きと走りを調べ、プフェファーたちは、脚の短いサハラギンアリが、1秒に40ストライド以上、短いもので 7 ms の接地期、最高秒速 1.4 m の脚の振りで、それを補っていることを見つけました。昆虫は拡大して表示していて(倍率は表示欄に出ます)、表示欄はモデルの速さを同じ倍率で割っています。脚を追うには、いちばん遅い再生速度を選んでください。
競走と記録表
動物を最大 8 種まで選んで、スタートします。各動物は、出典が示す最高速度、つまり範囲の上限、計測された最高速度、記録の平均のどれかで走ります。競走用のサラブレッドは、ヴィンセレットが競走馬について挙げる秒速 17〜19 m の上限、秒速 19 m で走ります。競走が終わると、各動物の100 m のタイムが、このブラウザに保存される記録表に入り、上位十件が一覧に出ます。
大きいほど速いとは限りません。ヒルトたちは、30マイクログラムから100トンまでの474種の最高速度を当てはめ、山型の曲線を見つけました。速さは大きさとともに上がり、そのあと、いちばん大きな動物では、加速する時間が足りなくなるので下がります。ゾウが競走でほとんど最後に着き、中くらいの大きさのチーターが勝つのは、このためです。
自分で試す
操作の下の19の課題は、舞台の状態を確かめます。動物を、ちょうどよい瞬間に止める課題があります。馬の四本の足がすべて宙に浮く瞬間を探す、襲歩を足一本だけが着いた状態で止める、といったものです。舞台が答えられる問いを出す課題もあります。ラクダが速く進むときの歩様、馬の歩様でいちばん速いもの、速く進むゾウが地面を離れることがあるかどうか、などです。一つは、三拍の歩様を舞台に出すことを求めます。九つの課題は歩様エディタを使います。常歩、速歩、ラクダの側対歩を組み立てる、バウンドやシングルフット歩様をつくる、滞空のある歩様、常に三本の足が着いている歩様、1ストライドを通して安定する歩様、滞空なしで一本足になる瞬間のある歩様をつくる、というものです。ほかに、歩様をもつ品種や六本脚の動物を舞台に出す課題があり、最後の課題は、競走を始める前に勝者を予想することです。
競走が使うのは出典の数値だけです。範囲の上限、計測された最高速度、世界記録の平均、研究で測られた最速のいずれかです。ダチョウのトレッドミルでの上限は最高速度ではないので、公平な競争ではなく、表の注記が、各レーンがどの種類の数値を使っているかを示します。出典に計測された速さがない動物は、推測値を与えるのではなく、競走から外してあります。
モデルが実際の動物と違うところ
骨格は単純化されています。馬には13対の肋骨があり、実際の馬より少なく、各脚には、実際の脚が前膝や飛節にいくつもの小さな骨をもつところに、区間ごとに一本の骨があります。首と頭は胴と一緒に動きます。実際の馬は、常歩でバランスをとるために頭と首を少し上下に動かし、駈歩では、後ろ脚が踏み込むと頭が上がり、先導する前足が着くと最も低くなります。筋肉は、一つひとつの筋肉ではなく、滑らかな形です。
ほかの動物は、同じ部品を伸ばして色を変えてつくっています。霊長類は、馬の長い顔の代わりに丸い頭と短い鼻先を持ち、鳥とペンギンは一つの直立した体を拡大縮小したもので、昆虫は、二節の脚を持つ滑らかな体の部品の別の一式です。そのほかの部分は、キリンとラクダの長い首、ラクダのこぶ、ゾウの鼻と大きな耳、チーターの斑点などです。内側に骨格はなく、顔は簡単なものです。脚は馬と同じ二関節のしくみなので、ネコやイヌの足は、実際よりも小さなひづめに近く描かれています。
動きも単純化されています。ストライド時間、接地率、振りのなかでの各足の高さは、出典の歩様の記述に合うよう選んだ丸めた値で、一頭の動物の計測値ではありません。脚は平らな面の中で動き、体は決まった量で上下に揺れ、実際の動物のタイミングはストライドごとに変わります。地面に着いた足は砂に対してぴったり静止していて、これは実際の足が接地期の大部分でする動きに近いものです。モデルで歩様を変えると、一つの型がもう一つへ半秒足らずで混ざりますが、実際の動物は数ストライドかかります。
よくある質問
馬は四本の足がすべて地面を離れることがありますか
あります。速歩では斜めの組のあいだに短い瞬間があり、駈歩と襲歩では1ストライドに一度、宙に浮く瞬間があります。マイブリッジの1878年の写真は、襲歩ではそれが脚を体の下にまとめたときに起きることを示しました。
常歩では、なぜ地面を離れないのですか
各足は1ストライドの半分より長く地面に着いていて、四回の着地は四分の一ストライドずつ離れているので、いつも二本か三本の足が地面にあります。そのため、常歩は足場の悪い地面でも安定した土台になります。
駈歩と襲歩の手前とは何ですか
手前とは、前脚と後脚がより前へ伸びる側のことです。右手前では、各ストライドで右前が最後に着きます。馬はふつう、曲がるときは内側の脚を手前にし、宙に浮く瞬間に手前を替えることができます。
速歩は駈歩より速いのですか
いつもそうとは限りません。モンタナ州立大学は速歩を時速 7〜10 マイル、駈歩を時速 6〜10 マイルとしているので、範囲は重なります。繋駕競走の馬は、平均的な駈歩よりずっと速く速歩するように育てられ、訓練されています。
馬の襲歩はどのくらい速いですか
モンタナ州立大学は、平均的な襲歩を時速 12〜20 マイル、約 19〜32 km/h としています。競走用の品種は短い距離ならもっと速く、アイスランドホースのフライングペースは時速 40 マイルに達するといわれます。
画家はなぜ襲歩を間違えて描いたのですか
脚の動きは速すぎて、目では位置を分けられません。画家は、いちばん速く見える姿勢、四本の脚をすべて伸ばした姿を描きました。1878年の写真は、伸ばした姿勢のときはいつも一本の足が地面に着いていることを示しました。
速歩と側対歩の違いは何ですか
どちらも二拍です。速歩では斜めの脚が一緒に動き、側対歩では同じ側の二本の脚が一緒に動きます。スタンダードブレッドを選ぶと、図で両方を比べられます。
側対歩をする動物は何ですか
この展示では、ラクダ、スタンダードブレッド、アイスランドホースです。ダッグは、ヒトコブラクダがふだんから側対歩で、速歩は一度もしないことを見つけました。
ゾウは走りますか
走るとは何を指すかによります。秒速 6.8 m までで測られたゾウは、四本の足がすべて地面を離れることはありませんでしたが、その速さでは、体が走る人のように弾んでいました。
チーターはなぜ1ストライドに二度飛ぶのですか
襲歩では、後ろ脚と前脚がそれぞれ一対で地面を蹴り、一対ごとのあとに滞空があります。背中もそれに合わせて曲がって伸び、歩幅を伸ばします。
小さな動物はなぜ脚をそんなに速く動かすのですか
脚が短いと、短い振り子が長い振り子より速く振れるのと同じで、振るのにかかる時間が短くなります。ヘグランドとテイラーは、同等の速さでは、ハツカネズミのほうが馬よりずっと多くの歩数を1秒に刻むことを見つけました。
表示欄の速さが、モデルの速さと違うのはなぜですか
モデルの足は、実際の動物より短い距離を体の下で掃くので、1ストライドで進む距離が短くなります。着地のタイミングは出典に従っている部分で、表示欄は実測値をモデルの値の隣に示します。
歩様の馬とは何ですか
常歩、速歩、駈歩、襲歩のほかに、生まれつきの特別な歩様を持つ馬です。たいていは、トルト、ラック、ランニングウォークのような均等な四拍の歩様か、側対歩です。歩様の品種の多くは、アンデションたちが2012年に特定した DMRT3 遺伝子の変異を持っています。
トルトとは何ですか
アイスランドホースの四拍の歩様で、常歩の着地順をとります。空中の瞬間はなく、馬は一本か二本の足で支えられているので、乗り手はほとんど弾みません。ズィップスたちは、これを秒速 2.9〜4.7 m で測りました。
ラックとランニングウォークの違いは何ですか
どちらも常歩の順の、均等な四拍の歩様です。ランニングウォークは、秒速 2.2〜4.0 m の、長く踏み込む歩幅の伸びた常歩です。ヴィンセレットのレビューによると、ラックはより速く、秒速 2.5〜6.0 m で、後ろの歩幅が短く、動きが弾みます。
カバは襲歩できますか
いいえ。ハッチンソンとプリングルが調べた169ストライドのカバでは、襲歩は見られませんでした。カバはどんな速さでも速歩をし、いちばん速いときには、四本の足がすべて宙に浮く短い瞬間があります。
霊長類はなぜ対角着地順で歩くのですか
だれにも分かっていません。一つの考えは、手が新しい枝へ伸びるとき、後ろ足を体の下に置いておけるから、というものです。子どものヒヒでの試験は、この問いに決着をつけていません。
昆虫は走りますか
はい。三点支持を使うゴキブリは、秒速 1 m を超えると垂直方向の力がほとんどゼロになる瞬間があり、秒速 1.0〜1.5 m では、フルとトゥが測ったとおり、四本脚か二本脚で走るように切り替わります。
歩様を音で聞けますか
「着地音」をオンにします。着地のたびにクリック音が鳴り、前足のほうが高い音です。常歩では均等な四つ、速歩では二つ、駈歩では間を置いた三つのクリックが聞こえます。
用語
- 歩様: 常歩や速歩のように、ストライドごとに繰り返される脚の動きの型。
- 拍: 足が地面を打つ一回、または同じ瞬間に着く複数回。
- ストライド: 脚の動きの完全な一周期。ある足が着地してから、同じ足がもう一度着地するまで。
- 接地率: 1ストライドのうち、足が地面に着いている割合。
- 浮遊または滞空: ストライドの中で、足が一本も地面に着いていない瞬間。
- 手前(先導肢): 駈歩と襲歩で、脚が最後に着き、いちばん前へ伸びる側。
- 側対歩: 同じ側の二本の脚が一緒に動く二拍の歩様。
- 側方着地順: 常歩のように、後ろ足のあとに同じ側の前足が続く着地の順序。
- 横断襲歩: 馬のように、着地が左右に交差する襲歩。
- 回転襲歩: イヌやチーターのように、前足が後ろ足と逆の順に着く襲歩。
- バウンド: 後ろ足の二本が一緒に着き、続いて前足の二本が一緒に着く歩様。
- 滞空なしの走り: ダチョウが中くらいの速さで使う、滞空のない弾む歩様。
- フルード数: 速さの二乗を、重力と脚の長さの積で割ったもので、大きさの違う動物を比べるのに使う。
- 着地順の図: 脚ごとに一行を置き、各足が地面に着いている時間を示す図。
- 管骨: 前膝または飛節と球節のあいだの長い骨。
- 飛節: 後脚にある、ヒトの足首に当たる関節。
- 鬐甲: 肩甲骨の上にある、背でいちばん高い点。
- 歩様の馬: トルト、ラック、ランニングウォーク、側対歩のような、生まれつきの特別な歩様を持つ馬。
- 側方先行着地(LAP): 後ろ足が着いてから、同じ側の前足が着くまでの、1ストライドに占める割合。均等な四拍の歩様は 0.25、速歩は 0.5。
- シングルフット: トルト、ラック、ランニングウォークのような、常歩の順の均等な四拍の歩様。
- 崩れた速歩と崩れた側対歩: 斜めの組(フォックストロット)または側方の組(ステッピングペース)が、少しずれて着く四拍の歩様。
- 対角着地順: 多くの霊長類のように、後ろ足のあとに反対側の前足が続く着地の順序。
- 交互の三点支持: 片側の前脚と後脚が、反対側の中脚と一緒に動く、昆虫の歩様。
- 支持面: 地面に着いている足を上から見たときの輪郭。
- 静的に安定: 重心が支持面の内側にあり、動物がその姿勢で立ち止まっていられる状態。
参考資料
- Montana State University Extension, Horse Locomotion. https://animalrangeextension.montana.edu/equine/locomotion.html (2026年10月18日確認)
- Hildebrand, M. (1965). Symmetrical gaits of horses. Science 150, 701-708. https://doi.org/10.1126/science.150.3697.701 (2026年10月18日確認)
- Hildebrand, M. (1989). The quadrupedal gaits of vertebrates. BioScience 39, 766-775. https://doi.org/10.2307/1311182 (2026年10月18日確認)
- Hoyt, D. F. and Taylor, C. R. (1981). Gait and the energetics of locomotion in horses. Nature 292, 239-240. https://doi.org/10.1038/292239a0 (2026年10月18日確認)
- Heglund, N. C. and Taylor, C. R. (1988). Speed, stride frequency and energy cost per stride: how do they change with body size and gait? Journal of Experimental Biology 138, 301-318. https://doi.org/10.1242/jeb.138.1.301 (2026年10月18日確認)
- Alexander, R. McN. and Jayes, A. S. (1983). A dynamic similarity hypothesis for the gaits of quadrupedal mammals. Journal of Zoology 201, 135-152. https://doi.org/10.1111/j.1469-7998.1983.tb04266.x (2026年10月18日確認)
- Alexander, R. McN. (1989). Optimization and gaits in the locomotion of vertebrates. Physiological Reviews 69, 1199-1227. https://doi.org/10.1152/physrev.1989.69.4.1199 (2026年10月18日確認)
- Robilliard, J. J., Pfau, T. and Wilson, A. M. (2007). Gait characterisation and classification in horses. Journal of Experimental Biology 210, 187-197. https://doi.org/10.1242/jeb.02611 (2026年10月18日確認)
- Dagg, A. I. (1974). The locomotion of the camel (Camelus dromedarius). Journal of Zoology 174, 67-78. https://doi.org/10.1111/j.1469-7998.1974.tb03144.x (2026年10月18日確認)
- Basu, C. K., Deacon, F., Hutchinson, J. R. and Wilson, A. M. (2019). The running kinematics of free-roaming giraffes, measured using a low cost unmanned aerial vehicle (UAV). PeerJ 7, e6312. https://doi.org/10.7717/peerj.6312 (2026年10月18日確認)
- Basu, C., Wilson, A. M. and Hutchinson, J. R. (2019). The locomotor kinematics and ground reaction forces of walking giraffes. Journal of Experimental Biology 222, jeb159277. https://doi.org/10.1242/jeb.159277 (2026年10月18日確認)
- Hutchinson, J. R., Famini, D., Lair, R. and Kram, R. (2003). Are fast-moving elephants really running? Nature 422, 493-494. https://doi.org/10.1038/422493a (2026年10月18日確認)
- Hutchinson, J. R. et al. (2006). The locomotor kinematics of Asian and African elephants: changes with speed and size. Journal of Experimental Biology 209, 3812-3827. https://doi.org/10.1242/jeb.02443 (2026年10月18日確認)
- Wilson, A. M. et al. (2013). Locomotion dynamics of hunting in wild cheetahs. Nature 498, 185-189. https://doi.org/10.1038/nature12295 (2026年10月18日確認)
- Usherwood, J. R. and Wilson, A. M. (2005). No force limit on greyhound sprint speed. Nature 438, 753-754. https://doi.org/10.1038/438753a (2026年10月18日確認)
- Dawson, T. J. and Taylor, C. R. (1973). Energetic cost of locomotion in kangaroos. Nature 246, 313-314. https://doi.org/10.1038/246313a0 (2026年10月18日確認)
- Rubenson, J., Heliams, D. B., Lloyd, D. G. and Fournier, P. A. (2004). Gait selection in the ostrich: mechanical and metabolic characteristics of walking and running with and without an aerial phase. Proceedings of the Royal Society B 271, 1091-1099. https://doi.org/10.1098/rspb.2004.2702 (2026年10月18日確認)
- Weyand, P. G. et al. (2000). Faster top running speeds are achieved with greater ground forces not more rapid leg movements. Journal of Applied Physiology 89, 1991-1999. https://doi.org/10.1152/jappl.2000.89.5.1991 (2026年10月18日確認)
- World Athletics, World records, men's 100 m, 9.58 s (Berlin, 16 August 2009). https://worldathletics.org/records/by-category/world-records (2026年10月18日確認)
- Lindstedt, S. L. et al. (1991). Running energetics in the pronghorn antelope. Nature 353, 748-750. https://doi.org/10.1038/353748a0 (2026年10月18日確認)
- Herbin, M. et al. (2007). Gait parameters of treadmill versus overground locomotion in mouse. Behavioural Brain Research 181, 173-179. https://doi.org/10.1016/j.bbr.2007.04.001 (2026年10月18日確認)
- Zug, G. R. (1974). Crocodilian galloping: an unique gait for reptiles. Copeia 1974, 550-552. https://doi.org/10.2307/1442557 (2026年10月18日確認)
- Farley, C. T. and Ko, T. C. (1997). Mechanics of locomotion in lizards. Journal of Experimental Biology 200, 2177-2188. https://doi.org/10.1242/jeb.200.16.2177 (2026年10月18日確認)
- Science Museum Group Collection, The Horse in Motion (book by J. D. B. Stillman with photographs by Eadweard Muybridge, 1882). https://collection.sciencemuseumgroup.org.uk/objects/co8452654/the-horse-in-motion (2026年10月16日確認)
- Science Museum Group Collection, Eadweard Muybridge. https://collection.sciencemuseumgroup.org.uk/people/ap28178/muybridge-eadweard (2026年10月16日確認)
- Khan Academy (Smarthistory), Eadweard Muybridge, The Horse in Motion. https://www.khanacademy.org/humanities/becoming-modern/early-photo/early-photo-france/a/eadweard-muybridge-the-horse-in-motion (2026年10月16日確認)
- Internet Archive, J. D. B. Stillman, The Horse in Motion as Shown by Instantaneous Photography (1882). https://archive.org/details/horseinmotionass00stilrich (2026年10月16日確認)
- Vincelette, A. (2023). The characteristics, distribution, function, and origin of alternative lateral horse gaits. Animals 13, 2557. https://doi.org/10.3390/ani13162557 (2026年10月26日確認)
- Zips, S., Peham, C., Scheidl, M., Licka, T. and Girtler, D. (2001). Motion pattern of the toelt of Icelandic horses at different speeds. Equine Veterinary Journal 33 (S33), 109-111. https://doi.org/10.1111/j.2042-3306.2001.tb05371.x (2026年10月26日確認)
- Nicodemus, M. C. and Clayton, H. M. (2003). Temporal variables of four-beat, stepping gaits of gaited horses. Applied Animal Behaviour Science 80, 133-142. https://doi.org/10.1016/S0168-1591(02)00219-8 (2026年10月26日確認)
- Nicodemus, M. C. and Slater, J. K. (2009). Forelimb kinematics of the flat walk and fox trot of the Missouri Fox Trotter. Comparative Exercise Physiology 6, 149-156. https://doi.org/10.1017/S1755254010000048 (2026年10月26日確認)
- Simonato, S. P. et al. (2021). 3D kinematic of the thoracolumbar spine in Mangalarga Marchador horses performing the marcha batida gait and being led by hand. PLOS ONE 16, e0253697. https://doi.org/10.1371/journal.pone.0253697 (2026年10月26日確認)
- Andersson, L. S. et al. (2012). Mutations in DMRT3 affect locomotion in horses and spinal circuit function in mice. Nature 488, 642-646. https://doi.org/10.1038/nature11399 (2026年10月26日確認)
- Promerová, M. et al. (2014). Worldwide frequency distribution of the 'Gait keeper' mutation in the DMRT3 gene. Animal Genetics 45, 274-282. https://doi.org/10.1111/age.12120 (2026年10月26日確認)
- Paso Fino Horse Association, The gaits. https://pfha.org/the-breed/the-gaits/ (2026年10月26日確認)
- Full, R. J. and Tu, M. S. (1991). Mechanics of a rapid running insect: two-, four- and six-legged locomotion. Journal of Experimental Biology 156, 215-231. https://doi.org/10.1242/jeb.156.1.215 (2026年10月26日確認)
- Wahl, V., Pfeffer, S. E. and Wittlinger, M. (2015). Walking and running in the desert ant Cataglyphis fortis. Journal of Comparative Physiology A 201, 645-656. https://doi.org/10.1007/s00359-015-0999-2 (2026年10月26日確認)
- Pfeffer, S. E., Wahl, V. L., Wittlinger, M. and Wolf, H. (2019). High-speed locomotion in the Saharan silver ant, Cataglyphis bombycina. Journal of Experimental Biology 222, jeb198705. https://doi.org/10.1242/jeb.198705 (2026年10月26日確認)
- Hsieh, S. T. and Lauder, G. V. (2004). Running on water: three-dimensional force generation by basilisk lizards. PNAS 101, 16784-16788. https://doi.org/10.1073/pnas.0405736101 (2026年10月26日確認)
- Glasheen, J. W. and McMahon, T. A. (1996). A hydrodynamic model of locomotion in the basilisk lizard. Nature 380, 340-342. https://doi.org/10.1038/380340a0 (2026年10月26日確認)
- Irschick, D. J. and Jayne, B. C. (1999). Comparative three-dimensional kinematics of the hindlimb for high-speed bipedal and quadrupedal locomotion of lizards. Journal of Experimental Biology 202, 1047-1065. https://doi.org/10.1242/jeb.202.9.1047 (2026年10月26日確認)
- Renous, S., Gasc, J.-P., Bels, V. L. and Wicker, R. (2002). Asymmetrical gaits of juvenile Crocodylus johnstoni, galloping Australian crocodiles. Journal of Zoology 256, 311-325. https://doi.org/10.1017/S0952836902000353 (2026年10月26日確認)
- Hutchinson, J. R. et al. (2019). Divergent evolution of terrestrial locomotor abilities in extant Crocodylia. Scientific Reports 9, 19302. https://doi.org/10.1038/s41598-019-55768-6 (2026年10月26日確認)
- Hutchinson, J. R. and Pringle, E. V. (2024). Footfall patterns and stride parameters of Common hippopotamus (Hippopotamus amphibius) on land. PeerJ 12, e17675. https://doi.org/10.7717/peerj.17675 (2026年10月26日確認)
- Gatesy, S. M. and Biewener, A. A. (1991). Bipedal locomotion: effects of speed, size and limb posture in birds and humans. Journal of Zoology 224, 127-147. https://doi.org/10.1111/j.1469-7998.1991.tb04794.x (2026年10月26日確認)
- Griffin, T. M. and Kram, R. (2000). Penguin waddling is not wasteful. Nature 408, 929. https://doi.org/10.1038/35050167 (2026年10月26日確認)
- Muir, G. D., Gosline, J. M. and Steeves, J. D. (1996). Ontogeny of bipedal locomotion: walking and running in the chick. Journal of Physiology 493, 589-601. https://doi.org/10.1113/jphysiol.1996.sp021406 (2026年10月26日確認)
- Pontzer, H., Raichlen, D. A. and Rodman, P. S. (2014). Bipedal and quadrupedal locomotion in chimpanzees. Journal of Human Evolution 66, 64-82. https://doi.org/10.1016/j.jhevol.2013.10.002 (2026年10月26日確認)
- Hildebrand, M. (1967). Symmetrical gaits of primates. American Journal of Physical Anthropology 26, 119-130. https://doi.org/10.1002/ajpa.1330260203 (2026年10月26日確認)
- Shapiro, L. J. and Raichlen, D. A. (2004). Lateral sequence walking in infant Papio cynocephalus. American Journal of Physical Anthropology 126, 205-213. https://doi.org/10.1002/ajpa.20049 (2026年10月26日確認)
- Cartmill, M., Lemelin, P. and Schmitt, D. (2002). Support polygons and symmetrical gaits in mammals. Zoological Journal of the Linnean Society 136, 401-420. https://doi.org/10.1046/j.1096-3642.2002.00038.x (2026年10月26日確認)
- Biewener, A. A. (1983). Allometry of quadrupedal locomotion: the scaling of duty factor, bone curvature and limb orientation to body size. Journal of Experimental Biology 105, 147-171. https://doi.org/10.1242/jeb.105.1.147 (2026年10月26日確認)
- Garland, T. (1983). The relation between maximal running speed and body mass in terrestrial mammals. Journal of Zoology 199, 157-170. https://doi.org/10.1111/j.1469-7998.1983.tb02087.x (2026年10月26日確認)
- Hirt, M. R., Jetz, W., Rall, B. C. and Brose, U. (2017). A general scaling law reveals why the largest animals are not the fastest. Nature Ecology & Evolution 1, 1116-1122. https://doi.org/10.1038/s41559-017-0241-4 (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Eudorcas thomsonii (Thomson's gazelle). https://animaldiversity.org/accounts/Eudorcas_thomsonii/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Odocoileus virginianus (white-tailed deer). https://animaldiversity.org/accounts/Odocoileus_virginianus/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Alces alces (moose). https://animaldiversity.org/accounts/Alces_alces/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Bison bison (American bison). https://animaldiversity.org/accounts/Bison_bison/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Canis lupus (grey wolf). https://animaldiversity.org/accounts/Canis_lupus/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Vulpes vulpes (red fox). https://animaldiversity.org/accounts/Vulpes_vulpes/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Lycaon pictus (African wild dog). https://animaldiversity.org/accounts/Lycaon_pictus/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Crocuta crocuta (spotted hyena). https://animaldiversity.org/accounts/Crocuta_crocuta/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Procyon lotor (raccoon). https://animaldiversity.org/accounts/Procyon_lotor/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Dromaius novaehollandiae (emu). https://animaldiversity.org/accounts/Dromaius_novaehollandiae/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Struthio camelus (ostrich). https://animaldiversity.org/accounts/Struthio_camelus/ (2026年10月26日確認)
- Animal Diversity Web, University of Michigan Museum of Zoology, Macropus rufus (red kangaroo). https://animaldiversity.org/accounts/Macropus_rufus/ (2026年10月26日確認)
解説とシミュレーションは CC BY-NC-SA 4.0(特記のあるものを除く)。
コース 1 / 5
生命を間近に:体と生存ほかの展示

恐竜の大きさ比較:実物大の古生物172種と歩く
幅 600 m の園内に、最初の恐竜からティラノサウルスまで、172 種の古生物が実物大で時代順に並んでいます。
マンモスの大きさをゾウや氷河期の動物と比較
ケナガマンモスから剣歯ネコまで、最終氷期の 65 種を実物大で並べた幅 600 m の園内を歩けます。50,000 年を動かす時間スライダーもあります。
人類の進化の年表を歩く:実物大の身長と脳の比較展示
Lucy の身長は約1.1 m。700万年の人類の近縁種を実物大で見ながら、自分の像を隣に置いて歩けます。
振り子時計のしくみ:長さが時を決める理由
振り子時計は長さ 99.4 cm の棒で秒を数えます。長さや温度、地球上の場所を変え、四つの脱進機を交換して、一日に生じる誤差を比較できます。
風車と水車の仕組み:実物大の模型で回転と働きを比較
オランダの風車の帆は、8 階建ての建物の高さほども幅がありますが、秒速 7 m の風でも、風の出力の約 5 分の 1 しか取れません。
自動販売機の仕組み:硬貨を入れて内部を追うシミュレーター
100ウォンは磁石に付きません。それでも販売機の磁石は、銅の偽硬貨と区別する働きをします。