図 69しくみ館
光合成のしくみ:葉から反応をたどる
十分な日光を受ける葉は、約 426 ppm しか二酸化炭素を含まない空気からそれを取り出し、糖を作ります。
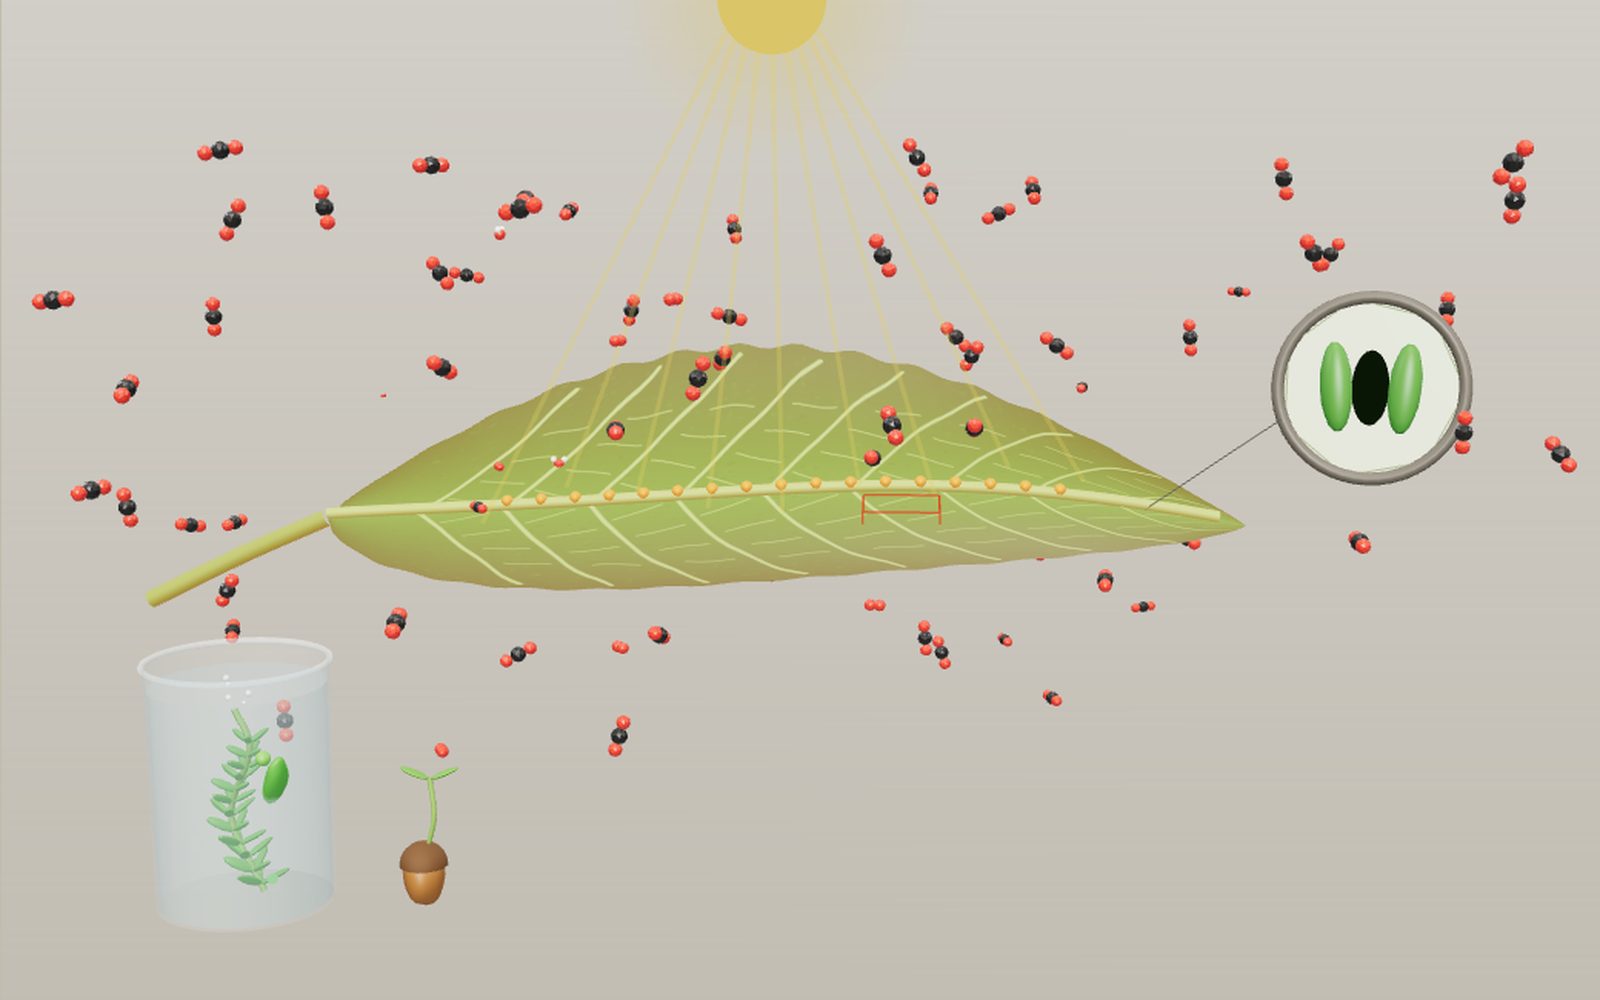
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 8 日光を受ける葉この葉が出発点です。太陽をドラッグして光を傾け、空気を見てください。CO₂ 分子が入り、O₂ が出て、ビーカーの水草から気泡が出ます。赤い枠は次に切り出す部分です。
ドラッグで回転、ホイールか二本指で拡大します。
木材はどこから来るのでしょうか?
種子の重さは 1 グラムにも満たないのに、そこから育ったオークは何トンにもなることがあります。その質量の大部分は土から来たものではありません。空気中の二酸化炭素に由来し、緑の葉の中で光のエネルギーを使って糖に変えられたものです。同じ過程で、私たちが呼吸する酸素も作られます。OpenStax の生物学の教科書は、その影響の広さを明快に示しています。光合成は地球の生態系の 99 パーセントを支えています。
反応全体は 1 行に収まります。二酸化炭素 6 分子と水 6 分子が、糖 1 分子と酸素 6 分子になります。その 1 行には、葉全体から大きさが数ナノメートルのタンパク質 1 個まで、さまざまな大きさにまたがる長い反応の連鎖が隠れています。この展示では、その連鎖をたどっていきます。葉から始め、その一部を切り出し、葉緑体を 1 個開いて、光が化学エネルギーに変わるチラコイド膜の一角に立ちます。3 本のスライダーで光、二酸化炭素、温度を変えると、隅の曲線に速度の応答が示されます。
葉は光を捉え、空気を取り込む構造です
葉には、互いに相反する 2 つの仕事があります。緑の細胞を光に向けて広げ、できるだけ水を失わずに、それらの細胞まで空気を届けなければなりません。層状の構造がその問題を解決します。
上面は水の損失を抑えるろう質のクチクラで覆われ、その下には、通常は透明な細胞 1 層からなる表皮があります。その下には、背の高い柱が隙間なく並ぶ柵状組織の細胞が立っています。OpenStax の葉の章では、これらを 1~3 層に密集した柱状の細胞と説明しており、葉の葉緑体の大部分がここにあります。モデルではそれぞれの柱を透明に描き、内部の葉緑体を濃緑色の粒として見せています。
柵状組織の下では細胞の様子が変わります。海綿状組織は、不規則な形の細胞がまばらに並び、その間に空気があります。この空隙は葉の肺にあたり、下面から入った気体がここを通ってすべての細胞へ広がります。切り出した部分の中央には葉脈が通り、木部が根から水を運び上げ、師部が糖を運び出します。
気孔は水と引き換えに二酸化炭素を取り込みます
葉の下面には気孔が点在し、小さな孔のそれぞれが 2 個の孔辺細胞に挟まれています。孔辺細胞が水で満たされて膨らむと、互いに反るように離れて孔が開きます。張りを失うと閉じます。孔辺細胞は、表皮の細胞で唯一葉緑体を持っています。
孔を開く取引には代償があります。孔が開いていなければ二酸化炭素は入れませんが、葉の内部の空気はほぼ飽和し、外の空気は通常そうではないため、同じ経路から水蒸気が出ていきます。OpenStax によれば、植物が根から吸収した水の最大 90 パーセントが、この蒸散によって失われることがあります。孔辺細胞は光、葉の水分状態、二酸化炭素に応答するため、植物は暑く乾いた午後に気孔を閉じ、水を保つ代わりに光合成の減少を受け入れられます。
モデルでは「気孔の開き」のスライダーで孔辺細胞が動きます。濃い灰色と赤の CO₂ 分子が孔から入り、青と白の水分子が出ていきます。孔を閉じると、どちらの流れもゼロになります。「水の損失」の値は孔の開きと温度に伴って増えます。暖かい空気はより多くの水を含むことができ、葉をより速く乾かすためです。
葉緑体の内部
柵状組織の細胞にある緑の粒は、それぞれ葉緑体です。ストロマと呼ばれる水分の多い内部を、二重の包膜が囲んでいます。ストロマには 3 番目の膜系であるチラコイドが浮かんでいます。これは扁平な袋で、グラナと呼ばれる積み重なりを作り、単層の膜でつながっています。それぞれの袋の内部空間がルーメンです。
この配置により仕事が 2 つに分かれます。光化学反応(明反応)はチラコイド膜で起こり、ATP と NADPH という 2 種類のエネルギー運搬体を作ります。カルビン回路はストロマで起こり、それらを使って二酸化炭素から糖を作ります。展示の最後の縮尺では両方を同時に示します。中央に膜が横たわり、その上がストロマ、下がルーメンです。
光化学系 II は水から電子を取り出します
光は光子として届きます。クロロフィルは赤と青の光をよく吸収し、緑を反射するので、葉は緑に見えます。植物は約 400~700 nm の波長を利用し、植物生理学ではこれを光合成有効放射と呼びます。
光子はアンテナ複合体に捉えられます。OpenStax によれば、各集光複合体にはクロロフィル分子が 300~400 個と、カロテノイドが含まれています。吸収された光子のエネルギーは色素から色素へ渡され、約 100 万分の 1 秒後に反応中心へ届きます。光化学系 II の反応中心は P680 と呼ばれるクロロフィルの対で、このエネルギーがその電子 1 個を受容体へ押し出します。
P680 は電子を補う必要があり、水から受け取ります。光化学系 II のルーメン側には、マンガン原子 4 個、カルシウム原子 1 個、酸素原子 5 個からなるクラスターがあります。Umena らは 2011 年にこれを 1.9 Å の分解能で解析し、水分子 4 個が結合していることを見いだしました。クラスターは水から電子を 1 個ずつ取り出します。水 2 分子を分解すると、電子 4 個、プロトン 4 個、O₂ 1 分子が生じます。OpenStax は、その酸素の約 10 パーセントが葉自身のミトコンドリアで使われ、残りが空気中へ出ると記しています。
モデルでは黄色い筋が光子、水色の粒が電子です。電子 4 個が光化学系 II を離れるたびに、O₂ 分子が 1 個クラスターから浮かび出し、O₂ カウンターが 1 増えます。
プラストキノンから NADPH へ
電子はその場にとどまりません。膜の中を移動してシトクロム b6f 複合体へ向かう小分子、プラストキノン(黄色い粒)へ渡されます。電子が b6f を通過すると、b6f はストロマからルーメンへプロトンを移動させます。その先では、プラストシアニン(青い銅タンパク質)が電子を受け取り、ルーメン表面に沿って光化学系 I へ運びます。
この時点で電子はエネルギーの多くを失っているので、光化学系 I には 2 個目の光子が必要です。その反応中心 P700 が電子のエネルギーを再び高め、ストロマ側のフェレドキシンへ渡します。次いで酵素フェレドキシン NADP⁺ 還元酵素(FNR)が電子 2 個を NADP⁺ に渡し、NADPH を作ります。モデルでは電子 2 個ごとに紫の NADPH 分子が FNR を離れ、カルビン回路へ向かいます。
プロトン勾配が ATP 合成酵素を動かします
光化学系 II での水の分解と b6f での汲み上げという 2 つの働きで、ルーメンはプロトンに満たされています。ルーメンの酸性が強まり、ストロマの酸性は弱まり、プロトンが戻れる扉は 1 つだけになります。その扉が ATP 合成酵素で、ATP 合成酵素の展示で示すものと同じ回転機械が、頭部をストロマ側に向けて配置されています。
Seelert らは 2000 年に葉緑体の型を原子間力顕微鏡で撮影し、回転子のリングが 14 個のサブユニットからなることを見いだしました。プロトン 1 個が通過するたびにリングがサブユニット 1 個分動くので、14 個のプロトンで 1 回転し、1 回転で頭部から 3 ATP が放出されます。つまり ATP 1 個あたり 14 ÷ 3 ≈ 4.67 個のプロトンです。光化学反応(明反応)が速まるにつれてルーメンの赤い粒が増え、リングを通って列をなして進む様子が見られます。
Rubisco とカルビン回路
ストロマには、実際の固定を行う酵素、リブロース-1,5-ビスリン酸カルボキシラーゼ/オキシゲナーゼがあり、通常は Rubisco と略します。これは CO₂ 1 分子を、RuBP という炭素 5 個の糖に結合させます。生じた炭素 6 個の物質は直ちに 2 つに分かれ、炭素 3 個の 3-PGA が 2 分子できます。OpenStax は回路を固定、還元、再生に分けています。
還元では ATP と NADPH が 3-PGA を、炭素 3 個の糖リン酸である G3P に変えます。再生では G3P の大部分が RuBP に組み直されて回路の継続を可能にしますが、さらに ATP が必要です。1 周で加わる炭素は 1 個だけなので、外へ出す余剰の G3P を 1 分子得るには 3 周が必要です。この 3 周で回路は 9 ATP と 6 NADPH を使います。6 周分でグルコース 1 分子ができます。
モデルの回路は Rubisco を頂点として時計回りに描かれています。粒は周回しながら、3-PGA の青、G3P のオレンジ、RuBP の緑へ色が変わります。粒が Rubisco を通るたびに CO₂ 分子が到着し、下の膜から ATP と NADPH が飛んできて、固定 3 回ごとに糖の六角形 1 個が右へ送り出されます。
数値を確かめる
展示の収支計算は、画面上で 1 秒あたりに固定される CO₂ という 1 つの数値で結びついています。それ以外はすべて参考資料に基づいています。
- CO₂ 1 分子の固定につき、カルビン回路は 9 ÷ 3 = 3 ATP と 6 ÷ 3 = 2 NADPH を使います。
- NADPH はそれぞれ電子 2 個を運ぶので、2 NADPH には電子 4 個が必要です。電子 4 個は水 2 分子の分解から得られ、O₂ 1 分子が放出されます。そのため全体の反応式どおり、CO₂ 1 分子の固定ごとに O₂ 1 分子が出ていきます。
- 電子はそれぞれ両方の光化学系を通り、各系で光子 1 個を使います。そのため、この単純な直線経路では、電子 4 個、つまり O₂ 1 分子あたり光子 8 個が必要です。
- CO₂ 1 分子あたり 3 ATP、3 ATP あたりプロトン 14 個なので、CO₂ 1 分子ごとにプロトン 14 個が ATP 合成酵素を通ります。
カウンターでこれを確かめられます。しばらくすると「ATP 生成」は「CO₂ 固定」のほぼ 3 倍、「NADPH 生成」はほぼ 2 倍、「O₂ 放出」はほぼ同じになります。各カウンターがアニメーションの異なる時点で増えるため、1~2 のずれが生じます。
速度曲線はモデルであり、葉の測定結果ではありません。光応答は、教科書で標準的に使われる非直角双曲線です。総速度 P は θP² − (αI + Pc)P + αIPc = 0 を満たします。ここで I は光、α = 0.11 は初期勾配、θ = 0.8 は曲がりの鋭さを定め、Pc は二酸化炭素と温度で決まる上限です。上限は CO₂ とともに 100 × (C − 50) ÷ (C − 50 + 300) に従って上がり、25 °C に頂点を持つ非対称な釣鐘型曲線が掛け合わされます。25 °C で 3 単位、10 °C ごとに倍増する呼吸を差し引いて正味の速度を求めます。速度は、100 を上限とする尺度のモデル単位で示しています。
計算すると、モデルは次の値を示します。初期設定の 426 ppm、25 °C では、正味の速度は暗所で −3(葉は呼吸だけを行います)、光が 200 で 16.8、2,000 で 49.4 です。光が約 1,274 で、曲線は上限の 90 パーセントに達します。CO₂ を 1,000 ppm に上げると曲線の頂部は 62.8 に上がり、90 パーセントの点は約 1,636 へ移ります。モデルで最適な温度は 24.5 °C です。初期値の 426 ppm は NOAA のマウナロアの記録に由来し、2026 年 9 月の月平均は 426.07 ppm です。
光、二酸化炭素、温度がそれぞれ制限になる理由
曲線には 2 つの部分があります。弱い光では、加わる光子がすべて利用され、ほかに不足するものがないため、ほぼ直線的に上昇します。強い光ではカルビン回路が追いつかず、平らになります。Rubisco は遅く、二酸化炭素を必要としますが、光を増やしても二酸化炭素は増えません。表示には速度を抑えている要因の名前が出ます。
そのためスライダーの働きは異なります。CO₂ を増やしても弱光部分はほとんど変わりませんが頂部が上がるので、CO₂ を加えた温室の葉は強い光の下で最も恩恵を受けます。温度は主に酵素に影響するので、曲線の上部全体を縮めたり伸ばしたりします。気孔を閉じると、葉の内部の CO₂(「内部の CO₂」と表示)が減り、外気が変わらなくても上限が下がります。破線は比較用として常に初期設定の葉を示します。
モデルで省いていること
モデルは分かりやすさを重視して描かれており、階層間の縮尺はそろえていません。また、タンパク質は測定された構造ではなく、滑らかな塊です。現実の過程のいくつかを省いています。
- Rubisco は酸素とも反応します。この副反応である光呼吸は炭素を浪費し、葉が温まると増えます。モデルでは温度曲線の形を通してわずかに示すだけです。
- 植物は光化学系 I の周りで循環的電子伝達も行い、NADPH を作らずに追加の ATP を作ります。モデルは直線経路だけを示すので、ATP と NADPH の数がカルビン回路と正確に一致します。
- C4 植物とサボテンなどの CAM 植物は、Rubisco に届く前に CO₂ を濃縮します。OpenStax は、サボテンが夜間に CO₂ を取り込み、昼間は気孔を閉じておく仕組みを説明しています。それらの曲線は大きく異なります。
- Yamori らの 2014 年の総説が示すように、実際の最適温度は種によって異なり、植物が生育温度に順化するにつれて変化します。ここでの頂点の 25 °C は、モデル用に選んだ切りのよい数値です。
- 水の損失は、FAO の飽和水蒸気圧の式を使い、気孔の開きと湿度 50 パーセントの空気の乾燥力から換算したモデル単位で示します。
短い歴史
Melvin Calvin は、植物の二酸化炭素同化の研究により 1961 年のノーベル化学賞を受賞しました。現在は彼の名を持つ回路の中で炭素がどう動くかを追跡した研究です。多くの教科書は、研究に携わった別の科学者も含め、カルビン・ベンソン回路と呼んでいます。Peter Mitchell の化学浸透説は、ミトコンドリアと葉緑体の両方でプロトン勾配が ATP 合成を駆動する仕組みを説明し、1978 年のノーベル化学賞を受けました。1988 年には Johann Deisenhofer、Robert Huber、Hartmut Michel が、光合成反応中心の立体構造の決定で化学賞を共同受賞しました。膜タンパク質として初めて原子ごとに解明された構造です。光化学系 II の水分解クラスターの構造は、2011 年に明らかになりました。
光子と蓄えられるエネルギーを数える
光子 8 個という値が表すのは、理想的な電子伝達の収支であり、太陽光のうち作物になる割合ではありません。2 NADPH を供給するには、電子 4 個をそれぞれ 2 回励起する必要があります。固定した CO₂ 1 分子を吸収光子 8 個で割ると、限界量子収率は光子 1 個あたり 0.125 CO₂ になります。仮に葉が CO₂ 1 分子の固定に吸収光子 10 個を必要とすれば、収率は 0.100 になります。これらは計算例です。後者は普遍的に測定された必要量ではありません。追加の ATP 生成、光呼吸、その他の損失によって、必要量は条件とともに変わります。
仮に 1 平方メートルあたり毎秒 800 マイクロモルの吸収光子を届ける光線なら、光子 8 個の収支で、1 平方メートルあたり毎秒 100 マイクロモルの CO₂ 固定が可能になります。光子 10 個の収支なら 80 です。どちらも展示の「正味の速度」を予測する値ではありません。縦軸はモデル単位で、別途呼吸の項も含むからです。光子束と炭素流束は、どちらもマイクロモルを使いますが、意味は異なります。光子を数えるだけではエネルギー効率は分かりません。青い光子は赤い光子より多くのエネルギーを持っています。
Zhu、Long、Ort の 2008 年の総説は、30 °C、CO₂ 380 ppm での太陽光からバイオマスへの最大変換効率を、C3 植物で 4.6%、C4 植物で 6% と推定しました。この濃度は論文の仮定であり、現在の空気の値ではありません。これらの割合は、入射する太陽光の全スペクトルを分母としています。吸収光子あたりの収率や、可視光だけから計算した効率と直接比較してはいけません。太陽光の多くは通常の光合成有効波長帯の外にあり、残りも反射や代謝コストで減ります。
エネルギー収支の練習として、ある面積と期間で作物が合計 1,000 MJ の太陽エネルギーを受け止めたとします。変換効率を 1% と仮定すればバイオマスに 10 MJ、2% なら 20 MJ が蓄えられます。これらの割合は圃場での性能を例示する仮定であり、あらゆる作物の測定値ではありません。可食部の収量を自動的に保証するものでも、受け止めた光がすべて機能している葉に届くとするものでもありません。根や茎にも化学エネルギーが蓄えられています。十分に照らした葉の短時間の測定と、栽培期間全体の収穫量は、異なる問いに答えるものです。
補償と飽和はどこが違うのでしょうか
光補償点では、光合成による総炭素吸収と呼吸による炭素損失がちょうど釣り合い、正味の交換がゼロになります。それより下でも光合成は続いていることがありますが、収支では呼吸が上回ります。飽和では光を増やしても炭素吸収はほとんど増えません。両者は曲線上の異なる場所であり、最初の曲がりの別名ではありません。
「空気中の CO₂」が 426 ppm、「葉の温度」が 25 °C、「気孔の開き」が 100% のとき、コードによる補償光量は 1 平方メートルあたり毎秒約 27.6 マイクロモルの光子です。この値は展示の正味速度の式をゼロについて解いて得られます。このモデルの計算値であり、公表されたオークの葉の閾値ではありません。操作では光を整数で設定するので、28 が交点に近い実用的な設定です。光がゼロでは正味の速度はモデル単位で −3 です。ゼロをまたいでも呼吸が止まったわけではありません。
90% の目印は、計算された上限に対する総光合成を使います。この設定では約 1,274 にあります。そこでの速度は数学的に平らな台地には達しておらず、グラフが表示する正味の速度からは呼吸が差し引かれています。異なる割合を使えば飽和の目印も変わります。そのため飽和を数値で示すときは、必ず基準を明記すべきです。
日陰に順化した葉は呼吸速度が低く、より弱い光で正味の炭素獲得に達することがあります。陽葉はより高い最大速度を支えられることがあります。展示は実測された陽葉と陰葉のパラメーター群を切り替えるものではありません。また、その滑らかな応答には強すぎる光による損傷も含まれません。実際の群落では、上の葉が処理できる以上の光を受ける一方で、下の葉は光不足のままになることがあります。アンテナサイズの研究では、頂部での吸収を増やすだけでなく、光をより均等に分けることで群落全体の生産を高められるかを調べています。
C3 葉、トウモロコシ、サボテン
C3 と C4 という名前は、それぞれの初期固定経路で最初にできる安定生成物の炭素数を指します。C3 葉では Rubisco が CO₂ を直接 RuBP に付加し、直後の安定生成物は炭素 3 個の 3-PGA です。コムギとイネはこの経路を使います。Rubisco は酸素とも反応します。この酸素添加が光呼吸を開始し、この回収経路はエネルギーを消費して、以前固定した炭素の一部を放出します。これは暗所でのミトコンドリア呼吸と同じ過程ではありません。
トウモロコシとサトウキビは C4 植物です。最初の取り込みは葉肉細胞の PEP カルボキシラーゼを使い、炭素 4 個の化合物を生じます。それらの化合物が炭素を維管束鞘細胞へ運び、そこで Rubisco の近くに CO₂ が放出されます。カルビン回路はそのまま働き、C4 代謝がより濃縮された CO₂ 源を供給します。このポンプの維持には追加のエネルギーが必要なので、C4 はどの温度や光量でも無条件に優れるわけではありません。暑さと低い内部 CO₂ によって光呼吸が起こりやすい状況で、特に利点があります。
多くのサボテンは CAM を使います。外部から取り込む CO₂ の多くを夜間に吸収し、炭素を有機酸に一時的に蓄えます。昼間は酸の分解が CO₂ を供給し、その間気孔をより固く閉じたままにできます。C4 は通常、最初の取り込みとカルビン回路を異なる細胞型に分け、CAM は仕事の多くを夜と昼に分けます。この違いから、普通の昼間の C3 葉のモデルにサボテンを当てはめると誤解を招く理由が分かります。
したがって Rubisco のカルボキシル化能力は、問題の一部にすぎません。基質の供給も重要です。酵素が無傷でも気孔を閉じると炭素吸収が制限されることがあり、外部の CO₂ を増やしても、十分な量が葉緑体へ届かなければ役立たない場合があります。葉の種類では C3 陽葉、C3 陰葉、トウモロコシ型の C4 葉を選べますが、3 つともモデル曲線です。C4 設定では CO₂ 応答が現在の空気の濃度付近で飽和し、補償点はほぼゼロで、最適温度は高く、ポンプに必要な追加の ATP を表すため初期勾配を低くしています。Rubisco の代謝回転、酸素添加、ポンプ自体は計算していません。陰葉は Boardman の陽生植物と陰生植物の総説に従い、能力も呼吸も低いため、弱光で収支が釣り合い、早く飽和します。CAM 設定はなく、3 つのどれも実際の作物の収量を順位づけするためには使えません。
緑の葉からは分からないこと
緑に見えるからといって、緑の光子が光合成を駆動できないとは示せません。単離したクロロフィルは青と赤の波長帯を強く吸収しますが、葉は多くの葉緑体を含む、厚く光を散乱する構造です。緑の光の一部は外へ出て、一部は吸収されるまでに組織の奥まで進みます。色素溶液の吸収スペクトルと葉全体の作用スペクトルは、置き換え可能な測定ではありません。
Liu と van Iersel の 2021 年の研究は、異なる光スペクトルと光子束の下でレタスを調べました。弱い光では吸収が少ないため、緑の光の入射光量子収率は低くなりました。強い光ではその量子収率は最も高い群に入り、葉の中に励起がより均等に分布することと整合しました。これは条件付きの結果であり、緑だけのランプが常に作物をよく育てるという推奨ではありません。光の色は、その傾向を大まかに取り入れています。変えるのは曲線の初期勾配だけ(緑が最低で、次に青、白、赤)なので、色の違いは弱光で最大となり、強光ではほぼ重なります。その係数はモデル値で、展示は深さに応じた吸収をシミュレーションしていません。
土についての誤解には、別の区別が必要です。新しい木材の炭素は主に大気中の CO₂ に由来しますが、生の木を量ると相当量の水も含まれています。水は根から入り、土の無機養分も、乾燥質量に含まれる有機炭素の主な供給源でないとはいえ不可欠です。植物が重くなっても鉢の土がほとんど減らないことは、土が大部分の供給源だという考えに反しますが、それだけで増加分の供給源をすべて特定することはできません。乾燥質量の比較と炭素の追跡は、湿った植物だけを量るより強い検証です。
同様に、画面上の糖の記号は収支計算用の記号であり、固定のたびに葉緑体が完成したグルコース分子を放出するという主張ではありません。カルビン回路は数周後に炭素 3 個の生成物を送り出し、さらに代謝が進んで糖やその他の物質ができます。見える気泡が示すのは放出された気体であり、成長する茎の炭素源ではありません。
水草の気泡と斜めからの光
学校では水生植物で光合成を測定します。Royal Society of Biology の Practical Biology の手順では、切った Elodea または Cabomba をランプの下の水中に置き、切り口から上がる気泡を 1 分間数えて、これを繰り返し平均を取ります。前提も明記しています。気泡は酸素だけであり、酸素生成は速度に比例し、気泡の大きさは同じと仮定します。小さなランプからの光は距離の二乗に反比例するので、ランプを 2 倍遠ざけると光は約 4 分の 1 になります。
舞台のビーカーは、同じ実験をモデル内で行います。1 分あたりの数はモデルの正味の速度に一定の係数を掛けたもので、教室で見られる数値ではなく、変化の向きと比率を示します。水草は C3 水生植物として扱うため、気孔の開きでは変化しません。
太陽はドラッグできます。斜めに届く光は葉のより広い範囲に広がり、葉の 1 平方メートルあたりの光は真上からの角度のコサインに従って減ります。60 度では、葉が受ける光は太陽が真上にあるときの半分です。表示は両方の数値を示します。光は光源の強さ、葉に届く光は速度曲線が使う値です。
画面で試す
- 操作を初期値のままにして、太陽を地平線の方へ下げてください。光が一定のまま、葉に届く光は角度のコサインに従って減り、光線がまばらになり、水草の働きが遅くなります。1 分あたりの気泡数はモデル値です。
- 光を 0 にしてください。タイトルの下の行が CO₂ の放出に切り替わり、分子の流れが逆転して水草が止まります。正味の速度が 0 を超えるまで、光をゆっくり上げてください。そこが補償点で、このモデルの 426 ppm、25 °C では約 28 µmol/m²/s です。
- 光を 2,000 にし、点と 90% の目印を比較してください。次に空気中の CO₂ を 1,000 に上げてください。葉の周りの CO₂ の雲が濃くなり、曲線の上部が上がります。炭素による上限が変わり、ランプは変わらないためです。
- 葉の温度を 40 に上げてください。水の損失が増え、葉が黄ばんで垂れ、速度が下がります。気孔の開きを狭め、拡大した気孔が閉じる様子を見てください。葉が失う水が減り、内部の CO₂ が下がります。
- 葉の種類を C4、光の色を緑に切り替えてください。次に縮尺でチラコイド膜まで降り、光化学系 II から NADPH まで電子を追ってください。ATP、NADPH、CO₂ 固定のカウンターは、上で説明した 3 対 2 対 1 の収支を保ちます。独立した測定値ではありません。
よくある質問
光合成で生じる酸素はどこから来ますか?
二酸化炭素ではなく水から来ます。光化学系 II が水から電子を取り出し、水 2 分子の分解で O₂ 1 分子が放出されます。CO₂ の炭素は有機分子に組み込まれます。全体の反応式は、水との酸素交換を原子ごとに示したものではありません。
葉はなぜ緑ですか?
クロロフィルは赤と青の光を強く吸収し、緑は反射または透過します。緑の光が役に立たないという意味ではありません。吸収された緑の光は、特に強い照明の下で葉のより深い場所の光合成を駆動できます。
光化学反応(明反応)とカルビン回路はどう違いますか?
光化学反応(明反応)はチラコイド膜で進み、光を ATP と NADPH に変えて酸素を放出します。カルビン回路はストロマで進み、その ATP と NADPH を使って CO₂ を糖に固定します。ATP と NADPH が作られる昼間に回路は動くため、古い呼び名の「暗反応」は誤解を招きます。
強い光で速度が上がらなくなるのはなぜですか?
ある光量を超えるとカルビン回路が律速になります。Rubisco の二酸化炭素固定速度には限界があり、気孔を通って CO₂ が届く必要もあります。その状態では光を増やしても変わりませんが、CO₂ を増やすことや温度を適切にすることは効果がある場合があります。
植物はなぜ気孔を閉じますか?
水を節約するためです。開いた気孔は CO₂ を入れる一方、水蒸気も外へ逃がし、植物が吸収する水の最大 90 パーセントがこうして失われることがあります。暑く乾いた日には、孔を閉じることが光合成を犠牲にして植物を守ります。
O₂ 1 分子を作るには光子が何個必要ですか?
単純な直線経路では 8 個です。水 2 分子から O₂ 1 分子を放出するには電子 4 個が必要で、各電子は光化学系 II と光化学系 I で 1 回ずつ、合計 2 回エネルギーを与えられます。
葉緑体の ATP 合成酵素はミトコンドリアのものと同じですか?
同じ仕組みで働き、同じ部品を持ちますが、葉の葉緑体の回転子リングは 14 個のサブユニットからなり、動物のミトコンドリアのリングより多くなっています。リングが大きいほど ATP 1 個あたりに必要なプロトンが増えます。ATP 合成酵素の展示ではリングの大きさを変えられます。
緑の光で光合成はできますか?
はい。葉の内部で吸収された緑の光子は光合成に寄与します。表面での吸収が少ないことで、より深い葉緑体に届く場合があります。その利点は光の強さと葉の構造によります。
C4 植物はカルビン回路を使わないのですか?
いいえ。CO₂ を濃縮してから Rubisco とカルビン回路へ供給します。この追加の炭素濃縮経路にはエネルギーコストがあります。
補償点は光合成が始まる点ですか?
いいえ。光合成による吸収と呼吸による放出が釣り合う点です。それより下でも、正味の炭素交換が負であるにもかかわらず、光合成は続くことがあります。
用語
- 気孔(英語では stoma、複数形は stomata):葉の表面で 2 個の孔辺細胞に挟まれた孔です。
- 葉肉:柵状組織と海綿状組織からなる葉の内部組織です。
- 葉緑体:光合成が起こる細胞小器官です。
- チラコイド:葉緑体内部の扁平な膜の袋で、積み重なったものがグラナです。
- ストロマ:チラコイドの周囲の液体で、カルビン回路が進む場所です。
- ルーメン:チラコイド内部の空間で、プロトンが集まります。
- 光化学系:色素のアンテナと、光で電子を動かす反応中心を持つタンパク質複合体です。
- NADPH:光化学反応(明反応)で作られ、カルビン回路で炭素の還元に使われる電子運搬体です。
- Rubisco:CO₂ を RuBP に結合させる酵素です。
- G3P:グリセルアルデヒド 3-リン酸で、カルビン回路が送り出す炭素 3 個の糖です。
- 蒸散:植物から、主に気孔を通じて水蒸気が失われることです。
- 光飽和:それ以上光を強くしても、光合成速度があまり上がらなくなる光量です。
参考資料
OpenStax, Biology 2e, 8.1 Overview of Photosynthesis (生態系の 99 パーセント、葉緑体、チラコイド、グラナ、ストロマ、ルーメン、下面の気孔). https://openstax.org/books/biology-2e/pages/8-1-overview-of-photosynthesis (確認日 2026-10-16)
OpenStax, Biology 2e, 8.2 The Light-Dependent Reactions of Photosynthesis (400~700 nm、アンテナあたりクロロフィル 300~400 個、100 万分の 1 秒、P680、P700、水の分解、ミトコンドリアによる O₂ の約 10 パーセントの使用、プラストキノン、シトクロム複合体、プラストシアニン). https://openstax.org/books/biology-2e/pages/8-2-the-light-dependent-reactions-of-photosynthesis (確認日 2026-10-16)
OpenStax, Biology 2e, 8.3 Using Light Energy to Make Organic Molecules (Rubisco、RuBP、3-PGA、G3P、送り出す G3P あたり 3 周、還元の 6 ATP と 6 NADPH に再生の 3 ATP、サボテン). https://openstax.org/books/biology-2e/pages/8-3-using-light-energy-to-make-organic-molecules (確認日 2026-10-16)
OpenStax, Biology 2e, 30.4 Leaves (クチクラ、表皮、柵状組織と海綿状組織、孔辺細胞、葉脈). https://openstax.org/books/biology-2e/pages/30-4-leaves (確認日 2026-10-16)
OpenStax, Biology 2e, 30.5 Transport of Water and Solutes in Plants (蒸散による最大 90 パーセントの水の損失、孔辺細胞の応答). https://openstax.org/books/biology-2e/pages/30-5-transport-of-water-and-solutes-in-plants (確認日 2026-10-16)
NOAA Global Monitoring Laboratory, Trends in Atmospheric Carbon Dioxide (マウナロアの月平均 426.07 ppm、2026 年 9 月). https://gml.noaa.gov/ccgg/trends/ (確認日 2026-10-16)
Umena Y, Kawakami K, Shen J-R, Kamiya N, Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å, Nature 473, 55 (2011) (Mn4CaO5 クラスター、結合した水 4 分子). https://www.nature.com/articles/nature09913 (確認日 2026-10-16)
Seelert H, Poetsch A, Dencher NA, Engel A, Stahlberg H, Müller DJ, Proton-powered turbine of a plant motor, Nature 405, 418 (2000) (葉緑体の ATP 合成酵素のリングの 14 個のサブユニット). https://www.nature.com/articles/35013148 (確認日 2026-10-16)
Yamori W, Hikosaka K, Way DA, Temperature response of photosynthesis in C3, C4, and CAM plants: temperature acclimation and temperature adaptation, Photosynthesis Research 119, 101 (2014). https://link.springer.com/article/10.1007/s11120-013-9874-6 (確認日 2026-10-16)
FAO, Crop evapotranspiration, Irrigation and Drainage Paper 56, 第 3 章 (飽和水蒸気圧、式 11). https://www.fao.org/4/x0490e/x0490e07.htm (確認日 2026-10-16)
NobelPrize.org, The Nobel Prize in Chemistry 1961 (Melvin Calvin). https://www.nobelprize.org/prizes/chemistry/1961/summary/ (確認日 2026-10-16)
NobelPrize.org, The Nobel Prize in Chemistry 1978 (Peter Mitchell). https://www.nobelprize.org/prizes/chemistry/1978/summary/ (確認日 2026-10-16)
NobelPrize.org, Press release: The Nobel Prize in Chemistry 1988 (光合成反応中心の構造). https://www.nobelprize.org/prizes/chemistry/1988/press-release/ (確認日 2026-10-16)
Zhu, Long and Ort (2008), What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? University of Illinois の記録と要旨 (4.6%、6%、30 °C、380 ppm の仮定). https://experts.illinois.edu/en/publications/what-is-the-maximum-efficiency-with-which-photosynthesis-can-conv (HTTP 200, 確認日 2026-10-23)
Ort, Zhu and Melis (2011), Optimizing Antenna Size to Maximize Photosynthetic Efficiency, Plant Physiology (群落内の光分布、量子収率、応答曲線). https://pmc.ncbi.nlm.nih.gov/articles/PMC3014228/ (HTTP 200, 確認日 2026-10-23)
Royal Society of Biology, Practical Biology, Investigating factors affecting the rate of photosynthesis (水草の気泡数、仮定、光と距離). https://practicalbiology.org/energy/photosynthesis/investigating-factors-affecting-the-rate-of-photosynthesis.html (確認日 2026-10-26)
Boardman (1977), Comparative photosynthesis of sun and shade plants, Annual Review of Plant Physiology 28. https://doi.org/10.1146/annurev.pp.28.060177.002035 (確認日 2026-10-26)
Liu and van Iersel (2021), Photosynthetic Physiology of Blue, Green, and Red Light, Frontiers in Plant Science (レタス、強度に依存する緑の光への応答). https://pmc.ncbi.nlm.nih.gov/articles/PMC7977723/ (HTTP 200, 確認日 2026-10-23)
解説とシミュレーションは CC BY-NC-SA 4.0(特記のあるものを除く)。
ほかの展示
動物の見え方:69種の目で色と視力を比べる体験
緑の芝生の赤いボールはヒトには見つけやすくても、イヌには難しいものです。同じ花にも、ミツバチだけが見える模様があります。

セコイアはなぜ大きい?巨木の森で高さと成長のしくみを知る
高さ 83.8 m、推定樹齢約 2,200 年の General Sherman Tree の根元に立ち、幹に登って高い場所の水が引かれる強さを調べます。
馬の走り方のしくみ:常歩・速歩・駈歩・襲歩
1878年、マイブリッジのカメラは、襲歩の馬が実際に四肢すべてを宙に浮かせることを示しました。ただし脚は体の下にたたまれています。地面をまったく離れずに速く走る動物もいます。

CRISPR-Cas9ゲノム編集を動かして見るシミュレーター
ガイド RNA が読むのは DNA のわずか 20 文字。それだけで、ヒトゲノムの 30 億塩基対の中からたいてい 1 か所を選び出せます。

ATP合成酵素を動かしてしくみを見る
ミトコンドリアの ATP 合成酵素は毎秒約100回転し、1回転ごとに ATP を3分子放出します。

恐竜の大きさ比較:実物大の古生物172種と歩く
幅 600 m の園内に、最初の恐竜からティラノサウルスまで、172 種の古生物が実物大で時代順に並んでいます。