FIG. 69Cómo funciona
Fotosíntesis: cómo funciona
Una hoja a pleno sol extrae dióxido de carbono del aire, que solo contiene unas 426 partes por millón, y construye azúcar con él.
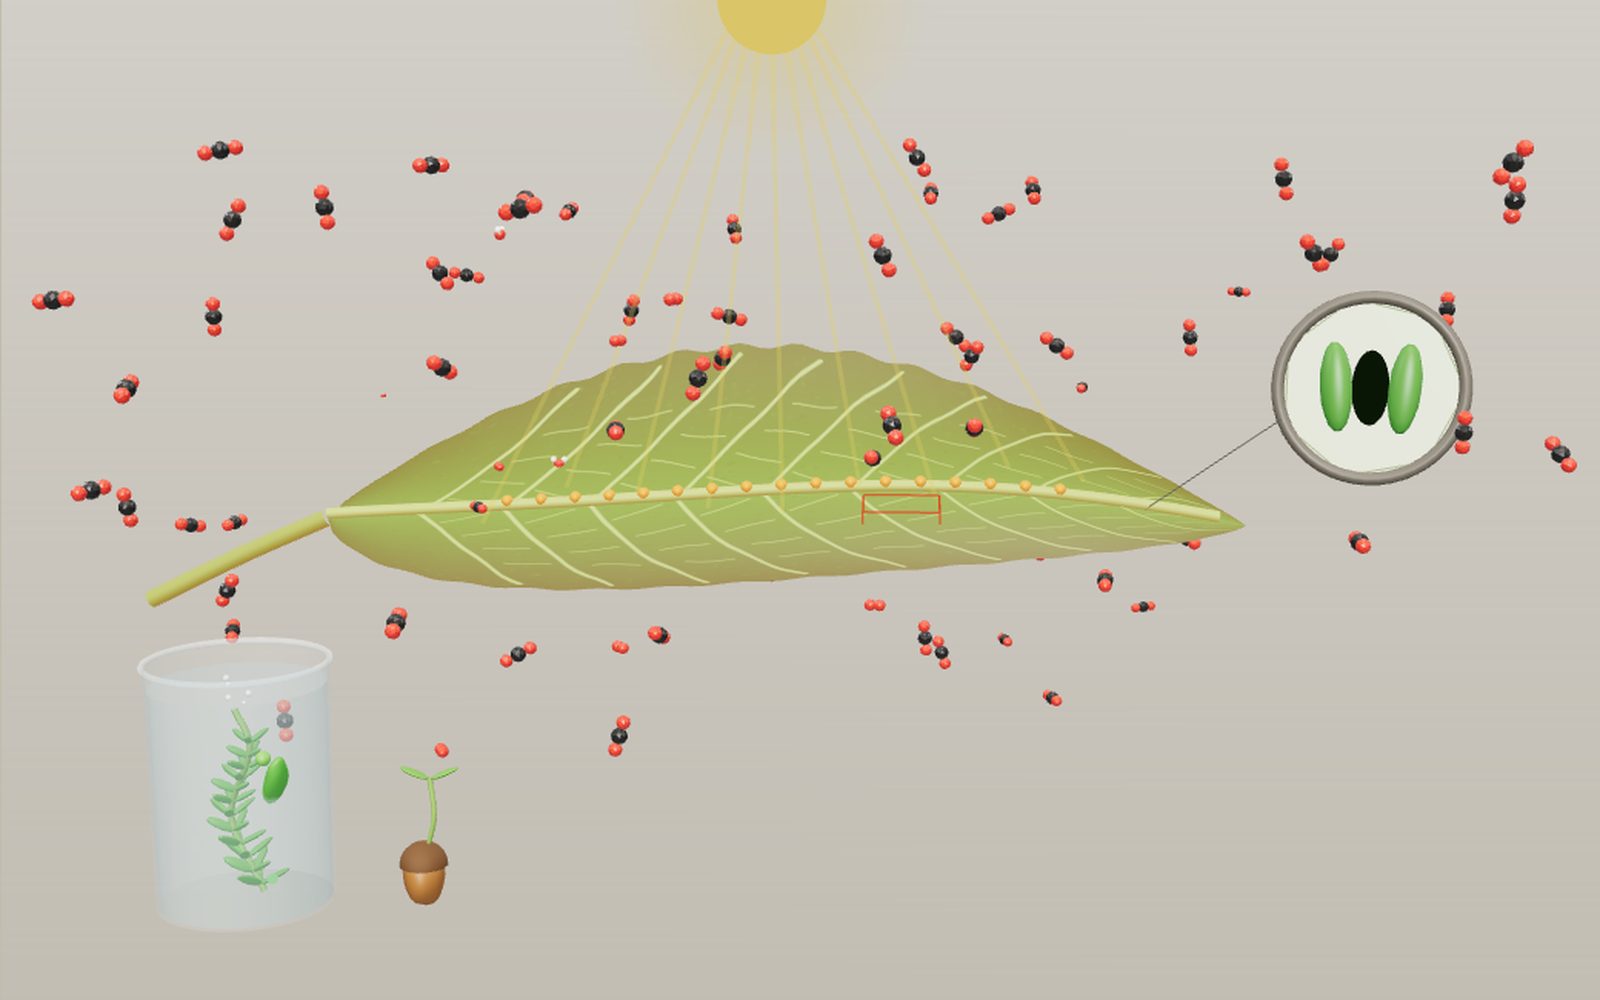
Este dispositivo no puede mostrar el modelo 3D. Abajo puedes leer los pasos de la guía como texto.
1 / 8 Una hoja al solEsta hoja es el punto de partida. Arrastra el sol para inclinar la luz y observa el aire: entran moléculas de CO₂, sale O₂ y la planta acuática del vaso produce burbujas. El recuadro rojo marca el bloque que extraeremos después.
Arrastra para girar. Usa la rueda o pellizca para ampliar.
¿De dónde procede la madera de un árbol?
Una semilla pesa menos de un gramo, y el roble que crece de ella puede pesar muchas toneladas. La mayor parte de esa masa no salió del suelo. Salió del aire, en forma de dióxido de carbono, y se convirtió en azúcar dentro de las hojas verdes gracias a la energía de la luz. El mismo proceso produce el oxígeno que respiramos. El libro de biología de OpenStax expresa claramente su alcance: la fotosíntesis proporciona energía al 99 por ciento de los ecosistemas de la Tierra.
La reacción global cabe en una línea: seis moléculas de dióxido de carbono y seis de agua se convierten en una de azúcar y seis de oxígeno. Esa línea oculta una larga cadena de pasos, repartidos entre tamaños que van de una hoja entera a proteínas individuales de unas pocas milmillonésimas de metro de ancho. Esta exposición recorre esa cadena. Empieza con una hoja, extrae un bloque de ella, abre un cloroplasto y después se sitúa sobre un fragmento de membrana tilacoidal donde la luz se transforma en energía química. Tres deslizadores modifican la luz, el dióxido de carbono y la temperatura, y una curva en la esquina muestra cómo responde la velocidad.
Una hoja está construida para captar luz y dejar entrar aire
Una hoja tiene dos tareas que se contraponen. Debe extender sus células verdes hacia la luz y permitir que el aire llegue a ellas, perdiendo la menor cantidad de agua posible. Sus capas resuelven ese problema.
La parte superior está cubierta por una cutícula cerosa, que frena la pérdida de agua, y debajo se encuentra la epidermis, normalmente una sola capa de células transparentes. Más abajo están las células en empalizada, columnas altas dispuestas muy juntas. El capítulo de OpenStax sobre las hojas las describe como células con forma de columna, estrechamente agrupadas en una a tres capas, que contienen la mayoría de los cloroplastos de la hoja. En el modelo, cada columna se dibuja transparente para que los cloroplastos de su interior aparezcan como esferas de color verde oscuro.
Bajo la capa en empalizada, las células cambian. El mesófilo esponjoso está formado por células irregulares y poco compactas, con aire entre ellas. Esos espacios aéreos son los pulmones de la hoja: el gas que entra por el envés se distribuye por ellos hasta cada célula. Una nervadura atraviesa el centro del bloque, con el xilema que trae agua desde las raíces y el floema que transporta el azúcar hacia fuera.
Los estomas intercambian agua por dióxido de carbono
El envés de la hoja está salpicado de estomas, pequeños poros situados entre dos células oclusivas cada uno. Cuando las células oclusivas se llenan de agua y se hinchan, se curvan separándose y el poro se abre. Cuando pierden turgencia, se cierra. Las células oclusivas son las únicas células de la epidermis que tienen cloroplastos.
Un poro abierto ofrece una ventaja con un coste. El dióxido de carbono solo puede entrar si el poro está abierto, pero el vapor de agua sale por el mismo camino, porque el aire del interior de una hoja está casi saturado y el exterior normalmente no. Según OpenStax, hasta el 90 por ciento del agua que una planta absorbe por las raíces puede perderse así, por transpiración. Las células oclusivas responden a la luz, al estado hídrico de la hoja y al dióxido de carbono, de modo que una planta puede cerrar sus estomas en una tarde calurosa y seca y aceptar menos fotosíntesis a cambio de conservar su agua.
En el modelo, el deslizador Estomas mueve las células oclusivas. Las moléculas de CO₂ de color gris oscuro y rojo entran por los poros, y las moléculas de agua azules y blancas salen. Cierra los poros y ambos flujos caen a cero. La cifra de Pérdida de agua aumenta con la apertura y con la temperatura, porque el aire caliente puede contener más agua y por eso seca la hoja más deprisa.
Dentro de un cloroplasto
Cada esfera verde de una célula en empalizada es un cloroplasto. Tiene una envoltura doble alrededor de un interior acuoso llamado estroma. En el estroma flota un tercer conjunto de membranas, los tilacoides, sacos aplanados que se apilan formando grana y que están unidos por láminas individuales. El espacio del interior de cada saco es el lumen.
Esa disposición divide el trabajo en dos. La fase luminosa tiene lugar en las membranas tilacoidales y produce dos transportadores de energía, ATP y NADPH. El ciclo de Calvin ocurre en el estroma y los utiliza para construir azúcar a partir de dióxido de carbono. La última escala de la exposición muestra ambos a la vez: la membrana atraviesa el centro, con el estroma encima y el lumen debajo.
El fotosistema II extrae electrones del agua
La luz llega en forma de fotones. La clorofila absorbe bien la luz roja y azul y refleja la verde, por eso las hojas se ven verdes. Las plantas utilizan longitudes de onda de unos 400 a 700 nm, que los fisiólogos vegetales llaman radiación fotosintéticamente activa.
Los fotones son captados por complejos antena. OpenStax atribuye a cada complejo captador de luz entre 300 y 400 moléculas de clorofila, además de carotenoides. La energía de un fotón absorbido pasa de un pigmento a otro hasta que, después de aproximadamente una millonésima de segundo, llega a un centro de reacción. En el fotosistema II, ese centro es un par de clorofilas llamado P680, y la energía impulsa uno de sus electrones hacia un aceptor.
P680 necesita ahora recuperar un electrón y lo obtiene del agua. En el lado del lumen del fotosistema II se encuentra un grupo de cuatro átomos de manganeso, uno de calcio y cinco de oxígeno. Umena y sus colaboradores lo cartografiaron con una resolución de 1,9 Å en 2011 y encontraron cuatro moléculas de agua unidas a él. El grupo extrae electrones del agua de uno en uno. La ruptura de dos moléculas de agua da cuatro electrones, cuatro protones y una molécula de O₂. OpenStax señala que las propias mitocondrias de la hoja utilizan alrededor del 10 por ciento de ese oxígeno, y el resto escapa al aire.
En el modelo, los trazos amarillos son fotones y las esferas cian son electrones. Cada vez que cuatro electrones salen del fotosistema II, una molécula de O₂ se aleja del grupo y el contador de O₂ aumenta en uno.
De la plastoquinona al NADPH
El electrón no permanece quieto. Se transfiere a la plastoquinona (esferas amarillas), una pequeña molécula que se mueve dentro de la membrana hasta el complejo citocromo b6f. Al pasar los electrones por b6f, este mueve protones del estroma al lumen. Al otro lado, la plastocianina (una proteína azul con cobre) recoge el electrón y lo lleva por la superficie del lumen hasta el fotosistema I.
Para entonces, el electrón ha perdido gran parte de su energía, por lo que el fotosistema I necesita un segundo fotón. Su centro de reacción, P700, vuelve a elevar la energía del electrón y lo pasa a la ferredoxina del lado del estroma. La enzima ferredoxina-NADP⁺ reductasa (FNR) coloca después dos electrones en NADP⁺ y forma NADPH. En el modelo, una molécula morada de NADPH sale de FNR por cada dos electrones y se dirige al ciclo de Calvin.
El gradiente de protones acciona la ATP sintasa
Dos procesos han llenado el lumen de protones: la ruptura del agua en el fotosistema II y el bombeo en b6f. El lumen se vuelve ácido y el estroma menos ácido, y los protones solo pueden regresar por una puerta. Esa puerta es la ATP sintasa, la misma máquina rotatoria que aparece en la exposición ATP sintasa, con su cabeza situada del lado del estroma.
Seelert y sus colaboradores obtuvieron imágenes de la versión de los cloroplastos mediante microscopía de fuerza atómica en 2000 y encontraron que el anillo de su rotor tiene 14 subunidades. Cada protón que lo atraviesa mueve el anillo una subunidad, de modo que 14 protones lo hacen girar una vez, y una vuelta libera 3 ATP de la cabeza. Eso equivale a 14 ÷ 3 ≈ 4,67 protones por ATP. Las esferas rojas del lumen se hacen más numerosas a medida que se acelera la fase luminosa, y puedes ver cómo pasan en fila por el anillo.
Rubisco y el ciclo de Calvin
El estroma contiene la enzima que realiza la fijación: ribulosa-1,5-bisfosfato carboxilasa/oxigenasa, normalmente abreviada como Rubisco. Une un CO₂ a un azúcar de cinco carbonos llamado RuBP. El producto de seis carbonos se divide de inmediato en dos moléculas de 3-PGA, que tiene tres carbonos. OpenStax divide el ciclo en fijación, reducción y regeneración.
En la reducción, el ATP y el NADPH convierten el 3-PGA en G3P, un azúcar fosfato de tres carbonos. En la regeneración, la mayor parte del G3P se reorganiza para volver a formar RuBP y permitir que el ciclo continúe, lo que cuesta más ATP. Como en cada vuelta solo se añade un carbono, hacen falta tres vueltas para obtener un G3P sobrante que pueda exportarse. A lo largo de esas tres vueltas, el ciclo utiliza 9 ATP y 6 NADPH. Lo producido en seis vueltas permite formar una glucosa.
El circuito del modelo está dibujado en sentido horario, con Rubisco arriba. Las esferas cambian de color al recorrerlo: azul para el 3-PGA, naranja para el G3P y verde para la RuBP. Una molécula de CO₂ llega a Rubisco cada vez que pasa una esfera; el ATP y el NADPH llegan desde la membrana inferior, y cada tercera fijación envía un hexágono de azúcar hacia la derecha.
Comprobación de los números
Las cuentas de la exposición están conectadas por una cifra, el CO₂ fijado por segundo en pantalla. Todo lo demás se deriva de las fuentes.
- Por cada CO₂ fijado, el ciclo de Calvin utiliza 9 ÷ 3 = 3 ATP y 6 ÷ 3 = 2 NADPH.
- Cada NADPH transporta 2 electrones, así que 2 NADPH necesitan 4 electrones. Cuatro electrones proceden de la ruptura de dos moléculas de agua, que libera un O₂. Por tanto, sale un O₂ por cada CO₂ fijado, como indica la ecuación global.
- Cada electrón pasa por ambos fotosistemas, con un fotón en cada uno. Por eso, cuatro electrones necesitan 8 fotones por O₂ en este esquema lineal sencillo.
- 3 ATP por CO₂, con 14 protones por cada 3 ATP, significa que 14 protones atraviesan la ATP sintasa por cada CO₂.
Puedes comprobarlo con los contadores. Al cabo de un tiempo, el ATP producido se aproxima al triple del CO₂ fijado, el NADPH producido se aproxima al doble y el O₂ liberado se aproxima a la misma cantidad. Difieren en una o dos unidades porque cada contador avanza en un momento distinto de la animación.
La curva de velocidad es un modelo, no una hoja medida. La respuesta a la luz es una hipérbola no rectangular, una forma habitual en los libros de texto. La velocidad bruta P resuelve θP² − (αI + Pc)P + αIPc = 0, donde I es la luz, α = 0,11 es la pendiente inicial, θ = 0,8 determina lo pronunciada que es la curvatura y Pc es un techo fijado por el dióxido de carbono y la temperatura. El techo aumenta con el CO₂ según 100 × (C − 50) ÷ (C − 50 + 300), y se multiplica por una curva de campana asimétrica con su máximo a 25 °C. Se resta la respiración, 3 unidades a 25 °C que se duplican cada 10 °C, para obtener la velocidad neta. Las velocidades se expresan en unidades del modelo, en una escala donde 100 es el techo.
Al calcularlo, el modelo da estos valores. Con los valores predeterminados de 426 ppm y 25 °C, la velocidad neta es −3 en la oscuridad (la hoja solo respira), 16,8 con una luz de 200 y 49,4 con 2000. La curva alcanza el 90 por ciento de su techo con una luz de aproximadamente 1274. Sube el CO₂ a 1000 ppm y la parte superior de la curva aumenta hasta 62,8, mientras el punto del 90 por ciento se desplaza hasta aproximadamente 1636. La mejor temperatura del modelo es 24,5 °C. El valor predeterminado de 426 ppm procede del registro de Mauna Loa de NOAA, que da una media mensual de 426,07 ppm para septiembre de 2026.
Por qué la luz, el dióxido de carbono y la temperatura imponen límites
La curva tiene dos partes. Con poca luz sube siguiendo una línea casi recta: cada fotón adicional se aprovecha y no falta ningún otro recurso. Con luz intensa se aplana, porque el ciclo de Calvin no puede seguir el ritmo. Rubisco es lenta y necesita dióxido de carbono, y más luz no le proporcionará más. El indicador nombra el factor que está frenando la velocidad.
Por eso los deslizadores actúan de forma distinta. Aumentar el CO₂ apenas modifica la parte de la curva con poca luz, pero eleva su parte superior, por lo que una hoja en un invernadero con CO₂ añadido obtiene el mayor beneficio con luz intensa. La temperatura modifica principalmente las enzimas, así que comprime o estira toda la parte superior de la curva. Cerrar los estomas reduce el CO₂ del interior de la hoja (mostrado como CO₂ interior), lo que baja el techo incluso cuando el aire exterior no cambia. La línea discontinua siempre representa la hoja predeterminada, para comparar.
Lo que el modelo deja fuera
El modelo se dibuja para resultar claro, no a escala entre niveles, y las proteínas son formas redondeadas lisas en vez de estructuras medidas. Faltan varios procesos reales.
- Rubisco también reacciona con el oxígeno. Esa reacción secundaria, la fotorrespiración, desperdicia carbono y empeora al calentarse las hojas. El modelo solo la sugiere mediante la forma de la curva de temperatura.
- Las plantas también realizan un flujo cíclico de electrones alrededor del fotosistema I, que produce ATP adicional sin NADPH. El modelo solo muestra la ruta lineal, de modo que sus cifras de ATP y NADPH coinciden exactamente con las del ciclo de Calvin.
- Las plantas C4 y las plantas CAM, como los cactus, concentran CO₂ antes de que llegue a Rubisco. OpenStax describe cómo los cactus absorben CO₂ de noche y mantienen los estomas cerrados de día. Sus curvas son bastante diferentes.
- Las temperaturas óptimas reales varían entre especies y cambian a medida que las plantas se aclimatan a la temperatura en la que crecen, como muestran Yamori y sus colaboradores en su revisión de 2014. El máximo de 25 °C utilizado aquí es un número redondo elegido para el modelo.
- La pérdida de agua se muestra en unidades del modelo, ajustadas a partir de la apertura estomática y del poder desecante del aire con un 50 por ciento de humedad, utilizando la fórmula de la FAO para la presión de vapor de saturación.
Una breve historia
Melvin Calvin recibió el Premio Nobel de Química de 1961 por su investigación sobre la asimilación del dióxido de carbono en las plantas, el trabajo que trazó cómo se mueve el carbono por el ciclo que hoy lleva su nombre. Muchos libros de texto lo llaman ciclo de Calvin-Benson, para incluir a otro científico que trabajó en él. La teoría quimiosmótica de Peter Mitchell, que explica cómo un gradiente de protones impulsa la síntesis de ATP tanto en mitocondrias como en cloroplastos, obtuvo el Premio Nobel de Química de 1978. En 1988, Johann Deisenhofer, Robert Huber y Hartmut Michel compartieron el premio de química por determinar la estructura tridimensional de un centro de reacción fotosintético, la primera proteína de membrana resuelta átomo por átomo. La estructura del grupo que rompe el agua en el fotosistema II llegó después, en 2011.
Contar fotones y energía almacenada
La cifra de ocho fotones describe un balance ideal de transferencia de electrones, no la fracción de luz solar que se convierte en un cultivo. Cada uno de los cuatro electrones debe excitarse dos veces para proporcionar dos NADPH. Dividir un CO₂ fijado entre ocho fotones absorbidos da un rendimiento cuántico límite de 0,125 CO₂ por fotón. Si una hoja hipotética necesita en cambio diez fotones absorbidos por cada CO₂ fijado, el rendimiento pasa a ser 0,100. Estos son ejemplos de cálculo. La segunda cifra no es un requisito universal medido: la producción adicional de ATP, la fotorrespiración y otras pérdidas modifican el requisito según las condiciones.
Para un haz de luz hipotético que suministre 800 micromoles de fotones absorbidos por metro cuadrado por segundo, el balance de ocho fotones permitiría fijar 100 micromoles de CO₂ por metro cuadrado por segundo. Un balance de diez fotones permitiría 80. Ninguno de los resultados predice la Velocidad neta de la exposición, porque su eje vertical está en unidades del modelo e incluye un término de respiración separado. El flujo de fotones y el flujo de carbono también tienen significados distintos aunque ambos utilicen micromoles. Contar fotones no basta para conocer la eficiencia energética: los fotones azules transportan más energía que los rojos.
La revisión de Zhu, Long y Ort de 2008 estimó eficiencias máximas de conversión solar en biomasa del 4,6 % para las plantas C3 y del 6 % para las C4 a 30 °C y 380 ppm de CO₂. La concentración pertenece a los supuestos de ese artículo, no al aire actual. Estos porcentajes utilizan como denominador todo el espectro solar incidente. No deben compararse directamente con un rendimiento por fotón absorbido ni con una eficiencia calculada solo a partir de la luz visible. Gran parte de la luz solar queda fuera de la banda fotosintéticamente activa convencional; la reflexión y los costes metabólicos reducen lo que queda.
Como ejercicio de contabilidad energética, supongamos que un cultivo intercepta 1000 MJ de energía solar total en un área y un periodo elegidos. Una eficiencia de conversión supuesta del 1 % almacena 10 MJ en biomasa; una del 2 % almacena 20 MJ. Estos porcentajes son supuestos ilustrativos del rendimiento en campo, no mediciones para todos los cultivos. No incluyen una promesa automática de producción comestible ni afirman que toda la luz interceptada llegue a una hoja activa. Las raíces y los tallos también contienen energía química almacenada. Una medición breve en una hoja bien iluminada y una cosecha de toda una temporada responden a preguntas distintas.
En qué se diferencian compensación y saturación
En el punto de compensación lumínica, la captación bruta de carbono por fotosíntesis equilibra exactamente la pérdida de carbono por respiración, por lo que el intercambio neto es cero. Por debajo, la planta puede seguir realizando fotosíntesis, pero la respiración domina el balance. En la saturación, aumentar la luz produce poca captación adicional de carbono. Son lugares distintos de la curva, no dos nombres para la primera curvatura.
Con el CO₂ del aire a 426 ppm, la Temperatura de la hoja a 25 °C y los Estomas abiertos al 100 %, el código da un nivel lumínico de compensación de unos 27,6 micromoles de fotones por metro cuadrado por segundo. Este valor procede de resolver la ecuación de velocidad neta de la exposición para cero. Es un cálculo de este modelo, no un umbral publicado para las hojas de roble. El control utiliza ajustes de luz enteros, por lo que 28 es un ajuste práctico cercano al cruce. Con luz cero, la velocidad neta es −3 unidades del modelo; cruzar el cero no significa que la respiración se haya detenido.
La marca del 90 % utiliza la fotosíntesis bruta respecto de su techo calculado. Se encuentra cerca de 1274 con estos ajustes. La velocidad allí no alcanza una meseta matemáticamente plana, y la velocidad neta del gráfico lleva restada la respiración. Otro porcentaje daría un marcador de saturación diferente. Por eso, toda cifra de saturación debe indicar siempre su criterio.
Una hoja aclimatada a la sombra puede tener una velocidad de respiración menor y alcanzar una ganancia neta de carbono con menos luz. Una hoja de sol puede sostener una velocidad máxima mayor. La exposición no alterna entre conjuntos de parámetros medidos de hojas de sol y de sombra. Tampoco incluye su respuesta suave los daños por exceso de luz. En una cubierta vegetal real, las hojas superiores pueden recibir más luz de la que pueden procesar mientras las inferiores siguen limitadas por la luz. La investigación sobre el tamaño de las antenas examina si repartir la luz de forma más uniforme podría mejorar la producción de toda la cubierta vegetal, en vez de aumentar solamente la absorción arriba.
Hojas C3, maíz y un cactus
Los nombres C3 y C4 se refieren al número de carbonos de los primeros productos estables de sus respectivas vías de fijación inicial. En una hoja C3, Rubisco añade CO₂ directamente a la RuBP y los productos estables inmediatos son moléculas de 3-PGA de tres carbonos. El trigo y el arroz utilizan esta vía. Rubisco también reacciona con el oxígeno. Esa oxigenación inicia la fotorrespiración, una vía de recuperación que consume energía y libera parte del carbono fijado previamente. No es el mismo proceso que la respiración mitocondrial en la oscuridad.
El maíz y la caña de azúcar son plantas C4. Su captación inicial utiliza PEP carboxilasa en las células del mesófilo y produce compuestos de cuatro carbonos. Esos compuestos llevan carbono a las células de la vaina del haz, donde se libera CO₂ cerca de Rubisco. El ciclo de Calvin sigue funcionando; el metabolismo C4 le suministra una fuente de CO₂ más concentrada. Mantener esta bomba cuesta energía adicional, por lo que C4 no es una mejora incondicional a cualquier temperatura o nivel de luz. Su ventaja resulta especialmente útil donde el calor y un CO₂ interno bajo favorecerían de otro modo la fotorrespiración.
Muchos cactus utilizan CAM. Absorben gran parte de su CO₂ externo de noche y almacenan temporalmente el carbono en ácidos orgánicos. Durante el día, la descomposición de los ácidos suministra CO₂ mientras los estomas pueden mantenerse más cerrados. C4 suele separar la captación inicial y el ciclo de Calvin entre tipos de células; CAM separa gran parte del trabajo entre la noche y el día. Estas diferencias explican por qué sería engañoso colocar un cactus en un modelo de una hoja C3 diurna corriente.
Por tanto, la capacidad de carboxilación de Rubisco es solo parte del problema. También importa la llegada del sustrato. Cerrar los estomas puede limitar la captación de carbono incluso cuando las enzimas están intactas, y suministrar más CO₂ externo puede ayudar solo si llega suficiente al cloroplasto. El control Tipo de hoja ofrece una hoja C3 de sol, una hoja C3 de sombra y una hoja C4 semejante a la del maíz, y las tres son curvas del modelo. El ajuste C4 satura su respuesta al CO₂ cerca de la concentración del aire actual, tiene un punto de compensación cercano a cero y un óptimo más cálido, y empieza con una pendiente menor para representar el ATP adicional de la bomba. No calcula el recambio catalítico de Rubisco, la oxigenación ni la propia bomba. La hoja de sombra sigue la revisión de Boardman sobre plantas de sol y sombra: menos capacidad y menos respiración, de modo que alcanza el equilibrio con poca luz y se satura pronto. No existe un ajuste CAM, y ninguna de las tres puede utilizarse para clasificar rendimientos reales de cultivos.
Lo que las hojas verdes no te dicen
El aspecto verde no demuestra que los fotones verdes sean incapaces de impulsar la fotosíntesis. La clorofila aislada absorbe fuertemente las bandas azul y roja, pero una hoja es una estructura gruesa dispersora de luz con muchos cloroplastos. Parte de la luz verde escapa; otra parte recorre más tejido antes de ser absorbida. El espectro de absorción de una disolución de pigmentos y el espectro de acción de una hoja entera no son mediciones intercambiables.
El estudio de Liu y van Iersel de 2021 examinó lechugas con distintos espectros de luz y flujos de fotones. A baja intensidad, la luz verde tuvo un menor rendimiento cuántico referido a la luz incidente porque la absorción era menor. A alta intensidad, su rendimiento cuántico estuvo entre los más altos, algo compatible con una distribución más uniforme de la excitación a través de la hoja. Es un resultado condicionado, no una recomendación de lámparas exclusivamente verdes para producir siempre mejores cultivos. El control Color de la luz sigue ese patrón de forma aproximada. Solo cambia la pendiente inicial de la curva (la verde es la menor, seguida de la azul, la blanca y la roja), de modo que los colores difieren más con poca luz y casi coinciden con luz intensa. Esos factores son valores del modelo; la exposición no simula la absorción dependiente de la profundidad.
La idea equivocada sobre el suelo requiere otra distinción. El carbono de la madera nueva procede principalmente del CO₂ atmosférico, pero un árbol recién pesado también contiene una cantidad considerable de agua. El agua entra por las raíces, y los nutrientes minerales del suelo siguen siendo esenciales aunque no sean la fuente principal del carbono orgánico seco. Que una maceta pierda poco suelo mientras su planta gana masa es un argumento contra el suelo como fuente mayoritaria; por sí solo no identifica todas las fuentes de ese aumento de masa. Comparar la masa seca y rastrear el carbono son pruebas más sólidas que pesar únicamente una planta húmeda.
Del mismo modo, el símbolo del azúcar en pantalla es un símbolo contable, no una afirmación de que un cloroplasto expulse una molécula de glucosa terminada después de cada fijación. El ciclo de Calvin exporta un producto de tres carbonos tras varias vueltas, y el metabolismo posterior produce azúcares y otros materiales. Las burbujas visibles identificarían gas liberado, no la fuente de carbono del tallo en crecimiento.
Burbujas de plantas acuáticas y luz inclinada
En las escuelas se mide la fotosíntesis con una planta acuática. El protocolo Practical Biology de la Royal Society of Biology coloca un fragmento cortado de Elodea o Cabomba en agua bajo una lámpara y cuenta las burbujas que suben desde el extremo cortado durante 1 minuto; después repite el recuento y calcula una media. También indica los supuestos: se considera que las burbujas son solo oxígeno, que la producción de oxígeno es proporcional a la velocidad y que las burbujas tienen el mismo tamaño. La luz de una lámpara pequeña disminuye con el cuadrado de la distancia, de modo que alejar la lámpara al doble deja aproximadamente una cuarta parte de la luz.
El vaso de precipitados de la escena realiza el mismo experimento dentro del modelo. Su recuento por minuto es la velocidad neta del modelo multiplicada por un factor fijo, por lo que muestra la dirección y la proporción, no una cifra que verías en un aula. La planta acuática se trata como una planta C3 acuática, de modo que el control Estomas abiertos no la modifica.
El sol se puede arrastrar. La luz que llega inclinada se reparte sobre una mayor superficie de hoja, y la luz por metro cuadrado de hoja disminuye con el coseno del ángulo respecto de la vertical. A 60 grados, una hoja recibe la mitad de lo que recibiría con el sol justo encima. El indicador muestra ambas cifras: Luz es la intensidad de la fuente y Sobre la hoja es lo que utiliza la curva de velocidad.
Pruébalo en la pantalla
- Deja los controles en sus valores iniciales y arrastra el sol hacia el horizonte. Sobre la hoja disminuye con el coseno del ángulo mientras Luz permanece igual, los rayos se dispersan y la planta acuática reduce su actividad. Sus burbujas por minuto son valores del modelo.
- Lleva Luz a 0. La línea bajo el título cambia para indicar que se libera CO₂, los flujos de moléculas se invierten y la planta acuática se detiene. Aumenta la luz lentamente hasta que Velocidad neta cruce 0. Ese es el punto de compensación, unos 28 µmol/m²/s a 426 ppm y 25 °C en este modelo.
- Ajusta Luz a 2000 y compara el punto con la marca del 90 %. Después sube CO₂ en el aire a 1000. La nube de CO₂ alrededor de la hoja se hace más densa y la curva superior sube, porque el techo de carbono ha cambiado y la lámpara no.
- Sube Temperatura de la hoja a 40. La pérdida de agua aumenta, la hoja amarillea y se marchita, y la velocidad disminuye. Reduce Estomas abiertos y observa cómo se cierra el estoma ampliado: la hoja pierde menos agua y baja CO₂ interior.
- Cambia Tipo de hoja a C4 y Color de la luz a verde. Después utiliza Escala para bajar a la membrana tilacoidal y seguir los electrones desde el fotosistema II hasta el NADPH. Los contadores de ATP, NADPH y CO₂ fijado mantienen el balance de 3 a 2 a 1 descrito antes; no son mediciones independientes.
Preguntas
¿De dónde procede el oxígeno de la fotosíntesis?
Procede del agua, no del dióxido de carbono. El fotosistema II extrae electrones del agua, y la ruptura de dos moléculas de agua libera un O₂. El carbono del CO₂ se incorpora a moléculas orgánicas. La ecuación global no es una descripción átomo por átomo del intercambio de oxígeno con el agua.
¿Por qué son verdes las hojas?
La clorofila absorbe fuertemente la luz roja y azul y refleja o transmite la verde. Esto no significa que la luz verde sea inútil. La luz verde absorbida puede impulsar la fotosíntesis en zonas más profundas de una hoja, especialmente con una iluminación intensa.
¿Qué diferencia hay entre la fase luminosa y el ciclo de Calvin?
La fase luminosa tiene lugar en la membrana tilacoidal y convierte la luz en ATP y NADPH, liberando oxígeno. El ciclo de Calvin tiene lugar en el estroma y utiliza ese ATP y NADPH para fijar CO₂ en azúcar. El antiguo nombre «reacciones oscuras» es engañoso, porque el ciclo funciona de día cuando se están produciendo ATP y NADPH.
¿Por qué deja de subir la velocidad con luz intensa?
Por encima de cierto nivel de luz, el ciclo de Calvin se convierte en el cuello de botella. Rubisco tiene una velocidad limitada para fijar dióxido de carbono, y necesita que el CO₂ llegue a través de los estomas. Más luz ya no produce cambios, pero más CO₂ o una temperatura más favorable sí pueden hacerlo.
¿Por qué cierran las plantas sus estomas?
Para ahorrar agua. Un estoma abierto deja entrar CO₂, pero también deja salir vapor de agua, y hasta el 90 por ciento del agua que absorbe una planta puede perderse así. En un día caluroso y seco, cerrar los poros protege la planta a costa de la fotosíntesis.
¿Cuántos fotones hacen falta para producir un O₂?
En el esquema lineal sencillo, ocho. Se necesitan cuatro electrones para liberar un O₂ de dos moléculas de agua, y cada electrón recibe energía dos veces, una en el fotosistema II y otra en el fotosistema I.
¿Es la ATP sintasa del cloroplasto igual que la de las mitocondrias?
Funciona de la misma manera y tiene las mismas partes, pero el anillo de su rotor en los cloroplastos de las hojas tiene 14 subunidades, más que el anillo de las mitocondrias animales. Un anillo mayor significa más protones por ATP. La exposición ATP sintasa permite cambiar el tamaño del anillo.
¿Puede la luz verde impulsar la fotosíntesis?
Sí. Los fotones verdes absorbidos dentro de una hoja contribuyen a la fotosíntesis. Una menor absorción en la superficie puede permitirles llegar a cloroplastos más profundos; el beneficio depende de la intensidad y de la estructura de la hoja.
¿Evitan las plantas C4 el ciclo de Calvin?
No. Concentran CO₂ antes de suministrarlo a Rubisco y al ciclo de Calvin. La vía adicional de concentración de carbono tiene un coste energético.
¿Es el punto de compensación donde comienza la fotosíntesis?
No. Es donde la captación fotosintética equilibra la liberación respiratoria. Por debajo, la fotosíntesis puede continuar aunque el intercambio neto de carbono sea negativo.
Términos
- Estoma (plural estomas): un poro de la superficie de la hoja situado entre dos células oclusivas.
- Mesófilo: el tejido interno de una hoja, distribuido en una capa en empalizada y una capa esponjosa.
- Cloroplasto: el orgánulo donde ocurre la fotosíntesis.
- Tilacoide: un saco membranoso aplanado dentro de un cloroplasto; una pila de ellos es un granum.
- Estroma: el líquido que rodea los tilacoides, donde tiene lugar el ciclo de Calvin.
- Lumen: el espacio del interior de un tilacoide, donde se acumulan protones.
- Fotosistema: un complejo proteico con una antena de pigmentos y un centro de reacción que utiliza la luz para mover un electrón.
- NADPH: un transportador de electrones producido en la fase luminosa y utilizado para reducir carbono en el ciclo de Calvin.
- Rubisco: la enzima que une CO₂ a la RuBP.
- G3P: gliceraldehído 3-fosfato, el azúcar de tres carbonos que exporta el ciclo de Calvin.
- Transpiración: la pérdida de vapor de agua de una planta, principalmente a través de los estomas.
- Saturación lumínica: el nivel de luz por encima del cual la velocidad de fotosíntesis deja de aumentar mucho.
Fuentes
OpenStax, Biology 2e, 8.1 Overview of Photosynthesis (99 por ciento de los ecosistemas, cloroplasto, tilacoide, granum, estroma, lumen, estomas en el envés). https://openstax.org/books/biology-2e/pages/8-1-overview-of-photosynthesis (consultado el 16 de octubre de 2026)
OpenStax, Biology 2e, 8.2 The Light-Dependent Reactions of Photosynthesis (400 a 700 nm, 300 a 400 clorofilas por antena, una millonésima de segundo, P680, P700, ruptura del agua, aproximadamente el 10 por ciento del O₂ utilizado por las mitocondrias, plastoquinona, complejo citocromo, plastocianina). https://openstax.org/books/biology-2e/pages/8-2-the-light-dependent-reactions-of-photosynthesis (consultado el 16 de octubre de 2026)
OpenStax, Biology 2e, 8.3 Using Light Energy to Make Organic Molecules (Rubisco, RuBP, 3-PGA, G3P, tres vueltas por cada G3P exportado, 6 ATP y 6 NADPH en la reducción más 3 ATP en la regeneración, cactus). https://openstax.org/books/biology-2e/pages/8-3-using-light-energy-to-make-organic-molecules (consultado el 16 de octubre de 2026)
OpenStax, Biology 2e, 30.4 Leaves (cutícula, epidermis, mesófilo en empalizada y esponjoso, células oclusivas, nervaduras). https://openstax.org/books/biology-2e/pages/30-4-leaves (consultado el 16 de octubre de 2026)
OpenStax, Biology 2e, 30.5 Transport of Water and Solutes in Plants (hasta el 90 por ciento del agua perdida por transpiración, respuestas de las células oclusivas). https://openstax.org/books/biology-2e/pages/30-5-transport-of-water-and-solutes-in-plants (consultado el 16 de octubre de 2026)
NOAA Global Monitoring Laboratory, Trends in Atmospheric Carbon Dioxide (media mensual de Mauna Loa de 426,07 ppm, septiembre de 2026). https://gml.noaa.gov/ccgg/trends/ (consultado el 16 de octubre de 2026)
Umena Y, Kawakami K, Shen J-R, Kamiya N, Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å, Nature 473, 55 (2011) (grupo Mn4CaO5, cuatro moléculas de agua unidas). https://www.nature.com/articles/nature09913 (consultado el 16 de octubre de 2026)
Seelert H, Poetsch A, Dencher NA, Engel A, Stahlberg H, Müller DJ, Proton-powered turbine of a plant motor, Nature 405, 418 (2000) (14 subunidades en el anillo de la ATP sintasa del cloroplasto). https://www.nature.com/articles/35013148 (consultado el 16 de octubre de 2026)
Yamori W, Hikosaka K, Way DA, Temperature response of photosynthesis in C3, C4, and CAM plants: temperature acclimation and temperature adaptation, Photosynthesis Research 119, 101 (2014). https://link.springer.com/article/10.1007/s11120-013-9874-6 (consultado el 16 de octubre de 2026)
FAO, Crop evapotranspiration, Irrigation and Drainage Paper 56, capítulo 3 (presión de vapor de saturación, ecuación 11). https://www.fao.org/4/x0490e/x0490e07.htm (consultado el 16 de octubre de 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1961 (Melvin Calvin). https://www.nobelprize.org/prizes/chemistry/1961/summary/ (consultado el 16 de octubre de 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1978 (Peter Mitchell). https://www.nobelprize.org/prizes/chemistry/1978/summary/ (consultado el 16 de octubre de 2026)
NobelPrize.org, Press release: The Nobel Prize in Chemistry 1988 (estructura de un centro de reacción fotosintético). https://www.nobelprize.org/prizes/chemistry/1988/press-release/ (consultado el 16 de octubre de 2026)
Zhu, Long and Ort (2008), What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? Registro y resumen de University of Illinois (supuestos del 4,6 %, 6 %, 30 °C y 380 ppm). https://experts.illinois.edu/en/publications/what-is-the-maximum-efficiency-with-which-photosynthesis-can-conv (HTTP 200, consultado el 23 de octubre de 2026)
Ort, Zhu and Melis (2011), Optimizing Antenna Size to Maximize Photosynthetic Efficiency, Plant Physiology (distribución de luz en la cubierta vegetal, rendimiento cuántico, curvas de respuesta). https://pmc.ncbi.nlm.nih.gov/articles/PMC3014228/ (HTTP 200, consultado el 23 de octubre de 2026)
Royal Society of Biology, Practical Biology, Investigating factors affecting the rate of photosynthesis (recuento de burbujas de plantas acuáticas, supuestos, luz y distancia). https://practicalbiology.org/energy/photosynthesis/investigating-factors-affecting-the-rate-of-photosynthesis.html (consultado el 26 de octubre de 2026)
Boardman (1977), Comparative photosynthesis of sun and shade plants, Annual Review of Plant Physiology 28. https://doi.org/10.1146/annurev.pp.28.060177.002035 (consultado el 26 de octubre de 2026)
Liu and van Iersel (2021), Photosynthetic Physiology of Blue, Green, and Red Light, Frontiers in Plant Science (lechuga, respuesta a la luz verde dependiente de la intensidad). https://pmc.ncbi.nlm.nih.gov/articles/PMC7977723/ (HTTP 200, consultado el 23 de octubre de 2026)
Texto y simulación: CC BY-NC-SA 4.0, salvo que se indique lo contrario.
Más exposiciones
Visión animal: mira el mundo con los ojos de 69 animales
Una pelota roja sobre césped verde es fácil de encontrar para ti, pero difícil para un perro. Una abeja ve en la misma flor un patrón que tú no ves.

Secuoyas gigantes: por qué son tan grandes y cómo crecen
Sitúate al pie del General Sherman Tree, de 83,8 m y unos 2200 años, trepa por su tronco y observa la tensión que soporta el agua en lo alto.
Caballo: compara cómo corre al paso, trote y galope
En 1878, las cámaras de Muybridge mostraron que el caballo al galope sí levanta los cuatro pies, pero con las patas recogidas. Algunos animales rápidos nunca se despegan del suelo.

CRISPR-Cas9 interactivo: simulador de edición genética
Un ARN guía lee solo 20 letras de ADN, y eso suele bastar para elegir un único punto entre los 3000 millones de pares de bases de un genoma humano.

ATP sintasa: explora cómo funciona su rotor molecular
En las mitocondrias, el rotor de la ATP sintasa gira unas 100 veces por segundo. Cada vuelta completa libera tres moléculas de ATP.

Tamaño de los dinosaurios frente a un humano: 172 animales
Un parque de 600 m con 172 animales prehistóricos a su tamaño real, de los primeros dinosaurios a T. rex, ordenados por época.