FIG. 21Sentidos
Visión animal: mira el mundo con los ojos de 69 animales
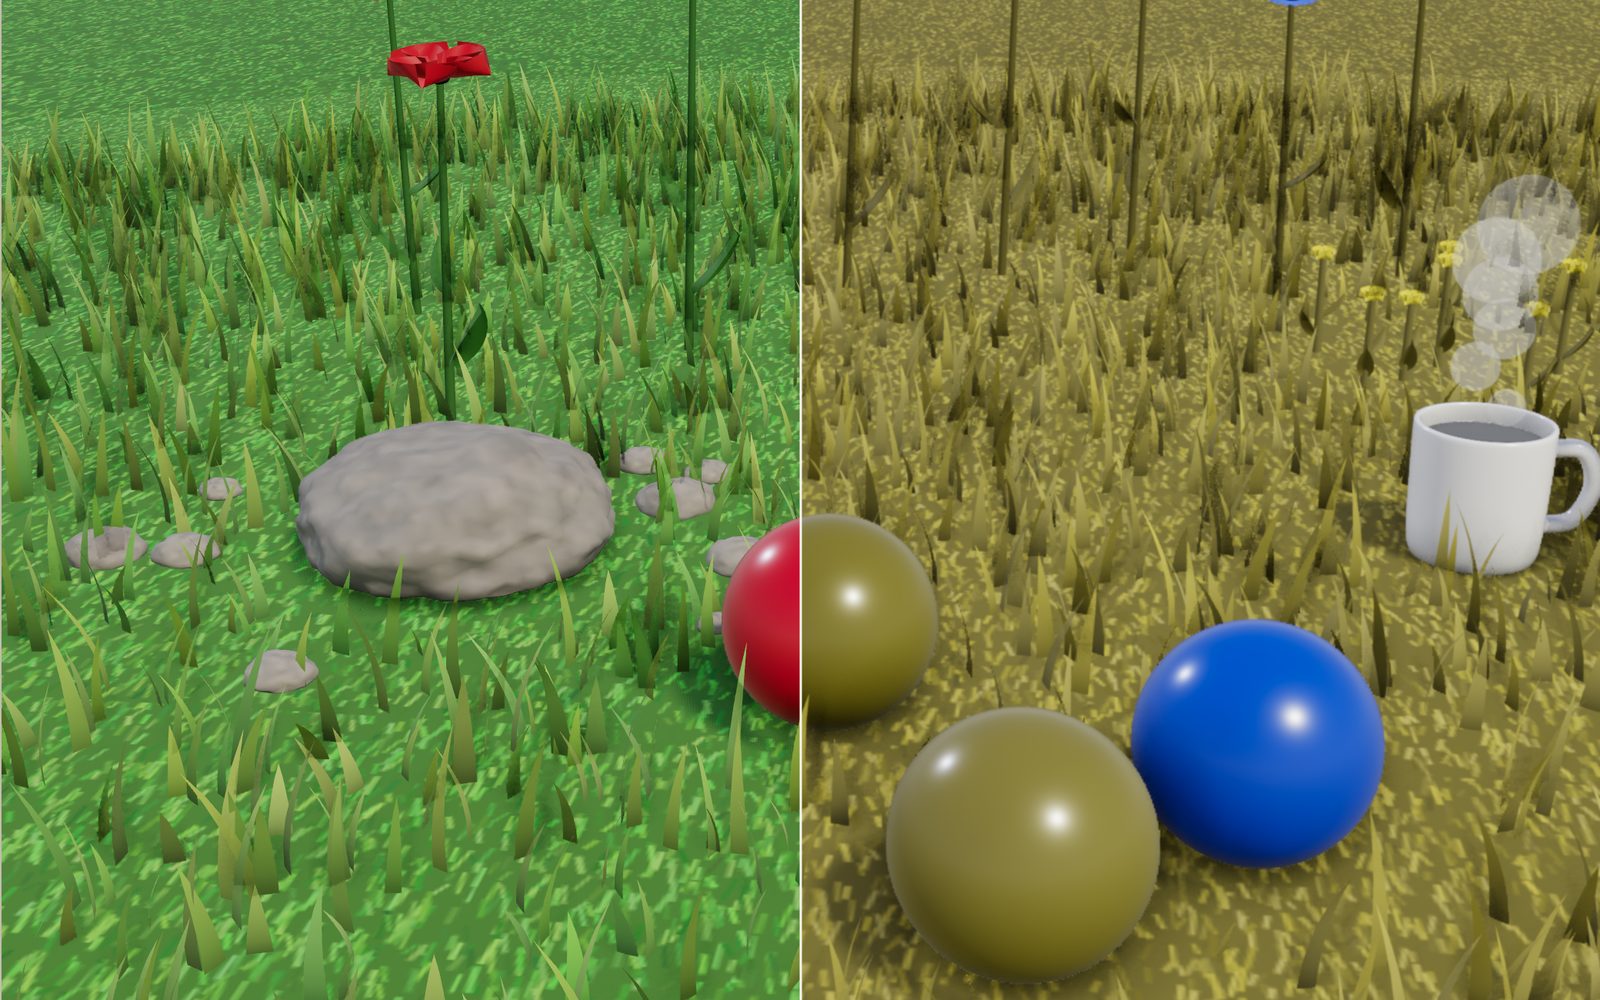
Una pelota roja sobre césped verde es fácil de encontrar para ti, pero difícil para un perro. Una abeja ve en la misma flor un patrón que tú no ves.
Este dispositivo no puede mostrar el modelo 3D. Abajo puedes leer los pasos de la guía como texto.
1 / 20 Un jardín, 69 pares de ojosEl mismo jardín se redibuja para cada animal. Cambian color, nitidez, luz necesaria y rapidez visual. Elige un animal en la barra inferior o una escena arriba.
Arrastra para girar. Usa la rueda o pellizca para ampliar.
Por qué un perro pierde la pelota roja
La visión animal depende de cómo sus ojos reciben la luz. Un perro tiene dos tipos de conos: por eso una pelota roja sobre césped verde no destaca como para ti, que puedes seguirla durante todo el lanzamiento. Muchos perros pasan de largo y luego la encuentran con el olfato. No se ha vuelto invisible. Rojo y verde estimulan el mismo tipo de cono, de modo que pelota y césped parecen dos tonos de un mismo oliva apagado. Una pelota azul, en cambio, se ve enseguida.
Esta escena reúne casi todo el tema de la exposición. Un ojo no es una cámara que registre el mundo tal cual. Muestrea la luz con pocos tipos de receptores, cierta nitidez y rapidez, sobre cierto ángulo y solo por encima de cierto brillo. Cada animal resuelve estas condiciones de manera distinta. La escena redibuja un jardín, un bosque nocturno, un arrecife y un prado desde el aire con los ojos de 69 animales. Cada número procede de una medición en un artículo o página universitaria citados al final. Cuando no hay mediciones, indica «sin cifra» en vez de adivinar.
Cómo convierte el ojo la luz en color
La retina tiene dos clases de sensores luminosos. Los bastones funcionan con poca luz y no distinguen colores. Los conos trabajan de día y tienen varios tipos, cada uno sintonizado con una banda de longitudes de onda. Un cono aislado no sabe qué color recibe: solo informa de cuánta luz captó. El cerebro compara las respuestas de distintos tipos y esa comparación es lo que experimentamos como color.
Las personas suelen tener tres tipos de conos. Medidos uno por uno en una retina humana, sus máximos están cerca de 420 nm (violeta-azul), 534 nm (verde) y 564 nm (amarillo-verde). Los conos verde y largo se solapan mucho, pero un objeto rojo y uno verde producen proporciones distintas y vemos dos colores. Dos luces que estimulen igual los tres conos nos parecen idénticas aunque tengan espectros diferentes. Por eso una pantalla puede imitar casi cualquier color con solo tres primarios estrechos.
La curva de sensibilidad tiene una forma parecida entre pigmentos si conocemos su máximo. Govardovskii y colaboradores ajustaron en 2000 una plantilla que predice toda la curva a partir del máximo, incluida una pequeña segunda elevación de onda corta. Las curvas de la lectura se dibujan con esa plantilla, una por receptor, y el modelo cromático usa las mismas.
Dos conos: perros, gatos, caballos y animales de granja
La mayoría de los mamíferos tienen dos conos: uno de onda corta y otro media a larga. Siguen distinguiendo azul de amarillo, pero rojo, naranja, amarillo y verde recaen sobre todo en el cono largo y se diferencian principalmente por brillo. Una persona con ceguera al rojo y verde ve de manera parecida.
Pruebas con perros entrenados publicadas en 1989 encontraron dos pigmentos cerca de 429 nm y 555 nm. Los gatos tienen una pareja similar, cerca de 450 y 556 nm, medida mediante registros retinianos en 1969 y 1979. Los caballos los tienen a 428 y 539 nm, medidos en 2001. Bovinos, cabras y ovejas se estudiaron juntos en 1998: cono corto entre 444 y 455 nm y largo entre 552 y 555 nm. El ciervo de cola blanca tiene uno corto cerca de 450 a 460 nm y uno medio cerca de 537 nm.
Elige el perro y activa «Mitad y mitad». A la izquierda está tu vista; a la derecha, la canina. Las pelotas roja y verde, separadas para ti por más de 100 unidades de la escala de diferencia cromática CIELAB, quedan a unas 5 para el perro. La azul sigue a más de 100 del césped. Para un perro que juega sobre hierba, un juguete azul o amarillo es mejor opción que rojo. Prueba también caballo, vaca y ciervo: sus conos largos varían ligeramente y convierten los rojos en oliva en grados distintos.
Ultravioleta: ratones, abejas, periquitos y peces dorados
Muchos animales ven una banda que nosotros no vemos: el ultravioleta, por debajo de unos 400 nm. Nuestro cristalino absorbe casi todo antes de que alcance la retina. En 1991 Jacobs y colaboradores hallaron en algunos roedores un cono especialmente sensible al UV, el primero conocido en un mamífero. Los ratones tienen uno con máximo en 360 nm y otro verde a 508 nm; la mayoría de sus conos contienen ambos pigmentos. Las ratas también tienen un cono UV y otro medio y, en pruebas publicadas en 2001, los usaron juntos para distinguir colores.
Las abejas melíferas tienen receptores UV, azul y verde con máximos en 344, 436 y 544 nm, ninguno para rojo. Periquitos y diamantes mandarines tienen cuatro conos, incluido uno UV auténtico de 360 a 380 nm. Los peces dorados también tienen cuatro, a 356, 447, 537 y 623 nm. Un murciélago florícola de América Central y del Sur, el lengüilargo de Pallas, responde hasta 310 nm. En su caso un pigmento hace ambos trabajos: la segunda banda de absorción del verde capta UV. Lo ve como brillo, no como un color distinto.
Los patrones UV son comunes en flores. Las rudbeckias nos parecen amarillas uniformes, pero absorben UV cerca del centro y lo reflejan en las puntas, formando un anillo oscuro alrededor del centro. En un estudio de campo de 2014, las abejas silvestres visitaron más las cabezuelas cuyo anillo UV se había ampliado que aquellas con el anillo reducido. En el jardín, elige abeja, ratón o periquito y mira las flores amarillas de cerca. Tu pantalla no emite UV: el modelo asigna un valor UV independiente a cada superficie y lo muestra en falso color. «Solo ultravioleta» muestra ese canal aislado.
Más receptores no siempre significan mejor color
La mariposa cola de golondrina asiática tiene ocho variedades de receptor en seis clases. En pruebas conductuales publicadas en 2008, ejemplares entrenados para un color lo distinguían de otro separado solo 1 nm en tres lugares del espectro, cerca de 430, 480 y 560 nm. Ese patrón indica cuatro receptores que colaboran. Usa cuatro canales de color aunque tenga más tipos de receptores.
El camarón mantis es el caso extremo. Algunas especies tienen 12 receptores entre 300 y 720 nm. Parecería que distinguen mejor los colores que cualquier animal. Thoen y colaboradores lo probaron en 2014 y encontraron lo contrario: confundían luces separadas de 12 a 25 nm, con menor precisión que mariposas y humanos. Proponen que no comparan receptores finamente, sino que reconocen un color según qué receptor estrecho responde mientras recorren el objeto con el ojo. El modelo aplica una regla simple: el más activo de 12 receptores identifica el color, dividiendo el arrecife en bandas planas de tono. Estos animales también ven polarización circular, como demostraron Chiou y colaboradores en 2008.
Un cono: tiburones, pulpos y sepias
Hart y colaboradores midieron pigmentos de 17 especies de tiburón en 2011. Todas tenían un solo cono con máximo entre 532 y 561 nm. Con uno se juzga el brillo, no el color; probablemente no distingan colores. Ballenas, delfines y focas también tienen un solo tipo, una solución a la que llegaron por separado.
El pulpo común tiene un pigmento visual con máximo a 475 nm y la mayoría de las pruebas conductuales no detectan color. Las sepias son similares, con un receptor cerca de 500 nm, aunque cambian la piel para igualar el fondo. Marshall y Messenger lo llamaron «camuflaje sin visión cromática» en 1996. Los cefalópodos tienen, en cambio, visión de polarización: sus receptores se orientan perpendicularmente y absorben mejor direcciones distintas. Bajo el agua, la luz muy polarizada reflejada por peces plateados es una señal útil. Elige el pulpo en el arrecife y activa «Polarización»: la luz muy polarizada se muestra amarilla y la no polarizada azul.
Nitidez: ciclos por grado
La nitidez se mide con rayas. Se muestran pares blancos y negros cada vez más finos hasta que el animal no puede distinguirlos de gris uniforme. El patrón más fino aún visible, contado en parejas o ciclos por grado de campo, es su agudeza. Una persona con visión 20/20 resuelve unos 30 ciclos por grado. Al evitar la óptica mediante franjas de interferencia, un estudio de 1965 obtuvo unos 60. Aquí se usa 60 como límite humano y se convierte cualquier cifra a fracción de Snellen mediante 20/(600 ÷ ciclos por grado).
Los perros alcanzan de 11,6 a 12,6 ciclos por grado en registros cerebrales y retinianos, cerca de una quinta parte del mejor valor humano. Los caballos alcanzaron 23,3 en pruebas conductuales. Se citan de 3,5 a 9 para gatos, unos 0,5 para ratones y 1 para ratas. Un cárabo probado con luz intensa junto a dos personas vio menos detalle que ellas y casi tanto como una paloma. En el otro extremo, el águila audaz alcanzó de 132 a 143 en las pruebas de Reymond de 1985, más del doble del valor humano y cerca de los 157 que permite su pupila.
Los insectos construyen sus ojos con muchas facetas pequeñas, cada una mirando en una dirección. El ángulo entre vecinas limita el detalle. Va de decenas de grados en insectos primitivos a 0,24 grados en libélulas, el menor conocido. La zona frontal de la abeja resuelve unos 0,54 ciclos por grado. Los ojos principales de la araña Portia son diminutos teleobjetivos con receptores separados 2,4 minutos de arco, unos 12,5 ciclos por grado, mucho mejores que los insectos de su tamaño. Las vieiras, con hasta 200 ojos pequeños en el borde de la concha, resuelven unos 2 grados.
Para representar agudeza, la imagen se desenfoca según cuántos píxeles ocupa un grado. Una rejilla de c ciclos por grado requiere dos píxeles por ciclo; con p píxeles por grado pueden mostrarse como máximo p ÷ 2 ciclos. En el jardín, un grado ocupa solo unos 16 a 20 píxeles de alto en una ventana de 1440 px de ancho, y unos 8 a 10 en un teléfono vertical: suficiente para 4 a 10 ciclos por grado. Es más burdo que el ojo canino; en vista normal, el desenfoque del perro equivale a un tercio de píxel y parece tan nítido como tú. No hay un error: la pantalla es menos fina que ambos ojos.
«Teleobjetivo» lo resuelve como un telescopio. Estrecha el campo 2, 4 u 8 veces y reparte cada grado entre 2, 4 u 8 veces más píxeles, dibujando el desenfoque al tamaño correcto. A ×4 en un portátil, un grado ocupa unos 70 a 80 píxeles: tu mitad sigue nítida, la canina se desenfoca unos 2,5 a 3 píxeles y la abeja ve pocas facetas. En teléfono usa ×8, con unos 70 píxeles por grado. La lectura indica píxeles por grado y desenfoque actuales. No puede representarse un ojo más agudo que el tuyo, como el del águila: la imagen aún debe pasar por tus ojos. Por eso no se desenfoca y se explica el motivo.
La escena aérea hace lo mismo con distancia. Muestra un prado por un campo de solo 4 m de alto, como un telescopio, desde 20 m a 1,5 km. A unos 480 m, un conejo de 40 cm ocupa unos 3 ciclos para ti y 7 para el águila: una mancha para ti, aún un conejo para ella. Hay dos conejos separados 2,4 m para que «Mitad y mitad» deje uno a cada lado.
Rapidez: fusión del parpadeo
Si una luz se enciende y apaga cada vez más rápido, llega una frecuencia en que los destellos parecen continuos. Es la frecuencia crítica de fusión del parpadeo y mide cuán rápido sigue cambios un ojo. Inger y colaboradores reunieron mediciones de 81 especies en 2014. Las personas rondan 60 Hz; gatos, 55; perros, 80; palomas, 77 a 143 según estudio; gallinas, 72 a 105; moscardas, abejas y libélulas, 200 a 300. Los tiburones medidos van de 18 a 37 Hz.
El farol del jardín y el poste del bosque parpadean entre 20 y 320 Hz, según el ajuste. La pantalla no puede mostrar 100 destellos por segundo. Por eso el farol pulsa despacio cuando el animal elegido podría ver el parpadeo; la amplitud aumenta cuanto más baja es su frecuencia respecto a la fusión del animal. A 100 Hz, como una lámpara conectada a 50 Hz, es estable para ti y pulsa para una abeja. A 60 Hz, frecuencia de actualización de muchas pantallas, sigue estable para el gato y pulsa para el perro.
Las cifras comparadas
El atlas bajo los controles enumera los 69 animales y sus fuentes. Estos son algunos de los más medidos, con las unidades de la escena. Un guion significa que no se encontró cifra en estas fuentes.
| Animal | Máximos de receptores (nm) | Agudeza (cpd) | Campo | Fusión del parpadeo (Hz) |
|---|---|---|---|---|
| Persona | 420, 534, 564 | 60 | 180° | 60 |
| Perro | 429, 555 | 11,6 a 12,6 | 240° | 80 |
| Gato | 450, 556 | 3,5 a 9 | 200° | 55 |
| Caballo | 428, 539 | 23,3 | 350° | - |
| Ratón | 360, 508 | 0,5 | - | - |
| Rata | UV y onda media | 1 | - | 30 |
| Abeja melífera | 344, 436, 544 | 0,54 | - | 200 a 300 |
| Paloma | 409, 453, 507, 567 | - | - | 77 a 143 |
| Pez dorado | 356, 447, 537, 623 | - | - | - |
| Águila audaz | cono corto sensible al violeta | 132 a 143 | - | - |
| Cárabo común | - | - | 201° | - |
| Libélula | 15 a 33 genes de opsina | 2,1 | - | 300 |
| Araña saltarina | UV y verde | 12,5 | - | - |
| Tiburones | un cono, 532 a 561 | - | - | 18 a 37 |
Leer cada fila muestra los compromisos. El águila tiene la mayor nitidez, pero no hay capacidad nocturna especial registrada; el gato ve con poca luz, pero pierde detalle; la abeja ve UV y parpadeos rápidos, aunque solo resuelve cerca de medio ciclo por grado.
Ver de noche
Con poca luz dejan de trabajar los conos y toman el relevo los bastones. Son más sensibles, pero solo hay un tipo y se pierde color. Las personas dejan de ver colores cerca de 0,02 cd/m², un nivel crepuscular. Los gatos ven luz más tenue: con los mismos patrones fueron 0,74 unidades logarítmicas, unas 5,5 veces, más sensibles. Casi todo procede de pupilas mayores y de la captación óptica. Las lechuzas tienen ojos tubulares de número f 1,13; el humano en oscuridad ronda f/2,4. Su imagen retiniana es unas 4,5 veces más brillante. Aquí esa razón se usa como ganancia nocturna y se marca como modelo.
Dos animales conservan color donde nosotros no. Los gecos de casco no tienen bastones, solo tres tipos de conos grandes, y en 2004 distinguieron azul de gris a 0,002 cd/m², luz lunar tenue. Las esfinges elefante eligieron objetivos de color a 0,0001 cd/m², luz estelar tenue, en pruebas publicadas en 2002; con esa luz las personas no ven colores. Ajusta el bosque a «Luz estelar tenue» y compáralos. El brillo se aumenta según la razón entre su límite cromático y el nuestro (10 y 200 veces), también marcada como modelo.
Muchos animales nocturnos tienen un espejo tras la retina, el tapetum lucidum. Devuelve la luz que atravesó los receptores sin ser captada y le da otra oportunidad. Perros, gatos, caballos, bovinos y otros mamíferos lo tienen, igual que tiburones. Por eso sus ojos brillan con una linterna. Enciéndela en el bosque y mira el ciervo.
Amplitud: campos visuales
Los ojos frontales ven dos veces la misma escena y ayudan a juzgar profundidad; los laterales ven más mundo a la vez. Una persona ve unos 90 grados a cada lado, unos 180 en total y unos 120 con ambos ojos. El perro cubre unos 240 grados con 30 a 60 de solapamiento; el gato unos 200. El caballo cubre unos 350 y solo es ciego justo detrás y frente a su frente. Cada ojo del cárabo cubre 124 grados, el menor campo medido en vertebrados: total de 201 y solapamiento de 48. Los camaleones mueven los ojos independientemente al buscar y los fijan juntos sobre una presa.
El panorama muestra todo el círculo alrededor de la cámara y sitúa tu dirección frontal en medio. El campo del animal ocupa la zona central; fuera se dibujan rayas. Para animales sin cifra, muestra los 360 grados y lo indica.
Formas de pupila
Hay pupilas redondas, en hendidura, barra, W y orificios. Banks y colaboradores compararon 214 animales terrestres en 2015 y encontraron un patrón. Presas que pastan, como cabras, ovejas, caballos y ciervos, tienen pupilas horizontales. Sus ojos giran al bajar la cabeza y las mantienen paralelas al suelo, dando una vista nítida y amplia del horizonte. Pequeños depredadores que emboscan cerca del suelo, como gatos, suelen tener hendiduras verticales que ayudan a medir distancia mediante desenfoque. La W de la sepia equilibra luz de arriba y abajo. La pupila del geco de casco se cierra en una hilera de orificios.
La pupila determina la forma de lo que queda fuera de foco. Activa «Desenfoque pupilar» y elige la cabra: objetos delante y detrás del punto de giro de la cámara se extienden lateralmente, mientras los bordes verticales siguen nítidos. La hendidura del gato hace lo contrario. La intensidad es un valor del modelo elegido para mostrar bien la forma; la forma sí es la del animal.
Bajo el agua
El agua absorbe luz y el rojo desaparece primero. Pope y Fry midieron agua pura en 1997: a 650 nm absorbe 0,34 por metro; a 450 nm solo 0,0092, unas 37 veces menos. En el arrecife, la luz baja desde la superficie y luego llega al ojo; cada color se debilita a lo largo del recorrido. A 15 m queda cerca del 2 por ciento del rojo y el pez rojo se vuelve pardo grisáceo incluso para ti. Los peces azules y amarillos conservan color más tiempo. El agua marina real también dispersa luz y contiene plancton; aquí se usa agua pura y una neblina sencilla.
Calor: víboras de foseta
Víboras de foseta, pitones y boas tienen fosetas faciales que detectan infrarrojo de cuerpos calientes. Bullock y Cowles registraron sus nervios en 1952 y mostraron respuesta al calor cercano. En 2010 Gracheva y colaboradores identificaron la molécula: las fibras nerviosas tienen canales TRPA1 que se abren al calentarse. El infrarrojo calienta la membrana de la foseta y los canales informan del cambio. Es sentido térmico, no una tercera clase de ojo. La escena pinta superficies calientes en falso color sobre una vista tenue: el té brilla, la piedra al sol brilla menos y el cielo abierto está frío.
El laboratorio ocular
La quinta escena coloca los ojos sobre una mesa. El ojo humano seccionado muestra córnea y cristalino desviando luz hasta un punto de la retina, la imagen invertida y la fóvea con los conos más densos. Un ojo compuesto es una cúpula hexagonal, cortada para mostrar largos omatidios, cada uno con lente y receptores propios. Otro tiene tapetum tras la retina, con un rayo que entra y regresa. Cinco iris muestran las formas de pupila. El último es un ojo de vieira que enfoca con espejo curvo en vez de lente. Palmer y colaboradores mostraron en 2017 que el espejo está formado por cristales cuadrados de guanina y dirige luz a dos retinas, una central y otra periférica. Si eliges un animal, la cámara se mueve a su tipo de ojo.
Sesenta y nueve animales y los ojos que comparten
La tercera versión amplía de 31 a 69 animales en diez grupos, más del doble. Se eligieron por preguntas habituales: granja y mascotas, zoológico, aves de jardín y costa, reptiles y ranas, insectos que pican o polinizan y algunas criaturas marinas con ojos particulares. Cada incorporación exigió un artículo que midiera algo de su ojo; el número de la escena enlaza ese artículo.
Algunos animales no se midieron directamente, pero comparten claramente un sistema ocular con uno medido. El atlas indica «agrupado con» y también cita el fundamento. El chimpancé comparte modelo con la persona porque los estudios de pigmentos de primates encuentran tres conos de máximos casi iguales en monos del Viejo Mundo, grandes simios y humanos. La foca comparte con el delfín mular: la tinción con anticuerpos no halló conos azules en ninguna de las cinco especies de focas y leones marinos ni en los siete cetáceos dentados, pero sí en sus parientes terrestres. Pitones y boas comparten con víboras de foseta por el mismo canal térmico en sus nervios. La jirafa usa los dos conos bovinos, como la mayoría de ungulados estudiados, pero sus 25 a 27 ciclos por grado proceden de su propia retina. Un animal agrupado siempre usa las curvas del representante sin cambiarlas, y se indica.
Las razas generan muchas preguntas. Los dos conos caninos proceden de estudios generales; estas fuentes no comparan visión cromática entre razas. Lo que cambia es dónde se concentran las células. McGreevy y colaboradores encontraron en perros de hocico largo una franja ganglionar horizontal como la del lobo; el carlino tiene una zona central. Un galgo y un carlino probablemente ven los mismos colores, pero exploran de otra manera. Para gatos no hay ninguna comparación entre razas en las fuentes.
Los elefantes son un caso particular. Pigmentos producidos con genes africanos y asiáticos tienen máximos a 419 y 552 nm, iguales a los de personas con deuteranopía, un tipo de ceguera al rojo y verde. Cerdos (439 y 556 nm), cobayas (429 y 529 nm) y conejos (425 y 523 nm) también son dicromáticos, con máximos algo diferentes. Los monos del Viejo Mundo rondan 430, 535 y 565 nm, casi exactamente nuestros valores.
Las aves aportan cuatro conos y gotas de aceite coloreadas. El estornino pinto tiene conos simples a 563, 504, 449 y unos 362 nm; el último es UV. El ánade real los tiene a unos 420, 452, 502 y 570 nm. Los pigmentos del pavo real a 424, 458, 505 y 567 nm pasan, al filtrarse por las gotas, a máximos de sensibilidad de 432, 477, 537 y 605 nm. La tortuga de orejas rojas combina cuatro pigmentos y gotas en siete conos. Los pingüinos siguieron otro camino y conservaron tres, a 403, 450 y 543 nm, adecuados al agua azul verdosa.
Ver desde la altura de un animal
El nuevo interruptor «Altura ocular» pone la cámara donde estarían los ojos y permite mirar desde allí. El ratón ve desde 3 cm, bajo las puntas de la hierba: el césped se vuelve un bosque de hojas y las manzanas se ocultan hasta girar hacia ellas. El perro mira desde 50 cm, la persona desde 1,6 m y la jirafa desde 5 m sobre todo el jardín. Los polinizadores empiezan junto a las flores amarillas bajas; la abeja a 12 cm.
Son valores del modelo, alturas típicas de adultos de pie o posados, no mediciones de artículos. Los acuáticos no tienen altura aquí: esta vista solo funciona en jardín y bosque. La altura cambia mucho. A 3 cm, lo cercano al suelo es grande y próximo, el cielo ocupa media vista y un objeto a un metro puede ocultarse tras una hoja. A 5 m, el jardín es una pequeña parcela con flores como puntos y los 25 a 27 ciclos por grado de la jirafa importan más que su color.
Contar facetas
Un ojo compuesto muestrea el mundo con muchas facetas orientadas en direcciones distintas. El ángulo entre vecinas limita el patrón resoluble; aquí se dibuja un panal con esa separación y cada hexágono promedia su zona. Una obrera tiene de media 5432 facetas por ojo, contadas por Seidl y Kaiser en 1981, y ambos ojos ven casi una esfera completa. Repartir 5432 hexágonos sobre media esfera da unos 2 grados de separación media. Delante, donde observa flores, se juntan a unos 0,93 grados. La lectura indica ese valor y cuántas facetas caben a lo ancho de la vista.
El mosquito muestra la poca precisión que puede tener un insecto. Las hembras de Aedes aegypti separan facetas 6,2 grados y resuelven un mínimo de unos 12,3, cerca de la anchura de tu mano con el brazo extendido. Un estudio posterior de abejas encontró receptores frontales individuales sensibles a objetos de solo 0,6 por 0,6 grados, más finos de lo que sugiere la separación. El panal es un límite inferior de detección, no la imagen de todo lo que nota.
No todos los ojos compuestos funcionan faceta por faceta. En ciertos camarones marinos y bogavantes, tubos cuadrados revestidos de espejos reúnen la luz de muchas facetas en un punto y forman una imagen luminosa. Land describió estos ojos de superposición reflectantes en 1976. Aquí no se puede dibujar esa diferencia, así que el bogavante recibe el mismo panal con separación de modelo.
Grano en la oscuridad
La luz llega en fotones. Con poca luz cada receptor capta pocos durante el tiempo de formar una imagen. El recuento varía aleatoriamente entre instantes en torno a su raíz cuadrada. Si capta 100 fotones, varía unos 10, el 10% de la señal; si capta 4, varía 2, el 50%. Es ruido fotónico, responsable del grano bajo la luna. Las vistas nocturnas siguen esa regla: crece con la raíz cuadrada del brillo local y baja al aumentar luz o ganancia del animal. Un gato con ganancia de 5,5 respecto a una persona tiene menos grano con la misma luz. La escala del grano es un modelo; la regla de raíz cuadrada no.
Los animales fríos tienen otra ventaja. Los bastones a veces responden sin luz, activados por calor; ese ruido oscuro fija el límite de luz mínima detectable. Aho y colaboradores compararon especies a distintas temperaturas y encontraron menos ruido y mejor sensibilidad absoluta en frío, útil para sapos y ranas. Estas van más lejos: tienen dos tipos de bastones y en un estudio de 2017 distinguieron azul de verde al saltar hacia la luz hasta el mínimo visible.
Ojos que apenas forman una imagen
También hay ojos que hacen algo distinto a formar imágenes nítidas. El nautilo tiene un ojo estenopeico sin lente, abierto al mar, cuyo ángulo mínimo separable va de 5,5 a 11,25 grados. Los quitones llevan cientos de ojos en placas, con lentes de aragonito que resuelven unos 9 a 12 grados en aire y agua. Las lentes de medusa de caja forman imágenes casi perfectas, pero la retina fuera del foco hace que cada receptor vea una zona amplia y borrosa. La estrella de mar tiene un ojo compuesto sin lentes por brazo, lento y sin color, suficiente para volver al arrecife. En el extremo opuesto, el globo de calamar gigante de unos 27 cm y pupila de 9 cm es el mayor ojo animal. Los ojos posteriores de la araña lanzaredes tienen número f 0,58 y recogen unas 2000 veces más luz por receptor que una saltarina.
Breve historia de cómo medimos otros ojos
Durante casi todo el siglo 20, la visión se deducía del comportamiento: entrenar al animal para elegir una tarjeta a cambio de premio y ver cuáles confundía. Es lento, pero responde a lo importante: qué puede usar realmente. Muchas cifras aún vienen de ahí: agudeza equina de 1992, colores estelares de la polilla de 2002 y pruebas del camarón mantis de 2014.
La fisiología añadió otro camino. En 1952 Bullock y Cowles pusieron electrodos en nervios de foseta y observaron la respuesta al acercar un objeto caliente. La microespectrofotometría pasa un pequeño haz por un receptor y mide su absorción; así se midieron los conos humanos de 1980, de aves de 1997 y pigmentos de tiburón de 2011. Los electrorretinogramas desde la superficie ocular dieron curvas de caballo, bovino y ciervo sin disección.
La genética es la vía más nueva. Contar genes de opsina indica cuántos pigmentos podría producir un animal: las libélulas tienen de 15 a 33. Pero contar genes no equivale a un sentido cromático. El camarón mantis recuerda que la conducta tiene la última palabra: muchos receptores no garantizan discriminación fina.
Pruébalo
El panel inferior tiene doce tareas para usar la escena como investigador. Pulsa «Iniciar» para preparar una escena y cambia animal, luz o distancia hasta la marca. Una pide el patrón floral para ojos UV; otra un animal que confunda las pelotas roja y verde. Otras buscan color con luz estelar, visión hacia atrás, parpadeo de una pantalla de 60 Hz, distancia donde solo el águila reconoce al conejo, profundidad donde el pez rojo se vuelve gris, desenfoque horizontal y aumento necesario para que el perro vea borroso junto a ti. Tres tareas nuevas usan altura ocular: encontrar la guía de néctar de argentina a altura de abeja, las manzanas como ratón a 3 cm y tres animales con campo hacia atrás. Debajo hay 102 estudios; «Mostrar» prepara la escena de cada uno.
Cómo se calculan las vistas
Todo ocurre en dos pasadas de tu chip gráfico. Primero se dibuja la escena fuera de pantalla con color lineal; una segunda imagen menor registra UV reflejado, temperatura, polarización y distancia de cada superficie. Luego un sombreador de pantalla completa convierte ambas en la vista animal.
El color sigue a Machado y colaboradores (2009), ampliado a otros animales. La pantalla forma cada color con tres primarios estrechos y cada píxel tiene espectro conocido. Al multiplicarlo por las curvas de receptores se obtienen sus capturas, normalizadas para que el blanco con UV medio dé 1 en cada receptor. Luego se busca el color de pantalla que te dé un resultado parecido. Para dos receptores hay solución exacta: el color del plano entre blanco y azul que produce las mismas capturas en ambos. Los colores que confunde el animal quedan idénticos. Para tres receptores con UV, el corto se muestra azul, el medio verde y el largo rojo, falso color habitual para abejas. Cuatro no se representan en una pantalla de tres colores: los tuyos se conservan y, si hay UV, se añade un tinte morado. Uno produce gris.
La nitidez es un desenfoque de radio igual a los píxeles por grado divididos por el doble de los ciclos por grado del animal. Los ojos compuestos son panales con su separación y promedio por celda. Con poca luz, el brillo cae en escala logarítmica según la ganancia, el color se desvanece bajo el límite y aumenta el ruido fotónico (véase «Grano en la oscuridad»). Bajo el agua, cada color se multiplica por su transmisión en el trayecto. El panorama dibuja en un mapa cúbico y lo despliega alrededor de ti.
Cómo se dibuja el jardín
Esta versión reconstruye formas para que parezcan naturales y no triángulos planos. Cada brizna es una tira curva estrecha; miles se dibujan juntas y un programa gráfico las dobla con la brisa sin que el procesador mueva cada una. Pétalos y hojas son superficies curvas. Las flores de argentina llevan un patrón solo para UV: sus centros aparecen oscuros para abejas y otros ojos UV, nunca para ti. Las piedras son esferas deformadas por ruido fractal con superficie suave; manzanas, pelotas, plato y taza usan formas muy subdivididas con capa transparente como esmalte. Cada escena se ilumina desde su cielo mediante un mapa de entorno prefiltrado; las sombras tienen bordes suaves. En equipos rápidos, una pasada extra oscurece encuentros con el suelo, la oclusión ambiental. Los lentos omiten esas pasadas automáticamente y mantienen las mismas vistas.
Son imágenes para comparar ojos, no fotografías. La hierba no tiene semillas, el ciervo no tiene pelo y las flores reales varían mucho más que tres parterres. Los patrones UV siguen lo descrito por las fuentes, no mediciones de estas flores.
Qué omite el modelo
Una pantalla emite tres colores elegidos para conos humanos. Ninguna vista muestra la experiencia subjetiva animal: traduce lo captado a colores visibles para ti. Los valores «modelo» son elecciones: máximos sin pigmentos medidos en estas fuentes, ganancias de geco y polilla, intensidad de desenfoque pupilar, tamaños de facetas de varios insectos y alturas oculares. Los bastones tienen sensibilidad espectral propia cerca de 500 nm que desplaza la noche hacia azul-verde; aquí solo se pierde color. El cerebro importa tanto como el ojo: animales con los mismos conos pueden aprender a interpretarlos de otra forma. También varían individuos y razas; las cifras son valores típicos de estudios individuales.
Tu foto y cámara
«Mi foto» y «Cámara» cargan una imagen del dispositivo o abren la cámara solo al pulsarlos. El chip gráfico procesa aquí la imagen sin subirla ni guardarla. Una foto registra únicamente tres colores del sensor, no UV, calor ni polarización. Esos canales quedan vacíos y se indica.
Preguntas
¿Son daltónicos los perros?
No del todo. Con dos conos cerca de 429 y 555 nm ven azules y amarillos, pero confunden rojos, naranjas y verdes. Se parece a la ceguera humana al rojo y verde, no a un mundo gris.
¿Qué juguete ve mejor un perro sobre césped?
Uno azul. En la vista canina las pelotas roja y verde difieren unas 5 unidades cromáticas; la azul queda a unas 100 del césped.
¿Los gatos ven en la oscuridad?
Ningún ojo ve en oscuridad total. Los gatos detectan luz unas 5,5 veces más tenue que nosotros, por pupilas y óptica, a costa de visión diurna más borrosa y color débil.
¿Qué animal ve mejor de noche?
Depende del criterio. Para color, la esfinge elefante eligió colores a 0,0001 cd/m², débil luz estelar. Para brillo, búhos y gatos captan más luz que nosotros. Muchos nocturnos tienen tapetum para un segundo paso de luz.
¿Qué animal tiene mayor agudeza?
Aquí, el águila audaz, de 132 a 143 ciclos por grado. Entre invertebrados, las arañas saltarinas alcanzan unos 12,5 con sus teleobjetivos, mucho más que insectos del mismo tamaño.
¿Por qué el perro ve tan nítido como yo en pantalla?
En vista normal limita la pantalla, no el ojo. Un grado abarca unos 8 a 20 píxeles, suficientes para 4 a 10 ciclos por grado; tanto tú (unos 60) como el perro (unos 12) pueden resolver más. Aumenta «Teleobjetivo» a ×4 o ×8: habrá suficientes píxeles y solo se borrará la mitad canina.
¿Algún animal ve detrás de sí?
El caballo cubre unos 350 grados, casi todo excepto una franja posterior y una zona frente a la frente. Ánades y becadas llegan a 360 grados. Compáralos en panorama con los 180 de una persona.
¿Por qué parpadean las pantallas para algunos animales?
Muchas pantallas y lámparas cambian brillo 60 o 100 veces por segundo, más rápido que la fusión humana, y parecen estables. Perros, muchas aves y la mayoría de insectos voladores fusionan a frecuencias mayores y ven el parpadeo.
¿Es real el ultravioleta de estas vistas?
Se asignan valores UV a las superficies según patrones conocidos, como el anillo de rudbeckia, y se pintan en falso color. La pantalla no produce UV; son sustituciones.
¿El camarón mantis ve más colores que nadie?
Tiene más tipos de receptores, 12, pero en pruebas distingue con menor precisión que mariposas o personas. Parece reconocer colores por qué receptor responde, no por compararlos.
¿Son daltónicos los tiburones?
Probablemente. Las 17 especies medidas tenían un solo cono. Siguen viendo muy bien contraste, movimiento y brillo.
¿Por qué brillan los ojos con una linterna?
El tapetum lucidum es una capa reflectante tras la retina que devuelve luz a los receptores. La que vuelve a salir produce el brillo.
¿Por qué las cabras tienen pupilas rectangulares?
La barra horizontal permite visión amplia y nítida junto al suelo, de donde llegan depredadores. Los ojos giran al bajar la cabeza para mantenerla nivelada mientras pastan.
¿Las serpientes ven calor con sus ojos?
No. Víboras de foseta, pitones y boas detectan infrarrojo con fosetas faciales separadas. El calor abre canales TRPA1 en sus nervios. Los ojos trabajan junto a ellas.
¿Por qué todo se vuelve azul bajo el agua?
El agua absorbe rojo mucho más que azul, unas 37 veces más a 650 nm que a 450 nm. A pocos metros casi todo el rojo ha desaparecido.
¿Ven colores distintos las razas de perros?
Ninguna fuente compara color entre razas; los dos conos se midieron en perros en general. Sí cambia la distribución ganglionar: hocico largo con franja horizontal como el lobo, corto con zona central.
¿Cómo ve un ratón el jardín?
Desde 3 cm, la hierba se alza sobre el ojo y oculta manzanas; con unos 0,5 ciclos por grado todo es borroso. Sus conos captan UV y verde, así que las manzanas rojas parecen oscuras. Elige ratón y Altura ocular.
¿Cuántas lentes tiene el ojo de una abeja?
Una obrera tiene de media 5432 facetas por ojo, cada una con lente. Delante apuntan con unos 0,93 grados de separación.
¿Por qué la vista nocturna tiene grano?
Con poca luz, cada receptor capta pocos fotones y el número varía al azar aproximadamente su raíz cuadrada. El grano sigue esa regla: mayor con menos luz y menor para ojos más sensibles.
¿Qué animal tiene los ojos mayores?
Calamares gigantes y colosales (Architeuthis y Mesonychoteuthis). Un ojo de calamar gigante midió unos 27 cm y su pupila 9 cm.
¿Ven colores los elefantes?
Sí, son dicromáticos. Sus pigmentos tienen máximos a 419 y 552 nm, iguales a los de personas con deuteranopía.
Términos
- Cono: receptor retiniano diurno. Comparar sus tipos produce color.
- Bastón: receptor para poca luz. No separa colores.
- Dicromático, tricromático, tetracromático: ojo que compara dos, tres o cuatro tipos de receptores.
- Longitud de onda de máxima sensibilidad (λmax): longitud de onda de mayor respuesta del receptor, en nanómetros.
- Ciclos por grado (cpd): parejas de franjas claras y oscuras que un ojo resuelve en un grado de campo.
- Fusión crítica del parpadeo (CFF): frecuencia a la que los destellos parecen luz continua.
- Tapetum lucidum: capa reflectante detrás de la retina de muchos nocturnos.
- Omatidio: unidad del ojo compuesto, con lente y receptores propios.
- Foseta: cavidad térmica facial de víboras de foseta, pitones y boas.
- cd/m²: candela por metro cuadrado, medida del brillo aparente de una superficie; el día alcanza miles y la luz estelar ronda 0,0001.
- Polarización: dirección de vibración de las ondas luminosas. El agua y las escamas brillantes suelen reflejar luz polarizada.
- Altura ocular: altura de cámara sobre el suelo para cada animal en esa vista; un modelo.
- Ojo de superposición: ojo compuesto que combina luz de muchas facetas en una imagen mediante lentes o espejos.
- Ruido fotónico: variación aleatoria de fotones captados por un receptor, aproximadamente la raíz cuadrada de su número.
Fuentes
Todas las direcciones se comprobaron el 18 de octubre de 2026; las fuentes añadidas en la tercera versión, el 19 de octubre de 2026.
- Bowmaker, J. K. & Dartnall, H. J. A. (1980) Visual pigments of rods and cones in a human retina, Journal of Physiology 298: 501-511. https://doi.org/10.1113/jphysiol.1980.sp013097
- Govardovskii, V. I. et al. (2000) In search of the visual pigment template, Visual Neuroscience 17: 509-528. https://doi.org/10.1017/S0952523800174036
- Machado, G. M., Oliveira, M. M. & Fernandes, L. A. F. (2009) A physiologically-based model for simulation of color vision deficiency, IEEE Transactions on Visualization and Computer Graphics 15: 1291-1298. https://doi.org/10.1109/TVCG.2009.113
- Campbell, F. W. & Green, D. G. (1965) Optical and retinal factors affecting visual resolution, Journal of Physiology 181: 576-593. https://doi.org/10.1113/jphysiol.1965.sp007784
- Spector, R. H. (1990) Visual Fields, in Clinical Methods, 3rd edition, NCBI Bookshelf NBK220. https://www.ncbi.nlm.nih.gov/books/NBK220/
- Neitz, J., Geist, T. & Jacobs, G. H. (1989) Color vision in the dog, Visual Neuroscience 3: 119-125. https://doi.org/10.1017/S0952523800004430
- Odom, J. V., Bromberg, N. M. & Dawson, W. W. (1983) Canine visual acuity: retinal and cortical field potentials evoked by pattern stimulation, American Journal of Physiology 245: R637-R641. https://doi.org/10.1152/ajpregu.1983.245.5.R637
- Miller, P. E. & Murphy, C. J. (1995) Vision in dogs, Journal of the American Veterinary Medical Association 207: 1623-1634. https://doi.org/10.2460/javma.1995.207.12.1623
- Miller, P. E., Vision in Animals: What do Dogs and Cats See?, Veterinary Information Network. https://www.vin.com/apputil/content/defaultadv1.aspx?catId=29216&id=3844144
- Daw, N. W. & Pearlman, A. L. (1969) Cat colour vision: one cone process or several?, Journal of Physiology 201: 745-764. https://doi.org/10.1113/jphysiol.1969.sp008785
- Zrenner, E. & Gouras, P. (1979) Blue-sensitive cones of the cat produce a rodlike electroretinogram, Investigative Ophthalmology and Visual Science 18: 1076-1081, PubMed 478777. https://pubmed.ncbi.nlm.nih.gov/478777/
- Kang, I. et al. (2009) Contrast sensitivity of cats and humans in scotopic and mesopic conditions, Journal of Neurophysiology 102: 831-840. https://doi.org/10.1152/jn.90641.2008
- Carroll, J. et al. (2001) Photopigment basis for dichromatic color vision in the horse, Journal of Vision 1: 80-87. https://doi.org/10.1167/1.2.2
- Timney, B. & Keil, K. (1992) Visual acuity in the horse, Vision Research 32: 2289-2293. https://doi.org/10.1016/0042-6989(92)90092-W
- Harman, A. M. et al. (1999) Horse vision and an explanation for the visual behaviour originally explained by the ramp retina, Equine Veterinary Journal 31: 384-390. https://doi.org/10.1111/j.2042-3306.1999.tb03837.x
- UC Davis School of Veterinary Medicine, Center for Equine Health, Equine vision and performance. https://cehhorsereport.vetmed.ucdavis.edu/news/equine-vision-and-performance
- Jacobs, G. H., Deegan, J. F. & Neitz, J. (1998) Photopigment basis for dichromatic color vision in cows, goats, and sheep, Visual Neuroscience 15: 581-584. https://doi.org/10.1017/S0952523898153154
- Jacobs, G. H. et al. (1994) Electrophysiological measurements of spectral mechanisms in the retinas of two cervids, Journal of Comparative Physiology A 174: 551-557. https://doi.org/10.1007/BF00217375
- D'Angelo, G. J. et al. (2008) Visual specialization of an herbivore prey species, the white-tailed deer, Canadian Journal of Zoology 86: 735-743. https://doi.org/10.1139/Z08-050
- Banks, M. S. et al. (2015) Why do animal eyes have pupils of different shapes?, Science Advances 1: e1500391. https://doi.org/10.1126/sciadv.1500391
- Jacobs, G. H., Neitz, J. & Deegan, J. F. (1991) Retinal receptors in rodents maximally sensitive to ultraviolet light, Nature 353: 655-656. https://doi.org/10.1038/353655a0
- Wang, Y. V., Weick, M. & Demb, J. B. (2011) Spectral and temporal sensitivity of cone-mediated responses in mouse retinal ganglion cells, Journal of Neuroscience 31: 7670-7681. https://doi.org/10.1523/JNEUROSCI.0629-11.2011
- Prusky, G. T., West, P. W. & Douglas, R. M. (2000) Behavioral assessment of visual acuity in mice and rats, Vision Research 40: 2201-2209. https://doi.org/10.1016/S0042-6989(00)00081-X
- Jacobs, G. H., Fenwick, J. A. & Williams, G. A. (2001) Cone-based vision of rats for ultraviolet and visible lights, Journal of Experimental Biology 204: 2439-2446. https://doi.org/10.1242/jeb.204.14.2439
- Winter, Y., López, J. & von Helversen, O. (2003) Ultraviolet vision in a bat, Nature 425: 612-614. https://doi.org/10.1038/nature01971
- Peitsch, D. et al. (1992) The spectral input systems of hymenopteran insects and their receptor-based colour vision, Journal of Comparative Physiology A 170: 23-40. https://doi.org/10.1007/BF00190398
- Ryan, L. A. et al. (2020) The buzz around spatial resolving power and contrast sensitivity in the honeybee, Apis mellifera, Vision Research 169: 25-32. https://doi.org/10.1016/j.visres.2020.02.005
- Horth, L., Campbell, L. & Bray, R. (2014) Wild bees preferentially visit Rudbeckia flower heads with exaggerated ultraviolet absorbing floral guides, Biology Open 3, PubMed Central. https://pmc.ncbi.nlm.nih.gov/articles/PMC4001241/
- Koshitaka, H. et al. (2008) Tetrachromacy in a butterfly that has eight varieties of spectral receptors, Proceedings of the Royal Society B 275: 947-954. https://doi.org/10.1098/rspb.2007.1614
- Arikawa, K. (2003) Spectral organization of the eye of a butterfly, Papilio, Journal of Comparative Physiology A 189: 791-800. https://doi.org/10.1007/s00359-003-0454-7
- Kelber, A., Balkenius, A. & Warrant, E. J. (2002) Scotopic colour vision in nocturnal hawkmoths, Nature 419: 922-925. https://doi.org/10.1038/nature01065
- Johnsen, S. et al. (2006) Crepuscular and nocturnal illumination and its effects on color perception by the nocturnal hawkmoth Deilephila elpenor, Journal of Experimental Biology 209: 789-800. https://doi.org/10.1242/jeb.02053
- Thoen, H. H. et al. (2014) A different form of color vision in mantis shrimp, Science 343: 411-413. https://doi.org/10.1126/science.1245824
- Chiou, T.-H. et al. (2008) Circular polarization vision in a stomatopod crustacean, Current Biology 18: 429-434. https://doi.org/10.1016/j.cub.2008.02.066
- Reymond, L. (1985) Spatial visual acuity of the eagle Aquila audax, Vision Research 25: 1477-1491. https://doi.org/10.1016/0042-6989(85)90226-3
- Lind, O. et al. (2013) Ultraviolet sensitivity and colour vision in raptor foraging, Journal of Experimental Biology 216: 1819-1826. https://doi.org/10.1242/jeb.082834
- Martin, G. R. (1984) The visual fields of the tawny owl, Strix aluco L., Vision Research 24: 1739-1751. https://doi.org/10.1016/0042-6989(84)90005-1
- Martin, G. R. & Gordon, I. E. (1974) Visual acuity in the tawny owl (Strix aluco), Vision Research 14: 1393-1397. https://doi.org/10.1016/0042-6989(74)90014-5
- Orlowski, J. et al. (2012) Night vision in barn owls: visual acuity and contrast sensitivity under dark adaptation, Journal of Vision 12(13): 4. https://doi.org/10.1167/12.13.4
- Bowmaker, J. K. et al. (1997) Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds, Vision Research 37: 2183-2194. https://doi.org/10.1016/S0042-6989(97)00026-6
- Palacios, A. G. et al. (1998) Spectral sensitivity of cones in the goldfish, Carassius auratus, Vision Research 38: 2135-2146. https://doi.org/10.1016/S0042-6989(97)00411-2
- Bowmaker, J. K., Thorpe, A. & Douglas, R. H. (1991) Ultraviolet-sensitive cones in the goldfish, Vision Research 31: 349-352. https://doi.org/10.1016/0042-6989(91)90087-L
- Hart, N. S. et al. (2011) Microspectrophotometric evidence for cone monochromacy in sharks, Naturwissenschaften 98: 193-201. https://doi.org/10.1007/s00114-010-0758-8
- Hanke, F. D. & Kelber, A. (2020) The eye of the common octopus (Octopus vulgaris), Frontiers in Physiology 10: 1637. https://doi.org/10.3389/fphys.2019.01637
- Marshall, N. J. & Messenger, J. B. (1996) Colour-blind camouflage, Nature 382: 408-409. https://doi.org/10.1038/382408b0
- Kelman, E. J., Osorio, D. & Baddeley, R. J. (2008) A review of cuttlefish camouflage and object recognition and evidence for depth perception, Journal of Experimental Biology 211: 1757-1763. https://doi.org/10.1242/jeb.015149
- Mäthger, L. M. et al. (2013) The W-shaped pupil in cuttlefish (Sepia officinalis): functions for improving horizontal vision, Vision Research 83: 19-24. https://doi.org/10.1016/j.visres.2013.02.016
- Gracheva, E. O. et al. (2010) Molecular basis of infrared detection by snakes, Nature 464: 1006-1011. https://doi.org/10.1038/nature08943
- Bullock, T. H. & Cowles, R. B. (1952) Physiology of an infrared receptor: the facial pit of pit vipers, Science 115: 541-543. https://doi.org/10.1126/science.115.2994.541-b
- Roth, L. S. V. & Kelber, A. (2004) Nocturnal colour vision in geckos, Proceedings of the Royal Society B 271 (Suppl. 6): S485-S487. https://doi.org/10.1098/rsbl.2004.0227
- Roth, L. S. V. et al. (2009) The pupils and optical systems of gecko eyes, Journal of Vision 9(3): 27. https://doi.org/10.1167/9.3.27
- Ott, M. (2001) Chameleons have independent eye movements but synchronise both eyes during saccadic prey tracking, Experimental Brain Research 139: 173-179. https://doi.org/10.1007/s002210100774
- Land, M. F. (1997) Visual acuity in insects, Annual Review of Entomology 42: 147-177. https://doi.org/10.1146/annurev.ento.42.1.147
- Futahashi, R. et al. (2015) Extraordinary diversity of visual opsin genes in dragonflies, PNAS 112: E1247-E1256. https://doi.org/10.1073/pnas.1424670112
- Williams, D. S. & McIntyre, P. (1980) The principal eyes of a jumping spider have a telephoto component, Nature 288: 578-580. https://doi.org/10.1038/288578a0
- DeVoe, R. D. (1975) Ultraviolet and green receptors in principal eyes of jumping spiders, Journal of General Physiology 66: 193-207. https://doi.org/10.1085/jgp.66.2.193
- Zurek, D. B. et al. (2015) Spectral filtering enables trichromatic vision in colorful jumping spiders, Current Biology 25: R403-R404. https://doi.org/10.1016/j.cub.2015.03.033
- Palmer, B. A. et al. (2017) The image-forming mirror in the eye of the scallop, Science 358: 1172-1175. https://doi.org/10.1126/science.aam9506
- Speiser, D. I. & Johnsen, S. (2008) Scallops visually respond to the size and speed of virtual particles, Journal of Experimental Biology 211: 2066-2070. https://doi.org/10.1242/jeb.017038
- Ollivier, F. J. et al. (2004) Comparative morphology of the tapetum lucidum (among selected species), Veterinary Ophthalmology 7: 11-22. https://doi.org/10.1111/j.1463-5224.2004.00318.x
- Inger, R. et al. (2014) Potential biological and ecological effects of flickering artificial light, PLoS ONE 9: e98631 (Table S1, critical fusion frequencies). https://doi.org/10.1371/journal.pone.0098631
- Pope, R. M. & Fry, E. S. (1997) Absorption spectrum (380-700 nm) of pure water II: integrating cavity measurements, Applied Optics 36: 8710-8723. https://doi.org/10.1364/AO.36.008710
- Neitz, J. & Jacobs, G. H. (1989) Spectral sensitivity of cones in an ungulate, Visual Neuroscience 2: 97-100. https://doi.org/10.1017/S0952523800011949
- Nuboer, J. F. W., van Nuys, W. M. & Wortel, J. F. (1983) Cone systems in the rabbit retina revealed by ERG-null-detection, Journal of Comparative Physiology 151: 347-352. https://doi.org/10.1007/BF00623909
- Jacobs, G. H. & Deegan, J. F. (1994) Spectral sensitivity, photopigments, and color vision in the guinea pig (Cavia porcellus), Behavioral Neuroscience 108: 993-1004. https://doi.org/10.1037/0735-7044.108.5.993
- Coimbra, J. P. et al. (2013) Scene from above: retinal ganglion cell topography and spatial resolving power in the giraffe (Giraffa camelopardalis), Journal of Comparative Neurology 521: 2042-2057. https://doi.org/10.1002/cne.23271
- Yokoyama, S. et al. (2005) Elephants and human color-blind deuteranopes have identical sets of visual pigments, Genetics 170: 335-344. https://doi.org/10.1534/genetics.104.039511
- Fasick, J. I. et al. (1998) The visual pigments of the bottlenose dolphin (Tursiops truncatus), Visual Neuroscience 15: 643-651. https://doi.org/10.1017/S0952523898154056
- Peichl, L., Behrmann, G. & Kröger, R. H. H. (2001) For whales and seals the ocean is not blue: a visual pigment loss in marine mammals, European Journal of Neuroscience 13: 1520-1528. https://doi.org/10.1046/j.0953-816x.2001.01533.x
- Bowmaker, J. K. et al. (1991) Photosensitive and photostable pigments in the retinae of Old World monkeys, Journal of Experimental Biology 156: 1-19. https://doi.org/10.1242/jeb.156.1.1
- Jacobs, G. H. (1996) Primate photopigments and primate color vision, PNAS 93: 577-581. https://doi.org/10.1073/pnas.93.2.577
- Jacobs, G. H. (2009) Evolution of colour vision in mammals, Philosophical Transactions of the Royal Society B 364: 2957-2967. https://doi.org/10.1098/rstb.2009.0039
- Hogg, C. et al. (2011) Arctic reindeer extend their visual range into the ultraviolet, Journal of Experimental Biology 214: 2014-2019. https://doi.org/10.1242/jeb.053553
- Bowmaker, J. K. & Martin, G. R. (1985) Visual pigments and oil droplets in the penguin, Spheniscus humboldti, Journal of Comparative Physiology A 156: 71-77. https://doi.org/10.1007/BF00610668
- Martin, G. R. & Young, S. R. (1984) The eye of the Humboldt penguin, Spheniscus humboldti: visual fields and schematic optics, Proceedings of the Royal Society B 223: 197-222. https://doi.org/10.1098/rspb.1984.0090
- Herrera, G. et al. (2008) Spectral sensitivities of photoreceptors and their role in colour discrimination in the green-backed firecrown hummingbird (Sephanoides sephaniodes), Journal of Comparative Physiology A 194: 785-794. https://doi.org/10.1007/s00359-008-0349-8
- Hart, N. S., Partridge, J. C. & Cuthill, I. C. (1998) Visual pigments, oil droplets and cone photoreceptor distribution in the European starling (Sturnus vulgaris), Journal of Experimental Biology 201: 1433-1446. https://doi.org/10.1242/jeb.201.9.1433
- Hart, N. S. (2002) Vision in the peafowl (Aves: Pavo cristatus), Journal of Experimental Biology 205: 3925-3935. https://doi.org/10.1242/jeb.205.24.3925
- Jane, S. D. & Bowmaker, J. K. (1988) Tetrachromatic colour vision in the duck (Anas platyrhynchos L.): microspectrophotometry of visual pigments and oil droplets, Journal of Comparative Physiology A 162: 225-235. https://doi.org/10.1007/BF00606087
- Martin, G. R. (1986) Total panoramic vision in the mallard duck, Anas platyrhynchos, Vision Research 26: 1303-1305. https://doi.org/10.1016/0042-6989(86)90112-4
- Martin, G. R. (1994) Visual fields in woodcocks Scolopax rusticola (Scolopacidae; Charadriiformes), Journal of Comparative Physiology A 174. https://doi.org/10.1007/BF00192728
- Viitala, J. et al. (1995) Attraction of kestrels to vole scent marks visible in ultraviolet light, Nature 373: 425-427. https://doi.org/10.1038/373425a0
- Loew, E. R. & Govardovskii, V. I. (2001) Photoreceptors and visual pigments in the red-eared turtle, Trachemys scripta elegans, Visual Neuroscience 18: 753-757. https://doi.org/10.1017/S0952523801185081
- Loew, E. R. et al. (2002) Visual pigments and oil droplets in diurnal lizards: a comparative study of Caribbean anoles, Journal of Experimental Biology 205: 927-938. https://doi.org/10.1242/jeb.205.7.927
- Nagloo, N. et al. (2016) Spatial resolving power and spectral sensitivity of the saltwater crocodile, Crocodylus porosus, and the freshwater crocodile, Crocodylus johnstoni, Journal of Experimental Biology 219: 1394-1404. https://doi.org/10.1242/jeb.135673
- Yovanovich, C. A. M. et al. (2017) The dual rod system of amphibians supports colour discrimination at the absolute visual threshold, Philosophical Transactions of the Royal Society B 372: 20160066. https://doi.org/10.1098/rstb.2016.0066
- Aho, A.-C. et al. (1988) Low retinal noise in animals with low body temperature allows high visual sensitivity, Nature 334: 348-350. https://doi.org/10.1038/334348a0
- Allison, W. T. et al. (2004) Visual pigment composition in zebrafish: evidence for a rhodopsin-porphyropsin interchange system, Visual Neuroscience 21: 945-952. https://doi.org/10.1017/S0952523804216145
- Archer, S. N. & Lythgoe, J. N. (1990) The visual pigment basis for cone polymorphism in the guppy, Poecilia reticulata, Vision Research 30: 225-233. https://doi.org/10.1016/0042-6989(90)90038-M
- Muir, L. E., Thorne, M. J. & Kay, B. H. (1992) Aedes aegypti (Diptera: Culicidae) vision: spectral sensitivity and other perceptual parameters of the female eye, Journal of Medical Entomology 29: 278-281. https://doi.org/10.1093/jmedent/29.2.278
- Mote, M. I. & Wehner, R. (1980) Functional characteristics of photoreceptors in the compound eye and ocellus of the desert ant, Cataglyphis bicolor, Journal of Comparative Physiology 137: 63-71. https://doi.org/10.1007/BF00656918
- Salcedo, E. et al. (1999) Blue- and green-absorbing visual pigments of Drosophila: ectopic expression and physiological characterization of the R8 photoreceptor cell-specific Rh5 and Rh6 rhodopsins, Journal of Neuroscience 19: 10716-10726. https://doi.org/10.1523/JNEUROSCI.19-24-10716.1999
- Skorupski, P. & Chittka, L. (2010) Photoreceptor spectral sensitivity in the bumblebee, Bombus impatiens (Hymenoptera: Apidae), PLoS ONE 5: e12049. https://doi.org/10.1371/journal.pone.0012049
- Nityananda, V. et al. (2016) Insect stereopsis demonstrated using a 3D insect cinema, Scientific Reports 6: 18718. https://doi.org/10.1038/srep18718
- Land, M. F. (1976) Superposition images are formed by reflection in the eyes of some oceanic decapod Crustacea, Nature 263: 764-765. https://doi.org/10.1038/263764a0
- Nilsson, D.-E. et al. (2012) A unique advantage for giant eyes in giant squid, Current Biology 22: 683-688. https://doi.org/10.1016/j.cub.2012.02.031
- Muntz, W. R. A. & Raj, U. (1984) On the visual system of Nautilus pompilius, Journal of Experimental Biology 109: 253-263. https://doi.org/10.1242/jeb.109.1.253
- Speiser, D. I., Eernisse, D. J. & Johnsen, S. (2011) A chiton uses aragonite lenses to form images, Current Biology 21: 665-670. https://doi.org/10.1016/j.cub.2011.03.033
- Blest, A. D. & Land, M. F. (1977) The physiological optics of Dinopis subrufus L. Koch: a fish-lens in a spider, Proceedings of the Royal Society B 196: 197-222. https://doi.org/10.1098/rspb.1977.0037
- Nilsson, D.-E. et al. (2005) Advanced optics in a jellyfish eye, Nature 435: 201-205. https://doi.org/10.1038/nature03484
- Garm, A. & Nilsson, D.-E. (2014) Visual navigation in starfish: first evidence for the use of vision and eyes in starfish, Proceedings of the Royal Society B 281: 20133011. https://doi.org/10.1098/rspb.2013.3011
- Seidl, R. & Kaiser, W. (1981) Visual field size, binocular domain and the ommatidial array of the compound eyes in worker honey bees, Journal of Comparative Physiology 143: 17-26. https://doi.org/10.1007/BF00606065
- McGreevy, P., Grassi, T. D. & Harman, A. M. (2004) A strong correlation exists between the distribution of retinal ganglion cells and nose length in the dog, Brain, Behavior and Evolution 63: 13-22. https://doi.org/10.1159/000073756
- Koski, M. H. & Ashman, T.-L. (2015) Floral pigmentation patterns provide an example of Gloger's rule in plants, Nature Plants 1: 14007. https://doi.org/10.1038/nplants.2014.7
- Rigosi, E., Wiederman, S. D. & O'Carroll, D. C. (2017) Visual acuity of the honey bee retina and the limits for feature detection, Scientific Reports 7: 45972. https://doi.org/10.1038/srep45972
Texto y simulación: CC BY-NC-SA 4.0, salvo que se indique lo contrario.
Más exposiciones
Fotosíntesis: cómo funciona
Una hoja a pleno sol extrae dióxido de carbono del aire, que solo contiene unas 426 partes por millón, y construye azúcar con él.
Cómo funcionan las cámaras de película e instantáneas
A 1/1000 de segundo, el obturador de una cámara nunca descubre todo el fotograma a la vez: una rendija estrecha barre la película.
Velocidad de la luz: viaja con un destello
La luz da 7,5 vueltas al ecuador en un segundo, pero esa misma luz necesita 2,5 millones de años para alcanzar la galaxia de Andrómeda.
Luz y color: del prisma a los polarizadores
Un prisma de vidrio desvía la luz violeta cerca de 1,6 grados más que la roja, y esa pequeña diferencia basta para abrir la luz blanca en un espectro.
Por qué vemos ilusiones ópticas: sombra, sala de Ames, tamaño y movimiento
La casilla A parece oscura y la B clara, pero tu pantalla le manda a tu ojo el mismo gris desde las dos.
Cómo funciona la fibra óptica: un rayo de luz por el océano
La luz de un cable submarino recorre miles de kilómetros dentro de un núcleo de vidrio de 8,2 micrómetros de ancho, porque llega a su pared con un ángulo mayor de 84,5°.