РИС. 21Чувства
Зрение животных: мир глазами 69 животных
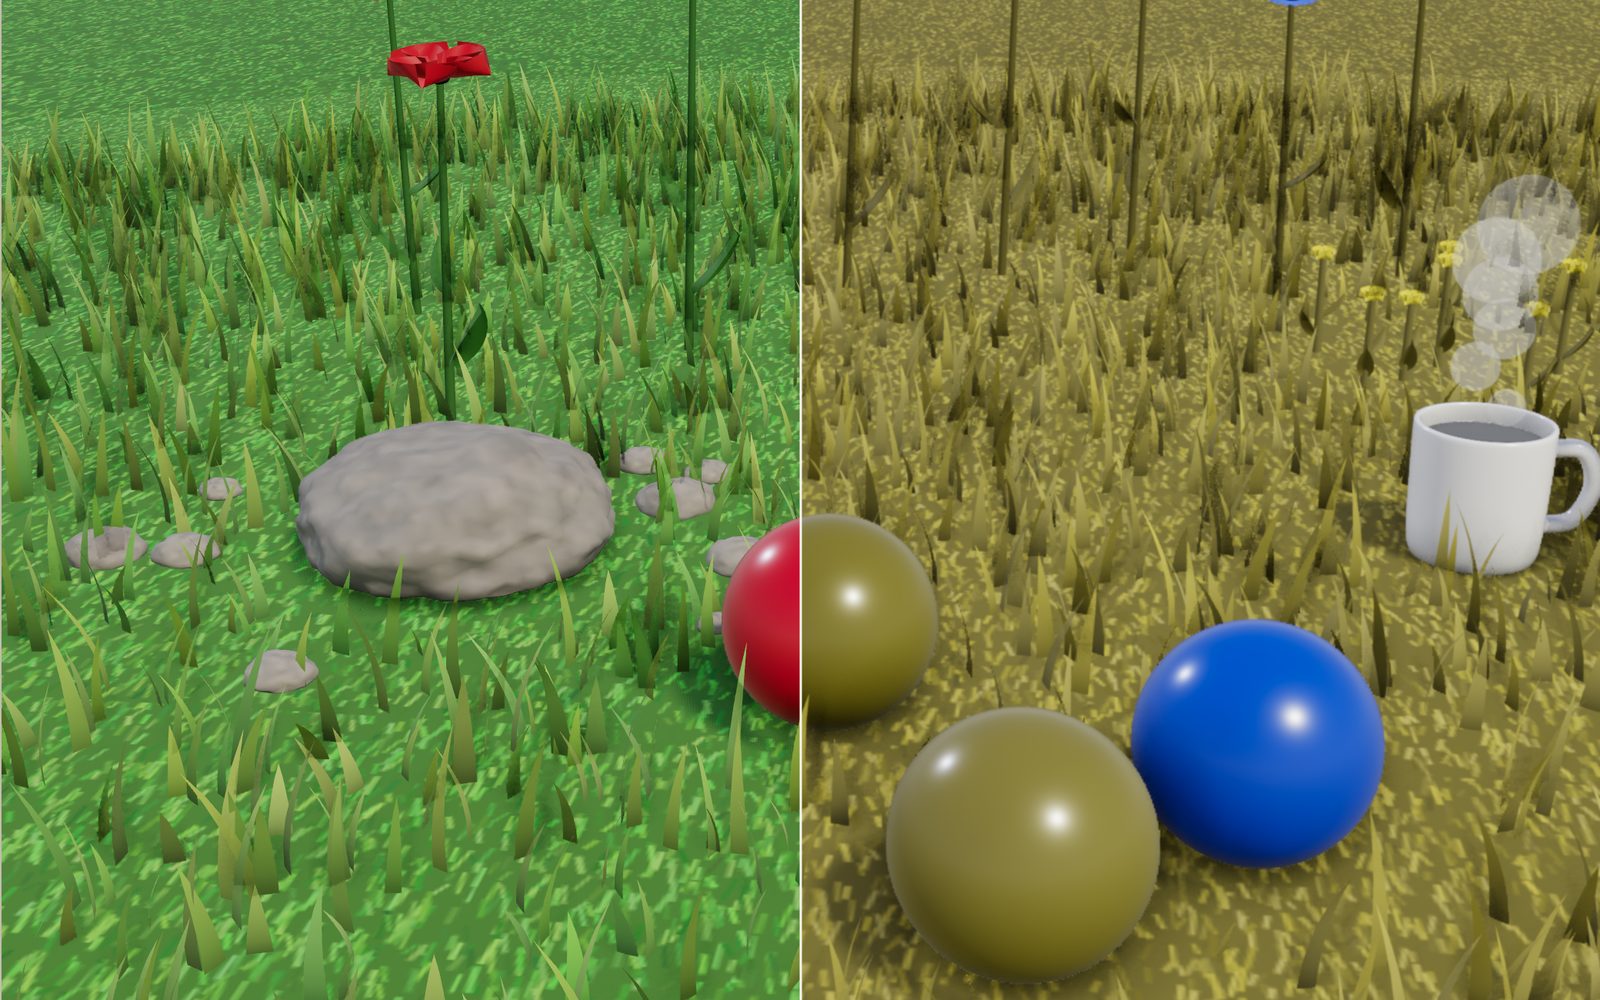
Красный мяч на зелёной траве легко найти вам и неожиданно трудно собаке. Медоносная пчела видит на том же цветке узор, недоступный вам.
На этом устройстве не получается показать 3D-модель. Шаги экскурсии ниже можно прочитать текстом.
1 / 20 Один сад, 69 пар глазОдин сад перерисовывается для каждого животного. Меняются цвет, чёткость, необходимый глазу свет и скорость зрения. Выберите животное на полосе под картинкой или сцену наверху.
Тяните для поворота. Колесо или щипок меняют масштаб.
Почему собака теряет красный мяч
Бросьте красный мяч на зелёный газон, и вы сможете проследить за ним весь путь. Многие собаки пробегают мимо, а затем находят его носом. Мяч не стал невидимым. Для собаки красный и зелёный воздействуют на один и тот же тип колбочек, поэтому мяч и трава выглядят двумя оттенками одного тусклого оливкового цвета. Бросьте вместо него синий мяч, и собака увидит его сразу.
В этой маленькой сцене заключено почти всё, о чём рассказывает экспонат. Глаз не камера, записывающая мир таким, каков он есть. Он воспринимает свет несколькими типами рецепторов, с определённой чёткостью, скоростью и углом обзора и лишь выше определённой яркости. У каждого животного эти параметры сложились по-своему. Сцена заново рисует сад, ночной лес, риф и луг с воздуха глазами 69 животных. Каждое показанное число взято из измерений в статье или на университетской странице, перечисленных в конце. Если измерений нет, сцена пишет «нет данных», а не угадывает.
Как глаз превращает свет в цвет
В сетчатке два вида светочувствительных клеток. Палочки работают при слабом освещении и не различают цвета. Колбочки работают днём и бывают нескольких типов, каждый из которых настроен на свой диапазон длин волн. Отдельная колбочка не знает, какой цвет она видит: она лишь сообщает, сколько света поглотила. Мозг сравнивает сигналы разных типов колбочек, и это сравнение мы ощущаем как цвет.
У человека обычно три типа колбочек. При измерении отдельных клеток человеческой сетчатки их максимумы находятся около 420 нм (фиолетово-синий), 534 нм (зелёный) и 564 нм (жёлто-зелёный). Чувствительность зелёной и длинноволновой колбочек сильно перекрывается, но красный и зелёный предметы всё же дают разные отношения сигналов, поэтому мы видим два цвета. Два источника, дающие одинаковый отклик всех трёх колбочек, выглядят одинаково даже при разных спектрах. Поэтому экран может имитировать почти любой цвет всего тремя узкими основными цветами.
Форма кривой чувствительности рецептора у разных пигментов почти одинакова, если известен её максимум. В 2000 году Говардовский с коллегами подобрал шаблон, предсказывающий всю кривую по одному максимуму, включая небольшой второй подъём в коротковолновой области. Кривые на панели сцены построены по этому шаблону, по одной на тип рецепторов. Цветовая модель использует те же кривые.
Две колбочки: собаки, кошки, лошади и ферма
У большинства млекопитающих два типа колбочек: коротковолновые и средне-длинноволновые. С ними глаз всё ещё различает синий и жёлтый, но красный, оранжевый, жёлтый и зелёный действуют преимущественно на длинноволновую колбочку и различаются главным образом яркостью. Человек с красно-зелёным нарушением цветового зрения видит сходным образом.
В опубликованных в 1989 году опытах с обученными собаками нашли два пигмента колбочек с максимумами около 429 нм и 555 нм. У кошек такая же пара, около 450 и 556 нм, измеренная по записям активности сетчатки в 1969 и 1979 годах. У лошадей максимумы составляют 428 и 539 нм по измерениям 2001 года. Крупный рогатый скот, коз и овец исследовали вместе в 1998 году: коротковолновая колбочка между 444 и 455 нм, длинноволновая между 552 и 555 нм. У белохвостого оленя коротковолновая колбочка имеет максимум около 450–460 нм, средневолновая около 537 нм.
Выберите собаку и включите «Пополам». Слева ваш вид, справа вид собаки. Красный и зелёный мячи, разделённые для вас более чем 100 единицами шкалы цветовых различий CIELAB, для собаки различаются примерно на 5 единиц. Синий мяч остаётся дальше чем на 100 единиц от травы. Для игры собаки на траве лучше купить синюю или жёлтую игрушку, а не красную. Попробуйте также лошадь, корову и оленя: максимумы их длинноволновых колбочек немного различаются, поэтому красные цвета становятся оливковыми в несколько разной степени.
Ультрафиолет: мыши, пчёлы, волнистые попугайчики и золотые рыбки
Многие животные видят недоступный нам диапазон света: ультрафиолет, ниже примерно 400 нм. Наш хрусталик поглощает большую его часть до сетчатки. В 1991 году Джейкобс с коллегами обнаружил у некоторых грызунов колбочку с наибольшей чувствительностью к ультрафиолету, первый известный такой рецептор у млекопитающего. У мышей один пигмент имеет максимум 360 нм, зелёный пигмент 508 нм, причём большинство колбочек несёт оба сразу. У крыс тоже есть ультрафиолетовые и средневолновые колбочки. В опытах, опубликованных в 2001 году, они использовали их совместно для различения цветов.
У медоносной пчелы ультрафиолетовые, синие и зелёные рецепторы с максимумами 344, 436 и 544 нм, но нет рецептора красного. У волнистых попугайчиков и зебровых амадин четыре типа колбочек, включая настоящую ультрафиолетовую с максимумом 360–380 нм. У золотой рыбки их тоже четыре: 356, 447, 537 и 623 нм. Питающийся нектаром длинноязыкий листонос из Центральной и Южной Америки реагирует на ультрафиолет вплоть до 310 нм. Однако у него обе задачи выполняет один пигмент: небольшая вторая полоса поглощения зелёного пигмента улавливает ультрафиолет, поэтому летучая мышь воспринимает его как яркость, а не отдельный цвет.
Ультрафиолетовые узоры часто встречаются на цветках. Рудбекия волосистая кажется нам просто жёлтой, но её лепестки поглощают ультрафиолет у центра и отражают на концах, образуя тёмное кольцо вокруг середины цветка. В полевом исследовании 2014 года дикие пчёлы чаще посещали соцветия с увеличенным ультрафиолетовым кольцом, чем с уменьшенным. В саду выберите медоносную пчелу, мышь или волнистого попугайчика и посмотрите вблизи на жёлтые цветы. Экран не излучает ультрафиолет, поэтому сцена хранит отдельное ультрафиолетовое значение для каждой поверхности и показывает его условным цветом. Режим «Только ультрафиолет» показывает лишь этот канал.
Больше рецепторов не всегда означает лучшее различение цветов
У японского парусника ксута восемь разновидностей рецепторов в шести классах. В поведенческих опытах, опубликованных в 2008 году, бабочки, обученные одному цвету, отличали его от другого с разницей всего 1 нм в трёх областях спектра, около 430, 480 и 560 нм. Такая картина указывает на совместную работу четырёх типов рецепторов: парусник видит четырьмя каналами, хотя типов рецепторов у него больше.
Раки-богомолы представляют крайний случай. У некоторых видов 12 типов рецепторов в диапазоне 300–720 нм. Можно ожидать, что они различают цвета лучше всех живых существ. Тоэн с коллегами проверил это в 2014 году и обнаружил обратное: раки путали источники света с разницей 12–25 нм, различая их грубее бабочек и нас. Авторы предполагают, что раки не сравнивают рецепторы тонко, а узнают цвет по отклику определённого узкополосного рецептора, сканируя предмет глазом. Сцена моделирует эту идею простым правилом: самый сильный из 12 откликов задаёт цвет, поэтому риф распадается на плоские полосы оттенков. Эти же животные видят свет с круговой поляризацией, что Чиоу с коллегами показал в 2008 году.
Одна колбочка: акулы, осьминоги и каракатицы
Харт с коллегами измерил зрительные пигменты 17 видов акул в 2011 году. У всех был единственный тип колбочек с максимумом между 532 и 561 нм. С одной колбочкой животное оценивает яркость, но не цвет, так что акулы вполне могут быть цветослепыми. Киты, дельфины и тюлени тоже имеют один тип колбочек; к такому устройству они пришли независимо.
У обыкновенного осьминога один зрительный пигмент с максимумом 475 нм, и большинство поведенческих опытов указывает на цветовую слепоту. У каракатиц сходная ситуация: один тип рецепторов около 500 нм, но они меняют окраску кожи под фон. Маршалл и Мессенджер назвали это «цветослепой маскировкой» в 1996 году. Зато головоногие обладают поляризационным зрением: их рецепторы расположены под прямыми углами друг к другу, и каждый лучше всего поглощает свет с определённым направлением поляризации. Под водой, где отражение от серебристых рыб сильно поляризовано, это полезный сигнал. Выберите осьминога на рифе и включите «Поляризация»: сильно поляризованный свет показан жёлтым, неполяризованный синим.
Насколько чётко: циклы на градус
Чёткость измеряют полосами. Животному показывают пары чёрных и белых полос, делая их всё тоньше, пока оно не перестанет отличать их от ровного серого поля. Самый мелкий ещё различимый узор, выраженный числом пар полос (циклов) на градус поля зрения, задаёт остроту зрения. Человек со зрением 20/20 различает примерно 30 циклов на градус; при обходе оптики глаза интерференционными полосами люди различали около 60 циклов на градус в исследовании 1965 года. Сцена использует 60 как предел человека и переводит любое значение в дробь Снеллена по формуле 20/(600 ÷ число циклов на градус).
У собак записи активности мозга и сетчатки дают 11,6–12,6 цикла на градус, примерно пятую часть лучшего человеческого показателя. Лошади в поведенческих опытах достигали максимум 23,3. Для кошек приводится 3,5–9, для мышей около 0,5, для крыс около 1. Серая неясыть, испытанная при ярком свете рядом с двумя людьми, видела меньше деталей, чем они, и примерно столько же, сколько голубь. На другом конце шкалы клинохвостый орёл: 132–143 цикла на градус в опытах Реймон 1985 года, более чем вдвое выше человеческого показателя и близко к пределу 157, который пропускает его зрачок.
Насекомые строят глаза из множества маленьких фасеток, каждая смотрит в своём направлении. Угол между соседними фасетками задаёт различимость деталей. Он меняется от десятков градусов у примитивных насекомых до 0,24 градуса у стрекоз, наилучшего известного значения. Передняя часть глаза медоносной пчелы различает около 0,54 цикла на градус. Главные глаза паука-скакунчика Portia представляют собой крошечные телеобъективы с расстоянием между рецепторами 2,4 угловой минуты, около 12,5 цикла на градус, гораздо лучше любого насекомого такого размера. Морские гребешки, имеющие до 200 маленьких глаз по краю раковины, различают около 2 градусов.
Чтобы показать остроту зрения на экране, сцена размывает изображение в зависимости от числа пикселей на градус обзора. Решётке с c циклами на градус нужны два пикселя на цикл, поэтому вид с p пикселями на градус показывает максимум p ÷ 2 цикла на градус. В саду градус занимает всего около 16–20 пикселей по высоте при ширине окна 1440 px и около 8–10 на вертикально удерживаемом телефоне. Этого хватает на 4–10 циклов на градус. Это грубее зрения собаки, поэтому при обычном обзоре её размытие составляет треть пикселя, и собака видит так же чётко, как вы. Изображение не ошибочно: сам экран грубее обоих глаз.
«Взгляд вдаль» исправляет это как телескоп. Он сужает поле камеры в 2, 4 или 8 раз, распределяя тот же градус по числу пикселей, увеличенному в 2, 4 или 8 раз. Размытие рисуется в своём истинном размере для данного вида. При ×4 на ноутбуке градус занимает примерно 70–80 пикселей: ваша половина остаётся чёткой, собачья размывается примерно на 2,5–3 пикселя, а пчела видит всего несколько фасеток. На телефоне используйте ×8, где на градус приходится около 70 пикселей. Панель показывает число пикселей на градус и размытие при текущем увеличении. Глаз острее вашего, например орлиный, вообще невозможно показать: картинка всё равно должна пройти через ваши глаза, поэтому сцена оставляет её без размытия и сообщает об этом.
Вид с воздуха делает то же с расстоянием. Он показывает луг в поле высотой всего 4 м, как телескоп, на выбранной дистанции от 20 м до 1,5 км. Примерно с 480 м кролик длиной 40 см занимает около 3 циклов для вас и около 7 для орла: для вас пятно, для орла ещё кролик. Два кролика сидят в 2,4 м друг от друга, чтобы при режиме «Пополам» на каждой половине был один.
Насколько быстро: слияние мельканий
Включайте и выключайте свет, повышая частоту. При некоторой частоте вспышки сливаются в ровное свечение. Это критическая частота слияния мельканий, показывающая, как быстро глаз отслеживает изменения. Ингер с коллегами собрал измерения для 81 вида в 2014 году. У людей около 60 Гц, кошек 55, собак 80, голубей от 77 до 143 в зависимости от исследования, кур от 72 до 105, мясных мух, медоносных пчёл и стрекоз от 200 до 300. У исследованных акул от 18 до 37 Гц.
Фонарь в саду и уличный фонарь в лесу мерцают с заданной частотой от 20 до 320 Гц. Экран не может показать свет, мигающий 100 раз в секунду, поэтому фонарь медленно пульсирует, когда выбранное животное могло бы заметить мерцание. Пульсация тем глубже, чем ниже частота фонаря относительно порога слияния животного. При 100 Гц, мерцании лампы от сети 50 Гц, фонарь ровный для вас и пульсирует для пчелы. При 60 Гц, частоте обновления многих экранов, он ровный для кошки и пульсирует для собаки.
Числа рядом
Атлас под элементами управления перечисляет всех 69 животных с источниками. Здесь приведены животные с наибольшим числом измерений в единицах сцены. Дефис означает, что в этих источниках число не найдено.
| Животное | Максимумы рецепторов (нм) | Острота (циклов/градус) | Поле | Слияние мельканий (Гц) |
|---|---|---|---|---|
| Человек | 420, 534, 564 | 60 | 180° | 60 |
| Собака | 429, 555 | 11,6–12,6 | 240° | 80 |
| Кошка | 450, 556 | 3,5–9 | 200° | 55 |
| Лошадь | 428, 539 | 23,3 | 350° | - |
| Мышь | 360, 508 | 0,5 | - | - |
| Крыса | ультрафиолетовый и средневолновый | 1 | - | 30 |
| Медоносная пчела | 344, 436, 544 | 0,54 | - | 200–300 |
| Голубь | 409, 453, 507, 567 | - | - | 77–143 |
| Золотая рыбка | 356, 447, 537, 623 | - | - | - |
| Клинохвостый орёл | коротковолновая, чувствительная к фиолетовому | 132–143 | - | - |
| Серая неясыть | - | - | 201° | - |
| Стрекоза | от 15 до 33 генов опсинов | 2,1 | - | 300 |
| Паук-скакунчик | ультрафиолетовый и зелёный | 12,5 | - | - |
| Акулы | одна колбочка, 532–561 | - | - | 18–37 |
Прочитав строку, вы увидите компромиссы. У орла самые острые глаза, но особые ночные способности не зарегистрированы; кошка видит при слабом свете, но мелкие детали размыты; пчела видит ультрафиолет и быстрое мерцание, но различает лишь около половины цикла на градус.
Ночное зрение
При слабом свете колбочки перестают работать, и их заменяют палочки. Палочки чувствительнее, но имеют один тип, поэтому цвет исчезает. Люди теряют цвет примерно при 0,02 кд/м², а это примерно уровень сумерек. Кошки видят при более слабом свете: в опытах с одинаковыми узорами их чувствительность была выше на 0,74 логарифмической единицы, примерно в 5,5 раза, в основном благодаря большим зрачкам и светосиле оптики. У сипух трубчатые глаза с диафрагменным числом 1,13; человеческий глаз в темноте имеет примерно f/2,4, поэтому изображение на сетчатке совы примерно в 4,5 раза ярче. Сцена использует это отношение как ночное усиление сипухи и помечает его как модель.
Два животных сохраняют цвет там, где мы не можем. У шлемоголовых гекконов совсем нет палочек, лишь три типа крупных колбочек. В 2004 году они различали синий и серый при 0,002 кд/м², слабом лунном свете. В опытах, опубликованных в 2002 году, средние винные бражники выбирали цветные цели при 0,0001 кд/м², слабом свете звёзд; люди при таком освещении полностью цветослепы. Выберите в ночном лесу «Слабый свет звёзд» и попробуйте их. Для них сцена увеличивает яркость во столько раз, во сколько их порог цветового зрения ниже нашего (в 10 и 200 раз), и тоже помечает это как модель.
У многих ночных животных за сетчаткой есть зеркало, тапетум. Свет, прошедший мимо рецепторов без поглощения, возвращается через них для второй попытки. Он есть у собак, кошек, лошадей, крупного рогатого скота, многих других млекопитающих и акул. Поэтому их глаза светятся в луче фонаря. Включите фонарик в лесу и посмотрите на оленя.
Насколько широко: поля зрения
Глаза спереди головы видят одну сцену дважды, помогая оценивать глубину; глаза по бокам одновременно охватывают больше мира. Человек видит примерно по 90 градусов в каждую сторону, около 180 всего, из них примерно 120 обоими глазами. Поле собаки около 240 градусов с перекрытием 30–60, кошки около 200. Лошадь охватывает примерно 350 градусов, не видя лишь строго сзади и прямо перед лбом. Каждый глаз серой неясыти охватывает всего 124 градуса, самое узкое измеренное поле среди позвоночных, поэтому общее поле составляет 201 градус с перекрытием 48. Хамелеоны при поиске двигают глазами независимо, затем направляют оба на добычу.
Панорама показывает полный круг вокруг камеры с направлением вперёд посередине. Поле животного занимает середину полосы; всё за его пределами заштриховано. Для животных без измеренного поля панорама показывает все 360 градусов и сообщает об этом.
Формы зрачков
Зрачки бывают круглыми, щелевидными, горизонтальными, W-образными и в виде ряда отверстий. Бэнкс с коллегами сравнил 214 наземных животных в 2015 году и нашёл закономерность. У пасущихся животных-жертв, таких как козы, овцы, лошади и олени, зрачки горизонтальны, а глаза поворачиваются при наклоне головы к траве, сохраняя зрачок параллельным земле. Это даёт чёткий широкий обзор горизонта. У мелких хищников, нападающих из засады близ земли, например кошек, чаще вертикальные щели, помогающие оценивать расстояние по размытию. W-образные зрачки каракатиц выравнивают свет сверху и снизу. Зрачок шлемоголового геккона сужается до ряда отверстий.
Зрачок задаёт форму размытия всего вне фокуса. Включите «Размытие зрачка» и выберите козу: предметы перед точкой вращения камеры и за ней размываются в стороны, а вертикальные края остаются чётче. Щель кошки действует наоборот. Сила размытия здесь выбрана моделью для наглядности; форма соответствует животному.
Под водой
Вода поглощает свет, прежде всего красный. Поуп и Фрай измерили чистую воду в 1997 году: при 650 нм поглощение составляет 0,34 на метр, при 450 нм всего 0,0092, примерно в 37 раз меньше. На рифе свет проходит от поверхности вниз к рифу, затем до вашего глаза, и каждый цвет ослабляется на этом пути. На 15 м остаётся лишь около 2 % красного, поэтому красная рыба становится серо-коричневой даже для вас, а синие и жёлтые дольше сохраняют цвет. Настоящая морская вода также рассеивает свет и содержит планктон; сцена использует чистую воду и простую дымку.
Тепло: ямкоголовые змеи
У ямкоголовых змей, питонов и удавов есть лицевые ямки, обнаруживающие инфракрасное излучение тёплых тел. Буллок и Коулз записали активность нервов ямки в 1952 году и показали отклик на тепло поблизости. В 2010 году Грачёва с коллегами нашла отвечающую за это молекулу: нервные волокна ямок несут каналы TRPA1, открывающиеся при нагревании. Инфракрасное излучение нагревает мембрану ямки, а каналы сообщают об изменении. Это чувство тепла, а не третий вид глаза. Сцена накладывает условные цвета тёплых поверхностей на тёмный вид: чай светится, нагретый солнцем камень слабо светится, открытое небо холодное.
Лаборатория глаз
Пятая сцена раскладывает сами глаза на столе. Разрез человеческого глаза показывает, как роговица и хрусталик преломляют свет в точку на сетчатке, перевёрнутое изображение и центральную ямку с наибольшей плотностью колбочек. Фасеточный глаз представляет купол из шестиугольных фасеток; часть срезана, показывая длинные омматидии, каждый со своей линзой и рецепторами. Третий глаз имеет тапетум за сетчаткой и луч, входящий и возвращающийся наружу. Пять радужек показывают формы зрачков. Последняя модель, глаз морского гребешка, фокусирует свет изогнутым зеркалом вместо линзы. Палмер с коллегами показал в 2017 году, что зеркало выложено квадратными кристаллами гуанина и направляет свет на две сетчатки, одну для центра поля и другую для края. Выберите животное в лаборатории, и камера переместится к его типу глаза.
Шестьдесят девять животных и общие типы глаз
Третья версия экспоната более чем удваивает состав, с 31 до 69 животных в десяти группах. Новых выбрали по вопросам людей: домашние и сельскохозяйственные животные, обитатели зоопарков, птицы сада и побережья, рептилии и лягушки, кусающие или опыляющие насекомые и несколько морских существ с необычными глазами. Каждое добавлено лишь при наличии статьи с измерением какой-либо особенности глаза, и число на сцене связано ссылкой с этой статьёй.
Некоторых животных непосредственно не измеряли, но они явно разделяют зрительную систему с исследованным видом. Атлас отмечает «сгруппировано с» другим животным, а причина объединения тоже имеет источник. Шимпанзе объединён с человеком, поскольку исследования пигментов приматов находят у мартышкообразных, человекообразных обезьян и людей три типа колбочек почти с одинаковыми максимумами. Тюлень объединён с афалиной: окрашивание антителами не обнаружило синих колбочек ни у одного из пяти изученных видов тюленей и морских львов и семи зубатых китов, тогда как их наземные родственники их сохранили. Питоны и удавы объединены с ямкоголовыми, поскольку один и тот же термочувствительный канал найден в нервах ямок всех трёх групп. Жираф показан с двумя колбочками коровы, так как у большинства исследованных копытных их две, но его острота 25–27 циклов на градус собственная, подсчитанная по сетчатке. Сгруппированное животное всегда использует неизменённые кривые представителя, и сцена об этом сообщает.
Часто спрашивают о породах. Два типа колбочек собаки взяты из исследований собак в целом, и ни один из этих источников не сравнивает цветовое зрение пород. Различается расположение плотных скоплений клеток. Макгриви с коллегами обнаружил у длинномордых собак горизонтальную полосу ганглиозных клеток, как у волка, а у мопса одно центральное пятно. Борзая и мопс, вероятно, видят одинаковые цвета, но по-разному осматривают мир. Для кошек в источниках вообще нет сравнения пород.
Слоны оказались показательным случаем. Пигменты, полученные из генов африканских и азиатских слонов, имеют максимумы 419 и 552 нм, ту же пару, что у людей с дейтеранопией, одной из форм красно-зелёного нарушения цветового зрения. Свиньи (439 и 556 нм), морские свинки (429 и 529 нм) и кролики (425 и 523 нм) тоже дихроматы, каждый со слегка отличающимися максимумами. У мартышкообразных они около 430, 535 и 565 нм, почти точно как у нас.
У птиц четыре колбочки и окрашенные масляные капли. У обыкновенного скворца одиночные колбочки имеют максимумы 563, 504, 449 и около 362 нм; последняя истинно ультрафиолетовая. У кряквы около 420, 452, 502 и 570 нм. Пигменты павлина с максимумами 424, 458, 505 и 567 нм после фильтрации каплями дают максимумы чувствительности 432, 477, 537 и 605 нм. Красноухая черепаха объединяет четыре пигмента с каплями в семь типов колбочек. Пингвины пошли другим путём, сохранив три колбочки с максимумами 403, 450 и 543 нм, подходящие сине-зелёной воде.
Взгляд с высоты животного
Новый переключатель «На уровне глаз» перемещает камеру туда, где были бы глаза животного, и позволяет осмотреться. Мышь смотрит с 3 см, ниже кончиков травы, поэтому газон становится лесом стеблей, а яблоки на тарелке скрыты, пока вы не повернётесь к ним. Собака смотрит с 50 см, человек с 1,6 м, жираф с 5 м, сверху на весь сад. Опылители начинают возле низких жёлтых цветов, пчела на 12 см.
Эти высоты модельные, типичные для стоящего или сидящего взрослого животного, а не измерения из статей. У водных животных на сцене нет высоты глаз, поскольку этот режим работает только в саду и лесу. Высота меняет больше, чем кажется. На 3 см всё у земли крупное и близкое, небо занимает верхнюю половину поля, а предмет в метре может скрыться за одной травинкой. На 5 м тот же сад становится маленьким пятном с точками цветов, и 25–27 циклов на градус сетчатки жирафа важнее его цветов.
Подсчёт фасеток
Фасеточный глаз воспринимает мир множеством отдельных фасеток, направленных немного по-разному. Угол между соседними фасетками ограничивает различимость мелкого узора. Сцена рисует соты с таким шагом, каждый шестиугольник усредняет свой участок. У рабочей медоносной пчелы в среднем 5432 фасетки на глаз по подсчётам Зайдля и Кайзера 1981 года, а оба глаза видят почти целую сферу. Если распределить 5432 шестиугольника примерно по полусфере, средний шаг близок к 2 градусам. Спереди, где пчела смотрит на цветы, направления фасеток ближе, около 0,93 градуса друг от друга. Панель показывает это число и количество фасеток поперёк текущего поля.
Комар показывает, насколько грубым бывает глаз насекомого. У самок Aedes aegypti фасетки разнесены на 6,2 градуса, поэтому минимальный различимый угол около 12,3 градуса, примерно ширина ладони на вытянутой руке. Более позднее исследование фоторецепторов медоносных пчёл показало, что отдельные рецепторы спереди глаза реагируют на предметы всего 0,6 на 0,6 градуса, тоньше, чем следует из шага фасеток. Соты задают нижнюю границу обнаружения пчелы, а не изображение всего, что она замечает.
Не каждый фасеточный глаз работает по отдельным фасеткам. У некоторых океанических креветок и омаров квадратные трубки с зеркальными стенками отражают свет многих фасеток в одну точку, строя единое яркое изображение. Лэнд описал эти отражательные суперпозиционные глаза в 1976 году. Сцена не может отобразить это различие, поэтому омар получает те же соты с модельным шагом.
Зернистость в темноте
Свет приходит фотонами, и при слабом освещении каждый рецептор за время формирования изображения улавливает лишь несколько. Их число случайно меняется от момента к моменту примерно на величину собственного квадратного корня. У рецептора, улавливающего 100 фотонов, разброс 10, то есть 10 % сигнала; у улавливающего 4 разброс 2, то есть 50 %. Эта случайность называется фотонным шумом и делает лунную сцену зернистой. Ночные изображения добавляют зерно по этому правилу: оно растёт с квадратным корнем яркости каждого участка и уменьшается с ростом освещённости или усиления животного. У кошки с усилением 5,5 относительно человека зерна при том же свете меньше. Масштаб зерна модельный; правило квадратного корня не модельное.
У холодных животных есть дополнительное преимущество. Палочки иногда срабатывают совсем без света от тепла, и этот темновой шум ограничивает минимальную обнаруживаемую освещённость. Ахо с коллегами сравнил виды при разных температурах и обнаружил меньший шум сетчатки и лучшую абсолютную чувствительность в холоде, что помогает жабам и лягушкам. Лягушки идут дальше. У них два типа палочек, и в исследовании 2017 года лягушки, прыгавшие к свету, различали синий и зелёный вплоть до самого слабого вообще видимого им света.
Глаза, едва создающие изображение
Теперь представлены и животные, глаза которых делают нечто более странное, чем чёткая картинка. У наутилуса открытый морю глаз-камера-обскура без хрусталика с минимальным различимым углом 5,5–11,25 градуса. У хитона сотни крошечных глаз в пластинках панциря с линзами из минерала арагонита; они различают примерно 9–12 градусов в воздухе и воде. У кубомедузы линзы создают почти идеальное изображение, но сетчатка находится вне фокуса, поэтому каждый рецептор видит широкое размытое пятно. У морской звезды на конце каждого луча фасеточный глаз без линз: медленный и цветослепой, но достаточный для возвращения к рифу. На другом конце шкалы глаз гигантского кальмара диаметром около 27 см со зрачком 9 см является крупнейшим глазом среди животных, а задние глаза паука-гладиатора имеют диафрагменное число 0,58 и улавливают примерно в 2000 раз больше света на рецептор, чем глаза паука-скакунчика.
Краткая история измерения чужих глаз
Большую часть XX века зрение животных выясняли по поведению: обучали выбирать карточку за награду и проверяли, какие карточки они путают. Опыты медленные, но отвечают на главный вопрос: чем животное действительно может пользоваться. Многие числа здесь всё ещё взяты из них: острота зрения лошади 1992 года, цветовое зрение бражника при звёздах 2002 года и опыты с раками-богомолами 2014 года.
Физиология добавила второй путь. В 1952 году Буллок и Коулз поместили электроды на нервы лицевой ямки ямкоголовой змеи и наблюдали их срабатывание при приближении тёплого предмета. Микроспектрофотометрия позволяет направить тонкий луч через один рецептор и измерить поглощение пигмента. Так измерены максимумы человеческих колбочек в 1980 году, птичьи колбочки в 1997 и пигменты акул в 2011. Электроретинограммы с поверхности глаза дали кривые колбочек лошадей, крупного рогатого скота и оленей без вскрытия.
Генетика предлагает новейший путь. Подсчёт генов опсинов показывает, сколько пигментов животное могло бы производить: у стрекоз оказалось от 15 до 33. Однако число генов не равно цветовому чувству. История раков-богомолов напоминает, что последнее слово за поведением: множество рецепторов само по себе не даёт тонкого различения цветов.
Попробуйте сами
Панель под управлением содержит двенадцать заданий, предлагающих пользоваться сценой как исследователь. Нажмите «Начать» в задании, и оно настроит сцену; затем меняйте животное, свет или расстояние до отметки выполнения. Одно просит найти узор цветка, видимый лишь ультрафиолетовым глазам. Другое просит найти животное, путающее красный и зелёный мячи. Другие спрашивают, кто сохраняет цвет при звёздах, видит позади себя, замечает мерцание экрана 60 Гц, на какой дистанции лишь орёл узнаёт кролика, на какой глубине красная рыба сереет, что размывает горизонтальный зрачок и насколько далеко нужно смотреть, чтобы собачий вид размылся рядом с вашим. Три новых задания используют высоту глаз: найдите указатель нектара на лапчатке гусиной с высоты пчелы, яблоки глазами мыши с 3 см и посетите трёх животных, чьё поле достигает пространства позади. Список примеров под заданиями содержит 102 исследования; «Показать» настраивает сцену под каждое.
Как вычисляются виды
Всё выполняется за два прохода на графическом чипе. Сначала сцена рисуется во внеэкранное изображение с линейным цветом, а второе, меньшее изображение записывает для каждой поверхности ультрафиолетовое отражение, температуру, степень поляризации света и расстояние. Затем один полноэкранный шейдер превращает два изображения в вид животного.
Цвет следует подходу Машаду с коллегами (2009), расширенному на других животных. Экран создаёт каждый цвет из трёх узких основных цветов, поэтому каждый пиксель имеет известный спектр. Умножение спектра на кривые рецепторов животного даёт их отклики, нормированные так, чтобы белый со средним ультрафиолетом давал 1 в каждом рецепторе. Затем сцена ищет экранный цвет, дающий вам сходный результат. Для двух рецепторов ответ точен: цвет на плоскости между белым и синим, дающий двум рецепторам животного те же отклики. Поэтому любые путаемые животным цвета выглядят одинаково. Для трёх рецепторов, включающих ультрафиолет, самый коротковолновый показан синим, средний зелёным, длинный красным, обычными условными цветами для пчёл. Четыре рецептора невозможно показать на трёхцветном экране, поэтому ваши цвета сохраняются, а ультрафиолет, если он воспринимается, добавляется фиолетовым оттенком. Один рецептор даёт серую картинку.
Чёткость задаётся размытием с радиусом, равным числу пикселей экрана на градус, делённому на удвоенное число циклов на градус животного. Фасеточные глаза рисуются сотами с шагом фасеток, каждая ячейка усредняет участок. При слабом свете яркость падает по логарифмической шкале с усилением каждого животного, цвет исчезает ниже его порога, фотонный шум растёт (см. «Зернистость в темноте»). Под водой каждый цвет умножается на пропускание вдоль пути. В панораме сцена рисуется в кубическую карту и разворачивается вокруг вас.
Как нарисован сад
В этой версии сцены перестроены так, чтобы формы выглядели естественно, а не вырезанными из плоских треугольников. Каждая травинка представляет узкую изогнутую полоску, тысячи рисуются одним пакетом, а небольшая программа графического чипа гнёт их на ветру, избавляя процессор от перемещения каждой отдельно. Лепестки и листья изогнуты, а не плоские. Цветы лапчатки несут узор только в ультрафиолетовом канале, поэтому их тёмные центры появляются для пчёл и других ультрафиолетовых глаз, но никогда в вашем виде. Камни представляют сферы, деформированные фрактальным шумом с сохранением гладкой поверхности. Яблоки, мячи, тарелка и кружка используют мелко разбитые формы с прозрачным глазуреподобным покрытием. Каждая сцена освещается своим небом через предварительно отфильтрованную карту окружения, тени имеют мягкие края. На быстрых устройствах дополнительный проход затемняет складки у контакта предметов с землёй (ambient occlusion). Медленные устройства автоматически отключают дополнительные проходы, сохраняя те же виды.
Это картинки для сравнения глаз, не фотографии. У травы нет семян, у оленя шерсти, а цвета настоящих цветов гораздо разнообразнее трёх клумб. Ультрафиолетовые узоры соответствуют описаниям цитируемых статей; на этих цветах их не измеряли.
Что модель не учитывает
Экран излучает три цвета, подобранные для человеческих колбочек, поэтому ни один вид не показывает переживание животного: он показывает сигналы его рецепторов, переведённые в видимые вам цвета. Числа с пометкой «модель» выбраны, а не измерены: максимумы рецепторов животных, пигментов которых нет в источниках, усиление яркости геккона и бражника, сила зрачкового размытия, размеры фасеток нескольких насекомых и высоты глаз. Палочки имеют собственную спектральную чувствительность около 500 нм, сдвигающую ночные сцены к сине-зелёному; сцена лишь убирает цвет. Мозг важен не меньше глаз: два животных с одинаковыми колбочками могут научиться читать их по-разному. Особи и породы тоже различаются, а здешние числа являются типичными значениями отдельных исследований.
Ваша фотография и камера
«Моё фото» и «Камера» загружают изображение с устройства или открывают камеру, но только по нажатию. Изображение обрабатывается графическим чипом на этой странице, не отправляется и не сохраняется. Фото записывает лишь три цвета датчика камеры, поэтому не содержит ультрафиолета, тепла или поляризации; эти каналы пусты, о чём сцена сообщает.
Вопросы
Собаки не различают цвета?
Не полностью. У собак два типа колбочек, около 429 и 555 нм, поэтому они чётко видят синие и жёлтые оттенки, но путают красные, оранжевые и зелёные. Это близко к красно-зелёному нарушению у людей, а не серый мир.
Какой цвет игрушки собаке легче увидеть на траве?
Синий. В собачьем виде красный и зелёный мячи различаются примерно на 5 единиц цветового различия, а синий отстоит от травы примерно на 100 единиц.
Кошки видят в темноте?
Ни один глаз не видит в полной темноте. Кошки обнаруживают свет примерно в 5,5 раза слабее доступного людям, главным образом благодаря большим зрачкам и оптике, расплачиваясь более размытым дневным зрением и слабым цветом.
Какое животное лучше видит ночью?
Зависит от смысла «лучше». Для цвета это средний винный бражник: он выбирал цвета при 0,0001 кд/м², слабом свете звёзд. Для яркости совы и кошки собирают больше света, чем мы. У многих ночных животных также есть тапетум, дающий свету второй проход.
У какого животного самые острые глаза?
Из здешних животных у клинохвостого орла, 132–143 цикла на градус. Среди беспозвоночных пауки-скакунчики достигают примерно 12,5 своими глазами-телеобъективами, намного превосходя насекомых того же размера.
Почему вид собаки такой же чёткий, как мой?
Потому что при обычном обзоре ограничивает экран, а не глаз. Градус сада занимает лишь около 8–20 пикселей, достаточно для 4–10 циклов на градус. И вы (около 60), и собака (около 12) различаете тоньше. Увеличьте «Взгляд вдаль» до ×4 или ×8: каждый градус получит достаточно пикселей, и собачья половина размоется, а ваша останется чёткой.
Кто-нибудь видит позади себя?
Лошадь охватывает около 350 градусов, видя почти всё вокруг, кроме узкой полосы строго сзади и маленькой зоны перед лбом. Кряквы и вальдшнепы достигают полных 360 градусов. Включите панораму для сравнения с человеческими 180 градусами.
Почему экраны мерцают для некоторых животных?
Многие экраны и лампы меняют яркость 60 или 100 раз в секунду. Это быстрее слияния мельканий человека, поэтому мы видим ровный свет. Собаки, многие птицы и большинство летающих насекомых имеют более высокие пороги и замечают мерцание.
Ультрафиолет в этих видах настоящий?
Ультрафиолетовые значения присвоены каждой поверхности модели по известным узорам, например кольцу рудбекии, и нарисованы условным цветом. Экран не создаёт ультрафиолетовый свет, поэтому эти виды лишь его заменяют.
Раки-богомолы видят больше всех цветов?
У них больше всего типов рецепторов, 12, но в опытах они различали цвета грубее бабочек или людей. Похоже, они узнают цвет по тому, какой рецептор срабатывает, а не сравнивая их.
Акулы цветослепы?
Вероятно. У всех 17 измеренных видов один тип колбочек. При этом они хорошо видят контраст, движение и яркость.
Почему глаза животных светятся в луче фонаря?
У них есть тапетум, зеркальный слой за сетчаткой, отправляющий свет обратно через рецепторы. Повторно выходящий свет создаёт свечение глаз.
Почему у коз прямоугольные зрачки?
Горизонтальная полоска даёт широкий чёткий обзор земли, откуда приходят хищники. Глаза поворачиваются при опускании головы, сохраняя зрачок горизонтальным во время выпаса.
Змеи видят тепло глазами?
Нет. Ямкоголовые, питоны и удавы чувствуют инфракрасное излучение отдельными лицевыми ямками. Тепло открывает термочувствительные каналы TRPA1 в нервах ямок. Глаза работают рядом с ними.
Почему под водой всё становится синим?
Вода поглощает красный свет гораздо сильнее синего: примерно в 37 раз сильнее при 650 нм, чем при 450 нм. На глубине нескольких метров большая часть красного исчезает.
Разные породы собак видят цвета по-разному?
Ни одно исследование из этих источников не сравнивает цветовое зрение пород; два типа колбочек измерены у собак в целом. Породы различаются распределением ганглиозных клеток. У длинномордых собак горизонтальная полоса, как у волка, у короткомордых центральное пятно.
Как выглядит сад для мыши?
С 3 см трава возвышается над глазом, яблоки скрыты за травинками, а при остроте около 0,5 цикла на градус всё размыто. Колбочки мыши воспринимают ультрафиолет и зелёный, поэтому красные яблоки тёмные. Выберите мышь и включите «На уровне глаз».
Сколько линз в глазу пчелы?
У рабочей медоносной пчелы в среднем 5432 фасетки на глаз, каждая со своей линзой. Спереди они направлены примерно на 0,93 градуса друг от друга.
Почему ночной вид зернистый?
При слабом свете каждый рецептор улавливает лишь несколько фотонов за раз, а их число случайно колеблется примерно на величину квадратного корня. Сцена добавляет зерно по этому правилу: сильнее в темноте и слабее у животных с чувствительными глазами.
У какого животного самые большие глаза?
У гигантских и колоссальных кальмаров (Architeuthis и Mesonychoteuthis). Один глаз гигантского кальмара имел диаметр около 27 см и зрачок 9 см.
Слоны различают цвета?
Да, в двух цветах. Максимумы их пигментов 419 и 552 нм, та же пара, что у людей с дейтеранопией.
Термины
- Колбочка: световой рецептор сетчатки, работающий днём. Сравнение типов колбочек создаёт цвет.
- Палочка: рецептор слабого света. Палочки не разделяют цвета.
- Дихромат, трихромат, тетрахромат: глаз, сравнивающий два, три или четыре типа рецепторов.
- Длина волны максимума (λmax): длина волны наибольшего отклика рецептора в нанометрах.
- Циклы на градус (cpd): число пар светлых и тёмных полос, различимых глазом в одном градусе поля зрения.
- Критическая частота слияния мельканий (CFF): частота, при которой вспышки сливаются в ровный свет.
- Тапетум (tapetum lucidum): отражающий слой за сетчаткой многих ночных животных.
- Омматидий: единица фасеточного глаза со своей линзой и рецепторами.
- Ямочный орган: термочувствительная ямка на лице ямкоголовых змей, питонов и удавов.
- кд/м²: кандела на квадратный метр, мера видимой яркости поверхности; дневные сцены имеют тысячи, свет звёзд около 0,0001.
- Поляризация: направление колебаний световых волн. Свет, отражённый водой и блестящей чешуёй, часто поляризован.
- Высота глаз: высота камеры над землёй для каждого животного в соответствующем режиме; модельное значение.
- Суперпозиционный глаз: фасеточный глаз, в котором свет многих фасеток объединяется линзами или зеркалами в одно изображение.
- Фотонный шум: случайные колебания числа пойманных рецептором фотонов, примерно равные квадратному корню их числа.
Источники
Все адреса проверены 18 октября 2026 года; источники, добавленные в третьей версии, 19 октября 2026 года.
- Bowmaker, J. K. & Dartnall, H. J. A. (1980) Visual pigments of rods and cones in a human retina, Journal of Physiology 298: 501-511. https://doi.org/10.1113/jphysiol.1980.sp013097
- Govardovskii, V. I. et al. (2000) In search of the visual pigment template, Visual Neuroscience 17: 509-528. https://doi.org/10.1017/S0952523800174036
- Machado, G. M., Oliveira, M. M. & Fernandes, L. A. F. (2009) A physiologically-based model for simulation of color vision deficiency, IEEE Transactions on Visualization and Computer Graphics 15: 1291-1298. https://doi.org/10.1109/TVCG.2009.113
- Campbell, F. W. & Green, D. G. (1965) Optical and retinal factors affecting visual resolution, Journal of Physiology 181: 576-593. https://doi.org/10.1113/jphysiol.1965.sp007784
- Spector, R. H. (1990) Visual Fields, в Clinical Methods, 3-е издание, NCBI Bookshelf NBK220. https://www.ncbi.nlm.nih.gov/books/NBK220/
- Neitz, J., Geist, T. & Jacobs, G. H. (1989) Color vision in the dog, Visual Neuroscience 3: 119-125. https://doi.org/10.1017/S0952523800004430
- Odom, J. V., Bromberg, N. M. & Dawson, W. W. (1983) Canine visual acuity: retinal and cortical field potentials evoked by pattern stimulation, American Journal of Physiology 245: R637-R641. https://doi.org/10.1152/ajpregu.1983.245.5.R637
- Miller, P. E. & Murphy, C. J. (1995) Vision in dogs, Journal of the American Veterinary Medical Association 207: 1623-1634. https://doi.org/10.2460/javma.1995.207.12.1623
- Miller, P. E., Vision in Animals: What do Dogs and Cats See?, Veterinary Information Network. https://www.vin.com/apputil/content/defaultadv1.aspx?catId=29216&id=3844144
- Daw, N. W. & Pearlman, A. L. (1969) Cat colour vision: one cone process or several?, Journal of Physiology 201: 745-764. https://doi.org/10.1113/jphysiol.1969.sp008785
- Zrenner, E. & Gouras, P. (1979) Blue-sensitive cones of the cat produce a rodlike electroretinogram, Investigative Ophthalmology and Visual Science 18: 1076-1081, PubMed 478777. https://pubmed.ncbi.nlm.nih.gov/478777/
- Kang, I. et al. (2009) Contrast sensitivity of cats and humans in scotopic and mesopic conditions, Journal of Neurophysiology 102: 831-840. https://doi.org/10.1152/jn.90641.2008
- Carroll, J. et al. (2001) Photopigment basis for dichromatic color vision in the horse, Journal of Vision 1: 80-87. https://doi.org/10.1167/1.2.2
- Timney, B. & Keil, K. (1992) Visual acuity in the horse, Vision Research 32: 2289-2293. https://doi.org/10.1016/0042-6989(92)90092-W
- Harman, A. M. et al. (1999) Horse vision and an explanation for the visual behaviour originally explained by the ramp retina, Equine Veterinary Journal 31: 384-390. https://doi.org/10.1111/j.2042-3306.1999.tb03837.x
- UC Davis School of Veterinary Medicine, Center for Equine Health, Equine vision and performance. https://cehhorsereport.vetmed.ucdavis.edu/news/equine-vision-and-performance
- Jacobs, G. H., Deegan, J. F. & Neitz, J. (1998) Photopigment basis for dichromatic color vision in cows, goats, and sheep, Visual Neuroscience 15: 581-584. https://doi.org/10.1017/S0952523898153154
- Jacobs, G. H. et al. (1994) Electrophysiological measurements of spectral mechanisms in the retinas of two cervids, Journal of Comparative Physiology A 174: 551-557. https://doi.org/10.1007/BF00217375
- D'Angelo, G. J. et al. (2008) Visual specialization of an herbivore prey species, the white-tailed deer, Canadian Journal of Zoology 86: 735-743. https://doi.org/10.1139/Z08-050
- Banks, M. S. et al. (2015) Why do animal eyes have pupils of different shapes?, Science Advances 1: e1500391. https://doi.org/10.1126/sciadv.1500391
- Jacobs, G. H., Neitz, J. & Deegan, J. F. (1991) Retinal receptors in rodents maximally sensitive to ultraviolet light, Nature 353: 655-656. https://doi.org/10.1038/353655a0
- Wang, Y. V., Weick, M. & Demb, J. B. (2011) Spectral and temporal sensitivity of cone-mediated responses in mouse retinal ganglion cells, Journal of Neuroscience 31: 7670-7681. https://doi.org/10.1523/JNEUROSCI.0629-11.2011
- Prusky, G. T., West, P. W. & Douglas, R. M. (2000) Behavioral assessment of visual acuity in mice and rats, Vision Research 40: 2201-2209. https://doi.org/10.1016/S0042-6989(00)00081-X
- Jacobs, G. H., Fenwick, J. A. & Williams, G. A. (2001) Cone-based vision of rats for ultraviolet and visible lights, Journal of Experimental Biology 204: 2439-2446. https://doi.org/10.1242/jeb.204.14.2439
- Winter, Y., López, J. & von Helversen, O. (2003) Ultraviolet vision in a bat, Nature 425: 612-614. https://doi.org/10.1038/nature01971
- Peitsch, D. et al. (1992) The spectral input systems of hymenopteran insects and their receptor-based colour vision, Journal of Comparative Physiology A 170: 23-40. https://doi.org/10.1007/BF00190398
- Ryan, L. A. et al. (2020) The buzz around spatial resolving power and contrast sensitivity in the honeybee, Apis mellifera, Vision Research 169: 25-32. https://doi.org/10.1016/j.visres.2020.02.005
- Horth, L., Campbell, L. & Bray, R. (2014) Wild bees preferentially visit Rudbeckia flower heads with exaggerated ultraviolet absorbing floral guides, Biology Open 3, PubMed Central. https://pmc.ncbi.nlm.nih.gov/articles/PMC4001241/
- Koshitaka, H. et al. (2008) Tetrachromacy in a butterfly that has eight varieties of spectral receptors, Proceedings of the Royal Society B 275: 947-954. https://doi.org/10.1098/rspb.2007.1614
- Arikawa, K. (2003) Spectral organization of the eye of a butterfly, Papilio, Journal of Comparative Physiology A 189: 791-800. https://doi.org/10.1007/s00359-003-0454-7
- Kelber, A., Balkenius, A. & Warrant, E. J. (2002) Scotopic colour vision in nocturnal hawkmoths, Nature 419: 922-925. https://doi.org/10.1038/nature01065
- Johnsen, S. et al. (2006) Crepuscular and nocturnal illumination and its effects on color perception by the nocturnal hawkmoth Deilephila elpenor, Journal of Experimental Biology 209: 789-800. https://doi.org/10.1242/jeb.02053
- Thoen, H. H. et al. (2014) A different form of color vision in mantis shrimp, Science 343: 411-413. https://doi.org/10.1126/science.1245824
- Chiou, T.-H. et al. (2008) Circular polarization vision in a stomatopod crustacean, Current Biology 18: 429-434. https://doi.org/10.1016/j.cub.2008.02.066
- Reymond, L. (1985) Spatial visual acuity of the eagle Aquila audax, Vision Research 25: 1477-1491. https://doi.org/10.1016/0042-6989(85)90226-3
- Lind, O. et al. (2013) Ultraviolet sensitivity and colour vision in raptor foraging, Journal of Experimental Biology 216: 1819-1826. https://doi.org/10.1242/jeb.082834
- Martin, G. R. (1984) The visual fields of the tawny owl, Strix aluco L., Vision Research 24: 1739-1751. https://doi.org/10.1016/0042-6989(84)90005-1
- Martin, G. R. & Gordon, I. E. (1974) Visual acuity in the tawny owl (Strix aluco), Vision Research 14: 1393-1397. https://doi.org/10.1016/0042-6989(74)90014-5
- Orlowski, J. et al. (2012) Night vision in barn owls: visual acuity and contrast sensitivity under dark adaptation, Journal of Vision 12(13): 4. https://doi.org/10.1167/12.13.4
- Bowmaker, J. K. et al. (1997) Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds, Vision Research 37: 2183-2194. https://doi.org/10.1016/S0042-6989(97)00026-6
- Palacios, A. G. et al. (1998) Spectral sensitivity of cones in the goldfish, Carassius auratus, Vision Research 38: 2135-2146. https://doi.org/10.1016/S0042-6989(97)00411-2
- Bowmaker, J. K., Thorpe, A. & Douglas, R. H. (1991) Ultraviolet-sensitive cones in the goldfish, Vision Research 31: 349-352. https://doi.org/10.1016/0042-6989(91)90087-L
- Hart, N. S. et al. (2011) Microspectrophotometric evidence for cone monochromacy in sharks, Naturwissenschaften 98: 193-201. https://doi.org/10.1007/s00114-010-0758-8
- Hanke, F. D. & Kelber, A. (2020) The eye of the common octopus (Octopus vulgaris), Frontiers in Physiology 10: 1637. https://doi.org/10.3389/fphys.2019.01637
- Marshall, N. J. & Messenger, J. B. (1996) Colour-blind camouflage, Nature 382: 408-409. https://doi.org/10.1038/382408b0
- Kelman, E. J., Osorio, D. & Baddeley, R. J. (2008) A review of cuttlefish camouflage and object recognition and evidence for depth perception, Journal of Experimental Biology 211: 1757-1763. https://doi.org/10.1242/jeb.015149
- Mäthger, L. M. et al. (2013) The W-shaped pupil in cuttlefish (Sepia officinalis): functions for improving horizontal vision, Vision Research 83: 19-24. https://doi.org/10.1016/j.visres.2013.02.016
- Gracheva, E. O. et al. (2010) Molecular basis of infrared detection by snakes, Nature 464: 1006-1011. https://doi.org/10.1038/nature08943
- Bullock, T. H. & Cowles, R. B. (1952) Physiology of an infrared receptor: the facial pit of pit vipers, Science 115: 541-543. https://doi.org/10.1126/science.115.2994.541-b
- Roth, L. S. V. & Kelber, A. (2004) Nocturnal colour vision in geckos, Proceedings of the Royal Society B 271 (Suppl. 6): S485-S487. https://doi.org/10.1098/rsbl.2004.0227
- Roth, L. S. V. et al. (2009) The pupils and optical systems of gecko eyes, Journal of Vision 9(3): 27. https://doi.org/10.1167/9.3.27
- Ott, M. (2001) Chameleons have independent eye movements but synchronise both eyes during saccadic prey tracking, Experimental Brain Research 139: 173-179. https://doi.org/10.1007/s002210100774
- Land, M. F. (1997) Visual acuity in insects, Annual Review of Entomology 42: 147-177. https://doi.org/10.1146/annurev.ento.42.1.147
- Futahashi, R. et al. (2015) Extraordinary diversity of visual opsin genes in dragonflies, PNAS 112: E1247-E1256. https://doi.org/10.1073/pnas.1424670112
- Williams, D. S. & McIntyre, P. (1980) The principal eyes of a jumping spider have a telephoto component, Nature 288: 578-580. https://doi.org/10.1038/288578a0
- DeVoe, R. D. (1975) Ultraviolet and green receptors in principal eyes of jumping spiders, Journal of General Physiology 66: 193-207. https://doi.org/10.1085/jgp.66.2.193
- Zurek, D. B. et al. (2015) Spectral filtering enables trichromatic vision in colorful jumping spiders, Current Biology 25: R403-R404. https://doi.org/10.1016/j.cub.2015.03.033
- Palmer, B. A. et al. (2017) The image-forming mirror in the eye of the scallop, Science 358: 1172-1175. https://doi.org/10.1126/science.aam9506
- Speiser, D. I. & Johnsen, S. (2008) Scallops visually respond to the size and speed of virtual particles, Journal of Experimental Biology 211: 2066-2070. https://doi.org/10.1242/jeb.017038
- Ollivier, F. J. et al. (2004) Comparative morphology of the tapetum lucidum (among selected species), Veterinary Ophthalmology 7: 11-22. https://doi.org/10.1111/j.1463-5224.2004.00318.x
- Inger, R. et al. (2014) Potential biological and ecological effects of flickering artificial light, PLoS ONE 9: e98631 (таблица S1, критические частоты слияния). https://doi.org/10.1371/journal.pone.0098631
- Pope, R. M. & Fry, E. S. (1997) Absorption spectrum (380-700 nm) of pure water II: integrating cavity measurements, Applied Optics 36: 8710-8723. https://doi.org/10.1364/AO.36.008710
- Neitz, J. & Jacobs, G. H. (1989) Spectral sensitivity of cones in an ungulate, Visual Neuroscience 2: 97-100. https://doi.org/10.1017/S0952523800011949
- Nuboer, J. F. W., van Nuys, W. M. & Wortel, J. F. (1983) Cone systems in the rabbit retina revealed by ERG-null-detection, Journal of Comparative Physiology 151: 347-352. https://doi.org/10.1007/BF00623909
- Jacobs, G. H. & Deegan, J. F. (1994) Spectral sensitivity, photopigments, and color vision in the guinea pig (Cavia porcellus), Behavioral Neuroscience 108: 993-1004. https://doi.org/10.1037/0735-7044.108.5.993
- Coimbra, J. P. et al. (2013) Scene from above: retinal ganglion cell topography and spatial resolving power in the giraffe (Giraffa camelopardalis), Journal of Comparative Neurology 521: 2042-2057. https://doi.org/10.1002/cne.23271
- Yokoyama, S. et al. (2005) Elephants and human color-blind deuteranopes have identical sets of visual pigments, Genetics 170: 335-344. https://doi.org/10.1534/genetics.104.039511
- Fasick, J. I. et al. (1998) The visual pigments of the bottlenose dolphin (Tursiops truncatus), Visual Neuroscience 15: 643-651. https://doi.org/10.1017/S0952523898154056
- Peichl, L., Behrmann, G. & Kröger, R. H. H. (2001) For whales and seals the ocean is not blue: a visual pigment loss in marine mammals, European Journal of Neuroscience 13: 1520-1528. https://doi.org/10.1046/j.0953-816x.2001.01533.x
- Bowmaker, J. K. et al. (1991) Photosensitive and photostable pigments in the retinae of Old World monkeys, Journal of Experimental Biology 156: 1-19. https://doi.org/10.1242/jeb.156.1.1
- Jacobs, G. H. (1996) Primate photopigments and primate color vision, PNAS 93: 577-581. https://doi.org/10.1073/pnas.93.2.577
- Jacobs, G. H. (2009) Evolution of colour vision in mammals, Philosophical Transactions of the Royal Society B 364: 2957-2967. https://doi.org/10.1098/rstb.2009.0039
- Hogg, C. et al. (2011) Arctic reindeer extend their visual range into the ultraviolet, Journal of Experimental Biology 214: 2014-2019. https://doi.org/10.1242/jeb.053553
- Bowmaker, J. K. & Martin, G. R. (1985) Visual pigments and oil droplets in the penguin, Spheniscus humboldti, Journal of Comparative Physiology A 156: 71-77. https://doi.org/10.1007/BF00610668
- Martin, G. R. & Young, S. R. (1984) The eye of the Humboldt penguin, Spheniscus humboldti: visual fields and schematic optics, Proceedings of the Royal Society B 223: 197-222. https://doi.org/10.1098/rspb.1984.0090
- Herrera, G. et al. (2008) Spectral sensitivities of photoreceptors and their role in colour discrimination in the green-backed firecrown hummingbird (Sephanoides sephaniodes), Journal of Comparative Physiology A 194: 785-794. https://doi.org/10.1007/s00359-008-0349-8
- Hart, N. S., Partridge, J. C. & Cuthill, I. C. (1998) Visual pigments, oil droplets and cone photoreceptor distribution in the European starling (Sturnus vulgaris), Journal of Experimental Biology 201: 1433-1446. https://doi.org/10.1242/jeb.201.9.1433
- Hart, N. S. (2002) Vision in the peafowl (Aves: Pavo cristatus), Journal of Experimental Biology 205: 3925-3935. https://doi.org/10.1242/jeb.205.24.3925
- Jane, S. D. & Bowmaker, J. K. (1988) Tetrachromatic colour vision in the duck (Anas platyrhynchos L.): microspectrophotometry of visual pigments and oil droplets, Journal of Comparative Physiology A 162: 225-235. https://doi.org/10.1007/BF00606087
- Martin, G. R. (1986) Total panoramic vision in the mallard duck, Anas platyrhynchos, Vision Research 26: 1303-1305. https://doi.org/10.1016/0042-6989(86)90112-4
- Martin, G. R. (1994) Visual fields in woodcocks Scolopax rusticola (Scolopacidae; Charadriiformes), Journal of Comparative Physiology A 174. https://doi.org/10.1007/BF00192728
- Viitala, J. et al. (1995) Attraction of kestrels to vole scent marks visible in ultraviolet light, Nature 373: 425-427. https://doi.org/10.1038/373425a0
- Loew, E. R. & Govardovskii, V. I. (2001) Photoreceptors and visual pigments in the red-eared turtle, Trachemys scripta elegans, Visual Neuroscience 18: 753-757. https://doi.org/10.1017/S0952523801185081
- Loew, E. R. et al. (2002) Visual pigments and oil droplets in diurnal lizards: a comparative study of Caribbean anoles, Journal of Experimental Biology 205: 927-938. https://doi.org/10.1242/jeb.205.7.927
- Nagloo, N. et al. (2016) Spatial resolving power and spectral sensitivity of the saltwater crocodile, Crocodylus porosus, and the freshwater crocodile, Crocodylus johnstoni, Journal of Experimental Biology 219: 1394-1404. https://doi.org/10.1242/jeb.135673
- Yovanovich, C. A. M. et al. (2017) The dual rod system of amphibians supports colour discrimination at the absolute visual threshold, Philosophical Transactions of the Royal Society B 372: 20160066. https://doi.org/10.1098/rstb.2016.0066
- Aho, A.-C. et al. (1988) Low retinal noise in animals with low body temperature allows high visual sensitivity, Nature 334: 348-350. https://doi.org/10.1038/334348a0
- Allison, W. T. et al. (2004) Visual pigment composition in zebrafish: evidence for a rhodopsin-porphyropsin interchange system, Visual Neuroscience 21: 945-952. https://doi.org/10.1017/S0952523804216145
- Archer, S. N. & Lythgoe, J. N. (1990) The visual pigment basis for cone polymorphism in the guppy, Poecilia reticulata, Vision Research 30: 225-233. https://doi.org/10.1016/0042-6989(90)90038-M
- Muir, L. E., Thorne, M. J. & Kay, B. H. (1992) Aedes aegypti (Diptera: Culicidae) vision: spectral sensitivity and other perceptual parameters of the female eye, Journal of Medical Entomology 29: 278-281. https://doi.org/10.1093/jmedent/29.2.278
- Mote, M. I. & Wehner, R. (1980) Functional characteristics of photoreceptors in the compound eye and ocellus of the desert ant, Cataglyphis bicolor, Journal of Comparative Physiology 137: 63-71. https://doi.org/10.1007/BF00656918
- Salcedo, E. et al. (1999) Blue- and green-absorbing visual pigments of Drosophila: ectopic expression and physiological characterization of the R8 photoreceptor cell-specific Rh5 and Rh6 rhodopsins, Journal of Neuroscience 19: 10716-10726. https://doi.org/10.1523/JNEUROSCI.19-24-10716.1999
- Skorupski, P. & Chittka, L. (2010) Photoreceptor spectral sensitivity in the bumblebee, Bombus impatiens (Hymenoptera: Apidae), PLoS ONE 5: e12049. https://doi.org/10.1371/journal.pone.0012049
- Nityananda, V. et al. (2016) Insect stereopsis demonstrated using a 3D insect cinema, Scientific Reports 6: 18718. https://doi.org/10.1038/srep18718
- Land, M. F. (1976) Superposition images are formed by reflection in the eyes of some oceanic decapod Crustacea, Nature 263: 764-765. https://doi.org/10.1038/263764a0
- Nilsson, D.-E. et al. (2012) A unique advantage for giant eyes in giant squid, Current Biology 22: 683-688. https://doi.org/10.1016/j.cub.2012.02.031
- Muntz, W. R. A. & Raj, U. (1984) On the visual system of Nautilus pompilius, Journal of Experimental Biology 109: 253-263. https://doi.org/10.1242/jeb.109.1.253
- Speiser, D. I., Eernisse, D. J. & Johnsen, S. (2011) A chiton uses aragonite lenses to form images, Current Biology 21: 665-670. https://doi.org/10.1016/j.cub.2011.03.033
- Blest, A. D. & Land, M. F. (1977) The physiological optics of Dinopis subrufus L. Koch: a fish-lens in a spider, Proceedings of the Royal Society B 196: 197-222. https://doi.org/10.1098/rspb.1977.0037
- Nilsson, D.-E. et al. (2005) Advanced optics in a jellyfish eye, Nature 435: 201-205. https://doi.org/10.1038/nature03484
- Garm, A. & Nilsson, D.-E. (2014) Visual navigation in starfish: first evidence for the use of vision and eyes in starfish, Proceedings of the Royal Society B 281: 20133011. https://doi.org/10.1098/rspb.2013.3011
- Seidl, R. & Kaiser, W. (1981) Visual field size, binocular domain and the ommatidial array of the compound eyes in worker honey bees, Journal of Comparative Physiology 143: 17-26. https://doi.org/10.1007/BF00606065
- McGreevy, P., Grassi, T. D. & Harman, A. M. (2004) A strong correlation exists between the distribution of retinal ganglion cells and nose length in the dog, Brain, Behavior and Evolution 63: 13-22. https://doi.org/10.1159/000073756
- Koski, M. H. & Ashman, T.-L. (2015) Floral pigmentation patterns provide an example of Gloger's rule in plants, Nature Plants 1: 14007. https://doi.org/10.1038/nplants.2014.7
- Rigosi, E., Wiederman, S. D. & O'Carroll, D. C. (2017) Visual acuity of the honey bee retina and the limits for feature detection, Scientific Reports 7: 45972. https://doi.org/10.1038/srep45972
Текст и симуляция: CC BY-NC-SA 4.0, если не указано иное.
Другие экспонаты
Почему одинаковые серые клетки кажутся разными
Клетка A кажется тёмной, B светлой, хотя экран посылает в глаз одинаковый серый от обеих.
Как работает оптоволоконный кабель: свет через океан
Свет в подводном кабеле тысячи километров идёт внутри стеклянной сердцевины шириной 8,2 микрометра, потому что падает на её стенку под углом больше 84,5°.
Почему небо голубое, а закат красный
Воздух рассеивает синий свет 440 нм примерно в шесть раз сильнее красного 680 нм, а солнце у горизонта светит сквозь в 35 раз больше воздуха, чем солнце в зените.

Почему секвойя такая большая: рост и вода в лесу гигантов
Встаньте у основания General Sherman Tree высотой 83,8 м и возрастом около 2200 лет, поднимитесь по стволу и узнайте, как сильно натянута вода наверху.
Полное солнечное затмение: симулятор, путь 2027 и даты
2 августа 2027 года тень Луны пройдёт над Испанией, Северной Африкой и Египтом, а около Луксора Солнце будет скрыто примерно 6 мин 23 с.
Как бежит лошадь: сравните шаг, рысь, кентер и галоп
В 1878 году камеры Muybridge показали, что лошадь на галопе отрывает все четыре ноги от земли, собрав их под телом. Некоторые быстрые животные вообще не отрываются от земли.