FIG. 21Les sens
Vision des animaux : voir avec les yeux de 69 animaux
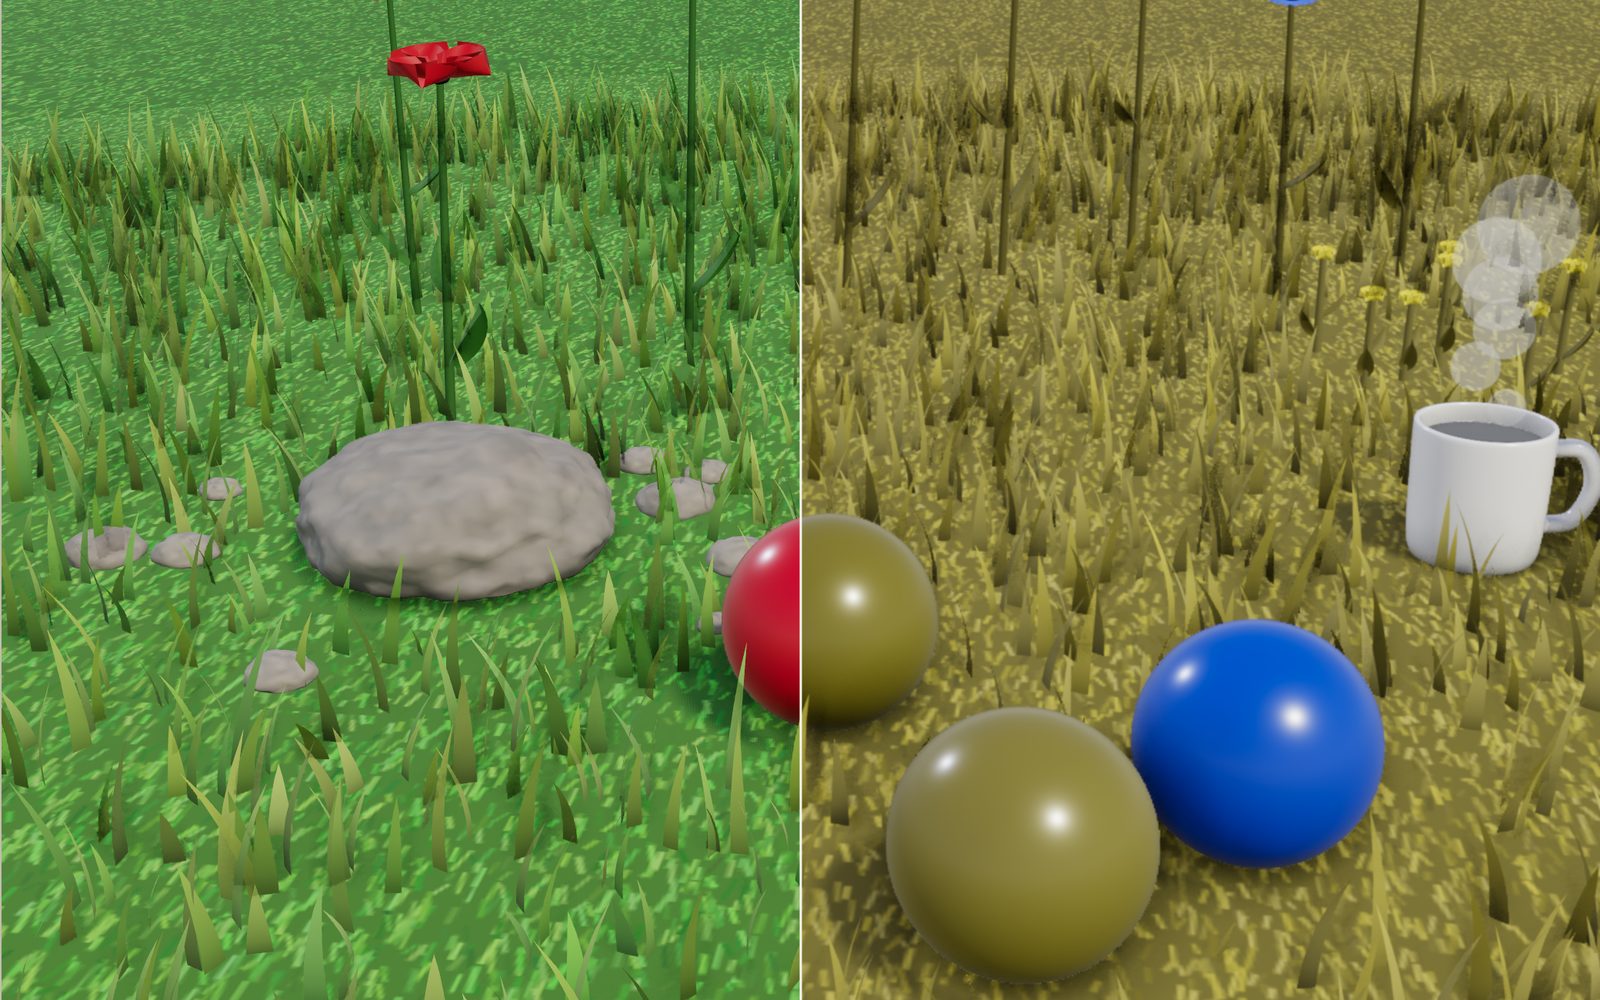
Une balle rouge sur l’herbe verte est facile à trouver pour vous, mais difficile pour un chien. Sur la même fleur, une abeille voit un motif qui vous échappe.
Cet appareil ne peut pas afficher le modèle 3D. Les étapes de la visite ci-dessous se lisent sous forme de texte.
1 / 20 Un jardin, 69 paires d’yeuxLe même jardin est redessiné pour chaque animal. Couleur, netteté, lumière nécessaire et vitesse visuelle changent. Choisissez un animal sous l’image ou une scène en haut.
Faites glisser pour tourner. Molette ou pincement pour zoomer.
Pourquoi un chien perd la balle rouge
La vision des animaux dépend des récepteurs de leurs yeux. Un chien possède deux types de cônes : une balle rouge sur une pelouse verte se détache donc moins nettement que pour vous, qui pouvez la suivre pendant tout le lancer. Beaucoup de chiens passent devant puis la retrouvent au nez. Elle n’est pas devenue invisible. Rouge et vert stimulent le même cône ; balle et herbe apparaissent comme deux nuances d’un olive terne. Une balle bleue, en revanche, se voit aussitôt.
Cette petite scène contient presque tout le sujet de l’exposition. Un œil n’est pas une caméra enregistrant le monde tel quel. Il échantillonne la lumière avec quelques récepteurs, à une certaine netteté et vitesse, sur un certain angle, et seulement au-dessus d’une certaine luminosité. Chaque animal a résolu ces contraintes différemment. La scène redessine un jardin, une forêt nocturne, un récif et une prairie vue du ciel avec les yeux de 69 animaux. Chaque nombre vient d’une mesure publiée ou d’une page universitaire citée à la fin. Sans mesure, elle indique « aucun chiffre » au lieu de deviner.
Comment l’œil transforme la lumière en couleur
La rétine contient deux sortes de capteurs. Les bâtonnets travaillent dans la pénombre sans distinguer les couleurs. Les cônes travaillent le jour et se divisent en types sensibles à des bandes différentes. Aucun cône isolé ne connaît la couleur : il signale seulement la quantité de lumière captée. Le cerveau compare les réponses des différents types, et cette comparaison produit notre expérience de la couleur.
Les humains ont généralement trois cônes. Mesurés cellule par cellule dans une rétine humaine, leurs pics sont proches de 420 nm (violet-bleu), 534 nm (vert) et 564 nm (jaune-vert). Les cônes vert et long se recouvrent beaucoup, mais des objets rouges et verts leur donnent des rapports différents, d’où deux couleurs. Deux lumières stimulant pareillement les trois cônes paraissent identiques, même si leurs spectres diffèrent. C’est pourquoi un écran peut imiter presque toute couleur avec trois primaires étroites.
La forme d’une courbe de sensibilité varie peu d’un pigment à l’autre une fois son pic connu. Govardovskii et ses collègues ont ajusté en 2000 un gabarit prédisant toute la courbe à partir du pic, y compris une petite seconde bosse aux courtes longueurs d’onde. Les courbes de la lecture utilisent ce gabarit, une par récepteur, tout comme le modèle chromatique.
Deux cônes : chiens, chats, chevaux et animaux de ferme
La plupart des mammifères ont un cône court et un moyen à long. Deux cônes permettent encore de distinguer bleu et jaune ; rouge, orange, jaune et vert stimulent surtout le long et diffèrent principalement par la luminosité. Un humain atteint de daltonisme rouge-vert voit de manière similaire.
Chez le chien, des tests sur des animaux entraînés publiés en 1989 ont trouvé deux pigments vers 429 nm et 555 nm. Le chat a une paire comparable vers 450 et 556 nm, mesurée par des enregistrements rétiniens en 1969 et 1979. Le cheval les a à 428 et 539 nm, mesurés en 2001. Bovins, chèvres et moutons ont été testés ensemble en 1998 : un court entre 444 et 455 nm, un long entre 552 et 555 nm. Le cerf de Virginie a un court vers 450 à 460 nm et un moyen vers 537 nm.
Choisissez le chien et « Moitié-moitié ». Votre vue est à gauche, celle du chien à droite. Les balles rouge et verte, distantes de plus de 100 unités pour vous sur l’échelle de différence CIELAB, ne sont plus séparées que d’environ 5 unités pour lui. La balle bleue reste à plus de 100 de l’herbe. Pour un chien jouant sur pelouse, bleu ou jaune convient mieux que rouge. Comparez cheval, vache et cerf : leurs cônes longs légèrement différents rendent le rouge olive à des degrés un peu différents.
Ultraviolet : souris, abeilles, perruches et poissons rouges
De nombreux animaux voient une bande qui nous échappe : l’UV, sous environ 400 nm. Notre cristallin en absorbe l’essentiel avant la rétine. En 1991, Jacobs et ses collègues ont trouvé chez certains rongeurs un cône surtout sensible à l’UV, le premier connu chez un mammifère. La souris en a un culminant à 360 nm et un vert à 508 nm ; la plupart de ses cônes portent les deux pigments ensemble. Les rats ont aussi un cône UV et un moyen et les utilisaient ensemble pour distinguer les couleurs dans des tests publiés en 2001.
Les abeilles ont des récepteurs UV, bleus et verts culminant à 344, 436 et 544 nm, aucun rouge. Perruches ondulées et diamants mandarins ont quatre cônes, dont un véritable UV entre 360 et 380 nm. Les poissons rouges en ont quatre aussi, à 356, 447, 537 et 623 nm. Le glossophage de Pallas, chauve-souris floricole d’Amérique centrale et du Sud, répond jusqu’à 310 nm. Un pigment remplit les deux fonctions : la petite seconde bande d’absorption du vert capte l’UV. Il le voit donc comme une luminosité, non comme une couleur séparée.
Les motifs UV sont fréquents sur les fleurs. Les rudbeckias nous paraissent uniformément jaunes, mais absorbent l’UV près du centre et le réfléchissent aux pointes, formant un anneau sombre. Une étude de terrain de 2014 a trouvé plus de visites d’abeilles sauvages sur les capitules dont l’anneau avait été agrandi que sur ceux où il avait été réduit. Dans le jardin, choisissez abeille, souris ou perruche et approchez des fleurs jaunes. L’écran n’émet pas d’UV : chaque surface possède une valeur UV séparée, affichée en fausses couleurs. « Ultraviolet seul » isole ce canal.
Davantage de récepteurs ne signifie pas toujours de meilleures couleurs
Le porte-queue asiatique a huit variantes de récepteurs en six classes. Dans des tests comportementaux publiés en 2008, des papillons entraînés à une couleur la distinguaient d’une autre distante de 1 nm en trois endroits, vers 430, 480 et 560 nm. Ce motif révèle quatre récepteurs coopérant ; le papillon voit avec quatre canaux malgré ses récepteurs plus nombreux.
Les crevettes-mantes sont le cas extrême. Certaines ont 12 récepteurs répartis de 300 à 720 nm. On pourrait les croire meilleures que tout autre animal pour les couleurs. Thoen et ses collègues ont trouvé l’inverse en 2014 : elles confondaient des lumières séparées de 12 à 25 nm, moins finement que papillons et humains. Ils proposent qu’elles ne comparent pas finement les récepteurs, mais reconnaissent une couleur par le récepteur étroit actif en balayant l’objet avec l’œil. Ici, le plus actif de 12 récepteurs désigne la couleur, partageant le récif en bandes planes. Ces animaux voient aussi la polarisation circulaire, démontrée par Chiou et ses collègues en 2008.
Un cône : requins, poulpes et seiches
Hart et ses collègues ont mesuré les pigments de 17 espèces de requins en 2011. Toutes avaient un seul cône culminant entre 532 et 561 nm. Un cône permet de juger la luminosité, pas la couleur ; les requins pourraient donc être achromates. Baleines, dauphins et phoques n’ont aussi qu’un seul cône, solution atteinte indépendamment.
Le poulpe commun a un pigment culminant à 475 nm ; la plupart des tests comportementaux ne trouvent pas de vision chromatique. Les seiches ont de même un récepteur vers 500 nm, mais changent leur peau pour imiter le fond. Marshall et Messenger ont appelé cela « camouflage sans vision chromatique » en 1996. Les céphalopodes ont en revanche une vision de polarisation : les récepteurs sont perpendiculaires, chacun absorbant mieux une direction de polarisation. Sous l’eau, les reflets très polarisés des poissons argentés fournissent un signal utile. Choisissez le poulpe au récif et « Polarisation » : la lumière fortement polarisée devient jaune, la non polarisée bleue.
La netteté : cycles par degré
La netteté se mesure avec des rayures. On présente des paires noires et blanches de plus en plus fines, jusqu’à les confondre avec un gris uniforme. Le motif le plus fin encore visible, compté en paires ou cycles par degré, donne l’acuité. Un humain avec une vision 20/20 résout environ 30 cycles par degré ; en contournant l’optique par des franges d’interférence, une étude de 1965 atteignait environ 60. Le modèle prend 60 pour limite humaine et convertit les chiffres en fraction de Snellen par 20/(600 ÷ cycles par degré).
Les chiens atteignent 11,6 à 12,6 cycles par degré dans les enregistrements cérébraux et rétiniens, environ le cinquième du meilleur chiffre humain. Les chevaux atteignaient 23,3 au mieux dans les tests comportementaux. Les chats sont donnés à 3,5 à 9, les souris vers 0,5 et les rats vers 1. Une hulotte testée en pleine lumière à côté de deux humains voyait moins de détails, à peu près comme un pigeon. À l’autre extrême, l’aigle d’Australie atteignait 132 à 143 dans les tests de Reymond en 1985, plus du double de l’humain et près des 157 transmis par sa pupille.
Les insectes assemblent de petites facettes regardant chacune dans sa direction. L’angle entre voisines limite les détails. Il va de dizaines de degrés chez les insectes primitifs à 0,24 degré chez les libellules, minimum connu. L’avant de l’œil d’abeille résout environ 0,54 cycle par degré. Les yeux principaux de Portia sont de minuscules téléobjectifs aux récepteurs espacés de 2,4 minutes d’arc, environ 12,5 cycles par degré, bien mieux que tout insecte de sa taille. Les pétoncles, avec jusqu’à 200 yeux le long de la coquille, résolvent environ 2 degrés.
Pour montrer l’acuité, le modèle floute selon le nombre de pixels par degré. Un réseau de c cycles par degré demande deux pixels par cycle ; avec p pixels par degré, l’écran montre au plus p ÷ 2 cycles. Dans le jardin, un degré ne couvre que 16 à 20 pixels en hauteur dans une fenêtre large de 1440 px, et 8 à 10 sur un téléphone vertical : assez pour 4 à 10 cycles par degré. C’est plus grossier qu’un œil de chien ; en vue normale son flou vaut un tiers de pixel et il semble aussi net que vous. Ce n’est pas une erreur : l’écran est plus grossier que les deux yeux.
« Téléobjectif » y remédie comme un télescope. Il réduit le champ de 2, 4 ou 8 fois et répartit chaque degré sur autant de pixels supplémentaires, dessinant le flou à l’échelle correcte. À ×4 sur portable, un degré occupe environ 70 à 80 pixels : votre moitié reste nette, celle du chien prend 2,5 à 3 pixels de flou, l’abeille ne voit que quelques facettes. Sur téléphone, ×8 donne environ 70 pixels par degré. La lecture affiche densité et flou actuels. Un œil plus fin que le vôtre, comme l’aigle, ne peut être montré : l’image doit passer par vos yeux. Elle reste donc sans flou, et le motif est indiqué.
La scène aérienne fait de même avec la distance. Une prairie s’affiche dans un champ haut de seulement 4 m, comme au télescope, à une distance choisie de 20 m à 1,5 km. Vers 480 m, un lapin de 40 cm occupe environ 3 cycles pour vous et 7 pour l’aigle : une tache pour vous, encore un lapin pour lui. Deux lapins sont espacés de 2,4 m pour en avoir un de chaque côté en « Moitié-moitié ».
La vitesse : fusion du scintillement
Augmentez la fréquence d’une lumière qui s’allume et s’éteint : à un moment les éclats fusionnent en lumière stable. Cette fréquence critique de fusion mesure la rapidité de suivi d’un œil. Inger et ses collègues ont rassemblé en 2014 les mesures de 81 espèces. Humains vers 60 Hz, chats à 55, chiens à 80, pigeons de 77 à 143 selon l’étude, poules de 72 à 105, mouches bleues, abeilles et libellules de 200 à 300. Les requins mesurés vont de 18 à 37 Hz.
La lanterne du jardin et le lampadaire de la forêt scintillent au réglage choisi de 20 à 320 Hz. L’écran ne peut montrer 100 éclats par seconde. La lanterne pulse donc lentement lorsque l’animal pourrait détecter le scintillement ; l’amplitude augmente quand sa fréquence descend sous le seuil de l’animal. À 100 Hz, comme une lampe sur secteur 50 Hz, elle est stable pour vous et pulse pour l’abeille. À 60 Hz, fréquence de nombreux écrans, elle reste stable pour le chat et pulse pour le chien.
Les chiffres côte à côte
L’atlas sous les commandes rassemble les 69 animaux avec leurs sources. Voici ceux ayant le plus de mesures, dans les unités de la scène. Un trait signifie qu’aucun chiffre n’a été trouvé dans ces sources.
| Animal | Pics des récepteurs (nm) | Acuité (cpd) | Champ | Fusion du scintillement (Hz) |
|---|---|---|---|---|
| Humain | 420, 534, 564 | 60 | 180° | 60 |
| Chien | 429, 555 | 11,6 à 12,6 | 240° | 80 |
| Chat | 450, 556 | 3,5 à 9 | 200° | 55 |
| Cheval | 428, 539 | 23,3 | 350° | - |
| Souris | 360, 508 | 0,5 | - | - |
| Rat | UV et ondes moyennes | 1 | - | 30 |
| Abeille domestique | 344, 436, 544 | 0,54 | - | 200 à 300 |
| Pigeon | 409, 453, 507, 567 | - | - | 77 à 143 |
| Poisson rouge | 356, 447, 537, 623 | - | - | - |
| Aigle d’Australie | cône court sensible au violet | 132 à 143 | - | - |
| Chouette hulotte | - | - | 201° | - |
| Libellule | 15 à 33 gènes d’opsine | 2,1 | - | 300 |
| Araignée sauteuse | UV et vert | 12,5 | - | - |
| Requins | un cône, 532 à 561 | - | - | 18 à 37 |
Chaque ligne montre les compromis. L’aigle a les yeux les plus fins sans capacité nocturne particulière documentée ; le chat voit dans la pénombre mais perd les détails ; l’abeille voit UV et scintillement rapide, avec seulement environ un demi-cycle par degré de résolution.
Voir la nuit
Dans la pénombre, les cônes cessent de travailler et les bâtonnets prennent le relais. Plus sensibles mais d’un seul type, ils font disparaître la couleur. Les humains la perdent vers 0,02 cd/m², un niveau crépusculaire. Les chats détectent plus faible : avec les mêmes motifs ils étaient plus sensibles de 0,74 unité logarithmique, environ 5,5 fois, surtout grâce aux grandes pupilles et à l’optique. L’effraie a un œil tubulaire de nombre d’ouverture f/1,13 ; l’humain nocturne est vers f/2,4. L’image rétinienne est donc environ 4,5 fois plus lumineuse. Ce rapport est utilisé comme gain nocturne, étiqueté modèle.
Deux animaux gardent la couleur là où nous la perdons. Les geckos casqués n’ont aucun bâtonnet, seulement trois types de grands cônes, et distinguaient en 2004 bleu et gris à 0,002 cd/m², faible clair de lune. Les grands sphinx de la vigne choisissaient des cibles colorées à 0,0001 cd/m², faible lumière stellaire, dans des tests publiés en 2002 ; l’humain n’y voit aucune couleur. Réglez la forêt sur « Faible lumière des étoiles » et comparez. Le modèle éclaircit leur vue selon le rapport des seuils chromatiques au nôtre (10 et 200 fois), en le signalant comme modèle.
Beaucoup d’animaux nocturnes ont un miroir derrière la rétine, le tapetum lucidum. Il renvoie la lumière ayant traversé les récepteurs sans être captée, pour une seconde chance. Chiens, chats, chevaux, bovins et beaucoup d’autres mammifères, ainsi que les requins, en ont un. Voilà pourquoi leurs yeux brillent dans une lampe de poche. Allumez-la dans la forêt et regardez le cerf.
La largeur : champs visuels
Des yeux frontaux voient deux fois la même scène, aidant à juger la profondeur ; les yeux latéraux voient plus de monde à la fois. Un humain voit environ 90 degrés de chaque côté, soit 180 ensemble, dont environ 120 en binoculaire. Le chien couvre 240 degrés avec 30 à 60 de recouvrement, le chat environ 200. Le cheval couvre 350 degrés et ne voit pas juste derrière ni immédiatement devant son front. Chaque œil de hulotte ne couvre que 124 degrés, le minimum mesuré chez un vertébré : total 201 avec 48 de recouvrement. Les caméléons cherchent avec des yeux indépendants puis les couplent sur une proie.
Le panorama montre tout le cercle autour de la caméra, votre avant au centre. Le champ de l’animal occupe le milieu du ruban, l’extérieur est hachuré. Sans chiffre documenté, il montre les 360 degrés et le précise.
Formes de pupilles
Les pupilles peuvent être rondes, en fente, barre, W ou trous. Banks et ses collègues ont comparé 214 animaux terrestres en 2015. Les proies brouteuses comme chèvres, moutons, chevaux et cerfs ont des pupilles horizontales. Les yeux roulent quand la tête s’abaisse, gardant la pupille parallèle au sol et une vue large et nette sur l’horizon. Les petits prédateurs en embuscade près du sol, comme les chats, ont souvent des fentes verticales aidant à estimer la distance par le flou. Le W des seiches équilibre lumière d’en haut et d’en bas. Le gecko casqué ferme sa pupille en rangée de trous.
La pupille détermine la forme du flou hors foyer. Activez « Flou pupillaire » et choisissez la chèvre : les objets devant et derrière le point de rotation de la caméra s’étalent latéralement, tandis que les bords verticaux restent nets. La fente du chat fait l’inverse. La force est un choix du modèle pour rendre la forme claire ; la forme est bien celle de l’animal.
Sous l’eau
L’eau absorbe la lumière, le rouge d’abord. Pope et Fry ont mesuré l’eau pure en 1997 : absorption de 0,34 par mètre à 650 nm, seulement 0,0092 à 450 nm, environ 37 fois moins. Au récif, la lumière descend de la surface puis traverse jusqu’à l’œil ; chaque couleur s’affaiblit sur ce trajet. À 15 m il reste environ 2 pour cent de rouge : le poisson rouge devient gris-brun même pour vous, tandis que les poissons bleus et jaunes gardent leur couleur plus longtemps. L’eau de mer réelle diffuse aussi la lumière et contient du plancton ; ici, eau pure et brume simple servent de modèle.
Chaleur : vipères à fossettes
Vipères à fossettes, pythons et boas détectent l’infrarouge des corps chauds par des fossettes faciales. Bullock et Cowles ont enregistré leurs nerfs en 1952 et montré leur réponse à une chaleur proche. En 2010, Gracheva et ses collègues ont identifié la molécule : les fibres nerveuses portent des canaux TRPA1 qui s’ouvrent en chauffant. L’infrarouge réchauffe la membrane, les canaux signalent le changement. C’est un sens thermique, pas une troisième sorte d’œil. Le modèle peint les surfaces chaudes en fausses couleurs sur une vue sombre : thé lumineux, pierre solaire plus faible, ciel ouvert froid.
Le laboratoire des yeux
La cinquième scène pose les yeux eux-mêmes sur une table. L’œil humain coupé montre cornée et cristallin concentrant la lumière en un point rétinien, l’image inversée et la fovéa aux cônes très denses. L’œil composé est un dôme hexagonal, partiellement ouvert pour révéler les longues ommatidies avec lentille et récepteurs propres. Un autre a un tapetum derrière la rétine, un rayon entrant puis ressortant. Cinq iris montrent les pupilles. Le dernier est le pétoncle, qui focalise par miroir courbe plutôt que lentille. Palmer et ses collègues ont montré en 2017 le pavage de cristaux carrés de guanine dirigeant la lumière vers deux rétines, pour le centre et la périphérie. Choisir un animal déplace la caméra vers son type d’œil.
Soixante-neuf animaux et les yeux qu’ils partagent
La version trois fait passer la sélection de 31 à 69 animaux en dix groupes, plus du double. Les nouveaux répondent aux questions fréquentes : ferme et compagnons, zoo, oiseaux de jardin et de côte, reptiles et grenouilles, insectes piqueurs ou pollinisateurs et quelques créatures marines aux yeux particuliers. Chacun n’a été ajouté qu’avec une étude mesurant quelque chose de son œil ; la valeur affichée renvoie à cette étude.
Certains animaux ne sont pas directement mesurés mais partagent clairement le système d’un autre. L’atlas indique « regroupé avec » et cite aussi la justification. Le chimpanzé est regroupé avec l’humain : les pigments des singes de l’Ancien Monde, grands singes et humains ont trois cônes aux pics presque identiques. Le phoque rejoint le grand dauphin : aucun cône bleu détecté par anticorps chez cinq espèces de phoques et otaries ni sept cétacés à dents, contrairement aux parents terrestres. Pythons et boas rejoignent les vipères, car le même canal thermique existe dans les nerfs des trois groupes. La girafe utilise les deux cônes bovins, comme la plupart des ongulés testés ; ses 25 à 27 cycles par degré viennent cependant de sa propre rétine. Un regroupement conserve toujours les courbes du représentant sans les modifier, et l’affichage le précise.
Les races suscitent souvent des questions. Les deux cônes du chien viennent d’études générales ; aucune source ici ne compare le chromatisme entre races. La distribution des cellules denses varie. McGreevy et ses collègues ont trouvé une bande ganglionnaire horizontale comme chez le loup chez les chiens à long museau ; le carlin possède une zone centrale. Lévrier et carlin voient probablement les mêmes couleurs mais scrutent autrement. Aucune comparaison de races de chats ne figure dans ces sources.
Les éléphants offrent un cas précis. Des pigments produits à partir de gènes africains et asiatiques culminent à 419 et 552 nm, comme chez les humains deutéranopes, une forme de daltonisme rouge-vert. Cochons (439 et 556 nm), cochons d’Inde (429 et 529 nm) et lapins (425 et 523 nm) sont aussi dichromates, avec des pics un peu différents. Les singes de l’Ancien Monde sont vers 430, 535 et 565 nm, presque comme nous.
Les oiseaux apportent quatre cônes et des gouttelettes colorées. L’étourneau sansonnet a des cônes simples à 563, 504, 449 et environ 362 nm, le dernier UV. Le colvert est vers 420, 452, 502 et 570 nm. Les pigments du paon à 424, 458, 505 et 567 nm donnent après filtrage des gouttelettes des pics de sensibilité à 432, 477, 537 et 605 nm. La tortue à tempes rouges combine quatre pigments et gouttelettes en sept cônes. Les manchots ont suivi l’autre voie, gardant trois cônes à 403, 450 et 543 nm pour l’eau bleu-vert.
Voir à la hauteur d’un animal
« Hauteur des yeux » place la caméra aux yeux de l’animal et permet de regarder autour. La souris voit depuis 3 cm, sous les pointes de l’herbe : la pelouse devient forêt de brins et les pommes restent cachées jusqu’à se tourner vers elles. Le chien regarde à 50 cm, l’humain à 1,6 m et la girafe à 5 m au-dessus du jardin. Les pollinisateurs commencent près des fleurs jaunes basses, l’abeille à 12 cm.
Ces hauteurs sont des valeurs de modèle typiques d’un adulte debout ou perché, pas des mesures publiées. Les animaux aquatiques n’en ont pas, car cette vue ne fonctionne qu’au jardin et en forêt. À 3 cm, tout ce qui touche au sol est grand et proche, le ciel remplit la moitié supérieure et un objet à un mètre peut disparaître derrière un brin. À 5 m, le jardin est une petite parcelle de fleurs ponctuelles ; les 25 à 27 cycles par degré de la girafe comptent davantage que ses couleurs.
Compter les facettes
Un œil composé échantillonne par de nombreuses facettes, chacune orientée différemment. L’angle entre voisines limite les motifs résolus. Le modèle dessine un nid d’abeilles de cet espacement, chaque hexagone moyennant sa zone. Une ouvrière a en moyenne 5432 facettes par œil, comptées par Seidl et Kaiser en 1981 ; les deux yeux voient presque toute une sphère. Répartir 5432 hexagones sur environ une demi-sphère donne un espacement moyen proche de 2 degrés. Devant, pour regarder les fleurs, ils sont plus serrés, vers 0,93 degré. La lecture donne cet angle et combien de facettes occupent la largeur actuelle.
Le moustique montre combien un œil peut être grossier. Les femelles Aedes aegypti espacent leurs facettes de 6,2 degrés et résolvent au mieux environ 12,3 degrés, presque votre main à bout de bras. Une étude ultérieure des abeilles a trouvé des récepteurs frontaux isolés répondant à 0,6 sur 0,6 degré, plus fin que l’angle des facettes ne le suggère. Les hexagones sont une borne basse de détection, pas l’image de tout ce qu’une abeille remarque.
Tous les yeux composés ne travaillent pas facette par facette. Certaines crevettes et certains homards marins ont des tubes carrés garnis de miroirs, réfléchissant la lumière de nombreuses facettes sur un point pour une image lumineuse commune. Land a décrit ces yeux à superposition réfléchissante en 1976. L’affichage ne reproduit pas cette différence : le homard reçoit le même pavage avec espacement de modèle.
Le grain dans le noir
La lumière arrive en photons. Dans la pénombre chaque récepteur en capte peu durant une image ; leur nombre varie aléatoirement d’environ sa racine carrée. Pour 100 photons, variation de 10, soit 10% du signal ; pour 4, variation de 2, soit 50%. Ce bruit photonique donne du grain au clair de lune. Les vues nocturnes suivent la règle : il croît avec la racine carrée de la luminosité locale et diminue quand lumière ou gain augmentent. Le chat avec un gain de 5,5 par rapport à l’humain reçoit moins de grain sous le même éclairage. L’échelle du grain est un modèle, pas la règle de racine carrée.
Les animaux froids ont un autre avantage. Des bâtonnets répondent parfois sans lumière, déclenchés par la chaleur. Ce bruit d’obscurité fixe une limite au plus faible signal détectable. Aho et ses collègues ont comparé des espèces à diverses températures et trouvé moins de bruit rétinien et une meilleure sensibilité absolue au froid, utiles aux crapauds et grenouilles. Ces dernières vont plus loin : avec deux types de bâtonnets, elles distinguaient bleu et vert au plus faible niveau visible en sautant vers la lumière dans une étude de 2017.
Des yeux qui forment à peine une image
Certains yeux font autre chose qu’une image nette. Le nautile a un œil à sténopé sans lentille ouvert sur la mer, avec un angle minimal séparable de 5,5 à 11,25 degrés. Le chiton a des centaines d’yeux dans ses plaques, aux lentilles d’aragonite, résolvant environ 9 à 12 degrés dans l’air et l’eau. La cuboméduse a des lentilles presque parfaites mais une rétine hors foyer, chaque récepteur voyant une large tache floue. L’étoile de mer a un œil composé sans lentilles à chaque bras, lent et achromate mais suffisant pour rejoindre le récif. À l’autre extrême, un globe de calmar géant de 27 cm avec pupille de 9 cm est le plus grand œil animal. Les yeux postérieurs d’araignée à filet ont une ouverture de 0,58 et captent environ 2000 fois plus de lumière par récepteur que ceux d’une salticide.
Une brève histoire des mesures oculaires
Durant l’essentiel du 20e siècle, on déduisait la vision du comportement : entraîner l’animal à choisir une carte récompensée et voir ses confusions. Ces expériences lentes répondent pourtant à la question décisive de l’information réellement utilisable. Beaucoup de valeurs viennent encore de là : acuité du cheval en 1992, couleurs stellaires du sphinx en 2002, tests des crevettes-mantes en 2014.
La physiologie a ouvert une autre voie. En 1952, Bullock et Cowles ont posé des électrodes sur les nerfs d’une fossette et vu leur réponse à un objet chaud. La microspectrophotométrie fait traverser un récepteur par un minuscule faisceau pour mesurer son pigment : cônes humains en 1980, oiseaux en 1997, requins en 2011. Les électrorétinogrammes à la surface de l’œil ont donné les courbes des chevaux, bovins et cerfs sans dissection.
La génétique est la voie récente. Compter les gènes d’opsine indique combien de pigments pourraient être fabriqués ; les libellules en ont 15 à 33. Mais un compte génétique n’est pas un sens chromatique. Les crevettes-mantes rappellent que le comportement a le dernier mot : beaucoup de récepteurs ne suffisent pas à bien distinguer les couleurs.
Essayer soi-même
Sous les commandes, douze tâches invitent à utiliser la scène comme un chercheur. « Démarrer » prépare la scène ; changez animal, lumière ou distance jusqu’à la coche. Cherchez le motif floral réservé aux yeux UV, un animal confondant balles rouge et verte, la couleur sous les étoiles, la vision arrière, le scintillement d’un écran de 60 Hz, la distance où seul l’aigle reconnaît le lapin, la profondeur où le poisson devient gris, l’effet d’une pupille horizontale et le téléobjectif nécessaire au flou du chien. Trois nouvelles tâches utilisent la hauteur : guide nectarifère de potentille à hauteur d’abeille, pommes vues de souris à 3 cm et trois animaux voyant derrière eux. Ensuite viennent 102 études ; « Afficher » règle la scène de chacune.
Comment les vues sont calculées
Tout se passe en deux passes sur votre puce graphique. La scène est d’abord dessinée hors écran en couleur linéaire. Une seconde image plus petite enregistre pour chaque surface sa réflectance UV, température, polarisation et distance. Un programme d’ombrage plein écran transforme ensuite les deux images en vue animale.
La couleur suit Machado et ses collègues (2009), étendu aux autres animaux. L’écran combine trois primaires étroites ; chaque pixel a donc un spectre connu. Multiplié par chaque courbe, il donne les captures des récepteurs, normalisées pour un blanc à UV moyen valant 1 dans chacun. Le modèle cherche ensuite une couleur d’écran donnant un résultat similaire pour vous. Avec deux récepteurs, une solution exacte existe : la couleur du plan entre blanc et bleu produisant les mêmes captures, si bien que les confusions deviennent identiques. Pour trois récepteurs dont UV, le court devient bleu, le moyen vert, le long rouge, fausses couleurs usuelles des abeilles. Quatre ne peuvent être montrés sur trois couleurs ; vos couleurs restent, avec UV en violet s’il existe. Un récepteur donne du gris.
La netteté est un flou de rayon égal aux pixels par degré divisés par deux fois les cycles de l’animal. Les yeux composés sont des hexagones espacés comme les facettes et moyennant chaque zone. Dans la pénombre, la luminosité baisse logarithmiquement selon le gain, la couleur disparaît sous le seuil et le bruit photonique augmente (voir « Le grain dans le noir »). Sous l’eau, chaque couleur est multipliée par la transmission de son trajet. Le panorama rend la scène dans une carte cubique puis la déroule autour de vous.
Comment le jardin est dessiné
Cette version reconstruit des formes naturelles plutôt que des triangles plats. Chaque brin est une bande étroite courbe ; des milliers sont dessinés ensemble et un petit programme graphique les plie au vent sans que le processeur les déplace séparément. Pétales et feuilles sont des surfaces courbes. Le motif de potentille n’alimente que l’UV : les centres sombres apparaissent aux abeilles, jamais à vous. Les pierres sont des sphères déformées par du bruit fractal et gardées lisses. Pommes, balles, plat et tasse utilisent des formes très subdivisées avec une couche claire semblable à de l’émail. Chaque scène reçoit son ciel par carte d’environnement préfiltrée, avec des ombres douces. Sur appareil rapide, une passe assombrit les plis au contact du sol, l’occlusion ambiante. Les appareils lents omettent ces passes et conservent les mêmes vues.
Ce sont des images pour comparer les yeux, pas des photos. L’herbe n’a pas de graines, le cerf pas de poils, et les fleurs réelles varient plus que trois massifs. Les motifs UV suivent les publications citées, pas des mesures sur ces fleurs.
Ce que le modèle laisse de côté
L’écran émet trois couleurs choisies pour les cônes humains. Aucune vue ne montre l’expérience subjective d’un animal : elle traduit ses captures en couleurs pour vous. Les valeurs « modèle » sont des choix : pics sans mesures de pigments dans ces sources, gains du gecko et du sphinx, force du flou pupillaire, tailles de facettes de plusieurs insectes et hauteurs. Les bâtonnets ont leur sensibilité vers 500 nm, décalant les nuits vers le bleu-vert ; ici, seule la couleur s’efface. Le cerveau compte autant que l’œil : des animaux aux mêmes cônes peuvent apprendre à lire différemment. Individus et races varient aussi ; les chiffres sont des valeurs typiques d’études isolées.
Votre photo et caméra
« Ma photo » charge une image de l’appareil, « Caméra » ouvre la caméra, seulement à votre demande. Votre puce graphique traite l’image sur cette page sans téléversement ni stockage. Une photo ne contient que les trois couleurs du capteur, ni UV, chaleur ou polarisation ; ces canaux restent vides et l’affichage le dit.
Questions
Les chiens sont-ils daltoniens ?
Pas totalement. Deux cônes vers 429 et 555 nm leur permettent de voir bleus et jaunes, mais ils confondent rouges, oranges et verts. Cela ressemble à une daltonisme rouge-vert humaine, pas à un monde gris.
Quelle couleur de jouet un chien voit-il le mieux sur l’herbe ?
Bleu. Les balles rouge et verte diffèrent d’environ 5 unités chromatiques pour lui ; la bleue est à environ 100 de l’herbe.
Les chats voient-ils dans le noir ?
Aucun œil ne voit dans le noir total. Ils détectent environ 5,5 fois moins de lumière que nous, surtout par leurs pupilles et optique, au prix de détails diurnes flous et d’une couleur faible.
Quel animal voit le mieux la nuit ?
Cela dépend du critère. Pour la couleur, le grand sphinx de la vigne choisissait à 0,0001 cd/m², faible lumière stellaire. Pour la luminosité, chouettes et chats captent plus que nous. Beaucoup ont aussi un tapetum pour un second passage.
Quel animal a les yeux les plus fins ?
Ici l’aigle d’Australie, avec 132 à 143 cycles par degré. Les salticides atteignent environ 12,5 grâce à leurs téléobjectifs, bien mieux que les insectes de même taille.
Pourquoi le chien paraît-il aussi net que moi ?
En vue normale, l’écran limite. Un degré couvre seulement 8 à 20 pixels, assez pour 4 à 10 cycles ; humain (environ 60) et chien (environ 12) voient plus fin. Montez « Téléobjectif » à ×4 ou ×8 : assez de pixels font flouter le côté chien, pas le vôtre.
Un animal peut-il voir derrière lui ?
Le cheval couvre environ 350 degrés, sauf un mince ruban derrière et une petite zone devant le front. Colverts et bécasses atteignent 360 degrés. Comparez au panorama les 180 degrés humains.
Pourquoi les écrans scintillent-ils pour certains animaux ?
Écrans et lampes changent souvent de luminosité 60 ou 100 fois par seconde. Au-delà de la fusion humaine, ils semblent stables. Chiens, nombreux oiseaux et la plupart des insectes volants fusionnent plus haut et voient le scintillement.
L’UV de ces vues est-il réel ?
Les surfaces reçoivent des valeurs UV suivant des motifs connus comme l’anneau des rudbeckias, représentées en fausses couleurs. L’écran ne produit pas d’UV : ce sont des substituts.
Les crevettes-mantes voient-elles le plus de couleurs ?
Elles ont le plus de récepteurs, 12, mais distinguent moins finement que papillons et humains dans les tests. Elles semblent reconnaître le récepteur actif plutôt que comparer.
Les requins sont-ils achromates ?
Probablement. Les 17 espèces mesurées avaient un seul cône. Elles voient encore très bien contraste, mouvement et luminosité.
Pourquoi les yeux brillent-ils dans une lampe de poche ?
Le tapetum lucidum est un miroir derrière la rétine qui renvoie la lumière à travers les récepteurs. Celle qui ressort produit le reflet.
Pourquoi les chèvres ont-elles des pupilles rectangulaires ?
La barre horizontale donne une vue large et nette du sol d’où viennent les prédateurs. Les yeux tournent quand la tête baisse et gardent la pupille horizontale en broutant.
Les serpents voient-ils la chaleur avec leurs yeux ?
Non. Vipères à fossettes, pythons et boas détectent l’IR avec des fossettes séparées. La chaleur ouvre des canaux TRPA1 dans leurs nerfs. Les yeux travaillent à côté.
Pourquoi tout devient-il bleu sous l’eau ?
L’eau absorbe bien plus le rouge que le bleu : environ 37 fois plus à 650 nm qu’à 450 nm. Quelques mètres suffisent à retirer l’essentiel du rouge.
Les races de chiens voient-elles des couleurs différentes ?
Aucune source ne compare les races ; les deux cônes ont été mesurés chez des chiens en général. La distribution ganglionnaire diffère : museau long avec bande horizontale comme le loup, court avec zone centrale.
Comment une souris voit-elle le jardin ?
À 3 cm, l’herbe domine l’œil et cache les pommes. Avec environ 0,5 cycle par degré, tout est flou. Les cônes captent UV et vert ; les pommes rouges sont sombres. Choisissez souris et Hauteur des yeux.
Combien de lentilles possède un œil d’abeille ?
Une ouvrière a en moyenne 5432 facettes par œil, chacune avec lentille. Devant, elles sont espacées d’environ 0,93 degré.
Pourquoi la vue nocturne est-elle granuleuse ?
Chaque récepteur capte peu de photons, dont le nombre varie aléatoirement d’environ sa racine carrée. Le grain suit cette règle : plus fort au sombre, plus faible pour les yeux sensibles.
Quel animal a les plus grands yeux ?
Les calmars géants et colossaux (Architeuthis et Mesonychoteuthis). Un globe de calmar géant mesurait environ 27 cm, sa pupille 9 cm.
Les éléphants voient-ils les couleurs ?
Oui, ils sont dichromates. Leurs pigments culminent à 419 et 552 nm, comme chez les humains deutéranopes.
Vocabulaire
- Cône : récepteur rétinien diurne. Comparer les types produit la couleur.
- Bâtonnet : récepteur pour la pénombre, sans distinction des couleurs.
- Dichromate, trichromate, tétrachromate : œil comparant deux, trois ou quatre récepteurs.
- Longueur d’onde du pic (λmax) : longueur d’onde de réponse maximale d’un récepteur, en nanomètres.
- Cycles par degré (cpd) : paires claires et sombres résolues dans un degré visuel.
- Fusion critique du scintillement (CFF) : fréquence où les éclats deviennent une lumière stable.
- Tapetum lucidum : couche réfléchissante derrière la rétine de nombreux animaux nocturnes.
- Ommatidie : unité d’un œil composé, avec lentille et récepteurs propres.
- Fossette : organe facial thermique des vipères à fossettes, pythons et boas.
- cd/m² : candela par mètre carré, mesure de la luminosité apparente d’une surface ; le jour atteint des milliers, les étoiles environ 0,0001.
- Polarisation : orientation de vibration des ondes lumineuses. Eau et écailles brillantes renvoient souvent de la lumière polarisée.
- Hauteur des yeux : hauteur de caméra au-dessus du sol pour chaque animal dans cette vue, un modèle.
- Œil à superposition : œil composé réunissant par lentilles ou miroirs la lumière de nombreuses facettes dans une image.
- Bruit photonique : variation aléatoire des photons captés, environ la racine carrée de leur nombre.
Sources
Toutes les adresses ont été vérifiées le 18 octobre 2026 ; les sources ajoutées dans la version trois le 19 octobre 2026.
- Bowmaker, J. K. & Dartnall, H. J. A. (1980) Visual pigments of rods and cones in a human retina, Journal of Physiology 298: 501-511. https://doi.org/10.1113/jphysiol.1980.sp013097
- Govardovskii, V. I. et al. (2000) In search of the visual pigment template, Visual Neuroscience 17: 509-528. https://doi.org/10.1017/S0952523800174036
- Machado, G. M., Oliveira, M. M. & Fernandes, L. A. F. (2009) A physiologically-based model for simulation of color vision deficiency, IEEE Transactions on Visualization and Computer Graphics 15: 1291-1298. https://doi.org/10.1109/TVCG.2009.113
- Campbell, F. W. & Green, D. G. (1965) Optical and retinal factors affecting visual resolution, Journal of Physiology 181: 576-593. https://doi.org/10.1113/jphysiol.1965.sp007784
- Spector, R. H. (1990) Visual Fields, in Clinical Methods, 3rd edition, NCBI Bookshelf NBK220. https://www.ncbi.nlm.nih.gov/books/NBK220/
- Neitz, J., Geist, T. & Jacobs, G. H. (1989) Color vision in the dog, Visual Neuroscience 3: 119-125. https://doi.org/10.1017/S0952523800004430
- Odom, J. V., Bromberg, N. M. & Dawson, W. W. (1983) Canine visual acuity: retinal and cortical field potentials evoked by pattern stimulation, American Journal of Physiology 245: R637-R641. https://doi.org/10.1152/ajpregu.1983.245.5.R637
- Miller, P. E. & Murphy, C. J. (1995) Vision in dogs, Journal of the American Veterinary Medical Association 207: 1623-1634. https://doi.org/10.2460/javma.1995.207.12.1623
- Miller, P. E., Vision in Animals: What do Dogs and Cats See?, Veterinary Information Network. https://www.vin.com/apputil/content/defaultadv1.aspx?catId=29216&id=3844144
- Daw, N. W. & Pearlman, A. L. (1969) Cat colour vision: one cone process or several?, Journal of Physiology 201: 745-764. https://doi.org/10.1113/jphysiol.1969.sp008785
- Zrenner, E. & Gouras, P. (1979) Blue-sensitive cones of the cat produce a rodlike electroretinogram, Investigative Ophthalmology and Visual Science 18: 1076-1081, PubMed 478777. https://pubmed.ncbi.nlm.nih.gov/478777/
- Kang, I. et al. (2009) Contrast sensitivity of cats and humans in scotopic and mesopic conditions, Journal of Neurophysiology 102: 831-840. https://doi.org/10.1152/jn.90641.2008
- Carroll, J. et al. (2001) Photopigment basis for dichromatic color vision in the horse, Journal of Vision 1: 80-87. https://doi.org/10.1167/1.2.2
- Timney, B. & Keil, K. (1992) Visual acuity in the horse, Vision Research 32: 2289-2293. https://doi.org/10.1016/0042-6989(92)90092-W
- Harman, A. M. et al. (1999) Horse vision and an explanation for the visual behaviour originally explained by the ramp retina, Equine Veterinary Journal 31: 384-390. https://doi.org/10.1111/j.2042-3306.1999.tb03837.x
- UC Davis School of Veterinary Medicine, Center for Equine Health, Equine vision and performance. https://cehhorsereport.vetmed.ucdavis.edu/news/equine-vision-and-performance
- Jacobs, G. H., Deegan, J. F. & Neitz, J. (1998) Photopigment basis for dichromatic color vision in cows, goats, and sheep, Visual Neuroscience 15: 581-584. https://doi.org/10.1017/S0952523898153154
- Jacobs, G. H. et al. (1994) Electrophysiological measurements of spectral mechanisms in the retinas of two cervids, Journal of Comparative Physiology A 174: 551-557. https://doi.org/10.1007/BF00217375
- D'Angelo, G. J. et al. (2008) Visual specialization of an herbivore prey species, the white-tailed deer, Canadian Journal of Zoology 86: 735-743. https://doi.org/10.1139/Z08-050
- Banks, M. S. et al. (2015) Why do animal eyes have pupils of different shapes?, Science Advances 1: e1500391. https://doi.org/10.1126/sciadv.1500391
- Jacobs, G. H., Neitz, J. & Deegan, J. F. (1991) Retinal receptors in rodents maximally sensitive to ultraviolet light, Nature 353: 655-656. https://doi.org/10.1038/353655a0
- Wang, Y. V., Weick, M. & Demb, J. B. (2011) Spectral and temporal sensitivity of cone-mediated responses in mouse retinal ganglion cells, Journal of Neuroscience 31: 7670-7681. https://doi.org/10.1523/JNEUROSCI.0629-11.2011
- Prusky, G. T., West, P. W. & Douglas, R. M. (2000) Behavioral assessment of visual acuity in mice and rats, Vision Research 40: 2201-2209. https://doi.org/10.1016/S0042-6989(00)00081-X
- Jacobs, G. H., Fenwick, J. A. & Williams, G. A. (2001) Cone-based vision of rats for ultraviolet and visible lights, Journal of Experimental Biology 204: 2439-2446. https://doi.org/10.1242/jeb.204.14.2439
- Winter, Y., López, J. & von Helversen, O. (2003) Ultraviolet vision in a bat, Nature 425: 612-614. https://doi.org/10.1038/nature01971
- Peitsch, D. et al. (1992) The spectral input systems of hymenopteran insects and their receptor-based colour vision, Journal of Comparative Physiology A 170: 23-40. https://doi.org/10.1007/BF00190398
- Ryan, L. A. et al. (2020) The buzz around spatial resolving power and contrast sensitivity in the honeybee, Apis mellifera, Vision Research 169: 25-32. https://doi.org/10.1016/j.visres.2020.02.005
- Horth, L., Campbell, L. & Bray, R. (2014) Wild bees preferentially visit Rudbeckia flower heads with exaggerated ultraviolet absorbing floral guides, Biology Open 3, PubMed Central. https://pmc.ncbi.nlm.nih.gov/articles/PMC4001241/
- Koshitaka, H. et al. (2008) Tetrachromacy in a butterfly that has eight varieties of spectral receptors, Proceedings of the Royal Society B 275: 947-954. https://doi.org/10.1098/rspb.2007.1614
- Arikawa, K. (2003) Spectral organization of the eye of a butterfly, Papilio, Journal of Comparative Physiology A 189: 791-800. https://doi.org/10.1007/s00359-003-0454-7
- Kelber, A., Balkenius, A. & Warrant, E. J. (2002) Scotopic colour vision in nocturnal hawkmoths, Nature 419: 922-925. https://doi.org/10.1038/nature01065
- Johnsen, S. et al. (2006) Crepuscular and nocturnal illumination and its effects on color perception by the nocturnal hawkmoth Deilephila elpenor, Journal of Experimental Biology 209: 789-800. https://doi.org/10.1242/jeb.02053
- Thoen, H. H. et al. (2014) A different form of color vision in mantis shrimp, Science 343: 411-413. https://doi.org/10.1126/science.1245824
- Chiou, T.-H. et al. (2008) Circular polarization vision in a stomatopod crustacean, Current Biology 18: 429-434. https://doi.org/10.1016/j.cub.2008.02.066
- Reymond, L. (1985) Spatial visual acuity of the eagle Aquila audax, Vision Research 25: 1477-1491. https://doi.org/10.1016/0042-6989(85)90226-3
- Lind, O. et al. (2013) Ultraviolet sensitivity and colour vision in raptor foraging, Journal of Experimental Biology 216: 1819-1826. https://doi.org/10.1242/jeb.082834
- Martin, G. R. (1984) The visual fields of the tawny owl, Strix aluco L., Vision Research 24: 1739-1751. https://doi.org/10.1016/0042-6989(84)90005-1
- Martin, G. R. & Gordon, I. E. (1974) Visual acuity in the tawny owl (Strix aluco), Vision Research 14: 1393-1397. https://doi.org/10.1016/0042-6989(74)90014-5
- Orlowski, J. et al. (2012) Night vision in barn owls: visual acuity and contrast sensitivity under dark adaptation, Journal of Vision 12(13): 4. https://doi.org/10.1167/12.13.4
- Bowmaker, J. K. et al. (1997) Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds, Vision Research 37: 2183-2194. https://doi.org/10.1016/S0042-6989(97)00026-6
- Palacios, A. G. et al. (1998) Spectral sensitivity of cones in the goldfish, Carassius auratus, Vision Research 38: 2135-2146. https://doi.org/10.1016/S0042-6989(97)00411-2
- Bowmaker, J. K., Thorpe, A. & Douglas, R. H. (1991) Ultraviolet-sensitive cones in the goldfish, Vision Research 31: 349-352. https://doi.org/10.1016/0042-6989(91)90087-L
- Hart, N. S. et al. (2011) Microspectrophotometric evidence for cone monochromacy in sharks, Naturwissenschaften 98: 193-201. https://doi.org/10.1007/s00114-010-0758-8
- Hanke, F. D. & Kelber, A. (2020) The eye of the common octopus (Octopus vulgaris), Frontiers in Physiology 10: 1637. https://doi.org/10.3389/fphys.2019.01637
- Marshall, N. J. & Messenger, J. B. (1996) Colour-blind camouflage, Nature 382: 408-409. https://doi.org/10.1038/382408b0
- Kelman, E. J., Osorio, D. & Baddeley, R. J. (2008) A review of cuttlefish camouflage and object recognition and evidence for depth perception, Journal of Experimental Biology 211: 1757-1763. https://doi.org/10.1242/jeb.015149
- Mäthger, L. M. et al. (2013) The W-shaped pupil in cuttlefish (Sepia officinalis): functions for improving horizontal vision, Vision Research 83: 19-24. https://doi.org/10.1016/j.visres.2013.02.016
- Gracheva, E. O. et al. (2010) Molecular basis of infrared detection by snakes, Nature 464: 1006-1011. https://doi.org/10.1038/nature08943
- Bullock, T. H. & Cowles, R. B. (1952) Physiology of an infrared receptor: the facial pit of pit vipers, Science 115: 541-543. https://doi.org/10.1126/science.115.2994.541-b
- Roth, L. S. V. & Kelber, A. (2004) Nocturnal colour vision in geckos, Proceedings of the Royal Society B 271 (Suppl. 6): S485-S487. https://doi.org/10.1098/rsbl.2004.0227
- Roth, L. S. V. et al. (2009) The pupils and optical systems of gecko eyes, Journal of Vision 9(3): 27. https://doi.org/10.1167/9.3.27
- Ott, M. (2001) Chameleons have independent eye movements but synchronise both eyes during saccadic prey tracking, Experimental Brain Research 139: 173-179. https://doi.org/10.1007/s002210100774
- Land, M. F. (1997) Visual acuity in insects, Annual Review of Entomology 42: 147-177. https://doi.org/10.1146/annurev.ento.42.1.147
- Futahashi, R. et al. (2015) Extraordinary diversity of visual opsin genes in dragonflies, PNAS 112: E1247-E1256. https://doi.org/10.1073/pnas.1424670112
- Williams, D. S. & McIntyre, P. (1980) The principal eyes of a jumping spider have a telephoto component, Nature 288: 578-580. https://doi.org/10.1038/288578a0
- DeVoe, R. D. (1975) Ultraviolet and green receptors in principal eyes of jumping spiders, Journal of General Physiology 66: 193-207. https://doi.org/10.1085/jgp.66.2.193
- Zurek, D. B. et al. (2015) Spectral filtering enables trichromatic vision in colorful jumping spiders, Current Biology 25: R403-R404. https://doi.org/10.1016/j.cub.2015.03.033
- Palmer, B. A. et al. (2017) The image-forming mirror in the eye of the scallop, Science 358: 1172-1175. https://doi.org/10.1126/science.aam9506
- Speiser, D. I. & Johnsen, S. (2008) Scallops visually respond to the size and speed of virtual particles, Journal of Experimental Biology 211: 2066-2070. https://doi.org/10.1242/jeb.017038
- Ollivier, F. J. et al. (2004) Comparative morphology of the tapetum lucidum (among selected species), Veterinary Ophthalmology 7: 11-22. https://doi.org/10.1111/j.1463-5224.2004.00318.x
- Inger, R. et al. (2014) Potential biological and ecological effects of flickering artificial light, PLoS ONE 9: e98631 (Table S1, critical fusion frequencies). https://doi.org/10.1371/journal.pone.0098631
- Pope, R. M. & Fry, E. S. (1997) Absorption spectrum (380-700 nm) of pure water II: integrating cavity measurements, Applied Optics 36: 8710-8723. https://doi.org/10.1364/AO.36.008710
- Neitz, J. & Jacobs, G. H. (1989) Spectral sensitivity of cones in an ungulate, Visual Neuroscience 2: 97-100. https://doi.org/10.1017/S0952523800011949
- Nuboer, J. F. W., van Nuys, W. M. & Wortel, J. F. (1983) Cone systems in the rabbit retina revealed by ERG-null-detection, Journal of Comparative Physiology 151: 347-352. https://doi.org/10.1007/BF00623909
- Jacobs, G. H. & Deegan, J. F. (1994) Spectral sensitivity, photopigments, and color vision in the guinea pig (Cavia porcellus), Behavioral Neuroscience 108: 993-1004. https://doi.org/10.1037/0735-7044.108.5.993
- Coimbra, J. P. et al. (2013) Scene from above: retinal ganglion cell topography and spatial resolving power in the giraffe (Giraffa camelopardalis), Journal of Comparative Neurology 521: 2042-2057. https://doi.org/10.1002/cne.23271
- Yokoyama, S. et al. (2005) Elephants and human color-blind deuteranopes have identical sets of visual pigments, Genetics 170: 335-344. https://doi.org/10.1534/genetics.104.039511
- Fasick, J. I. et al. (1998) The visual pigments of the bottlenose dolphin (Tursiops truncatus), Visual Neuroscience 15: 643-651. https://doi.org/10.1017/S0952523898154056
- Peichl, L., Behrmann, G. & Kröger, R. H. H. (2001) For whales and seals the ocean is not blue: a visual pigment loss in marine mammals, European Journal of Neuroscience 13: 1520-1528. https://doi.org/10.1046/j.0953-816x.2001.01533.x
- Bowmaker, J. K. et al. (1991) Photosensitive and photostable pigments in the retinae of Old World monkeys, Journal of Experimental Biology 156: 1-19. https://doi.org/10.1242/jeb.156.1.1
- Jacobs, G. H. (1996) Primate photopigments and primate color vision, PNAS 93: 577-581. https://doi.org/10.1073/pnas.93.2.577
- Jacobs, G. H. (2009) Evolution of colour vision in mammals, Philosophical Transactions of the Royal Society B 364: 2957-2967. https://doi.org/10.1098/rstb.2009.0039
- Hogg, C. et al. (2011) Arctic reindeer extend their visual range into the ultraviolet, Journal of Experimental Biology 214: 2014-2019. https://doi.org/10.1242/jeb.053553
- Bowmaker, J. K. & Martin, G. R. (1985) Visual pigments and oil droplets in the penguin, Spheniscus humboldti, Journal of Comparative Physiology A 156: 71-77. https://doi.org/10.1007/BF00610668
- Martin, G. R. & Young, S. R. (1984) The eye of the Humboldt penguin, Spheniscus humboldti: visual fields and schematic optics, Proceedings of the Royal Society B 223: 197-222. https://doi.org/10.1098/rspb.1984.0090
- Herrera, G. et al. (2008) Spectral sensitivities of photoreceptors and their role in colour discrimination in the green-backed firecrown hummingbird (Sephanoides sephaniodes), Journal of Comparative Physiology A 194: 785-794. https://doi.org/10.1007/s00359-008-0349-8
- Hart, N. S., Partridge, J. C. & Cuthill, I. C. (1998) Visual pigments, oil droplets and cone photoreceptor distribution in the European starling (Sturnus vulgaris), Journal of Experimental Biology 201: 1433-1446. https://doi.org/10.1242/jeb.201.9.1433
- Hart, N. S. (2002) Vision in the peafowl (Aves: Pavo cristatus), Journal of Experimental Biology 205: 3925-3935. https://doi.org/10.1242/jeb.205.24.3925
- Jane, S. D. & Bowmaker, J. K. (1988) Tetrachromatic colour vision in the duck (Anas platyrhynchos L.): microspectrophotometry of visual pigments and oil droplets, Journal of Comparative Physiology A 162: 225-235. https://doi.org/10.1007/BF00606087
- Martin, G. R. (1986) Total panoramic vision in the mallard duck, Anas platyrhynchos, Vision Research 26: 1303-1305. https://doi.org/10.1016/0042-6989(86)90112-4
- Martin, G. R. (1994) Visual fields in woodcocks Scolopax rusticola (Scolopacidae; Charadriiformes), Journal of Comparative Physiology A 174. https://doi.org/10.1007/BF00192728
- Viitala, J. et al. (1995) Attraction of kestrels to vole scent marks visible in ultraviolet light, Nature 373: 425-427. https://doi.org/10.1038/373425a0
- Loew, E. R. & Govardovskii, V. I. (2001) Photoreceptors and visual pigments in the red-eared turtle, Trachemys scripta elegans, Visual Neuroscience 18: 753-757. https://doi.org/10.1017/S0952523801185081
- Loew, E. R. et al. (2002) Visual pigments and oil droplets in diurnal lizards: a comparative study of Caribbean anoles, Journal of Experimental Biology 205: 927-938. https://doi.org/10.1242/jeb.205.7.927
- Nagloo, N. et al. (2016) Spatial resolving power and spectral sensitivity of the saltwater crocodile, Crocodylus porosus, and the freshwater crocodile, Crocodylus johnstoni, Journal of Experimental Biology 219: 1394-1404. https://doi.org/10.1242/jeb.135673
- Yovanovich, C. A. M. et al. (2017) The dual rod system of amphibians supports colour discrimination at the absolute visual threshold, Philosophical Transactions of the Royal Society B 372: 20160066. https://doi.org/10.1098/rstb.2016.0066
- Aho, A.-C. et al. (1988) Low retinal noise in animals with low body temperature allows high visual sensitivity, Nature 334: 348-350. https://doi.org/10.1038/334348a0
- Allison, W. T. et al. (2004) Visual pigment composition in zebrafish: evidence for a rhodopsin-porphyropsin interchange system, Visual Neuroscience 21: 945-952. https://doi.org/10.1017/S0952523804216145
- Archer, S. N. & Lythgoe, J. N. (1990) The visual pigment basis for cone polymorphism in the guppy, Poecilia reticulata, Vision Research 30: 225-233. https://doi.org/10.1016/0042-6989(90)90038-M
- Muir, L. E., Thorne, M. J. & Kay, B. H. (1992) Aedes aegypti (Diptera: Culicidae) vision: spectral sensitivity and other perceptual parameters of the female eye, Journal of Medical Entomology 29: 278-281. https://doi.org/10.1093/jmedent/29.2.278
- Mote, M. I. & Wehner, R. (1980) Functional characteristics of photoreceptors in the compound eye and ocellus of the desert ant, Cataglyphis bicolor, Journal of Comparative Physiology 137: 63-71. https://doi.org/10.1007/BF00656918
- Salcedo, E. et al. (1999) Blue- and green-absorbing visual pigments of Drosophila: ectopic expression and physiological characterization of the R8 photoreceptor cell-specific Rh5 and Rh6 rhodopsins, Journal of Neuroscience 19: 10716-10726. https://doi.org/10.1523/JNEUROSCI.19-24-10716.1999
- Skorupski, P. & Chittka, L. (2010) Photoreceptor spectral sensitivity in the bumblebee, Bombus impatiens (Hymenoptera: Apidae), PLoS ONE 5: e12049. https://doi.org/10.1371/journal.pone.0012049
- Nityananda, V. et al. (2016) Insect stereopsis demonstrated using a 3D insect cinema, Scientific Reports 6: 18718. https://doi.org/10.1038/srep18718
- Land, M. F. (1976) Superposition images are formed by reflection in the eyes of some oceanic decapod Crustacea, Nature 263: 764-765. https://doi.org/10.1038/263764a0
- Nilsson, D.-E. et al. (2012) A unique advantage for giant eyes in giant squid, Current Biology 22: 683-688. https://doi.org/10.1016/j.cub.2012.02.031
- Muntz, W. R. A. & Raj, U. (1984) On the visual system of Nautilus pompilius, Journal of Experimental Biology 109: 253-263. https://doi.org/10.1242/jeb.109.1.253
- Speiser, D. I., Eernisse, D. J. & Johnsen, S. (2011) A chiton uses aragonite lenses to form images, Current Biology 21: 665-670. https://doi.org/10.1016/j.cub.2011.03.033
- Blest, A. D. & Land, M. F. (1977) The physiological optics of Dinopis subrufus L. Koch: a fish-lens in a spider, Proceedings of the Royal Society B 196: 197-222. https://doi.org/10.1098/rspb.1977.0037
- Nilsson, D.-E. et al. (2005) Advanced optics in a jellyfish eye, Nature 435: 201-205. https://doi.org/10.1038/nature03484
- Garm, A. & Nilsson, D.-E. (2014) Visual navigation in starfish: first evidence for the use of vision and eyes in starfish, Proceedings of the Royal Society B 281: 20133011. https://doi.org/10.1098/rspb.2013.3011
- Seidl, R. & Kaiser, W. (1981) Visual field size, binocular domain and the ommatidial array of the compound eyes in worker honey bees, Journal of Comparative Physiology 143: 17-26. https://doi.org/10.1007/BF00606065
- McGreevy, P., Grassi, T. D. & Harman, A. M. (2004) A strong correlation exists between the distribution of retinal ganglion cells and nose length in the dog, Brain, Behavior and Evolution 63: 13-22. https://doi.org/10.1159/000073756
- Koski, M. H. & Ashman, T.-L. (2015) Floral pigmentation patterns provide an example of Gloger's rule in plants, Nature Plants 1: 14007. https://doi.org/10.1038/nplants.2014.7
- Rigosi, E., Wiederman, S. D. & O'Carroll, D. C. (2017) Visual acuity of the honey bee retina and the limits for feature detection, Scientific Reports 7: 45972. https://doi.org/10.1038/srep45972
Textes et simulations : CC BY-NC-SA 4.0, sauf mention contraire.
D'autres expositions
Photosynthèse : comment fonctionne-t-elle ?
Une feuille en plein soleil extrait le dioxyde de carbone d’un air qui n’en contient qu’environ 426 parties par million et en fabrique du sucre.
Appareils argentiques et instantanés : le fonctionnement
À 1/1000 de seconde, l’obturateur d’un appareil ne découvre jamais toute l’image à la fois : une fente étroite balaie la pellicule.
Vitesse de la lumière : suivez un éclair
La lumière fait 7,5 fois le tour de l’équateur en une seconde, mais cette même lumière met 2,5 millions d’années à atteindre la galaxie d’Andromède.
Lumière et couleur : du prisme aux polariseurs
Un prisme de verre dévie la lumière violette d’environ 1,6 degré de plus que la rouge, et ce petit écart suffit à étaler la lumière blanche en spectre.
Chambre d’Ames et illusions d’optique : pourquoi l’œil se trompe
La case A paraît sombre et la case B claire, pourtant votre écran envoie le même gris à votre œil depuis les deux.
Comment fonctionne la fibre optique : un rayon sous l’océan
La lumière d’un câble sous-marin reste dans un cœur de verre de 8,2 micromètres de large sur des milliers de kilomètres, car elle touche la paroi du cœur sous un angle supérieur à 84,5°.