FIG. 69Comment ça marche
Photosynthèse : comment fonctionne-t-elle ?
Une feuille en plein soleil extrait le dioxyde de carbone d’un air qui n’en contient qu’environ 426 parties par million et en fabrique du sucre.
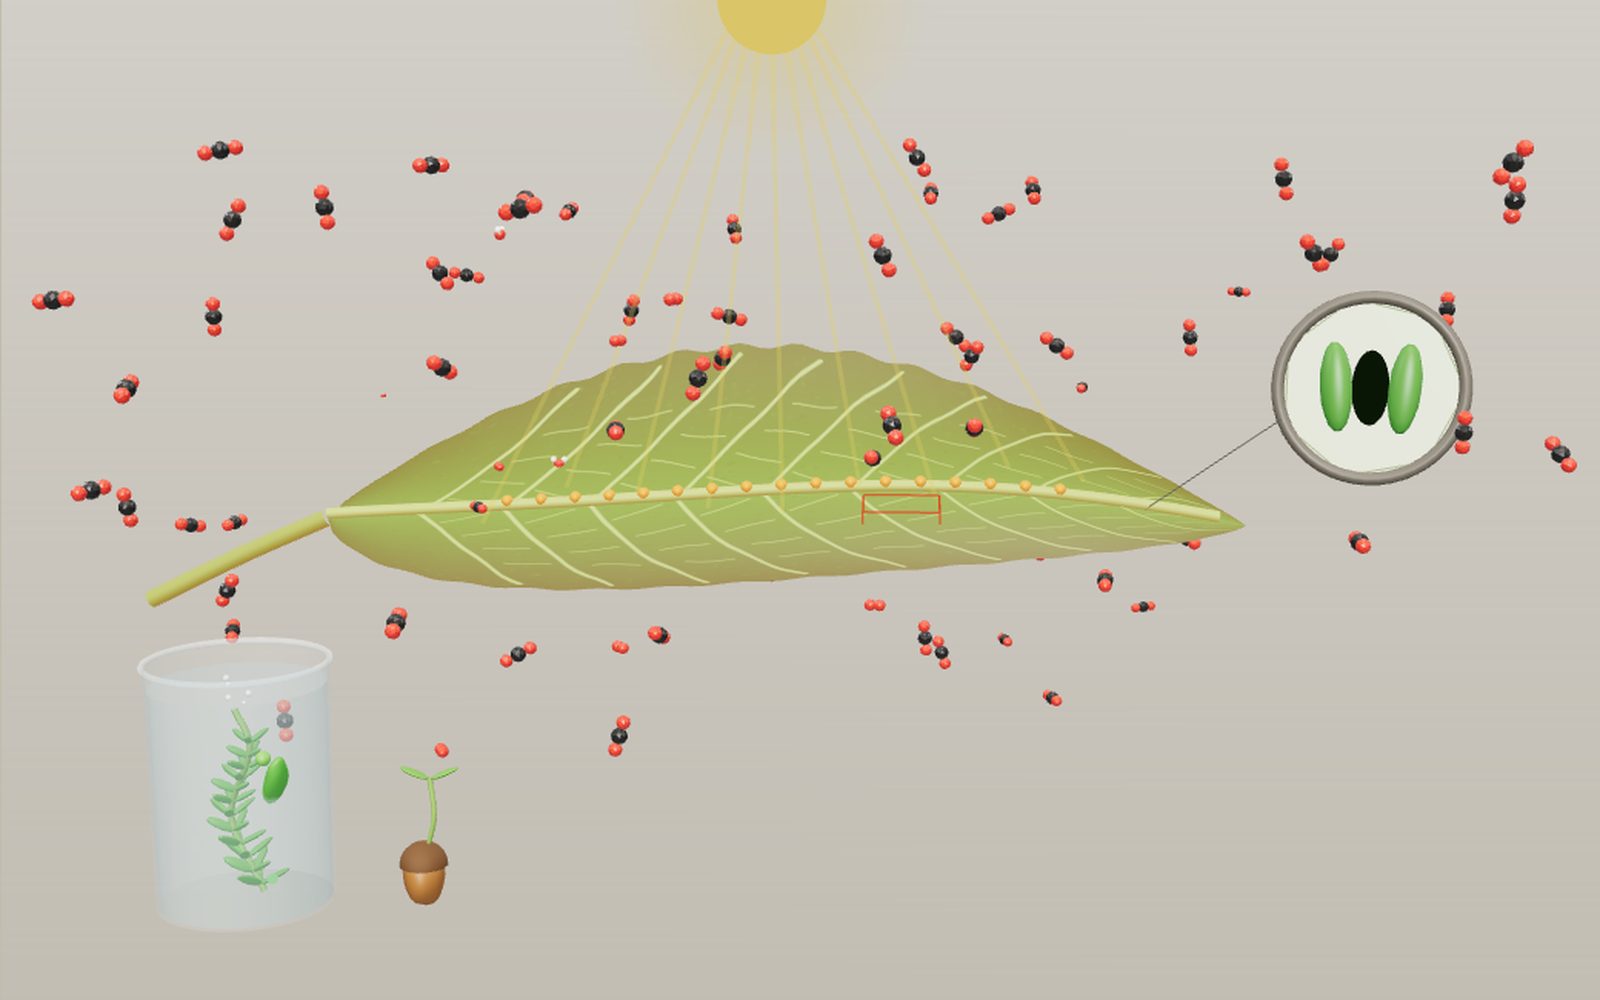
Cet appareil ne peut pas afficher le modèle 3D. Les étapes de la visite ci-dessous se lisent sous forme de texte.
1 / 8 Une feuille au soleilCette feuille est le point de départ. Déplacez le soleil pour incliner la lumière et observez l’air : des molécules de CO₂ entrent, de l’O₂ sort, et la plante aquatique dans le bécher émet des bulles. Le cadre rouge marque le bloc que nous découpons ensuite.
Faites glisser pour tourner. Molette ou pincement pour zoomer.
D’où vient le bois d’un arbre ?
Une graine pèse moins d’un gramme, et le chêne qui en provient peut peser de nombreuses tonnes. La plus grande partie de toute cette masse ne provient pas du sol. Elle vient de l’air, sous forme de dioxyde de carbone, transformé en sucre dans les feuilles vertes grâce à l’énergie de la lumière. Le même processus produit l’oxygène que nous respirons. Le manuel de biologie d’OpenStax en exprime clairement la portée : la photosynthèse alimente 99 pour cent des écosystèmes de la Terre.
La réaction globale tient en une ligne : six molécules de dioxyde de carbone et six d’eau deviennent un sucre et six molécules d’oxygène. Cette ligne cache une longue chaîne d’étapes, à des échelles allant d’une feuille entière à des protéines individuelles de quelques milliardièmes de mètre de largeur. Cette exposition descend le long de cette chaîne. Elle commence par une feuille, en découpe un bloc, ouvre un chloroplaste, puis se place sur une portion de membrane de thylakoïde où la lumière devient de l’énergie chimique. Trois curseurs modifient la lumière, le dioxyde de carbone et la température, et une courbe dans le coin montre comment la vitesse réagit.
Une feuille est conçue pour capter la lumière et laisser entrer l’air
Une feuille a deux tâches qui s’opposent. Elle doit exposer ses cellules vertes à la lumière et laisser l’air atteindre ces cellules, tout en perdant le moins d’eau possible. Ses différentes couches résolvent ce problème.
Le dessus est couvert d’une cuticule cireuse, qui ralentit la perte d’eau, et juste au-dessous se trouve l’épiderme, généralement une seule couche de cellules transparentes. Plus bas se dressent les cellules palissadiques, de hautes colonnes serrées les unes contre les autres. Le chapitre d’OpenStax sur les feuilles les décrit comme des cellules en forme de colonne, étroitement serrées en une à trois couches, qui contiennent la plupart des chloroplastes de la feuille. Dans le modèle, chaque colonne est transparente pour que les chloroplastes à l’intérieur apparaissent comme des billes vert foncé.
Sous la couche palissadique, les cellules changent. Le mésophylle lacuneux est constitué de cellules irrégulières et espacées, séparées par de l’air. Ces espaces aériens sont les poumons de la feuille : le gaz entrant par la face inférieure s’y répartit jusqu’à chaque cellule. Une nervure traverse le milieu du bloc, avec le xylème qui apporte l’eau des racines et le phloème qui emporte le sucre.
Les stomates échangent de l’eau contre du dioxyde de carbone
La face inférieure de la feuille est parsemée de stomates, de petits pores encadrés chacun par deux cellules de garde. Lorsque les cellules de garde se remplissent d’eau et gonflent, elles s’incurvent en s’écartant et le pore s’ouvre. Lorsqu’elles deviennent flasques, il se ferme. Les cellules de garde sont les seules cellules de l’épiderme à posséder des chloroplastes.
L’ouverture d’un pore est un échange qui a un coût. Le dioxyde de carbone ne peut entrer que si le pore est ouvert, mais la vapeur d’eau sort par le même chemin, car l’air à l’intérieur d’une feuille est presque saturé, tandis que l’air extérieur ne l’est généralement pas. Selon OpenStax, jusqu’à 90 pour cent de l’eau qu’une plante absorbe par ses racines peut être perdue ainsi, par transpiration. Les cellules de garde réagissent à la lumière, à l’état hydrique de la feuille et au dioxyde de carbone ; une plante peut donc fermer ses stomates par un après-midi chaud et sec et accepter une photosynthèse réduite en échange de la conservation de son eau.
Dans le modèle, le curseur Stomates ouverts déplace les cellules de garde. Des molécules de CO₂ gris foncé et rouges entrent par les pores, tandis que des molécules d’eau bleues et blanches en sortent. Fermez les pores et les deux flux tombent à zéro. La valeur Perte d’eau augmente avec l’ouverture et avec la température, car l’air chaud peut contenir davantage d’eau et dessèche donc la feuille plus vite.
À l’intérieur d’un chloroplaste
Chaque bille verte dans une cellule palissadique est un chloroplaste. Il possède une double enveloppe autour d’un intérieur aqueux appelé stroma. Dans le stroma flotte un troisième ensemble de membranes, les thylakoïdes, des sacs aplatis qui s’empilent en amas appelés grana et sont reliés par des lamelles simples. L’espace intérieur de chaque sac est le lumen.
Cette organisation partage le travail en deux. La phase lumineuse se déroule dans les membranes des thylakoïdes et produit deux transporteurs d’énergie, l’ATP et le NADPH. Le cycle de Calvin se déroule dans le stroma et les utilise pour fabriquer du sucre à partir de dioxyde de carbone. La dernière échelle de l’exposition montre les deux à la fois : la membrane traverse le milieu, avec le stroma au-dessus et le lumen au-dessous.
Le photosystème II prélève des électrons dans l’eau
La lumière arrive sous forme de photons. La chlorophylle absorbe bien les lumières rouge et bleue et réfléchit le vert, ce qui explique la couleur verte des feuilles. Les plantes utilisent des longueurs d’onde d’environ 400 à 700 nm, que les physiologistes végétaux appellent le rayonnement photosynthétiquement actif.
Les photons sont captés par des complexes antennaires. OpenStax attribue à chaque complexe collecteur de lumière 300 à 400 molécules de chlorophylle, ainsi que des caroténoïdes. L’énergie d’un photon absorbé passe de pigment en pigment jusqu’à atteindre un centre réactionnel, après environ un millionième de seconde. Dans le photosystème II, ce centre est une paire de chlorophylles appelée P680, et l’énergie éjecte l’un de ses électrons vers un accepteur.
P680 a maintenant besoin de récupérer un électron et le prend à l’eau. Du côté du lumen du photosystème II se trouve un agrégat de quatre atomes de manganèse, un atome de calcium et cinq atomes d’oxygène. Umena et ses collègues l’ont cartographié à une résolution de 1,9 Å en 2011 et ont trouvé quatre molécules d’eau qui lui sont liées. Cet agrégat prélève les électrons de l’eau un par un. La scission de deux molécules d’eau fournit quatre électrons, quatre protons et une molécule d’O₂. OpenStax précise qu’environ 10 pour cent de cet oxygène est utilisé par les mitochondries de la feuille elle-même, le reste s’échappant dans l’air.
Dans le modèle, les traits jaunes sont des photons et les billes cyan sont des électrons. Chaque fois que quatre électrons quittent le photosystème II, une molécule d’O₂ s’éloigne de l’agrégat et le compteur d’O₂ augmente d’une unité.
De la plastoquinone au NADPH
L’électron ne reste pas en place. Il est transmis à la plastoquinone (billes jaunes), une petite molécule qui se déplace dans la membrane jusqu’au complexe cytochrome b6f. Lorsque les électrons traversent b6f, celui-ci déplace des protons du stroma vers le lumen. De l’autre côté, la plastocyanine (une protéine bleue contenant du cuivre) prend l’électron et le transporte le long de la surface du lumen vers le photosystème I.
L’électron a alors perdu une grande partie de son énergie ; le photosystème I a donc besoin d’un second photon. Son centre réactionnel, P700, réexcite l’électron et le transmet à la ferrédoxine du côté du stroma. L’enzyme ferrédoxine-NADP⁺ réductase (FNR) place ensuite deux électrons sur le NADP⁺, formant du NADPH. Dans le modèle, une molécule violette de NADPH quitte la FNR tous les deux électrons et se dirige vers le cycle de Calvin.
Le gradient de protons entraîne l’ATP synthase
Deux phénomènes ont rempli le lumen de protons : la scission de l’eau au photosystème II et le pompage par b6f. Le lumen devient acide et le stroma moins acide, et les protons ne peuvent revenir que par une seule porte. Cette porte est l’ATP synthase, la même machine rotative que dans l’exposition ATP synthase, dont la tête se trouve du côté du stroma.
Seelert et ses collègues ont observé la version chloroplastique par microscopie à force atomique en 2000 et ont constaté que son anneau rotor comporte 14 sous-unités. Chaque proton qui le traverse fait avancer l’anneau d’une sous-unité ; 14 protons lui font donc effectuer un tour, et un tour libère 3 ATP depuis la tête. Cela donne 14 ÷ 3 ≈ 4,67 protons par ATP. Les billes rouges du lumen deviennent plus nombreuses lorsque la phase lumineuse accélère, et vous pouvez les voir défiler dans l’anneau.
La Rubisco et le cycle de Calvin
Le stroma contient l’enzyme qui réalise la fixation proprement dite : la ribulose-1,5-bisphosphate carboxylase/oxygénase, généralement abrégée en Rubisco. Elle associe un CO₂ à un sucre à cinq carbones appelé RuBP. Le produit à six carbones se scinde immédiatement en deux molécules de 3-PGA, qui possède trois carbones. OpenStax divise le cycle en fixation, réduction et régénération.
Lors de la réduction, l’ATP et le NADPH transforment le 3-PGA en G3P, un sucre phosphate à trois carbones. Lors de la régénération, la majeure partie du G3P est réarrangée en RuBP pour permettre au cycle de continuer, ce qui coûte davantage d’ATP. Comme un seul carbone est ajouté par tour, trois tours sont nécessaires pour obtenir un G3P excédentaire à exporter. Au cours de ces trois tours, le cycle consomme 9 ATP et 6 NADPH. L’équivalent de six tours produit un glucose.
La boucle du modèle est dessinée dans le sens des aiguilles d’une montre, avec la Rubisco en haut. Les billes changent de couleur en tournant : bleu pour le 3-PGA, orange pour le G3P, vert pour le RuBP. Une molécule de CO₂ arrive à la Rubisco chaque fois qu’une bille passe devant elle, l’ATP et le NADPH arrivent depuis la membrane au-dessous, et chaque troisième fixation envoie un hexagone de sucre vers la droite.
Vérification des nombres
Le bilan de l’exposition s’articule autour d’un nombre, le CO₂ fixé par seconde à l’écran. Tout le reste découle des sources.
- Par CO₂ fixé, le cycle de Calvin utilise 9 ÷ 3 = 3 ATP et 6 ÷ 3 = 2 NADPH.
- Chaque NADPH transporte 2 électrons ; 2 NADPH nécessitent donc 4 électrons. Quatre électrons proviennent de la scission de deux molécules d’eau, qui libère un O₂. Un O₂ sort donc pour chaque CO₂ fixé, comme l’indique l’équation globale.
- Chaque électron traverse les deux photosystèmes, avec un photon à chaque passage. Quatre électrons nécessitent donc 8 photons par O₂ dans ce schéma linéaire simple.
- 3 ATP par CO₂, à raison de 14 protons pour 3 ATP, signifient que 14 protons traversent l’ATP synthase pour chaque CO₂.
Vous pouvez le vérifier avec les compteurs. Après un certain temps, l’ATP produit approche trois fois le CO₂ fixé, le NADPH produit environ deux fois, et l’O₂ sorti environ autant. Ils s’écartent d’une ou deux unités parce que chaque compteur avance à un moment différent de l’animation.
La courbe de vitesse est un modèle, pas une feuille mesurée. La réponse à la lumière est une hyperbole non rectangulaire, une forme classique des manuels. La vitesse brute P résout θP² − (αI + Pc)P + αIPc = 0, où I est la lumière, α = 0,11 est la pente initiale, θ = 0,8 fixe la netteté du coude et Pc est un plafond déterminé par le dioxyde de carbone et la température. Ce plafond augmente avec le CO₂ selon 100 × (C − 50) ÷ (C − 50 + 300), et il est multiplié par une courbe en cloche asymétrique dont le maximum se situe à 25 °C. La respiration, de 3 unités à 25 °C et doublant tous les 10 °C, est soustraite pour donner la vitesse nette. Les vitesses sont en unités du modèle, sur une échelle où 100 représente le plafond.
Une fois calculé, le modèle donne les valeurs suivantes. Avec les valeurs par défaut de 426 ppm et 25 °C, la vitesse nette vaut −3 dans l’obscurité (la feuille ne fait que respirer), 16,8 pour une lumière de 200, et 49,4 à 2000. La courbe atteint 90 pour cent de son plafond pour une lumière d’environ 1274. Augmentez le CO₂ à 1000 ppm et le sommet de la courbe monte à 62,8, tandis que le point à 90 pour cent se déplace vers environ 1636. La meilleure température du modèle est de 24,5 °C. La valeur par défaut de 426 ppm provient des relevés de Mauna Loa de la NOAA, qui donnent une moyenne mensuelle de 426,07 ppm pour septembre 2026.
Pourquoi la lumière, le dioxyde de carbone et la température imposent chacun une limite
La courbe comporte deux parties. Sous faible lumière, elle monte presque en ligne droite : chaque photon supplémentaire est utilisé, et rien d’autre ne manque. Sous forte lumière, elle s’aplatit, car le cycle de Calvin ne peut plus suivre. La Rubisco est lente et a besoin de dioxyde de carbone, et davantage de lumière ne lui en fournira pas davantage. L’affichage indique le facteur qui limite la vitesse.
Voilà pourquoi les curseurs agissent différemment. Augmenter le CO₂ modifie à peine la partie de la courbe sous faible lumière mais relève son sommet ; une feuille dans une serre enrichie en CO₂ en profite donc surtout sous forte lumière. La température modifie principalement les enzymes et comprime ou étire donc tout le haut de la courbe. Fermer les stomates abaisse le CO₂ dans la feuille (affiché comme CO₂ intérieur), ce qui abaisse le plafond même si l’air extérieur ne change pas. La ligne pointillée représente toujours la feuille par défaut, pour la comparaison.
Ce que le modèle laisse de côté
Le modèle privilégie la clarté, sans respecter les échelles entre les niveaux, et les protéines sont des formes lisses plutôt que des structures mesurées. Plusieurs processus réels sont absents.
- La Rubisco réagit aussi avec l’oxygène. Cette réaction secondaire, la photorespiration, gaspille du carbone et s’intensifie lorsque les feuilles se réchauffent. Le modèle ne la suggère qu’à travers la forme de la courbe de température.
- Les plantes pratiquent aussi un flux cyclique d’électrons autour du photosystème I, qui produit davantage d’ATP sans NADPH. Le modèle ne montre que le trajet linéaire ; ses nombres d’ATP et de NADPH correspondent donc exactement au cycle de Calvin.
- Les plantes C4 et les plantes CAM, comme les cactus, concentrent le CO₂ avant qu’il n’atteigne la Rubisco. OpenStax décrit comment les cactus absorbent le CO₂ la nuit et gardent leurs stomates fermés le jour. Leurs courbes sont très différentes.
- Les températures optimales réelles varient entre espèces et évoluent lorsque les plantes s’acclimatent à leur température de croissance, comme le montrent Yamori et ses collègues dans leur synthèse de 2014. Le maximum de 25 °C est ici un nombre rond choisi pour le modèle.
- La perte d’eau est exprimée en unités du modèle, calculées à partir de l’ouverture des stomates et du pouvoir desséchant de l’air à 50 pour cent d’humidité, à l’aide de la formule de la FAO pour la pression de vapeur saturante.
Une brève histoire
Melvin Calvin a reçu le prix Nobel de chimie de 1961 pour ses recherches sur l’assimilation du dioxyde de carbone chez les plantes, les travaux qui ont retracé le parcours du carbone dans le cycle portant désormais son nom. De nombreux manuels l’appellent cycle de Calvin-Benson pour inclure un autre scientifique qui y a travaillé. La théorie chimiosmotique de Peter Mitchell, qui explique comment un gradient de protons entraîne la synthèse d’ATP dans les mitochondries comme dans les chloroplastes, lui a valu le prix Nobel de chimie de 1978. En 1988, Johann Deisenhofer, Robert Huber et Hartmut Michel ont partagé le prix de chimie pour avoir déterminé la structure tridimensionnelle d’un centre réactionnel photosynthétique, la première protéine membranaire résolue atome par atome. La structure de l’agrégat qui scinde l’eau dans le photosystème II a suivi en 2011.
Compter les photons et l’énergie stockée
Le nombre de huit photons décrit un bilan idéal de transfert d’électrons, pas la fraction de lumière solaire qui devient une récolte. Quatre électrons doivent chacun être excités deux fois pour fournir deux NADPH. Diviser un CO₂ fixé par huit photons absorbés donne un rendement quantique limite de 0,125 CO₂ par photon. Si une feuille hypothétique nécessite plutôt dix photons absorbés par CO₂ fixé, ce rendement devient 0,100. Ce sont des exemples de calcul. Le second nombre n’est pas une exigence universelle mesurée : la production supplémentaire d’ATP, la photorespiration et d’autres pertes modifient cette exigence selon les conditions.
Pour un faisceau hypothétique apportant 800 micromoles de photons absorbés par mètre carré et par seconde, le bilan de huit photons autoriserait une fixation de 100 micromoles de CO₂ par mètre carré et par seconde. Avec dix photons, il en autoriserait 80. Aucun de ces résultats ne prédit la Vitesse nette de l’exposition, car son axe vertical est en unités du modèle et comporte un terme de respiration distinct. Le flux de photons et le flux de carbone ont aussi des significations différentes, même si tous deux utilisent des micromoles. Compter les photons ne suffit pas à déterminer le rendement énergétique : les photons bleus transportent davantage d’énergie que les rouges.
La synthèse de Zhu, Long et Ort de 2008 estimait les rendements maximaux de conversion solaire en biomasse à 4,6 % pour les plantes C3 et 6 % pour les plantes C4 à 30 °C et 380 ppm de CO₂. Cette concentration appartient aux hypothèses de cet article, pas à l’air actuel. Ces pourcentages ont pour dénominateur tout le spectre solaire incident. Ils ne doivent pas être comparés directement à un rendement par photon absorbé ni à un rendement calculé à partir de la seule lumière visible. Une grande partie du rayonnement solaire se situe hors de la bande photosynthétiquement active conventionnelle ; la réflexion et les coûts métaboliques réduisent le reste.
Comme exercice de bilan énergétique, supposons une culture interceptant 1000 MJ d’énergie solaire totale sur une surface et une période choisies. Un rendement de conversion supposé de 1 % stocke 10 MJ dans la biomasse ; 2 % en stocke 20 MJ. Ces pourcentages sont des hypothèses illustratives de performance au champ, pas des mesures valables pour chaque culture. Ils ne comprennent ni une promesse automatique de rendement comestible, ni l’affirmation que toute la lumière interceptée atteint une feuille en activité. Les racines et les tiges contiennent elles aussi de l’énergie chimique stockée. Une mesure brève sur une feuille bien éclairée et une récolte couvrant toute une saison répondent à des questions différentes.
Ce qui distingue compensation et saturation
Au point de compensation lumineuse, l’absorption brute de carbone par photosynthèse équilibre exactement la perte respiratoire de carbone : l’échange net est donc nul. En dessous, la plante peut encore réaliser la photosynthèse, mais la respiration l’emporte dans le bilan. À saturation, augmenter la lumière n’apporte que peu d’absorption supplémentaire de carbone. Ce sont des endroits différents de la courbe, pas deux noms pour le premier coude.
Avec le CO₂ de l’air à 426 ppm, la Température de la feuille à 25 °C et les Stomates ouverts à 100 %, le code donne un éclairement de compensation d’environ 27,6 micromoles de photons par mètre carré et par seconde. Cette valeur vient de la résolution de l’équation de vitesse nette de l’exposition pour zéro. C’est un calcul du modèle, pas un seuil publié pour les feuilles de chêne. La commande utilise des éclairements entiers ; 28 est donc un réglage pratique proche du croisement. À lumière nulle, la vitesse nette vaut −3 unités du modèle ; franchir zéro ne signifie pas que la respiration s’est arrêtée.
Le repère 90 % utilise la photosynthèse brute rapportée à son plafond calculé. Il se situe près de 1274 avec ces réglages. La vitesse n’y atteint pas un plateau mathématiquement plat, et la vitesse nette affichée sur le graphique a été diminuée de la respiration. Un autre pourcentage donnerait un autre repère de saturation. Voilà pourquoi une valeur numérique de saturation devrait toujours préciser son critère.
Une feuille acclimatée à l’ombre peut avoir une respiration plus faible et atteindre un gain net de carbone dans des conditions plus sombres. Une feuille de soleil peut soutenir une vitesse maximale plus élevée. L’exposition ne propose pas de paramètres mesurés sur feuilles de soleil et d’ombre. Sa réponse lisse n’inclut pas non plus les dommages dus à un excès de lumière. Dans un couvert réel, les feuilles supérieures peuvent recevoir davantage de lumière qu’elles ne peuvent en traiter, tandis que les feuilles inférieures restent limitées par la lumière. Les recherches sur la taille des antennes étudient si un partage plus uniforme de la lumière pourrait améliorer la production du couvert entier, plutôt qu’uniquement accroître l’absorption au sommet.
Feuilles C3, maïs et cactus
Les noms C3 et C4 désignent le nombre de carbones des premiers produits stables de leurs voies respectives de fixation initiale. Dans une feuille C3, la Rubisco ajoute directement le CO₂ au RuBP, et les produits stables immédiats sont du 3-PGA à trois carbones. Le blé et le riz utilisent cette voie. La Rubisco réagit aussi avec l’oxygène. Cette oxygénation déclenche la photorespiration, une voie de récupération qui consomme de l’énergie et libère une partie du carbone précédemment fixé. Ce n’est pas le même processus que la respiration mitochondriale dans l’obscurité.
Le maïs et la canne à sucre sont des plantes C4. Leur capture initiale utilise la PEP carboxylase dans les cellules du mésophylle et produit des composés à quatre carbones. Ces composés transportent le carbone jusqu’aux cellules de la gaine périvasculaire, où le CO₂ est libéré près de la Rubisco. Le cycle de Calvin fonctionne toujours ; le métabolisme C4 lui fournit une source plus concentrée de CO₂. Entretenir cette pompe coûte davantage d’énergie ; C4 n’est donc pas une amélioration inconditionnelle à toute température ou tout éclairement. Son avantage est particulièrement utile lorsque la chaleur et un faible CO₂ interne favoriseraient autrement la photorespiration.
De nombreux cactus utilisent le CAM. Ils absorbent une grande partie de leur CO₂ extérieur la nuit et stockent temporairement ce carbone dans des acides organiques. Le jour, la dégradation des acides fournit le CO₂, tandis que les stomates peuvent rester plus étroitement fermés. C4 sépare couramment la capture initiale et le cycle de Calvin entre types de cellules ; le CAM sépare une grande partie du travail entre la nuit et le jour. Ces distinctions expliquent pourquoi placer un cactus dans un modèle de feuille C3 diurne ordinaire serait trompeur.
La capacité de carboxylation de la Rubisco n’est donc qu’un aspect du problème. L’apport du substrat compte aussi. Fermer les stomates peut limiter l’absorption du carbone même avec des enzymes intactes, et apporter davantage de CO₂ extérieur ne peut aider que si une quantité suffisante atteint le chloroplaste. La commande Type de feuille propose des feuilles C3 de soleil, C3 d’ombre et C4 de type maïs, toutes trois des courbes du modèle. Le réglage C4 sature sa réponse au CO₂ près de l’air actuel, a un point de compensation proche de zéro et un optimum plus chaud, et commence avec une pente plus faible pour représenter l’ATP supplémentaire de la pompe. Il ne calcule ni l’activité catalytique de la Rubisco, ni l’oxygénation, ni la pompe elle-même. La feuille d’ombre suit la synthèse de Boardman sur les plantes de soleil et d’ombre : moins de capacité et moins de respiration, donc un équilibre sous faible lumière et une saturation précoce. Il n’existe pas de réglage CAM, et aucun des trois ne permet de classer les rendements réels des cultures.
Ce que les feuilles vertes ne vous disent pas
Une apparence verte ne démontre pas que les photons verts ne peuvent pas alimenter la photosynthèse. La chlorophylle isolée absorbe fortement les bandes bleue et rouge, mais une feuille est une structure épaisse et diffusante contenant de nombreux chloroplastes. Une partie de la lumière verte s’échappe ; une autre pénètre plus loin dans le tissu avant d’être absorbée. Le spectre d’absorption d’une solution de pigments et le spectre d’action d’une feuille entière ne sont pas des mesures interchangeables.
L’étude de Liu et van Iersel de 2021 a testé la laitue sous différents spectres lumineux et flux de photons. À faible intensité, la lumière verte avait un rendement quantique de lumière incidente plus faible, car l’absorption était moindre. À forte intensité, son rendement quantique figurait parmi les plus élevés, ce qui est compatible avec une répartition plus uniforme de l’excitation dans la feuille. C’est un résultat conditionnel, pas une recommandation affirmant que les lampes exclusivement vertes améliorent toujours les cultures. La commande Couleur de lumière suit approximativement cette tendance. Elle ne modifie que la pente initiale de la courbe (le vert étant le plus faible, puis le bleu, le blanc et le rouge) ; les couleurs diffèrent donc surtout sous faible lumière et se rejoignent presque sous forte lumière. Ces facteurs sont des valeurs du modèle, et l’exposition ne simule pas l’absorption en fonction de la profondeur.
L’idée fausse sur le sol exige une autre distinction. Le carbone du nouveau bois vient surtout du CO₂ atmosphérique, mais un arbre fraîchement pesé contient aussi beaucoup d’eau. L’eau entre par les racines et les nutriments minéraux du sol restent essentiels, sans être la principale source de carbone organique sec. Un pot perdant peu de terre tandis que sa plante gagne de la masse plaide contre le sol comme source principale ; il ne permet pas, à lui seul, d’identifier toutes les sources de ce gain. Comparer la masse sèche et suivre le carbone sont des tests plus probants que peser uniquement une plante humide.
De même, le symbole du sucre à l’écran est un symbole de bilan, pas l’affirmation qu’un chloroplaste éjecte une molécule de glucose achevée après chaque fixation. Le cycle de Calvin exporte un produit à trois carbones après plusieurs tours, et le métabolisme ultérieur fabrique les sucres et d’autres matières. Des bulles visibles identifieraient un gaz libéré, pas la source de carbone de la tige en croissance.
Bulles d’une plante aquatique et lumière oblique
Les écoles mesurent la photosynthèse avec une plante aquatique. Le protocole Practical Biology de la Royal Society of Biology place un segment coupé d’Elodea ou de Cabomba dans l’eau sous une lampe et compte pendant 1 minute les bulles qui montent de l’extrémité coupée, puis répète le comptage et calcule une moyenne. Il nomme aussi les hypothèses : les bulles sont supposées ne contenir que de l’oxygène, la production d’oxygène est supposée proportionnelle à la vitesse et les bulles sont supposées avoir la même taille. La lumière d’une petite lampe diminue avec le carré de la distance ; éloigner la lampe deux fois plus laisse donc environ un quart de la lumière.
Le bécher de la scène réalise la même expérience dans le modèle. Son nombre de bulles par minute est la vitesse nette du modèle multipliée par un facteur fixe ; il indique donc un sens et une proportion, plutôt qu’un nombre que vous observeriez en classe. La plante aquatique est traitée comme une plante aquatique C3 ; la commande Stomates ouverts ne la modifie donc pas.
Vous pouvez faire glisser le soleil. La lumière oblique se répartit sur davantage de feuille, et la lumière par mètre carré de feuille diminue avec le cosinus de l’angle par rapport à la verticale. À 60 degrés, une feuille reçoit la moitié de ce qu’elle recevrait avec le soleil juste au-dessus. L’affichage montre les deux nombres : Lumière est l’intensité de la source, et Sur la feuille est la valeur utilisée par la courbe de vitesse.
À essayer à l’écran
- Laissez les commandes à leurs valeurs initiales et faites glisser le soleil vers l’horizon. Sur la feuille diminue avec le cosinus de l’angle tandis que Lumière reste identique, les rayons se raréfient et la plante aquatique ralentit. Ses bulles par minute sont des valeurs du modèle.
- Placez Lumière sur 0. La ligne sous le titre indique alors un dégagement de CO₂, les flux de molécules s’inversent et la plante aquatique s’arrête. Augmentez lentement la lumière jusqu’à ce que la Vitesse nette franchisse 0. C’est le point de compensation, environ 28 µmol/m²/s à 426 ppm et 25 °C dans ce modèle.
- Réglez Lumière sur 2000 et comparez le point au repère 90 %. Augmentez ensuite le CO₂ dans l’air à 1000. Le nuage de CO₂ autour de la feuille s’épaissit et le haut de la courbe monte, car le plafond de carbone a changé et pas la lampe.
- Augmentez la Température de la feuille à 40. La perte d’eau augmente, la feuille jaunit et retombe, et la vitesse diminue. Réduisez Stomates ouverts et regardez le stomate agrandi se fermer : la feuille perd moins d’eau et le CO₂ intérieur diminue.
- Passez Type de feuille à C4 et Couleur de lumière au vert. Utilisez ensuite Échelle pour descendre jusqu’à la membrane du thylakoïde et suivre les électrons du photosystème II au NADPH. Les compteurs d’ATP, de NADPH et de CO₂ fixé conservent le bilan de 3 pour 2 pour 1 décrit plus haut ; ce ne sont pas des mesures indépendantes.
Questions
D’où vient l’oxygène de la photosynthèse ?
Il vient de l’eau, pas du dioxyde de carbone. Le photosystème II prélève des électrons dans l’eau, et la scission de deux molécules d’eau libère un O₂. Le carbone du CO₂ est incorporé à des molécules organiques. L’équation globale n’est pas un bilan atome par atome des échanges d’oxygène avec l’eau.
Pourquoi les feuilles sont-elles vertes ?
La chlorophylle absorbe fortement les lumières rouge et bleue et réfléchit ou transmet le vert. Cela ne signifie pas que la lumière verte est inutile. La lumière verte absorbée peut alimenter la photosynthèse plus profondément dans une feuille, surtout sous un fort éclairage.
Quelle est la différence entre la phase lumineuse et le cycle de Calvin ?
La phase lumineuse se déroule dans la membrane du thylakoïde et transforme la lumière en ATP et NADPH, en libérant de l’oxygène. Le cycle de Calvin se déroule dans le stroma et utilise cet ATP et ce NADPH pour fixer le CO₂ en sucre. L’ancienne appellation « réactions sombres » est trompeuse, car le cycle fonctionne le jour, lorsque l’ATP et le NADPH sont produits.
Pourquoi la vitesse cesse-t-elle d’augmenter sous forte lumière ?
Au-delà d’un certain éclairement, le cycle de Calvin devient le goulot d’étranglement. La Rubisco ne peut fixer le dioxyde de carbone qu’à une vitesse limitée, et le CO₂ doit lui parvenir par les stomates. Davantage de lumière ne change alors rien, mais davantage de CO₂ ou une température plus favorable le peuvent.
Pourquoi les plantes ferment-elles leurs stomates ?
Pour économiser l’eau. Un stomate ouvert laisse entrer le CO₂ mais laisse aussi sortir la vapeur d’eau, et jusqu’à 90 pour cent de l’eau absorbée par une plante peut être perdue ainsi. Par une journée chaude et sèche, fermer les pores protège la plante aux dépens de la photosynthèse.
Combien faut-il de photons pour produire un O₂ ?
Dans le schéma linéaire simple, huit. Quatre électrons sont nécessaires pour libérer un O₂ à partir de deux molécules d’eau, et chaque électron est réexcité deux fois, une fois au photosystème II et une fois au photosystème I.
L’ATP synthase du chloroplaste est-elle la même que celle des mitochondries ?
Elle fonctionne de la même manière et possède les mêmes parties, mais son anneau rotor dans les chloroplastes foliaires comporte 14 sous-unités, davantage que celui des mitochondries animales. Un anneau plus grand signifie davantage de protons par ATP. L’exposition ATP synthase permet de modifier la taille de l’anneau.
La lumière verte peut-elle alimenter la photosynthèse ?
Oui. Les photons verts absorbés dans une feuille contribuent à la photosynthèse. Une absorption plus faible en surface peut leur permettre d’atteindre des chloroplastes plus profonds ; le bénéfice dépend de l’intensité et de la structure de la feuille.
Les plantes C4 évitent-elles le cycle de Calvin ?
Non. Elles concentrent le CO₂ avant de l’apporter à la Rubisco et au cycle de Calvin. La voie supplémentaire de concentration du carbone a un coût énergétique.
Le point de compensation est-il l’endroit où commence la photosynthèse ?
Non. C’est l’endroit où l’absorption photosynthétique équilibre la libération respiratoire. En dessous, la photosynthèse peut continuer même si l’échange net de carbone est négatif.
Vocabulaire
- Stomate (pluriel stomates) : un pore de la surface de la feuille entre deux cellules de garde.
- Mésophylle : le tissu intérieur d’une feuille, en une couche palissadique et une couche lacuneuse.
- Chloroplaste : l’organite où se déroule la photosynthèse.
- Thylakoïde : un sac membranaire aplati dans un chloroplaste ; un empilement de ces sacs forme un granum.
- Stroma : le liquide autour des thylakoïdes, où se déroule le cycle de Calvin.
- Lumen : l’espace intérieur d’un thylakoïde, où s’accumulent les protons.
- Photosystème : un complexe protéique comportant une antenne de pigments et un centre réactionnel qui utilise la lumière pour déplacer un électron.
- NADPH : un transporteur d’électrons produit par la phase lumineuse et utilisé pour réduire le carbone dans le cycle de Calvin.
- Rubisco : l’enzyme qui associe le CO₂ au RuBP.
- G3P : le glycéraldéhyde 3-phosphate, le sucre à trois carbones exporté par le cycle de Calvin.
- Transpiration : la perte de vapeur d’eau d’une plante, principalement par les stomates.
- Saturation lumineuse : l’éclairement au-delà duquel la vitesse de photosynthèse n’augmente plus beaucoup.
Sources
OpenStax, Biology 2e, 8.1 Overview of Photosynthesis (99 pour cent des écosystèmes, chloroplaste, thylakoïde, granum, stroma, lumen, stomates sur la face inférieure). https://openstax.org/books/biology-2e/pages/8-1-overview-of-photosynthesis (consulté le 16 octobre 2026)
OpenStax, Biology 2e, 8.2 The Light-Dependent Reactions of Photosynthesis (400 à 700 nm, 300 à 400 chlorophylles par antenne, un millionième de seconde, P680, P700, scission de l’eau, environ 10 pour cent de l’O₂ utilisé par les mitochondries, plastoquinone, complexe cytochrome, plastocyanine). https://openstax.org/books/biology-2e/pages/8-2-the-light-dependent-reactions-of-photosynthesis (consulté le 16 octobre 2026)
OpenStax, Biology 2e, 8.3 Using Light Energy to Make Organic Molecules (Rubisco, RuBP, 3-PGA, G3P, trois tours par G3P exporté, 6 ATP et 6 NADPH lors de la réduction plus 3 ATP lors de la régénération, cactus). https://openstax.org/books/biology-2e/pages/8-3-using-light-energy-to-make-organic-molecules (consulté le 16 octobre 2026)
OpenStax, Biology 2e, 30.4 Leaves (cuticule, épiderme, mésophylle palissadique et lacuneux, cellules de garde, nervures). https://openstax.org/books/biology-2e/pages/30-4-leaves (consulté le 16 octobre 2026)
OpenStax, Biology 2e, 30.5 Transport of Water and Solutes in Plants (jusqu’à 90 pour cent d’eau perdue par transpiration, réactions des cellules de garde). https://openstax.org/books/biology-2e/pages/30-5-transport-of-water-and-solutes-in-plants (consulté le 16 octobre 2026)
NOAA Global Monitoring Laboratory, Trends in Atmospheric Carbon Dioxide (moyenne mensuelle de Mauna Loa de 426,07 ppm, septembre 2026). https://gml.noaa.gov/ccgg/trends/ (consulté le 16 octobre 2026)
Umena Y, Kawakami K, Shen J-R, Kamiya N, Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å, Nature 473, 55 (2011) (agrégat Mn4CaO5, quatre molécules d’eau liées). https://www.nature.com/articles/nature09913 (consulté le 16 octobre 2026)
Seelert H, Poetsch A, Dencher NA, Engel A, Stahlberg H, Müller DJ, Proton-powered turbine of a plant motor, Nature 405, 418 (2000) (14 sous-unités dans l’anneau de l’ATP synthase du chloroplaste). https://www.nature.com/articles/35013148 (consulté le 16 octobre 2026)
Yamori W, Hikosaka K, Way DA, Temperature response of photosynthesis in C3, C4, and CAM plants: temperature acclimation and temperature adaptation, Photosynthesis Research 119, 101 (2014). https://link.springer.com/article/10.1007/s11120-013-9874-6 (consulté le 16 octobre 2026)
FAO, Crop evapotranspiration, Irrigation and Drainage Paper 56, chapitre 3 (pression de vapeur saturante, équation 11). https://www.fao.org/4/x0490e/x0490e07.htm (consulté le 16 octobre 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1961 (Melvin Calvin). https://www.nobelprize.org/prizes/chemistry/1961/summary/ (consulté le 16 octobre 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1978 (Peter Mitchell). https://www.nobelprize.org/prizes/chemistry/1978/summary/ (consulté le 16 octobre 2026)
NobelPrize.org, Press release: The Nobel Prize in Chemistry 1988 (structure d’un centre réactionnel photosynthétique). https://www.nobelprize.org/prizes/chemistry/1988/press-release/ (consulté le 16 octobre 2026)
Zhu, Long and Ort (2008), What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? notice et résumé de University of Illinois (hypothèses de 4,6 %, 6 %, 30 °C, 380 ppm). https://experts.illinois.edu/en/publications/what-is-the-maximum-efficiency-with-which-photosynthesis-can-conv (HTTP 200, consulté le 23 octobre 2026)
Ort, Zhu and Melis (2011), Optimizing Antenna Size to Maximize Photosynthetic Efficiency, Plant Physiology (répartition lumineuse dans le couvert, rendement quantique, courbes de réponse). https://pmc.ncbi.nlm.nih.gov/articles/PMC3014228/ (HTTP 200, consulté le 23 octobre 2026)
Royal Society of Biology, Practical Biology, Investigating factors affecting the rate of photosynthesis (comptage des bulles d’une plante aquatique, hypothèses, lumière et distance). https://practicalbiology.org/energy/photosynthesis/investigating-factors-affecting-the-rate-of-photosynthesis.html (consulté le 26 octobre 2026)
Boardman (1977), Comparative photosynthesis of sun and shade plants, Annual Review of Plant Physiology 28. https://doi.org/10.1146/annurev.pp.28.060177.002035 (consulté le 26 octobre 2026)
Liu and van Iersel (2021), Photosynthetic Physiology of Blue, Green, and Red Light, Frontiers in Plant Science (laitue, réponse à la lumière verte selon l’intensité). https://pmc.ncbi.nlm.nih.gov/articles/PMC7977723/ (HTTP 200, consulté le 23 octobre 2026)
Textes et simulations : CC BY-NC-SA 4.0, sauf mention contraire.
D'autres expositions
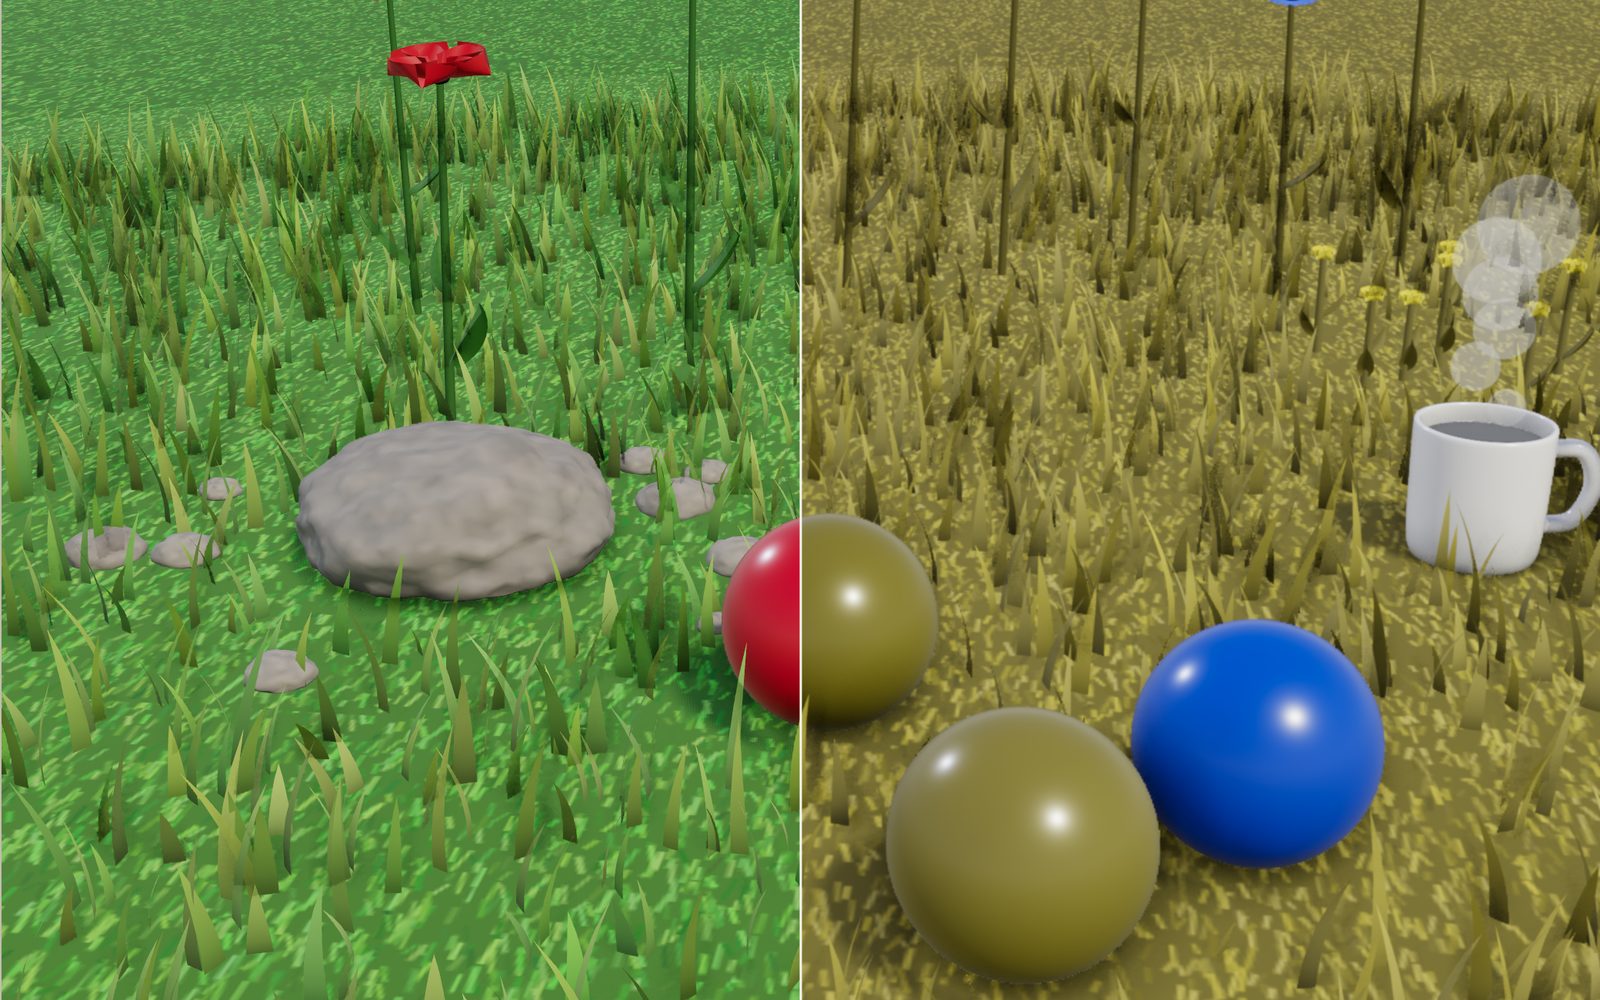
Vision des animaux : voir avec les yeux de 69 animaux
Une balle rouge sur l’herbe verte est facile à trouver pour vous, mais difficile pour un chien. Sur la même fleur, une abeille voit un motif qui vous échappe.

Séquoia géant : croissance et taille des arbres géants
Au pied du General Sherman Tree, haut de 83,8 m et âgé d’environ 2200 ans, grimpez au tronc et observez la traction sur l’eau en hauteur.
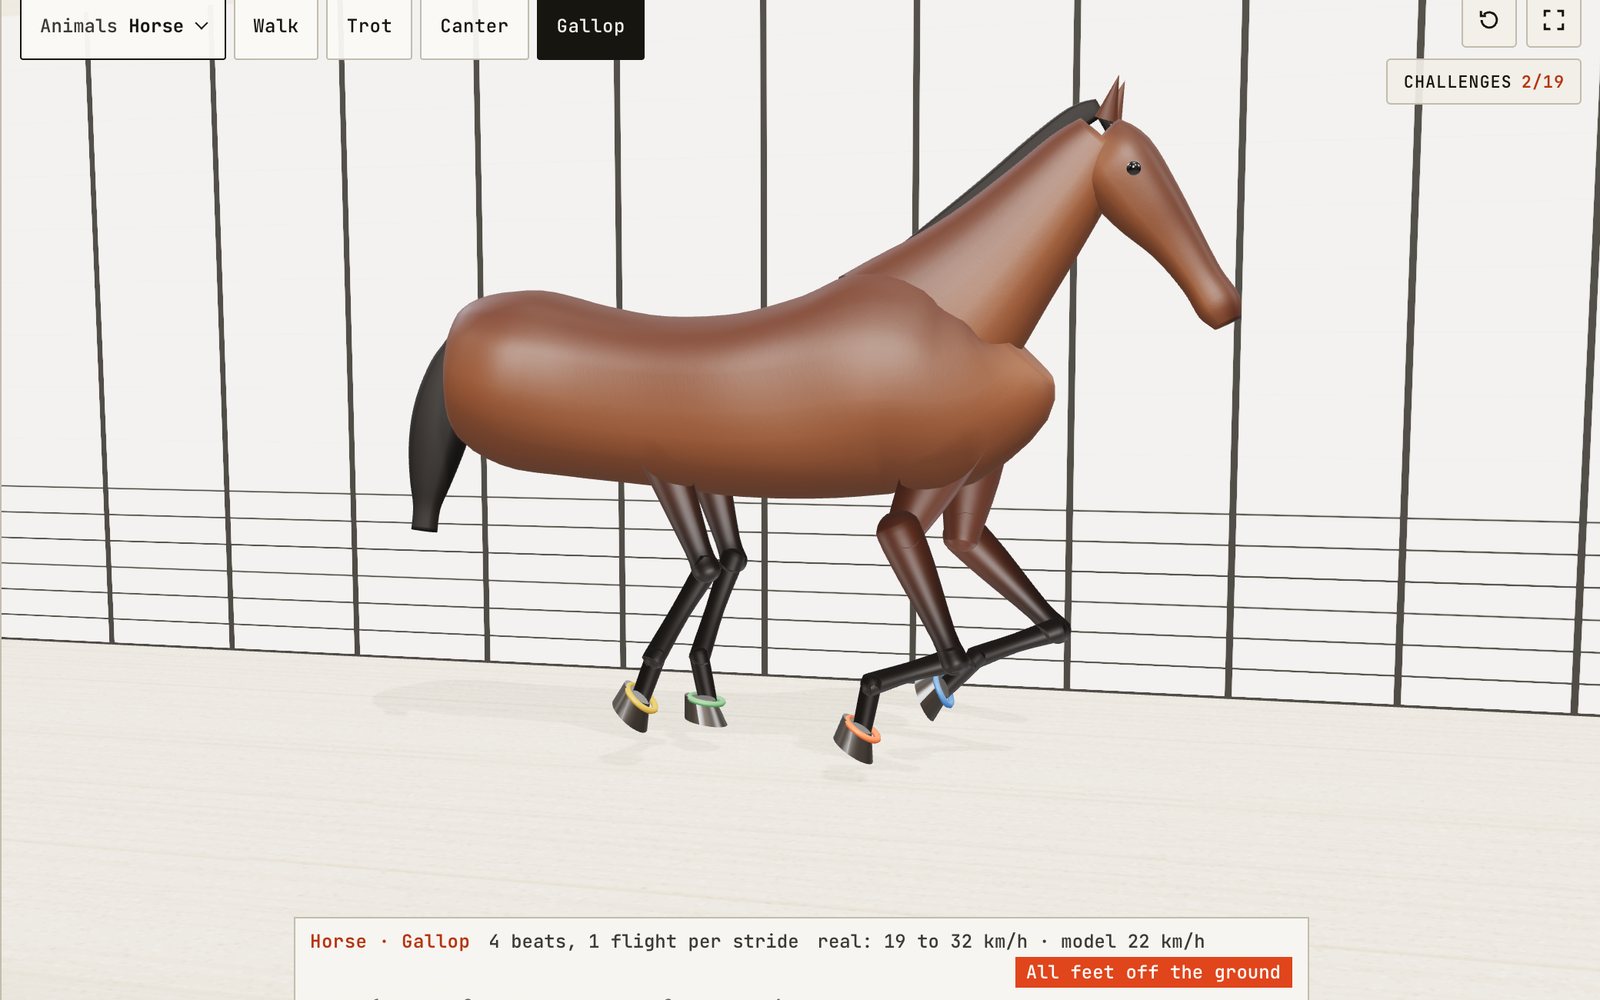
Cheval : comparez comment il court à chaque allure
En 1878, les appareils de Muybridge ont montré que le cheval au galop lève les quatre pieds, mais les jambes regroupées sous lui. Certains animaux rapides ne décollent jamais.

CRISPR-Cas9 interactif : coupe et réparation de l’ADN
Un ARN guide ne lit que 20 lettres d’ADN, et cela suffit en général pour repérer un seul endroit parmi les 3 milliards de paires de bases d’un génome humain.

ATP synthase : explorez le fonctionnement de son rotor
Dans les mitochondries, le rotor de l’ATP synthase tourne environ 100 fois par seconde. Chaque tour libère trois molécules d’ATP.

Taille des dinosaures comparée à l’humain : 172 animaux
Un parc de 600 m avec 172 animaux préhistoriques à leur taille réelle, des premiers dinosaures à T. rex, rangés par période.