FIG. 69Como funciona
Fotossíntese: como funciona
Uma folha em pleno sol retira dióxido de carbono do ar, que contém apenas cerca de 426 partes por milhão desse gás, e produz açúcar a partir dele.
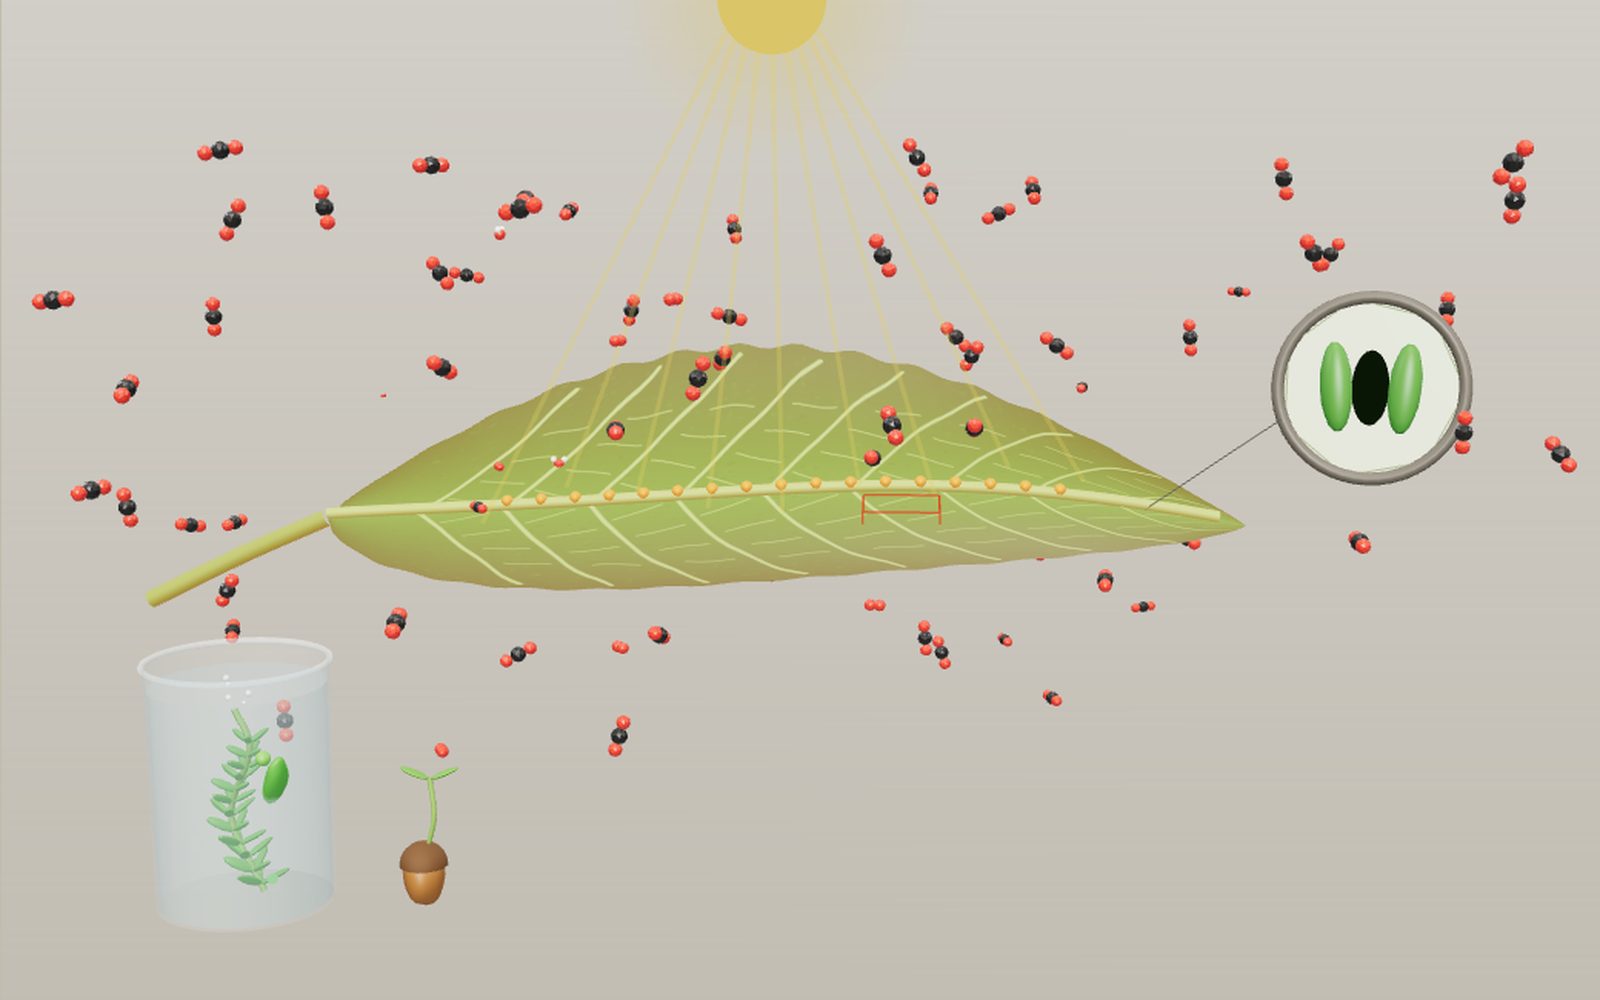
Este dispositivo não consegue mostrar o modelo 3D. Abaixo, você pode ler as etapas do guia em texto.
1 / 8 Uma folha ao solEsta folha é o ponto de partida. Arraste o sol para inclinar a luz e observe o ar: moléculas de CO₂ entram, O₂ sai e a planta aquática no béquer solta bolhas. A caixa vermelha marca o bloco que retiramos a seguir.
Arraste para girar. Use a rolagem ou o gesto de pinça para ampliar.
De onde vem a madeira de uma árvore?
Uma semente pesa menos de um grama, e o carvalho que cresce a partir dela pode pesar muitas toneladas. A maior parte de toda essa massa não foi retirada do solo. Ela veio do ar, na forma de dióxido de carbono, e foi transformada em açúcar dentro das folhas verdes usando a energia da luz. O mesmo processo produz o oxigênio que respiramos. O livro de biologia da OpenStax apresenta claramente o alcance desse processo: a fotossíntese fornece energia a 99 por cento dos ecossistemas da Terra.
A reação geral cabe em uma linha: seis moléculas de dióxido de carbono e seis de água se tornam um açúcar e seis moléculas de oxigênio. Essa linha esconde uma longa cadeia de etapas, distribuídas por tamanhos que vão de uma folha inteira até proteínas individuais com alguns bilionésimos de metro de largura. Esta exposição percorre essa cadeia. Começa com uma folha, retira um bloco dela, abre um cloroplasto e chega a um trecho da membrana do tilacoide onde a luz é transformada em energia química. Três controles deslizantes alteram a luz, o dióxido de carbono e a temperatura, e uma curva no canto mostra como a taxa responde.
Uma folha é feita para captar luz e deixar o ar entrar
Uma folha tem duas tarefas a cumprir que entram em conflito entre si. Precisa distribuir células verdes sob a luz e deixar que o ar alcance essas células, perdendo o mínimo possível de água. A organização de suas diferentes camadas permite resolver esse problema.
A parte superior é coberta por uma cutícula cerosa, que reduz a perda de água, e abaixo dela fica a epiderme, geralmente uma única camada de células transparentes. Abaixo estão as células paliçádicas, colunas altas dispostas lado a lado. O capítulo da OpenStax sobre folhas as descreve como células em forma de coluna, bem compactadas em uma a três camadas, e elas contêm a maioria dos cloroplastos da folha. No modelo, cada coluna é desenhada transparente para que os cloroplastos internos apareçam como esferas verde-escuras.
Abaixo da camada paliçádica, as células mudam. O mesofilo esponjoso é formado por células frouxamente dispostas e irregulares, com ar entre elas. Esses espaços de ar são os pulmões da folha: o gás que entra pela face inferior se espalha por eles até cada célula. Uma nervura atravessa o meio do bloco, com o xilema trazendo água das raízes e o floema transportando açúcar para fora.
Os estômatos trocam água por dióxido de carbono
A face inferior da folha é pontilhada de estômatos, pequenos poros, cada um entre duas células-guarda. Quando as células-guarda se enchem de água e incham, elas se curvam, afastando-se, e o poro se abre. Quando ficam flácidas, ele se fecha. As células-guarda são as únicas células da epiderme que possuem cloroplastos.
Um poro aberto é uma troca que tem um custo. O dióxido de carbono só pode entrar se o poro estiver aberto, mas o vapor de água sai pelo mesmo caminho, porque o ar dentro da folha está quase saturado e o ar de fora geralmente não está. Segundo a OpenStax, até 90 por cento da água que uma planta absorve pelas raízes pode ser perdida dessa maneira, como transpiração. As células-guarda respondem à luz, ao estado hídrico da folha e ao dióxido de carbono, de modo que uma planta pode fechar seus estômatos numa tarde quente e seca e aceitar menos fotossíntese em troca de conservar sua água.
No modelo, o controle Estômatos abertos move as células-guarda. Moléculas de CO₂ cinza-escuras e vermelhas entram pelos poros, e moléculas de água azuis e brancas saem. Feche os poros e ambos os fluxos caem a zero. O valor de Perda de água aumenta com a abertura e com a temperatura, porque o ar quente pode conter mais água e, assim, seca a folha mais depressa.
Dentro de um cloroplasto
Cada esfera verde em uma célula paliçádica é um cloroplasto. Ele possui um envoltório duplo ao redor de um interior aquoso chamado estroma. Flutuando no estroma há um terceiro conjunto de membranas, os tilacoides, sacos achatados que se empilham em conjuntos chamados grana e são unidos por lâminas individuais. O espaço dentro de cada saco é o lúmen.
Essa organização divide o trabalho em dois. As reações da fase luminosa ocorrem nas membranas dos tilacoides e produzem dois transportadores de energia, ATP e NADPH. O ciclo de Calvin ocorre no estroma e os utiliza para formar açúcar a partir de dióxido de carbono. A última escala da exposição mostra ambos ao mesmo tempo: a membrana atravessa o meio, com o estroma acima e o lúmen abaixo.
O fotossistema II retira elétrons da água
A luz chega como fótons. A clorofila absorve bem a luz vermelha e a azul e reflete a verde, razão pela qual as folhas parecem verdes. As plantas usam comprimentos de onda de cerca de 400 a 700 nm, que os fisiologistas vegetais chamam de radiação fotossinteticamente ativa.
Os fótons são captados por complexos antena. A OpenStax atribui a cada complexo coletor de luz de 300 a 400 moléculas de clorofila, além de carotenoides. A energia de um fóton absorvido passa de pigmento em pigmento até que, após cerca de um milionésimo de segundo, chega a um centro de reação. No fotossistema II, esse centro é um par de clorofilas chamado P680, e a energia expulsa um de seus elétrons para um aceptor.
O P680 agora precisa recuperar um elétron e o obtém da água. No lado do lúmen do fotossistema II fica um agregado de quatro átomos de manganês, um átomo de cálcio e cinco átomos de oxigênio. Umena e colegas o mapearam com resolução de 1,9 Å em 2011 e encontraram quatro moléculas de água ligadas a ele. O agregado retira elétrons da água, um de cada vez. A quebra de duas moléculas de água fornece quatro elétrons, quatro prótons e uma molécula de O₂. A OpenStax observa que cerca de 10 por cento desse oxigênio é usado pelas próprias mitocôndrias da folha, e o restante escapa para o ar.
No modelo, os traços amarelos são fótons e as esferas ciano são elétrons. Cada vez que quatro elétrons saem do fotossistema II, uma molécula de O₂ se afasta do agregado e o contador de O₂ aumenta em uma unidade.
Da plastoquinona ao NADPH
O elétron não fica parado. Ele é transferido para a plastoquinona (esferas amarelas), uma pequena molécula que se move dentro da membrana até o complexo citocromo b6f. À medida que os elétrons passam pelo b6f, o b6f move prótons do estroma para o lúmen. Do outro lado, a plastocianina (uma proteína azul com cobre) recolhe o elétron e o transporta pela superfície do lúmen até o fotossistema I.
Nesse ponto o elétron perdeu boa parte de sua energia, por isso o fotossistema I precisa de um segundo fóton. Seu centro de reação, P700, eleva novamente a energia do elétron e o transfere para a ferredoxina no lado do estroma. A enzima ferredoxina-NADP⁺ redutase (FNR) então coloca dois elétrons no NADP⁺, formando NADPH. No modelo, uma molécula roxa de NADPH sai da FNR a cada dois elétrons e segue para o ciclo de Calvin.
O gradiente de prótons move a ATP sintase
Duas coisas encheram o lúmen de prótons: a quebra da água no fotossistema II e o bombeamento no b6f. O lúmen fica ácido e o estroma menos ácido, e os prótons só podem voltar por uma porta. Essa porta é a ATP sintase, a mesma máquina rotativa mostrada na exposição ATP sintase, com a cabeça no lado do estroma.
Seelert e colegas obtiveram imagens da versão dos cloroplastos por microscopia de força atômica em 2000 e descobriram que seu anel rotor tem 14 subunidades. Cada próton que atravessa move o anel uma subunidade, portanto 14 prótons o fazem dar uma volta, e uma volta libera 3 ATP da cabeça. Isso corresponde a 14 ÷ 3 ≈ 4,67 prótons para cada ATP produzido. As esferas vermelhas no lúmen ficam mais numerosas à medida que as reações da fase luminosa aceleram, e você pode vê-las passar em fila pelo anel.
A Rubisco e o ciclo de Calvin
O estroma contém a enzima que faz a fixação propriamente dita: ribulose-1,5-bisfosfato carboxilase/oxigenase, geralmente abreviada como Rubisco. Ela une um CO₂ a um açúcar de cinco carbonos chamado RuBP. O resultado de seis carbonos se divide imediatamente em duas moléculas de 3-PGA, que tem três carbonos. A OpenStax divide o ciclo em fixação, redução e regeneração.
Na redução, ATP e NADPH transformam o 3-PGA em G3P, um açúcar fosfato de três carbonos. Na regeneração, a maior parte do G3P é reorganizada em RuBP para que o ciclo possa continuar, o que custa mais ATP. Como apenas um carbono é adicionado por volta, são necessárias três voltas para obter um G3P excedente para exportação. Ao longo dessas três voltas o ciclo usa 9 ATP e 6 NADPH. O equivalente a seis voltas produz uma glicose.
O circuito do modelo é desenhado no sentido horário com a Rubisco no topo. As esferas mudam de cor ao percorrê-lo: azul para 3-PGA, laranja para G3P, verde para RuBP. Uma molécula de CO₂ chega à Rubisco cada vez que uma esfera passa por ela, ATP e NADPH vêm da membrana abaixo, e a cada terceira fixação um hexágono de açúcar sai para a direita.
Conferindo os números
A contabilidade da exposição está interligada por um número, o CO₂ fixado por segundo na tela. Todo o restante decorre das fontes.
- Por CO₂ fixado, o ciclo de Calvin usa 9 ÷ 3 = 3 ATP e 6 ÷ 3 = 2 NADPH.
- Cada NADPH transporta 2 elétrons, portanto 2 NADPH precisam de 4 elétrons. Quatro elétrons vêm da quebra de duas moléculas de água, que libera um O₂. Assim, um O₂ sai para cada CO₂ fixado, como diz a equação geral.
- Cada elétron passa pelos dois fotossistemas, com um fóton em cada um. Portanto, quatro elétrons precisam de 8 fótons por O₂ nesse esquema linear simples.
- 3 ATP por CO₂, com 14 prótons por 3 ATP, significam 14 prótons através da ATP sintase para cada CO₂.
Você pode conferir isso nos contadores. Depois de algum tempo, o ATP produzido fica próximo de três vezes o CO₂ fixado, o NADPH produzido próximo do dobro, e o O₂ liberado, próximo do mesmo valor. Eles diferem em uma ou duas unidades porque cada contador avança em um momento diferente da animação.
A curva de taxa é um modelo, não uma folha medida. A resposta à luz é uma hipérbole não retangular, uma forma padrão de livros didáticos. A taxa bruta P resolve θP² − (αI + Pc)P + αIPc = 0, onde I é a luz, α = 0,11 é a inclinação inicial, θ = 0,8 define quão acentuada é a curvatura, e Pc é um teto definido pelo dióxido de carbono e pela temperatura. O teto aumenta com o CO₂ como 100 × (C − 50) ÷ (C − 50 + 300), e é multiplicado por uma curva em sino assimétrica com pico a 25 °C. A respiração, de 3 unidades a 25 °C e que dobra a cada 10 °C, é subtraída para fornecer a taxa líquida. As taxas estão em unidades do modelo, numa escala em que 100 é o teto.
Fazendo as contas, o modelo fornece estes valores. No padrão do modelo de 426 ppm e 25 °C, a taxa líquida é −3 no escuro (a folha apenas respira), 16,8 com luz de 200 e 49,4 com 2000. A curva atinge 90 por cento de seu teto com luz de cerca de 1274. Eleve o CO₂ para 1000 ppm e o topo da curva sobe para 62,8, enquanto o ponto de 90 por cento se desloca para cerca de 1636. A melhor temperatura no modelo é 24,5 °C. O padrão de 426 ppm vem do registro de Mauna Loa da NOAA, que fornece uma média mensal de 426,07 ppm para setembro de 2026.
Por que luz, dióxido de carbono e temperatura impõem limites
A curva tem duas partes. Sob luz fraca ela sobe numa linha quase reta: cada fóton adicional é usado, e nenhum outro recurso está em falta. Sob luz intensa ela se achata, porque o ciclo de Calvin não consegue acompanhar. A Rubisco é lenta e precisa de dióxido de carbono, e mais luz não lhe dará mais desse gás. O mostrador indica o fator que está limitando a taxa.
É por isso que os controles agem de maneira diferente. Elevar o CO₂ quase não altera a parte da curva sob luz fraca, mas eleva seu topo, portanto uma folha numa estufa com CO₂ adicional ganha mais sob luz intensa. A temperatura altera principalmente as enzimas, por isso comprime ou estica todo o topo da curva. Fechar os estômatos reduz o CO₂ dentro da folha (mostrado como CO₂ interno), o que abaixa o teto mesmo quando o ar externo permanece igual. A linha tracejada é sempre a folha padrão, para comparação.
O que o modelo deixa de fora
O modelo é desenhado para ser claro, não em escala entre os níveis, e as proteínas são formas lisas em vez de estruturas medidas. Vários processos reais estão ausentes.
- A Rubisco também reage com oxigênio. Essa reação paralela, a fotorrespiração, desperdiça carbono e piora à medida que as folhas esquentam. O modelo apenas sugere esse efeito pela forma da curva de temperatura.
- As plantas também realizam fluxo cíclico de elétrons ao redor do fotossistema I, que produz ATP adicional sem NADPH. O modelo mostra apenas a rota linear, de modo que seus números de ATP e NADPH correspondem exatamente ao ciclo de Calvin.
- Plantas C4 e plantas CAM, como os cactos, concentram CO₂ antes que ele chegue à Rubisco. A OpenStax descreve como os cactos absorvem CO₂ à noite e mantêm os estômatos fechados durante o dia. Suas curvas são bastante diferentes.
- As temperaturas ótimas reais variam entre espécies e mudam conforme as plantas se aclimatam à temperatura em que crescem, como mostram Yamori e colegas em sua revisão de 2014. O pico de 25 °C aqui é um número redondo escolhido para o modelo.
- A perda de água é mostrada em unidades do modelo, dimensionadas a partir da abertura dos estômatos e do poder de secagem do ar com 50 por cento de umidade, usando a fórmula da FAO para a pressão de vapor de saturação.
Uma breve história
Melvin Calvin recebeu o Prêmio Nobel de Química de 1961 por sua pesquisa sobre a assimilação de dióxido de carbono nas plantas, o trabalho que rastreou como o carbono se move pelo ciclo que hoje leva seu nome. Muitos livros didáticos o chamam de ciclo de Calvin-Benson, para incluir outro cientista que trabalhou nele. A teoria quimiosmótica de Peter Mitchell, que explica como um gradiente de prótons impulsiona a síntese de ATP tanto em mitocôndrias quanto em cloroplastos, recebeu o Prêmio Nobel de Química de 1978. Em 1988, Johann Deisenhofer, Robert Huber e Hartmut Michel dividiram o prêmio de química por determinar a estrutura tridimensional de um centro de reação fotossintético, a primeira proteína de membrana a ser resolvida átomo por átomo. A estrutura do agregado que quebra a água no fotossistema II veio depois, em 2011.
Contando fótons e energia armazenada
O valor de oito fótons descreve um balanço ideal de transferência de elétrons, não a fração da luz solar que se torna uma colheita. Quatro elétrons precisam ser excitados duas vezes cada um para fornecer dois NADPH. Dividir um CO₂ fixado por oito fótons absorvidos dá um rendimento quântico limite de 0,125 CO₂ por fóton. Se uma folha hipotética precisar, em vez disso, de dez fótons absorvidos por CO₂ fixado, o rendimento passa a 0,100. Estes são exemplos calculados. O segundo número não é uma exigência universal medida: a produção adicional de ATP, a fotorrespiração e outras perdas alteram a necessidade conforme as condições.
Para um feixe de luz hipotético que forneça 800 micromoles de fótons absorvidos por metro quadrado por segundo, o balanço de oito fótons permitiria fixar 100 micromoles de CO₂ por metro quadrado por segundo. Um balanço de dez fótons permitiria 80. Nenhum resultado prevê a Taxa líquida da exposição, porque seu eixo vertical está em unidades do modelo e inclui um termo separado de respiração. O fluxo de fótons e o fluxo de carbono também têm significados diferentes, embora ambos usem micromoles. Contar fótons, por si só, não pode nos dizer a eficiência energética: fótons azuis carregam mais energia que fótons vermelhos.
A revisão de Zhu, Long e Ort de 2008 estimou eficiências máximas de conversão de energia solar em biomassa de 4,6 % para plantas C3 e 6 % para plantas C4 a 30 °C e 380 ppm de CO₂. A concentração pertence às hipóteses daquele artigo, não ao ar atual. Essas porcentagens usam todo o espectro solar incidente como denominador. Não devem ser comparadas diretamente com um rendimento por fóton absorvido nem com uma eficiência calculada apenas a partir da luz visível. Grande parte da luz solar está fora da faixa convencionalmente considerada fotossinteticamente ativa; a reflexão e os custos metabólicos reduzem o restante.
Como exercício de contabilidade energética, suponha que uma cultura intercepte 1000 MJ de energia solar total em uma área e período escolhidos. Uma eficiência de conversão suposta de 1 % armazena 10 MJ em biomassa; 2 % armazena 20 MJ. Essas porcentagens são hipóteses ilustrativas de desempenho no campo, não medições para todas as culturas. Elas não incluem uma promessa automática de rendimento comestível nem uma afirmação de que toda a luz interceptada chega a uma folha em funcionamento. Raízes e caules também contêm energia química armazenada. Uma medição breve numa folha bem iluminada e uma colheita de uma estação inteira respondem a perguntas diferentes.
Onde a compensação difere da saturação
No ponto de compensação luminosa, a absorção bruta de carbono pela fotossíntese equilibra exatamente a perda de carbono pela respiração, portanto a troca líquida é zero. Abaixo dele a planta ainda pode estar fazendo fotossíntese, mas a respiração vence o balanço. Na saturação, aumentar a luz produz pouca absorção adicional de carbono. São lugares diferentes na curva, não dois nomes para a primeira curvatura.
Com CO₂ no ar a 426 ppm, Temperatura da folha a 25 °C e Estômatos abertos a 100 %, o código fornece um nível de luz de compensação de cerca de 27,6 micromoles de fótons por metro quadrado por segundo. Esse valor vem da resolução da equação de taxa líquida da exposição para zero. É um cálculo para este modelo, não um limiar publicado para folhas de carvalho. O controle usa valores inteiros de luz, portanto 28 é um ajuste prático próximo do cruzamento. Com luz zero a taxa líquida é −3 unidades do modelo; cruzar o zero não significa que a respiração parou.
A marca de 90 % usa a fotossíntese bruta em relação ao seu teto calculado. Ela ocorre perto de 1274 com esses ajustes. A taxa ali não atingiu um platô matematicamente plano, e a taxa líquida exibida no gráfico tem a respiração subtraída. Usar uma porcentagem diferente daria um marcador de saturação diferente. É por isso que um valor numérico de saturação deve sempre declarar seu critério.
Uma folha aclimatada à sombra pode ter uma taxa respiratória menor e atingir ganho líquido de carbono em condições de luz mais fraca. Uma folha de sol pode sustentar uma taxa máxima maior. A exposição não alterna entre conjuntos de parâmetros medidos de folhas de sol e de sombra. Sua resposta suave também não inclui danos por excesso de luz. Num dossel real, as folhas superiores podem receber mais luz do que conseguem processar enquanto as folhas abaixo continuam limitadas pela luz. A pesquisa sobre o tamanho das antenas examina se distribuir a luz mais uniformemente poderia melhorar a produção de todo o dossel, em vez de apenas aumentar a absorção no topo.
Folhas C3, milho e um cacto
Os nomes C3 e C4 se referem às quantidades de carbonos nos primeiros produtos estáveis de suas respectivas vias iniciais de fixação. Numa folha C3, a Rubisco adiciona CO₂ diretamente à RuBP e os produtos estáveis imediatos são moléculas de 3-PGA com três carbonos. O trigo e o arroz usam essa via. A Rubisco também reage com oxigênio. Essa oxigenação inicia a fotorrespiração, uma via de recuperação que consome energia e libera parte do carbono anteriormente fixado. Não é o mesmo processo que a respiração mitocondrial no escuro.
O milho e a cana-de-açúcar são plantas C4. Sua captura inicial usa PEP carboxilase nas células do mesofilo, produzindo compostos de quatro carbonos. Esses compostos transportam carbono para células da bainha do feixe, onde o CO₂ é liberado perto da Rubisco. O ciclo de Calvin continua funcionando; o metabolismo C4 o abastece com uma fonte mais concentrada de CO₂. Manter essa bomba custa energia extra, portanto C4 não é uma melhoria incondicional sob qualquer temperatura ou nível de luz. Sua vantagem é particularmente útil onde o calor e o baixo CO₂ interno favoreceriam a fotorrespiração.
Muitos cactos usam CAM. Eles absorvem grande parte de seu CO₂ externo à noite e armazenam temporariamente o carbono em ácidos orgânicos. Durante o dia, a decomposição dos ácidos fornece CO₂ enquanto os estômatos podem permanecer mais fechados. C4 normalmente separa a captura inicial e o ciclo de Calvin entre tipos de células; CAM separa boa parte do trabalho entre noite e dia. Essas distinções explicam por que colocar um cacto num modelo de folha C3 diurna comum seria enganoso.
A capacidade de carboxilação da Rubisco é, portanto, apenas parte do problema. A entrega de substrato também importa. Fechar os estômatos pode limitar a absorção de carbono mesmo quando as enzimas estão intactas, e fornecer mais CO₂ externo pode ajudar apenas se uma quantidade suficiente alcançar o cloroplasto. O controle Tipo de folha oferece uma folha C3 de sol, uma folha C3 de sombra e uma folha C4 semelhante à do milho, e as três são curvas do modelo. O ajuste C4 satura sua resposta ao CO₂ perto do ar atual, tem um ponto de compensação próximo de zero e um ótimo mais quente, e começa com uma inclinação menor para representar o ATP extra da bomba. Ele não calcula a velocidade de renovação da Rubisco, a oxigenação nem a própria bomba. A folha de sombra segue a revisão de Boardman sobre plantas de sol e de sombra: menos capacidade e menos respiração, de modo que atinge o ponto de compensação sob luz fraca e satura cedo. Não há ajuste CAM, e nenhuma das três pode ser usada para classificar rendimentos reais de culturas.
O que as folhas verdes não dizem
Uma aparência verde não demonstra que fótons verdes não possam impulsionar a fotossíntese. A clorofila isolada absorve intensamente as faixas azul e vermelha, mas uma folha é uma estrutura espessa que espalha luz e contém muitos cloroplastos. Parte da luz verde escapa; parte percorre uma distância maior pelo tecido antes de ser absorvida. O espectro de absorção de uma solução de pigmentos e o espectro de ação de uma folha inteira não são medições intercambiáveis.
O estudo de Liu e van Iersel de 2021 testou alface sob diferentes espectros de luz e fluxos de fótons. Em baixa intensidade, a luz verde teve um rendimento quântico por luz incidente menor porque a absorção era menor. Em alta intensidade, seu rendimento quântico ficou entre os maiores, condizente com uma distribuição mais uniforme de excitação pela folha. Esse é um resultado condicional, não uma recomendação de que lâmpadas exclusivamente verdes sempre produzam culturas melhores. O controle Cor da luz segue esse padrão de maneira aproximada. Ele altera apenas a inclinação inicial da curva (verde mais baixa, depois azul, branca e vermelha), de modo que as cores diferem mais sob luz fraca e quase se encontram sob luz intensa. Esses fatores são valores do modelo, e a exposição não simula a absorção dependente da profundidade.
O equívoco sobre o solo exige uma distinção diferente. O carbono na madeira nova vem principalmente do CO₂ atmosférico, mas uma árvore recém-pesada também contém uma quantidade considerável de água. A água entra pelas raízes, e os nutrientes minerais do solo continuam essenciais, embora não sejam a principal fonte de carbono orgânico seco. Um vaso que perde pouco solo enquanto sua planta ganha massa contraria a ideia de que o solo seja a fonte principal; isso não identifica, por si só, todas as fontes do ganho. Comparar a massa seca e rastrear o carbono são testes mais fortes do que pesar apenas uma planta úmida.
Da mesma forma, o símbolo de açúcar na tela é um símbolo contábil, não uma afirmação de que um cloroplasto ejeta uma molécula pronta de glicose após cada fixação. O ciclo de Calvin exporta um produto de três carbonos após várias voltas, e o metabolismo posterior produz açúcares e outros materiais. Bolhas visíveis identificariam gás liberado, não a fonte de carbono do caule em crescimento.
Bolhas de plantas aquáticas e luz inclinada
As escolas medem a fotossíntese com uma planta aquática. O protocolo Practical Biology da Royal Society of Biology coloca um segmento cortado de Elodea ou Cabomba na água sob uma lâmpada e conta as bolhas que sobem da extremidade cortada durante 1 minuto, depois repete a contagem e calcula uma média. Ele também explicita as hipóteses: supõe-se que as bolhas sejam apenas oxigênio, que a produção de oxigênio seja proporcional à taxa e que as bolhas tenham o mesmo tamanho. A luz de uma pequena lâmpada diminui com o quadrado da distância, portanto afastar a lâmpada para o dobro da distância deixa cerca de um quarto da luz.
O béquer que aparece na cena realiza esse mesmo experimento dentro do modelo. Sua contagem por minuto é a taxa líquida do modelo multiplicada por um fator fixo, de modo que mostra direção e proporção em vez de um número que você veria numa sala de aula. A planta aquática é tratada como uma planta C3, portanto o controle Estômatos abertos não a altera.
Você pode arrastar o sol na tela. A luz que chega em ângulo se espalha por uma área maior de folha, e a luz por metro quadrado de folha diminui com o cosseno do ângulo em relação à posição diretamente acima. A 60 graus, uma folha recebe metade do que receberia com o sol diretamente acima dela. O mostrador apresenta os dois números: Luz é a intensidade da fonte, e Na folha é o que a curva de taxa usa.
Experimente na tela
- Deixe os controles nos valores iniciais e arraste o sol para baixo, em direção ao horizonte. Na folha cai com o cosseno do ângulo enquanto Luz permanece igual, os raios ficam mais esparsos e a planta aquática desacelera. Suas bolhas por minuto são valores do modelo.
- Mova Luz para 0. A linha abaixo do título muda para a liberação de CO₂, os fluxos de moléculas se invertem e a planta aquática para. Aumente a luz lentamente até Taxa líquida cruzar 0. Esse é o ponto de compensação, cerca de 28 µmol/m²/s a 426 ppm e 25 °C neste modelo.
- Ajuste Luz para 2000 e compare o ponto com o marcador de 90 %. Depois eleve CO₂ no ar para 1000. A nuvem de CO₂ ao redor da folha fica mais densa e a curva superior sobe, porque o teto de carbono mudou e a lâmpada não.
- Eleve Temperatura da folha para 40. A perda de água aumenta, a folha amarelece e murcha, e a taxa cai. Reduza Estômatos abertos e observe o estômato ampliado fechar: a folha perde menos água e o CO₂ interno diminui.
- Mude Tipo de folha para C4 e Cor da luz para verde. Depois use Escala para descer até a membrana do tilacoide e seguir os elétrons do fotossistema II até o NADPH. Os contadores de ATP, NADPH e CO₂ fixado mantêm o balanço de 3 para 2 para 1 descrito acima; não são medições independentes.
Perguntas
De onde vem o oxigênio da fotossíntese?
Ele vem da água, não do dióxido de carbono. O fotossistema II retira elétrons da água, e a quebra de duas moléculas de água libera um O₂. O carbono do CO₂ é incorporado a moléculas orgânicas. A equação geral não é um relato átomo por átomo da troca de oxigênio com a água.
Por que as folhas são verdes?
A clorofila absorve intensamente a luz vermelha e a azul e reflete ou transmite a verde. Isso não significa que a luz verde seja inútil. A luz verde absorvida pode impulsionar a fotossíntese em regiões mais profundas da folha, especialmente sob iluminação intensa.
Qual é a diferença entre a fase luminosa e o ciclo de Calvin?
As reações da fase luminosa ocorrem na membrana do tilacoide e transformam luz em ATP e NADPH, liberando oxigênio. O ciclo de Calvin ocorre no estroma e usa esse ATP e NADPH para fixar CO₂ em açúcar. O nome antigo "reações do escuro" é enganoso, porque o ciclo funciona à luz do dia quando ATP e NADPH estão sendo produzidos.
Por que a taxa para de subir sob luz intensa?
Acima de certo nível de luz, o ciclo de Calvin se torna o gargalo. A Rubisco tem uma velocidade limitada para fixar dióxido de carbono e precisa que o CO₂ chegue pelos estômatos. Mais luz então não faz diferença, mas mais CO₂ ou uma temperatura melhor podem fazer.
Por que as plantas fecham seus estômatos?
Para economizar água. Um estômato aberto deixa o CO₂ entrar, mas também deixa o vapor de água sair, e até 90 por cento da água absorvida por uma planta pode ser perdida dessa forma. Num dia quente e seco, fechar os poros protege a planta à custa da fotossíntese.
Quantos fótons são necessários para produzir um O₂?
No esquema linear simples, oito. São necessários quatro elétrons para liberar um O₂ de duas moléculas de água, e cada elétron é energizado duas vezes, uma no fotossistema II e outra no fotossistema I.
A ATP sintase do cloroplasto é igual à das mitocôndrias?
Ela funciona da mesma maneira e tem as mesmas partes, mas seu anel rotor nos cloroplastos das folhas possui 14 subunidades, mais do que o anel nas mitocôndrias animais. Um anel maior significa mais prótons por ATP. A exposição ATP sintase permite alterar o tamanho do anel.
A luz verde pode impulsionar a fotossíntese?
Sim. Fótons verdes absorvidos dentro de uma folha contribuem para a fotossíntese. Uma absorção menor na superfície pode permitir que eles alcancem cloroplastos mais profundos; o benefício depende da intensidade e da estrutura da folha.
As plantas C4 evitam o ciclo de Calvin?
Não. Elas concentram CO₂ antes de fornecê-lo à Rubisco e ao ciclo de Calvin. A via adicional de concentração de carbono tem um custo energético.
O ponto de compensação é onde a fotossíntese começa?
Não. É onde a absorção fotossintética equilibra a liberação respiratória. Abaixo dele, a fotossíntese pode continuar mesmo que a troca líquida de carbono seja negativa.
Termos
- Estômato (plural estômatos): um poro na superfície da folha entre duas células-guarda.
- Mesofilo: o tecido interno de uma folha, numa camada paliçádica e numa camada esponjosa.
- Cloroplasto: a organela onde ocorre a fotossíntese.
- Tilacoide: um saco membranoso achatado dentro de um cloroplasto; uma pilha deles é um granum.
- Estroma: o fluido ao redor dos tilacoides, onde ocorre o ciclo de Calvin.
- Lúmen: o espaço dentro de um tilacoide, onde os prótons se acumulam.
- Fotossistema: um complexo proteico com uma antena de pigmentos e um centro de reação que usa luz para mover um elétron.
- NADPH: um transportador de elétrons produzido na fase luminosa e usado para reduzir carbono no ciclo de Calvin.
- Rubisco: a enzima que une CO₂ à RuBP.
- G3P: gliceraldeído 3-fosfato, o açúcar de três carbonos que o ciclo de Calvin exporta.
- Transpiração: a perda de vapor de água por uma planta, principalmente pelos estômatos.
- Saturação luminosa: o nível de luz acima do qual a taxa de fotossíntese deixa de aumentar muito.
Fontes
OpenStax, Biology 2e, 8.1 Overview of Photosynthesis (99 por cento dos ecossistemas, cloroplasto, tilacoide, granum, estroma, lúmen, estômatos na face inferior). https://openstax.org/books/biology-2e/pages/8-1-overview-of-photosynthesis (consultado em 16 de outubro de 2026)
OpenStax, Biology 2e, 8.2 The Light-Dependent Reactions of Photosynthesis (400 a 700 nm, 300 a 400 clorofilas por antena, um milionésimo de segundo, P680, P700, quebra da água, cerca de 10 por cento do O₂ usado pelas mitocôndrias, plastoquinona, complexo citocromo, plastocianina). https://openstax.org/books/biology-2e/pages/8-2-the-light-dependent-reactions-of-photosynthesis (consultado em 16 de outubro de 2026)
OpenStax, Biology 2e, 8.3 Using Light Energy to Make Organic Molecules (Rubisco, RuBP, 3-PGA, G3P, três voltas por G3P exportado, 6 ATP e 6 NADPH na redução mais 3 ATP na regeneração, cactos). https://openstax.org/books/biology-2e/pages/8-3-using-light-energy-to-make-organic-molecules (consultado em 16 de outubro de 2026)
OpenStax, Biology 2e, 30.4 Leaves (cutícula, epiderme, mesofilo paliçádico e esponjoso, células-guarda, nervuras). https://openstax.org/books/biology-2e/pages/30-4-leaves (consultado em 16 de outubro de 2026)
OpenStax, Biology 2e, 30.5 Transport of Water and Solutes in Plants (até 90 por cento da água perdida por transpiração, respostas das células-guarda). https://openstax.org/books/biology-2e/pages/30-5-transport-of-water-and-solutes-in-plants (consultado em 16 de outubro de 2026)
NOAA Global Monitoring Laboratory, Trends in Atmospheric Carbon Dioxide (média mensal de Mauna Loa de 426,07 ppm, setembro de 2026). https://gml.noaa.gov/ccgg/trends/ (consultado em 16 de outubro de 2026)
Umena Y, Kawakami K, Shen J-R, Kamiya N, Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å, Nature 473, 55 (2011) (agregado Mn4CaO5, quatro moléculas de água ligadas). https://www.nature.com/articles/nature09913 (consultado em 16 de outubro de 2026)
Seelert H, Poetsch A, Dencher NA, Engel A, Stahlberg H, Müller DJ, Proton-powered turbine of a plant motor, Nature 405, 418 (2000) (14 subunidades no anel da ATP sintase do cloroplasto). https://www.nature.com/articles/35013148 (consultado em 16 de outubro de 2026)
Yamori W, Hikosaka K, Way DA, Temperature response of photosynthesis in C3, C4, and CAM plants: temperature acclimation and temperature adaptation, Photosynthesis Research 119, 101 (2014). https://link.springer.com/article/10.1007/s11120-013-9874-6 (consultado em 16 de outubro de 2026)
FAO, Crop evapotranspiration, Irrigation and Drainage Paper 56, capítulo 3 (pressão de vapor de saturação, equação 11). https://www.fao.org/4/x0490e/x0490e07.htm (consultado em 16 de outubro de 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1961 (Melvin Calvin). https://www.nobelprize.org/prizes/chemistry/1961/summary/ (consultado em 16 de outubro de 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1978 (Peter Mitchell). https://www.nobelprize.org/prizes/chemistry/1978/summary/ (consultado em 16 de outubro de 2026)
NobelPrize.org, Press release: The Nobel Prize in Chemistry 1988 (estrutura de um centro de reação fotossintético). https://www.nobelprize.org/prizes/chemistry/1988/press-release/ (consultado em 16 de outubro de 2026)
Zhu, Long and Ort (2008), What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? registro e resumo da University of Illinois (hipóteses de 4,6 %, 6 %, 30 °C, 380 ppm). https://experts.illinois.edu/en/publications/what-is-the-maximum-efficiency-with-which-photosynthesis-can-conv (HTTP 200, consultado em 23 de outubro de 2026)
Ort, Zhu and Melis (2011), Optimizing Antenna Size to Maximize Photosynthetic Efficiency, Plant Physiology (distribuição de luz no dossel, rendimento quântico, curvas de resposta). https://pmc.ncbi.nlm.nih.gov/articles/PMC3014228/ (HTTP 200, consultado em 23 de outubro de 2026)
Royal Society of Biology, Practical Biology, Investigating factors affecting the rate of photosynthesis (contagem de bolhas de planta aquática, hipóteses, luz e distância). https://practicalbiology.org/energy/photosynthesis/investigating-factors-affecting-the-rate-of-photosynthesis.html (consultado em 26 de outubro de 2026)
Boardman (1977), Comparative photosynthesis of sun and shade plants, Annual Review of Plant Physiology 28. https://doi.org/10.1146/annurev.pp.28.060177.002035 (consultado em 26 de outubro de 2026)
Liu and van Iersel (2021), Photosynthetic Physiology of Blue, Green, and Red Light, Frontiers in Plant Science (alface, resposta à luz verde dependente da intensidade). https://pmc.ncbi.nlm.nih.gov/articles/PMC7977723/ (HTTP 200, consultado em 23 de outubro de 2026)
Texto e simulação: CC BY-NC-SA 4.0, salvo indicação em contrário.
Mais exposições
Visão dos animais: veja o mundo pelos olhos de 69 animais
Uma bola vermelha na grama verde é fácil para você achar, mas difícil para um cachorro. Na mesma flor, uma abelha vê um padrão que você não vê.

Sequoia gigante: por que as sequoias crescem tanto?
Ao pé do General Sherman Tree, com 83,8 m e cerca de 2200 anos, escale o tronco e veja a tração sobre a água lá no alto.
Cavalo: compare como corre do passo ao galope
Em 1878, as câmeras de Muybridge mostraram que o cavalo ao galope levanta os quatro pés, mas recolhidos sob o corpo. Alguns animais rápidos nunca saem do chão.

CRISPR-Cas9: simulador interativo de edição genética
Um RNA guia lê só 20 letras de DNA, e isso costuma bastar para escolher um único ponto entre os 3 bilhões de pares de bases de um genoma humano.

ATP sintase: explore como funciona seu rotor molecular
Nas mitocôndrias, o rotor da ATP sintase gira cerca de 100 vezes por segundo. Cada volta completa libera três moléculas de ATP.

Comparação de tamanho dos dinossauros: 172 animais
Um parque de 600 m com 172 animais pré-históricos em tamanho real, dos primeiros dinossauros ao T. rex, organizados por período.