ABB. 69So funktioniert's
So funktioniert die Photosynthese
Ein Blatt in voller Sonne zieht Kohlenstoffdioxid aus einer Luft, die nur etwa 426 Teile pro Million davon enthält, und baut daraus Zucker auf.
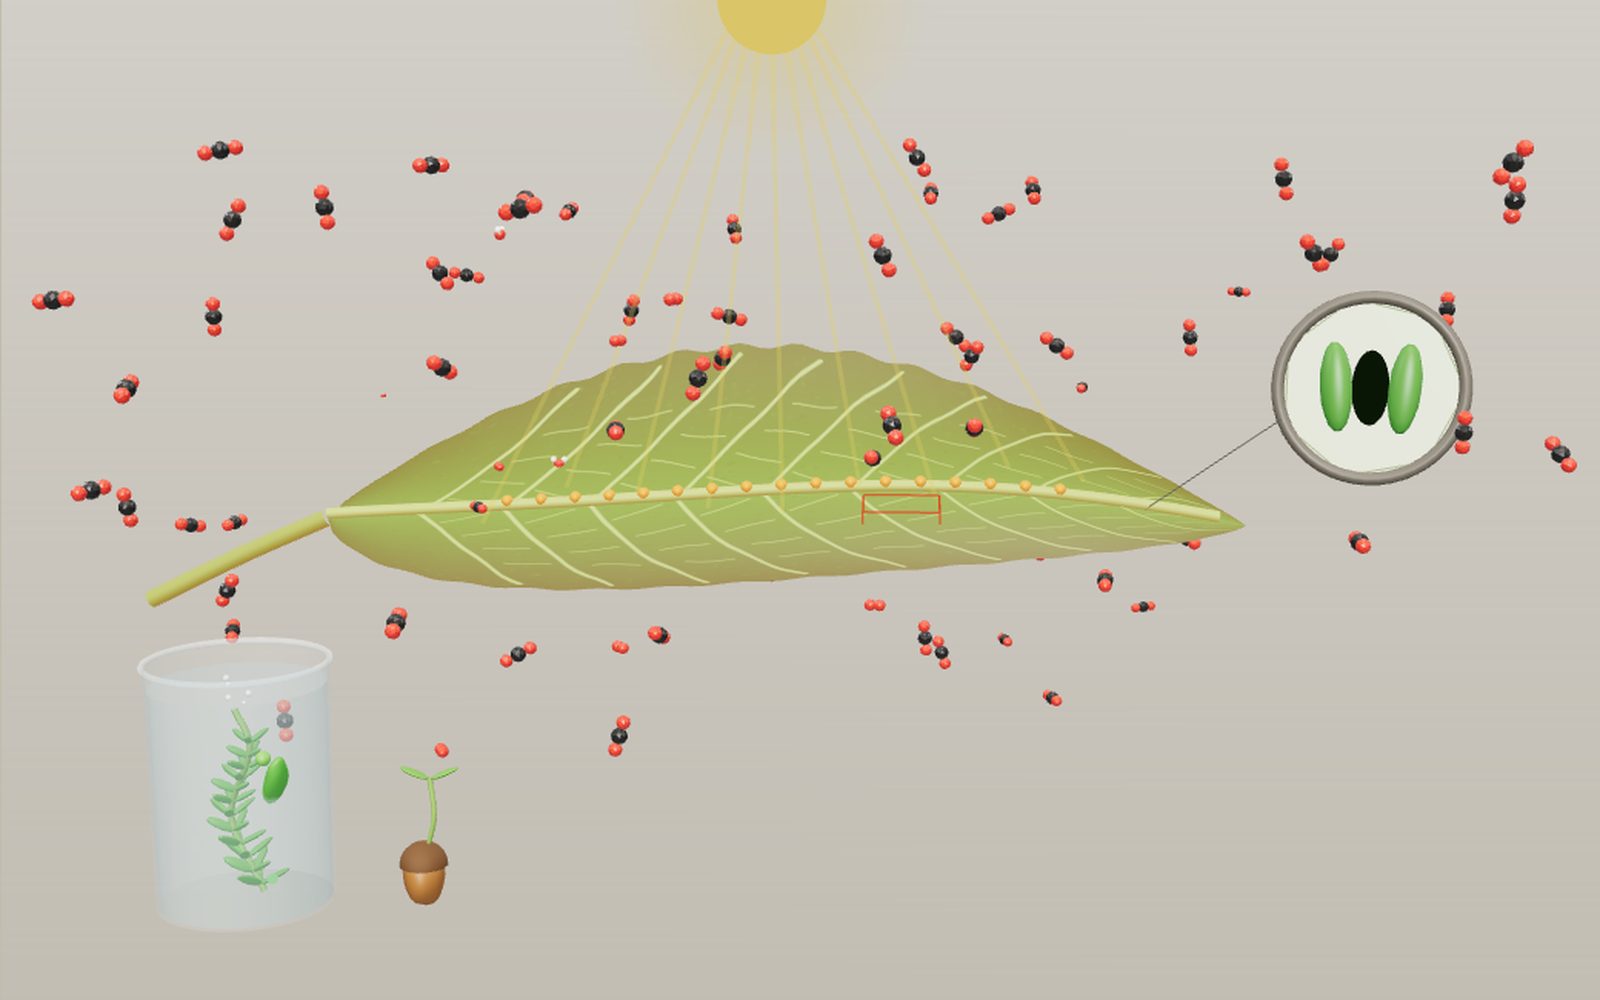
Dieses Gerät kann das 3D-Modell nicht anzeigen. Die Schritte des Rundgangs unten lassen sich als Text lesen.
1 / 8 Ein Blatt im SonnenlichtDieses Blatt ist der Ausgangspunkt. Ziehen Sie die Sonne, um das Licht zu neigen, und beobachten Sie die Luft: CO₂-Moleküle treiben hinein, O₂ verlässt das Blatt, und die Wasserpest im Becherglas sprudelt. Der rote Kasten markiert den Block, den wir als Nächstes herausschneiden.
Ziehen zum Drehen. Mausrad oder zwei Finger zum Zoomen.
Woher kommt das Holz eines Baumes?
Ein Samenkorn wiegt weniger als ein Gramm, und die Eiche, die daraus wächst, kann viele Tonnen wiegen. Der größte Teil dieser Masse stammt nicht aus dem Boden. Er stammt aus der Luft, als Kohlenstoffdioxid, und wurde in grünen Blättern mithilfe der Energie des Lichts zu Zucker umgebaut. Derselbe Vorgang erzeugt auch den Sauerstoff, den wir atmen. Das Biologie-Lehrbuch von OpenStax beschreibt seine Reichweite schlicht: Die Photosynthese treibt 99 Prozent der Ökosysteme der Erde an.
Die Gesamtreaktion passt in eine Zeile: Sechs Moleküle Kohlenstoffdioxid und sechs Moleküle Wasser werden zu einem Zucker und sechs Molekülen Sauerstoff. Diese Zeile verbirgt eine lange Kette von Schritten, die sich über Größen vom ganzen Blatt bis zu einzelnen Proteinen von wenigen Milliardstel Metern Durchmesser erstrecken. Dieses Exponat geht diese Kette hinunter. Es beginnt mit einem Blatt, schneidet einen Block daraus heraus, öffnet einen Chloroplasten und stellt Sie dann auf ein Stück Thylakoidmembran, wo Licht in chemische Energie umgewandelt wird. Drei Regler verändern das Licht, das Kohlenstoffdioxid und die Temperatur, und eine Kurve in der Ecke zeigt, wie die Rate darauf reagiert.
Ein Blatt ist gebaut, um Licht einzufangen und Luft hereinzulassen
Ein Blatt hat zwei Aufgaben, die in entgegengesetzte Richtungen ziehen. Es muss grüne Zellen zum Licht hin ausbreiten, und es muss Luft an diese Zellen lassen und dabei möglichst wenig Wasser verlieren. Seine Schichten lösen dieses Problem.
Oben liegt eine wachsartige Kutikula, die den Wasserverlust bremst, und darunter die Epidermis, meist eine einzige Lage klarer Zellen. Darunter stehen die Palisadenzellen, hohe Säulen, die dicht an dicht gepackt sind. Das Kapitel über Blätter bei OpenStax beschreibt sie als säulenförmige, dicht gepackte Zellen in ein bis drei Lagen, und sie enthalten die meisten Chloroplasten des Blattes. Im Modell ist jede Säule durchsichtig gezeichnet, sodass die Chloroplasten darin als dunkelgrüne Kügelchen zu sehen sind.
Unter der Palisadenschicht ändern sich die Zellen. Das Schwammparenchym besteht aus lockeren, unregelmäßigen Zellen mit Luft dazwischen. Diese Lufträume sind die Lunge des Blattes: Gas, das von der Unterseite hereinkommt, verteilt sich durch sie zu jeder Zelle. Mitten durch den Block verläuft ein Leitbündel, in der das Xylem Wasser aus den Wurzeln heraufbringt und das Phloem Zucker abtransportiert.
Spaltöffnungen tauschen Wasser gegen Kohlenstoffdioxid
Die Blattunterseite ist mit Spaltöffnungen übersät, kleinen Poren, die jeweils zwischen zwei Schließzellen liegen. Wenn sich die Schließzellen mit Wasser füllen und anschwellen, biegen sie sich auseinander und die Pore öffnet sich. Werden sie schlaff, schließt sie sich. Die Schließzellen sind die einzigen Zellen der Epidermis, die Chloroplasten besitzen.
Eine offene Pore ist ein Handel mit einem Preis. Kohlenstoffdioxid kann nur hinein, wenn die Pore offen ist, doch Wasserdampf entweicht auf demselben Weg, denn die Luft im Blattinneren ist fast gesättigt und die Luft draußen meist nicht. Laut OpenStax können bis zu 90 Prozent des Wassers, das eine Pflanze über die Wurzeln aufnimmt, auf diese Weise als Transpiration verloren gehen. Schließzellen reagieren auf Licht, auf den Wasserhaushalt des Blattes und auf Kohlenstoffdioxid, sodass eine Pflanze ihre Spaltöffnungen an einem heißen, trockenen Nachmittag schließen und dafür weniger Photosynthese in Kauf nehmen kann, um ihr Wasser zu behalten.
Im Modell bewegt der Regler Spaltöffnungen die Schließzellen. Dunkelgraue und rote CO₂-Moleküle treiben durch die Poren hinein, und blaue und weiße Wassermoleküle treiben hinaus. Schließen Sie die Poren, und beide Ströme sinken auf null. Der Wert Wasserverlust steigt mit der Öffnung und mit der Temperatur, denn warme Luft kann mehr Wasser aufnehmen und trocknet das Blatt daher schneller aus.
Im Inneren eines Chloroplasten
Jedes grüne Kügelchen in einer Palisadenzelle ist ein Chloroplast. Er hat eine doppelte Hülle um einen wässrigen Innenraum, das Stroma. Im Stroma schwimmt eine dritte Gruppe von Membranen, die Thylakoide, abgeflachte Säckchen, die sich zu Stapeln namens Grana schichten und durch einzelne Membranbänder verbunden sind. Der Raum im Inneren jedes Säckchens ist das Lumen.
Diese Anordnung teilt die Arbeit in zwei Hälften. Die Lichtreaktionen laufen in den Thylakoidmembranen ab und erzeugen zwei Energieträger, ATP und NADPH. Der Calvin-Zyklus läuft im Stroma ab und baut mit ihrer Hilfe aus Kohlenstoffdioxid Zucker auf. Der letzte Maßstab des Exponats zeigt beides zugleich: Die Membran verläuft quer durch die Mitte, das Stroma liegt darüber und das Lumen darunter.
Photosystem II entzieht dem Wasser Elektronen
Licht kommt als Photonen an. Chlorophyll absorbiert rotes und blaues Licht gut und reflektiert Grün, weshalb Blätter grün aussehen. Pflanzen nutzen Wellenlängen von etwa 400 bis 700 nm, was Pflanzenphysiologen als photosynthetisch aktive Strahlung bezeichnen.
Die Photonen werden von Antennenkomplexen eingefangen. OpenStax gibt für jeden Lichtsammelkomplex 300 bis 400 Chlorophyllmoleküle an, dazu Carotinoide. Die Energie eines absorbierten Photons wird von Pigment zu Pigment weitergereicht, bis sie nach etwa einer millionstel Sekunde ein Reaktionszentrum erreicht. Im Photosystem II ist dieses Zentrum ein Chlorophyllpaar namens P680, und die Energie stößt eines seiner Elektronen zu einem Akzeptor hinaus.
P680 braucht nun ein Elektron zurück, und es bekommt eines vom Wasser. Auf der Lumenseite von Photosystem II sitzt ein Cluster aus vier Manganatomen, einem Calciumatom und fünf Sauerstoffatomen. Umena und Kollegen kartierten ihn 2011 mit einer Auflösung von 1,9 Å und fanden vier daran gebundene Wassermoleküle. Der Cluster entzieht dem Wasser die Elektronen eines nach dem anderen. Die Spaltung von zwei Wassermolekülen liefert vier Elektronen, vier Protonen und ein Molekül O₂. OpenStax merkt an, dass etwa 10 Prozent dieses Sauerstoffs von den eigenen Mitochondrien des Blattes verbraucht werden und der Rest in die Luft entweicht.
Im Modell sind gelbe Streifen Photonen und türkisfarbene Kügelchen Elektronen. Jedes Mal, wenn vier Elektronen das Photosystem II verlassen, schwebt ein O₂-Molekül vom Cluster weg, und der O₂-Zähler steigt um eins.
Vom Plastochinon zum NADPH
Das Elektron bleibt nicht an Ort und Stelle. Es wird an Plastochinon (gelbe Kügelchen) übergeben, ein kleines Molekül, das sich in der Membran zum Cytochrom-b6f-Komplex bewegt. Während Elektronen durch b6f laufen, befördert er Protonen aus dem Stroma ins Lumen. Auf der anderen Seite nimmt Plastocyanin (ein blaues Kupferprotein) das Elektron auf und trägt es entlang der Lumenoberfläche zum Photosystem I.
Bis dahin hat das Elektron viel von seiner Energie verloren, daher braucht Photosystem I ein zweites Photon. Sein Reaktionszentrum P700 hebt das Elektron erneut an und gibt es auf der Stromaseite an Ferredoxin weiter. Das Enzym Ferredoxin-NADP⁺-Reduktase (FNR) lädt dann zwei Elektronen auf NADP⁺ und bildet so NADPH. Im Modell verlässt bei jedem zweiten Elektron ein violettes NADPH-Molekül die FNR und macht sich auf den Weg zum Calvin-Zyklus.
Der Protonengradient treibt die ATP-Synthase an
Zwei Dinge haben das Lumen mit Protonen gefüllt: die Wasserspaltung am Photosystem II und das Pumpen an b6f. Das Lumen wird sauer und das Stroma weniger sauer, und die Protonen können nur durch eine einzige Tür zurückströmen. Diese Tür ist die ATP-Synthase, dieselbe Drehmaschine, die das Exponat ATP-Synthase zeigt, mit ihrem Kopf auf der Stromaseite.
Seelert und Kollegen bildeten die Chloroplastenversion im Jahr 2000 mit dem Rasterkraftmikroskop ab und stellten fest, dass ihr Rotorring 14 Untereinheiten hat. Jedes Proton, das hindurchtritt, bewegt den Ring um eine Untereinheit weiter, also drehen 14 Protonen ihn einmal, und eine Umdrehung setzt 3 ATP aus dem Kopf frei. Das sind 14 ÷ 3 ≈ 4,67 Protonen pro ATP. Die roten Kügelchen im Lumen werden zahlreicher, je schneller die Lichtreaktionen laufen, und Sie können zusehen, wie sie durch den Ring ziehen.
Rubisco und der Calvin-Zyklus
Im Stroma sitzt das Enzym, das die eigentliche Fixierung erledigt: Ribulose-1,5-bisphosphat-Carboxylase/-Oxygenase, meist zu Rubisco abgekürzt. Es verbindet ein CO₂ mit einem Zucker aus fünf Kohlenstoffatomen namens RuBP. Das Ergebnis mit sechs Kohlenstoffatomen zerfällt sofort in zwei Moleküle 3-PGA, das drei Kohlenstoffatome hat. OpenStax gliedert den Zyklus in Fixierung, Reduktion und Regeneration.
In der Reduktion machen ATP und NADPH aus 3-PGA G3P, ein Zuckerphosphat mit drei Kohlenstoffatomen. In der Regeneration wird der größte Teil des G3P wieder zu RuBP umgebaut, damit der Zyklus weiterlaufen kann, was weiteres ATP kostet. Weil pro Umlauf nur ein Kohlenstoffatom hinzukommt, braucht es drei Umläufe, um ein überschüssiges G3P zum Export zu gewinnen. Über diese drei Umläufe verbraucht der Zyklus 9 ATP und 6 NADPH. Sechs solche Umläufe ergeben eine Glucose.
Die Schleife im Modell ist im Uhrzeigersinn gezeichnet, mit Rubisco oben. Die Kügelchen wechseln unterwegs die Farbe: Blau für 3-PGA, Orange für G3P, Grün für RuBP. Jedes Mal, wenn ein Kügelchen an Rubisco vorbeikommt, trifft dort ein CO₂-Molekül ein, ATP und NADPH fliegen von der Membran darunter heran, und jede dritte Fixierung schickt ein Zuckersechseck nach rechts davon.
Die Zahlen nachprüfen
Die Buchführung im Exponat wird durch eine einzige Zahl zusammengehalten, das CO₂, das pro Sekunde auf dem Bildschirm fixiert wird. Alles andere folgt aus den Quellen.
- Pro fixiertem CO₂ verbraucht der Calvin-Zyklus 9 ÷ 3 = 3 ATP und 6 ÷ 3 = 2 NADPH.
- Jedes NADPH trägt 2 Elektronen, also brauchen 2 NADPH 4 Elektronen. Vier Elektronen stammen aus der Spaltung von zwei Wassermolekülen, die ein O₂ freisetzt. Pro fixiertem CO₂ verlässt also ein O₂ das Blatt, wie es die Gesamtgleichung sagt.
- Jedes Elektron durchläuft beide Photosysteme, mit je einem Photon an jedem. Vier Elektronen brauchen daher in diesem einfachen linearen Schema 8 Photonen pro O₂.
- 3 ATP pro CO₂ bei 14 Protonen pro 3 ATP bedeuten 14 Protonen durch die ATP-Synthase für jedes CO₂.
Sie können das an den Zählern nachprüfen. Nach einer Weile liegt „ATP gebildet“ nahe beim Dreifachen von „CO₂ fixiert“, „NADPH gebildet“ nahe beim Doppelten und „O₂ ab“ nahe beim gleichen Wert. Sie weichen um eins oder zwei ab, weil jeder Zähler in der Animation zu einem anderen Zeitpunkt weiterspringt.
Die Ratenkurve ist ein Modell, kein gemessenes Blatt. Die Lichtantwort ist eine nichtrechtwinklige Hyperbel, eine in Lehrbüchern übliche Form. Die Bruttorate P löst θP² − (αI + Pc)P + αIPc = 0, wobei I das Licht ist, α = 0,11 die Anfangssteigung, θ = 0,8 die Schärfe des Knicks festlegt und Pc eine Obergrenze ist, die durch Kohlenstoffdioxid und Temperatur bestimmt wird. Die Obergrenze steigt mit CO₂ wie 100 × (C − 50) ÷ (C − 50 + 300) und wird mit einer schiefen Glockenkurve multipliziert, deren Gipfel bei 25 °C liegt. Die Atmung, 3 Einheiten bei 25 °C und sich alle 10 °C verdoppelnd, wird abgezogen, um die Nettorate zu erhalten. Die Raten sind in Modelleinheiten auf einer Skala angegeben, auf der 100 die Obergrenze ist.
Durchgerechnet liefert das Modell diese Werte. Beim Modellstandard von 426 ppm und 25 °C beträgt die Nettorate im Dunkeln −3 (das Blatt atmet nur), bei einem Licht von 200 16,8 und bei 2000 49,4. Die Kurve erreicht 90 Prozent ihrer Obergrenze bei einem Licht von etwa 1274. Erhöhen Sie das CO₂ auf 1000 ppm, steigt der obere Rand der Kurve auf 62,8, während der 90-Prozent-Punkt auf etwa 1636 wandert. Die beste Temperatur im Modell ist 24,5 °C. Der Standardwert von 426 ppm stammt aus der Mauna-Loa-Reihe der NOAA, die für September 2026 einen Monatsmittelwert von 426,07 ppm angibt.
Warum Licht, Kohlenstoffdioxid und Temperatur jeweils eine Grenze setzen
Die Kurve hat zwei Teile. Bei schwachem Licht steigt sie fast geradlinig an: Jedes zusätzliche Photon wird genutzt, und nichts anderes ist knapp. Bei hellem Licht flacht sie ab, weil der Calvin-Zyklus nicht mithalten kann. Rubisco ist langsam und braucht Kohlenstoffdioxid, und mehr Licht gibt ihm nicht mehr davon. Die Anzeige nennt den Faktor, der die Rate bremst.
Deshalb wirken die Regler unterschiedlich. Mehr CO₂ verändert den Teil der Kurve bei schwachem Licht kaum, hebt aber ihren oberen Rand, sodass ein Blatt in einem Gewächshaus mit zugesetztem CO₂ bei hellem Licht am meisten gewinnt. Die Temperatur verändert vor allem die Enzyme und staucht oder streckt daher den ganzen oberen Teil der Kurve. Schließen der Spaltöffnungen senkt das CO₂ im Blattinneren (angezeigt als CO₂ innen) und drückt so die Obergrenze nach unten, auch wenn die Luft draußen unverändert bleibt. Die gestrichelte Linie ist zum Vergleich immer das Standardblatt.
Was das Modell auslässt
Das Modell ist zur Verdeutlichung gezeichnet und zwischen den Ebenen nicht maßstäblich, und die Proteine sind glatte Klumpen statt gemessener Strukturen. Mehrere echte Vorgänge fehlen.
- Rubisco reagiert auch mit Sauerstoff. Diese Nebenreaktion, die Photorespiration, verschwendet Kohlenstoff und wird schlimmer, wenn sich Blätter erwärmen. Das Modell deutet sie nur durch die Form der Temperaturkurve an.
- Pflanzen betreiben außerdem zyklischen Elektronenfluss um das Photosystem I, der zusätzliches ATP ohne NADPH erzeugt. Das Modell zeigt nur den linearen Weg, weshalb seine ATP- und NADPH-Zahlen genau zum Calvin-Zyklus passen.
- C4-Pflanzen und CAM-Pflanzen wie Kakteen konzentrieren CO₂, bevor Rubisco es zu sehen bekommt. OpenStax beschreibt, wie Kakteen CO₂ nachts aufnehmen und ihre Spaltöffnungen tagsüber geschlossen halten. Ihre Kurven sehen ganz anders aus.
- Die echten Temperaturoptima unterscheiden sich zwischen den Arten und verschieben sich, wenn sich Pflanzen an die Temperatur anpassen, bei der sie wachsen, wie Yamori und Kollegen in ihrer Übersichtsarbeit von 2014 zeigen. Der Gipfel bei 25 °C ist hier eine runde Zahl, die für das Modell gewählt wurde.
- Der Wasserverlust wird in Modelleinheiten angegeben, skaliert aus der Öffnung der Spaltöffnungen und aus dem Trocknungsvermögen von Luft bei 50 Prozent Luftfeuchtigkeit, nach der FAO-Formel für den Sättigungsdampfdruck.
Eine kurze Geschichte
Melvin Calvin erhielt 1961 den Nobelpreis für Chemie für seine Forschung zur Kohlenstoffdioxid-Assimilation in Pflanzen, die Arbeit, die nachzeichnete, wie der Kohlenstoff durch den heute nach ihm benannten Zyklus wandert. Viele Lehrbücher sprechen vom Calvin-Benson-Zyklus, um einen weiteren Wissenschaftler einzubeziehen, der daran gearbeitet hat. Peter Mitchells chemiosmotische Theorie, die erklärt, wie ein Protonengradient die ATP-Synthese sowohl in Mitochondrien als auch in Chloroplasten antreibt, brachte 1978 den Nobelpreis für Chemie ein. 1988 teilten sich Johann Deisenhofer, Robert Huber und Hartmut Michel den Chemiepreis für die Bestimmung der dreidimensionalen Struktur eines photosynthetischen Reaktionszentrums, des ersten Membranproteins, das Atom für Atom aufgeklärt wurde. Die Struktur des wasserspaltenden Clusters im Photosystem II folgte 2011.
Photonen und gespeicherte Energie bilanzieren
Die Zahl von acht Photonen beschreibt ein ideales Budget des Elektronentransfers, nicht den Anteil des Sonnenlichts, der zu einer Ernte wird. Vier Elektronen müssen jeweils zweimal angeregt werden, um zwei NADPH zu liefern. Teilt man ein fixiertes CO₂ durch acht absorbierte Photonen, ergibt sich eine theoretische Grenzquantenausbeute von 0,125 CO₂ pro Photon. Braucht ein hypothetisches Blatt stattdessen zehn absorbierte Photonen pro fixiertem CO₂, wird die Ausbeute 0,100. Das sind Rechenbeispiele. Die zweite Zahl ist kein allgemein gemessener Bedarf: Zusätzliche ATP-Bildung, Photorespiration und andere Verluste verändern den Bedarf je nach Bedingungen.
Bei einem hypothetischen Lichtstrahl, der 800 Mikromol absorbierter Photonen pro Quadratmeter und Sekunde liefert, erlaubte das Budget von acht Photonen 100 Mikromol CO₂-Fixierung pro Quadratmeter und Sekunde. Ein Budget von zehn Photonen erlaubte 80. Keines der beiden Ergebnisse sagt die Nettorate des Exponats voraus, denn deren senkrechte Achse ist in Modelleinheiten angegeben und enthält einen eigenen Atmungsterm. Auch haben der Photonenfluss und der Kohlenstofffluss unterschiedliche Bedeutungen, obwohl beide Mikromol verwenden. Aus der Photonenzahl allein lässt sich die Energieeffizienz nicht bestimmen: Blaue Photonen tragen mehr Energie als rote.
Die Übersichtsarbeit von Zhu, Long und Ort von 2008 schätzte die maximale Umwandlungseffizienz von Sonnenenergie in Biomasse auf 4,6 % für C3-Pflanzen und 6 % für C4-Pflanzen bei 30 °C und 380 ppm CO₂. Die Konzentration gehört zu den Annahmen dieser Arbeit, nicht zur heutigen Luft. Diese Prozentwerte verwenden das gesamte einfallende Sonnenspektrum als Nenner. Sie dürfen nicht direkt mit einer Ausbeute pro absorbiertem Photon oder mit einer allein aus sichtbarem Licht berechneten Effizienz verglichen werden. Ein großer Teil des Sonnenlichts liegt außerhalb des üblichen photosynthetisch aktiven Bandes; Reflexion und Stoffwechselkosten verringern den Rest.
Als Übung zur Energiebilanz nehmen wir an, ein Bestand fange über eine gewählte Fläche und einen gewählten Zeitraum 1000 MJ Gesamtsonnenenergie ab. Eine angenommene Umwandlungseffizienz von 1 % speichert 10 MJ in Biomasse; 2 % speichern 20 MJ. Diese Prozentwerte sind veranschaulichende Annahmen zur Leistung auf dem Feld, keine Messungen für jede Kulturpflanze. Sie enthalten weder ein automatisches Versprechen essbarer Erträge noch die Behauptung, dass alles abgefangene Licht ein arbeitendes Blatt erreicht. Auch Wurzeln und Stängel enthalten gespeicherte chemische Energie. Eine kurze Messung an einem gut beleuchteten Blatt und eine Ernte über die ganze Saison beantworten verschiedene Fragen.
Wo Kompensation und Sättigung sich unterscheiden
Am Lichtkompensationspunkt hält die photosynthetische Kohlenstoffaufnahme (brutto) dem atmungsbedingten Kohlenstoffverlust genau die Waage, sodass der Nettoaustausch null ist. Darunter kann die Pflanze weiterhin Photosynthese betreiben, doch die Atmung gewinnt in der Bilanz. Bei Sättigung bringt mehr Licht kaum noch zusätzliche Kohlenstoffaufnahme. Das sind verschiedene Stellen der Kurve, nicht zwei Namen für den ersten Knick.
Bei 426 ppm CO₂ in der Luft, einer Blatttemperatur von 25 °C und zu 100 % geöffneten Spaltöffnungen ergibt der Code eine Lichtstärke am Kompensationspunkt von etwa 27,6 Mikromol Photonen pro Quadratmeter und Sekunde. Dieser Wert entsteht, indem man die Nettoratengleichung des Exponats nach null auflöst. Es ist eine Rechnung für dieses Modell, keine veröffentlichte Schwelle für Eichenblätter. Der Regler arbeitet mit ganzzahligen Lichtwerten, daher ist 28 eine praktische Einstellung nahe am Nulldurchgang. Bei Licht null beträgt die Nettorate −3 Modelleinheiten; dass sie null kreuzt, bedeutet nicht, dass die Atmung aufgehört hat.
Die 90-Prozent-Marke verwendet die Bruttophotosynthese im Verhältnis zu ihrer berechneten Obergrenze. Sie liegt bei diesen Einstellungen nahe 1274. Die Rate dort hat kein mathematisch flaches Plateau erreicht, und von der im Diagramm gezeigten Nettorate ist die Atmung abgezogen. Ein anderer Prozentsatz ergäbe eine andere Sättigungsmarke. Darum sollte ein numerischer Sättigungswert immer sein Kriterium nennen.
Ein an Schatten angepasstes Blatt kann eine geringere Atmungsrate haben und bei schwächerem Licht einen Netto-Kohlenstoffgewinn erreichen. Ein Sonnenblatt kann eine höhere Maximalrate erreichen. Das Exponat schaltet nicht zwischen gemessenen Parametersätzen für Sonnen- und Schattenblätter um. Auch enthält seine glatte Antwort keine Schäden durch übermäßiges Licht. In einem echten Blätterdach können obere Blätter mehr Licht erhalten, als sie verarbeiten können, während Blätter darunter weiter lichtbegrenzt bleiben. Die Forschung zur Antennengröße untersucht, ob eine gleichmäßigere Verteilung des Lichts die Produktion des gesamten Blätterdachs verbessern könnte, statt nur die Absorption oben zu erhöhen.
C3-Blätter, Mais und ein Kaktus
Die Namen C3 und C4 beziehen sich auf die Zahl der Kohlenstoffatome in den ersten stabilen Produkten ihres jeweiligen anfänglichen Fixierungsweges. In einem C3-Blatt fügt Rubisco CO₂ direkt an RuBP an, und die unmittelbaren stabilen Produkte sind das 3-PGA mit drei Kohlenstoffatomen. Weizen und Reis nutzen diesen Weg. Rubisco reagiert auch mit Sauerstoff. Diese Oxygenierung startet die Photorespiration, einen Rückgewinnungsweg, der Energie verbraucht und etwas zuvor fixierten Kohlenstoff freisetzt. Sie ist nicht dasselbe wie die Atmung der Mitochondrien im Dunkeln.
Mais und Zuckerrohr sind C4-Pflanzen. Ihre anfängliche Aufnahme nutzt die PEP-Carboxylase in Mesophyllzellen und erzeugt Verbindungen mit vier Kohlenstoffatomen. Diese Verbindungen tragen den Kohlenstoff zu den Bündelscheidenzellen, wo das CO₂ nahe bei Rubisco freigesetzt wird. Der Calvin-Zyklus arbeitet weiterhin; der C4-Stoffwechsel versorgt ihn mit einer stärker konzentrierten CO₂-Quelle. Diese Pumpe zu unterhalten kostet zusätzliche Energie, deshalb ist C4 nicht bei jeder Temperatur und jeder Lichtstärke eine uneingeschränkte Verbesserung. Sein Vorteil ist besonders dort nützlich, wo Hitze und wenig CO₂ im Inneren sonst die Photorespiration begünstigen würden.
Viele Kakteen nutzen CAM. Sie nehmen einen großen Teil ihres äußeren CO₂ nachts auf und speichern den Kohlenstoff vorübergehend in organischen Säuren. Tagsüber liefert der Säureabbau CO₂, während die Spaltöffnungen dichter geschlossen bleiben können. C4 trennt die anfängliche Aufnahme und den Calvin-Zyklus meist nach Zelltypen; CAM trennt einen großen Teil der Arbeit nach Nacht und Tag. Diese Unterschiede erklären, warum es irreführend wäre, einen Kaktus in ein Modell eines gewöhnlichen C3-Blattes bei Tag zu stecken.
Die Carboxylierungskapazität von Rubisco ist also nur ein Teil des Problems. Auch die Anlieferung des Substrats zählt. Schließende Spaltöffnungen können die Kohlenstoffaufnahme begrenzen, obwohl die Enzyme intakt sind, und mehr CO₂ außerhalb des Blattes kann nur dann helfen, wenn genug davon den Chloroplasten erreicht. Der Regler Blatttyp bietet ein C3-Sonnenblatt, ein C3-Schattenblatt und ein maisähnliches C4-Blatt, und alle drei sind Modellkurven. Die C4-Einstellung sättigt ihre CO₂-Antwort nahe der heutigen Luft, hat einen Kompensationspunkt nahe null und ein wärmeres Optimum und beginnt mit einer geringeren Steigung, die für das zusätzliche ATP der Pumpe steht. Sie berechnet weder den Umsatz von Rubisco noch die Oxygenierung noch die Pumpe selbst. Das Schattenblatt folgt Boardmans Übersicht über Sonnen- und Schattenpflanzen: weniger Kapazität und weniger Atmung, sodass es bei schwachem Licht die Gewinnschwelle erreicht und früh sättigt. Eine CAM-Einstellung gibt es nicht, und keine der drei lässt sich verwenden, um tatsächliche Ernteerträge zu ordnen.
Was grüne Blätter nicht verraten
Ein grünes Aussehen beweist nicht, dass grüne Photonen die Photosynthese nicht antreiben können. Isoliertes Chlorophyll absorbiert blaue und rote Bänder stark, doch ein Blatt ist eine dicke, streuende Struktur mit vielen Chloroplasten. Etwas grünes Licht entkommt; etwas wandert weiter durch das Gewebe, bevor es absorbiert wird. Das Absorptionsspektrum einer Pigmentlösung und das Wirkungsspektrum eines ganzen Blattes sind keine austauschbaren Messungen.
Die Studie von Liu und van Iersel von 2021 untersuchte Salat unter verschiedenen Lichtspektren und Photonenflüssen. Bei geringer Intensität hatte grünes Licht eine niedrigere Quantenausbeute bezogen auf das einfallende Licht, weil die Absorption geringer war. Bei hoher Intensität gehörte seine Quantenausbeute zu den höchsten, in Übereinstimmung mit einer gleichmäßigeren Verteilung der Anregung durch das Blatt. Das ist ein bedingtes Ergebnis, keine Empfehlung, dass Lampen nur mit grünem Licht immer bessere Pflanzen hervorbringen. Der Regler Lichtfarbe folgt dem Muster nur grob. Er ändert allein die Anfangssteigung der Kurve (Grün am niedrigsten, dann Blau, Weiß und Rot), sodass sich die Farben bei schwachem Licht am stärksten unterscheiden und bei hellem Licht fast zusammenfallen. Diese Faktoren sind Modellwerte, und das Exponat simuliert keine tiefenabhängige Absorption.
Das Missverständnis über den Boden verlangt eine andere Unterscheidung. Der Kohlenstoff im neuen Holz stammt hauptsächlich aus dem CO₂ der Luft, doch ein frisch gewogener Baum enthält auch viel Wasser. Wasser gelangt über die Wurzeln hinein, und mineralische Nährstoffe aus dem Boden bleiben unverzichtbar, auch wenn sie nicht die Hauptquelle des organischen Trockenkohlenstoffs sind. Ein Topf, der wenig Erde verliert, während seine Pflanze an Masse zunimmt, spricht dagegen, dass der Boden die Hauptquelle ist; für sich genommen benennt er nicht jede Quelle des Zuwachses. Der Vergleich der Trockenmasse und die Verfolgung des Kohlenstoffs sind stärkere Tests als das Wiegen einer nassen Pflanze allein.
Ebenso ist das Zuckersymbol auf dem Bildschirm ein Buchführungssymbol, keine Behauptung, dass ein Chloroplast nach jeder Fixierung ein fertiges Glucosemolekül ausstößt. Der Calvin-Zyklus exportiert nach mehreren Umläufen ein Produkt mit drei Kohlenstoffatomen, und der weitere Stoffwechsel bildet Zucker und anderes Material. Sichtbare Blasen würden freigesetztes Gas anzeigen, nicht die Kohlenstoffquelle des wachsenden Stängels.
Blasen von der Wasserpest und Licht im Winkel
In Schulen wird Photosynthese mit einer Wasserpflanze gemessen. Das Protokoll von Practical Biology der Royal Society of Biology legt ein abgeschnittenes Stück Elodea oder Cabomba unter einer Lampe ins Wasser und zählt die Blasen, die über 1 Minute aus der Schnittstelle aufsteigen, wiederholt dann die Zählung und bildet einen Mittelwert. Es nennt auch die Annahmen: Die Blasen gelten als reiner Sauerstoff, die Sauerstoffproduktion gilt als proportional zur Rate, und die Blasen gelten als gleich groß. Das Licht einer kleinen Lampe nimmt mit dem Quadrat der Entfernung ab, sodass bei doppelt so weit entfernter Lampe etwa ein Viertel des Lichts übrig bleibt.
Das Becherglas auf der Bühne führt denselben Versuch im Modell durch. Seine Zahl pro Minute ist die Nettorate des Modells mal einem festen Faktor, sie zeigt also Richtung und Verhältnis, nicht eine Zahl, wie Sie sie im Klassenzimmer sähen. Die Wasserpest wird als C3-Wasserpflanze behandelt, deshalb ändert der Regler Spaltöffnungen offen nichts an ihr.
Die Sonne lässt sich ziehen. Licht, das schräg einfällt, verteilt sich auf mehr Blattfläche, und das Licht pro Quadratmeter Blatt nimmt mit dem Kosinus des Winkels zur senkrechten Richtung ab. Bei 60 Grad erhält ein Blatt halb so viel, wie es bekäme, wenn die Sonne genau darüber stünde. Die Anzeige zeigt beide Zahlen: Licht ist die Stärke der Quelle, und Am Blatt ist das, was die Ratenkurve verwendet.
Probieren Sie es am Bildschirm aus
- Lassen Sie die Regler auf ihren Anfangswerten und ziehen Sie die Sonne zum Horizont hinunter. Am Blatt fällt mit dem Kosinus des Winkels, während Licht gleich bleibt, die Strahlen werden dünner, und die Wasserpest wird langsamer. Ihre Blasen pro Minute sind Modellwerte.
- Stellen Sie Licht auf 0. Die Zeile unter dem Titel wechselt zu „gibt CO₂ ab“, die Molekülströme kehren sich um, und die Wasserpest hört auf. Erhöhen Sie das Licht langsam, bis Nettorate die 0 kreuzt. Das ist der Kompensationspunkt, in diesem Modell etwa 28 µmol/m²/s bei 426 ppm und 25 °C.
- Stellen Sie Licht auf 2000 und vergleichen Sie den Punkt mit der Marke 90 %. Erhöhen Sie dann CO₂ in der Luft auf 1000. Die CO₂-Wolke um das Blatt wird dichter, und die obere Kurve steigt, weil sich die Kohlenstoffobergrenze geändert hat und die Lampe nicht.
- Erhöhen Sie Blatttemperatur auf 40. Der Wasserverlust steigt, das Blatt vergilbt und hängt, und die Rate fällt. Verringern Sie den Wert von Spaltöffnungen offen und beobachten Sie die vergrößerte Spaltöffnung beim Schließen: Das Blatt verliert weniger Wasser, und CO₂ innen sinkt.
- Stellen Sie Blatttyp auf C4 und Lichtfarbe auf Grün. Gehen Sie dann mit Maßstab hinunter zur Thylakoidmembran und folgen Sie den Elektronen vom Photosystem II zum NADPH. Die Zähler für ATP, NADPH und fixiertes CO₂ halten das oben beschriebene Verhältnis 3 zu 2 zu 1 ein; es sind keine unabhängigen Messungen.
Fragen
Woher kommt der Sauerstoff der Photosynthese?
Er stammt aus Wasser, nicht aus Kohlenstoffdioxid. Photosystem II entzieht dem Wasser Elektronen, und die Spaltung von zwei Wassermolekülen setzt ein O₂ frei. Der Kohlenstoff aus CO₂ wird in organische Moleküle eingebaut. Die Gesamtgleichung ist keine Atom-für-Atom-Rechnung des Sauerstoffaustauschs mit dem Wasser.
Warum sind Blätter grün?
Chlorophyll absorbiert rotes und blaues Licht stark und reflektiert oder transmittiert Grün. Das bedeutet nicht, dass grünes Licht nutzlos ist. Absorbiertes grünes Licht kann die Photosynthese tiefer im Blatt antreiben, besonders bei starker Beleuchtung.
Was ist der Unterschied zwischen den Lichtreaktionen und dem Calvin-Zyklus?
Die Lichtreaktionen laufen in der Thylakoidmembran ab und machen aus Licht ATP und NADPH, wobei Sauerstoff frei wird. Der Calvin-Zyklus läuft im Stroma ab und nutzt dieses ATP und NADPH, um CO₂ zu Zucker zu fixieren. Der alte Name „Dunkelreaktionen“ ist irreführend, denn der Zyklus läuft bei Tageslicht, wenn ATP und NADPH gebildet werden.
Warum steigt die Rate bei hellem Licht nicht weiter?
Oberhalb einer bestimmten Lichtstärke wird der Calvin-Zyklus zum Engpass. Rubisco kann Kohlenstoffdioxid nur mit begrenzter Geschwindigkeit fixieren und benötigt CO₂, das durch die Spaltöffnungen ins Blatt gelangt. Mehr Licht ändert dann nichts, aber mehr CO₂ oder eine bessere Temperatur können es.
Warum schließen Pflanzen ihre Spaltöffnungen?
Um Wasser zu sparen. Eine offene Spaltöffnung lässt CO₂ herein, aber auch Wasserdampf hinaus, und bis zu 90 Prozent des Wassers, das eine Pflanze aufnimmt, können auf diese Weise verloren gehen. An einem heißen, trockenen Tag schützt das Schließen der Poren die Pflanze auf Kosten der Photosynthese.
Wie viele Photonen braucht es für ein O₂?
Im einfachen linearen Schema acht. Für die Freisetzung eines O₂ aus zwei Wassermolekülen werden vier Elektronen gebraucht, und jedes Elektron wird zweimal angehoben, einmal am Photosystem II und einmal am Photosystem I.
Ist die ATP-Synthase des Chloroplasten dieselbe wie die in Mitochondrien?
Sie arbeitet auf dieselbe Weise und hat dieselben Teile, aber ihr Rotorring hat in Blattchloroplasten 14 Untereinheiten, mehr als der Ring in tierischen Mitochondrien. Ein größerer Ring bedeutet mehr Protonen pro ATP. Im Exponat ATP-Synthase können Sie die Ringgröße ändern.
Kann grünes Licht die Photosynthese antreiben?
Ja. Grüne Photonen, die im Inneren eines Blattes absorbiert werden, tragen zur Photosynthese bei. Die geringere Absorption an der Oberfläche kann ihnen erlauben, tiefere Chloroplasten zu erreichen; der Nutzen hängt von der Intensität und vom Blattaufbau ab.
Umgehen C4-Pflanzen den Calvin-Zyklus?
Nein. Sie konzentrieren CO₂, bevor sie es Rubisco und dem Calvin-Zyklus zuführen. Der zusätzliche Weg zur Kohlenstoffkonzentrierung kostet Energie.
Ist der Kompensationspunkt der Ort, an dem die Photosynthese beginnt?
Nein. Er ist der Punkt, an dem die photosynthetische Aufnahme der atmungsbedingten Abgabe die Waage hält. Darunter kann die Photosynthese weitergehen, obwohl der Netto-Kohlenstoffaustausch negativ ist.
Begriffe
- Spaltöffnung (Plural Spaltöffnungen): eine Pore in der Blattoberfläche zwischen zwei Schließzellen.
- Mesophyll: das innere Gewebe eines Blattes, mit einer Palisadenschicht und einer Schwammschicht.
- Chloroplast: das Organell, in dem die Photosynthese stattfindet.
- Thylakoid: ein abgeflachtes Membransäckchen im Chloroplasten; ein Stapel davon ist ein Granum.
- Stroma: die Flüssigkeit um die Thylakoide, in der der Calvin-Zyklus läuft.
- Lumen: der Raum im Inneren eines Thylakoids, in dem sich Protonen sammeln.
- Photosystem: ein Proteinkomplex mit einer Antenne aus Pigmenten und einem Reaktionszentrum, der Licht nutzt, um ein Elektron zu bewegen.
- NADPH: ein Elektronenträger, der von den Lichtreaktionen gebildet und im Calvin-Zyklus zur Reduktion von Kohlenstoff verwendet wird.
- Rubisco: das Enzym, das CO₂ an RuBP anfügt.
- G3P: Glycerinaldehyd-3-phosphat, der Zucker mit drei Kohlenstoffatomen, den der Calvin-Zyklus exportiert.
- Transpiration: der Verlust von Wasserdampf einer Pflanze, hauptsächlich durch die Spaltöffnungen.
- Lichtsättigung: die Lichtstärke, oberhalb der die Photosyntheserate kaum noch steigt.
Quellen
OpenStax, Biology 2e, 8.1 Overview of Photosynthesis (99 Prozent der Ökosysteme, Chloroplast, Thylakoid, Granum, Stroma, Lumen, Spaltöffnungen auf der Unterseite). https://openstax.org/books/biology-2e/pages/8-1-overview-of-photosynthesis (geprüft am 16. Oktober 2026)
OpenStax, Biology 2e, 8.2 The Light-Dependent Reactions of Photosynthesis (400 bis 700 nm, 300 bis 400 Chlorophylle pro Antenne, eine millionstel Sekunde, P680, P700, Wasserspaltung, etwa 10 Prozent des O₂ von Mitochondrien verbraucht, Plastochinon, Cytochrom-Komplex, Plastocyanin). https://openstax.org/books/biology-2e/pages/8-2-the-light-dependent-reactions-of-photosynthesis (geprüft am 16. Oktober 2026)
OpenStax, Biology 2e, 8.3 Using Light Energy to Make Organic Molecules (Rubisco, RuBP, 3-PGA, G3P, drei Umläufe pro exportiertem G3P, 6 ATP und 6 NADPH in der Reduktion plus 3 ATP in der Regeneration, Kakteen). https://openstax.org/books/biology-2e/pages/8-3-using-light-energy-to-make-organic-molecules (geprüft am 16. Oktober 2026)
OpenStax, Biology 2e, 30.4 Leaves (Kutikula, Epidermis, Palisaden- und Schwammparenchym, Schließzellen, Leitbündel). https://openstax.org/books/biology-2e/pages/30-4-leaves (geprüft am 16. Oktober 2026)
OpenStax, Biology 2e, 30.5 Transport of Water and Solutes in Plants (bis zu 90 Prozent des Wassers durch Transpiration verloren, Reaktionen der Schließzellen). https://openstax.org/books/biology-2e/pages/30-5-transport-of-water-and-solutes-in-plants (geprüft am 16. Oktober 2026)
NOAA Global Monitoring Laboratory, Trends in Atmospheric Carbon Dioxide (Mauna Loa, Monatsmittel 426,07 ppm, September 2026). https://gml.noaa.gov/ccgg/trends/ (geprüft am 16. Oktober 2026)
Umena Y, Kawakami K, Shen J-R, Kamiya N, Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å, Nature 473, 55 (2011) (Mn4CaO5-Cluster, vier gebundene Wassermoleküle). https://www.nature.com/articles/nature09913 (geprüft am 16. Oktober 2026)
Seelert H, Poetsch A, Dencher NA, Engel A, Stahlberg H, Müller DJ, Proton-powered turbine of a plant motor, Nature 405, 418 (2000) (14 Untereinheiten im Ring der Chloroplasten-ATP-Synthase). https://www.nature.com/articles/35013148 (geprüft am 16. Oktober 2026)
Yamori W, Hikosaka K, Way DA, Temperature response of photosynthesis in C3, C4, and CAM plants: temperature acclimation and temperature adaptation, Photosynthesis Research 119, 101 (2014). https://link.springer.com/article/10.1007/s11120-013-9874-6 (geprüft am 16. Oktober 2026)
FAO, Crop evapotranspiration, Irrigation and Drainage Paper 56, chapter 3 (Sättigungsdampfdruck, Gleichung 11). https://www.fao.org/4/x0490e/x0490e07.htm (geprüft am 16. Oktober 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1961 (Melvin Calvin). https://www.nobelprize.org/prizes/chemistry/1961/summary/ (geprüft am 16. Oktober 2026)
NobelPrize.org, The Nobel Prize in Chemistry 1978 (Peter Mitchell). https://www.nobelprize.org/prizes/chemistry/1978/summary/ (geprüft am 16. Oktober 2026)
NobelPrize.org, Press release: The Nobel Prize in Chemistry 1988 (Struktur eines photosynthetischen Reaktionszentrums). https://www.nobelprize.org/prizes/chemistry/1988/press-release/ (geprüft am 16. Oktober 2026)
Zhu, Long and Ort (2008), What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? Eintrag und Zusammenfassung der University of Illinois (4,6 %, 6 %, Annahmen 30 °C, 380 ppm). https://experts.illinois.edu/en/publications/what-is-the-maximum-efficiency-with-which-photosynthesis-can-conv (HTTP 200, geprüft am 23. Oktober 2026)
Ort, Zhu and Melis (2011), Optimizing Antenna Size to Maximize Photosynthetic Efficiency, Plant Physiology (Lichtverteilung im Blätterdach, Quantenausbeute, Antwortkurven). https://pmc.ncbi.nlm.nih.gov/articles/PMC3014228/ (HTTP 200, geprüft am 23. Oktober 2026)
Royal Society of Biology, Practical Biology, Investigating factors affecting the rate of photosynthesis (Blasenzählung an der Wasserpest, Annahmen, Licht und Abstand). https://practicalbiology.org/energy/photosynthesis/investigating-factors-affecting-the-rate-of-photosynthesis.html (geprüft am 26. Oktober 2026)
Boardman (1977), Comparative photosynthesis of sun and shade plants, Annual Review of Plant Physiology 28. https://doi.org/10.1146/annurev.pp.28.060177.002035 (geprüft am 26. Oktober 2026)
Liu and van Iersel (2021), Photosynthetic Physiology of Blue, Green, and Red Light, Frontiers in Plant Science (Salat, intensitätsabhängige Antwort auf grünes Licht). https://pmc.ncbi.nlm.nih.gov/articles/PMC7977723/ (HTTP 200, geprüft am 23. Oktober 2026)
Text und Simulation: CC BY-NC-SA 4.0, soweit nicht anders angegeben.
Weitere Exponate
Tiersehen: Die Welt durch die Augen von 69 Tieren erleben
Einen roten Ball auf grünem Rasen finden Sie leicht, ein Hund oft nicht. Eine Honigbiene erkennt an derselben Blüte ein Muster, das Ihnen verborgen bleibt.

Warum sind Mammutbäume so groß? Wachstum und Jahresringe
Am Fuß des 83,8 m hohen, etwa 2200 Jahre alten General Sherman Tree stehen, seinen Stamm besteigen und den Zug auf das Wasser in der Höhe untersuchen.
Wie läuft ein Pferd? Schritt, Trab, Galopp und Renngalopp
1878 zeigten Muybridges Kameras, dass ein galoppierendes Pferd tatsächlich alle vier Füße gleichzeitig vom Boden hebt, aber mit unter den Körper gezogenen Beinen. Manche schnellen Tiere verlassen den Boden nie.

So funktioniert Genom-Editierung mit CRISPR-Cas9
Eine Guide-RNA liest nur 20 Buchstaben der DNA, und das genügt meist, um eine einzige Stelle unter den 3 Milliarden Basenpaaren eines menschlichen Genoms zu finden.

ATP-Synthase: Funktion und Rotation selbst untersuchen
In Mitochondrien dreht sich der Rotor der ATP-Synthase etwa 100-mal pro Sekunde. Jede volle Umdrehung setzt drei ATP-Moleküle frei.

Dinosaurier-Größenvergleich: 172 Tiere neben einem Menschen
Ein 600 m großer Park mit 172 Urzeittieren in Originalgröße, von den ersten Dinosauriern bis T. rex, nach Zeitaltern geordnet.