图 69原理馆
光合作用原理:从叶片深入类囊体膜
充足阳光下,叶片从二氧化碳含量仅约百万分之 426 的空气中吸取二氧化碳,用它合成糖。
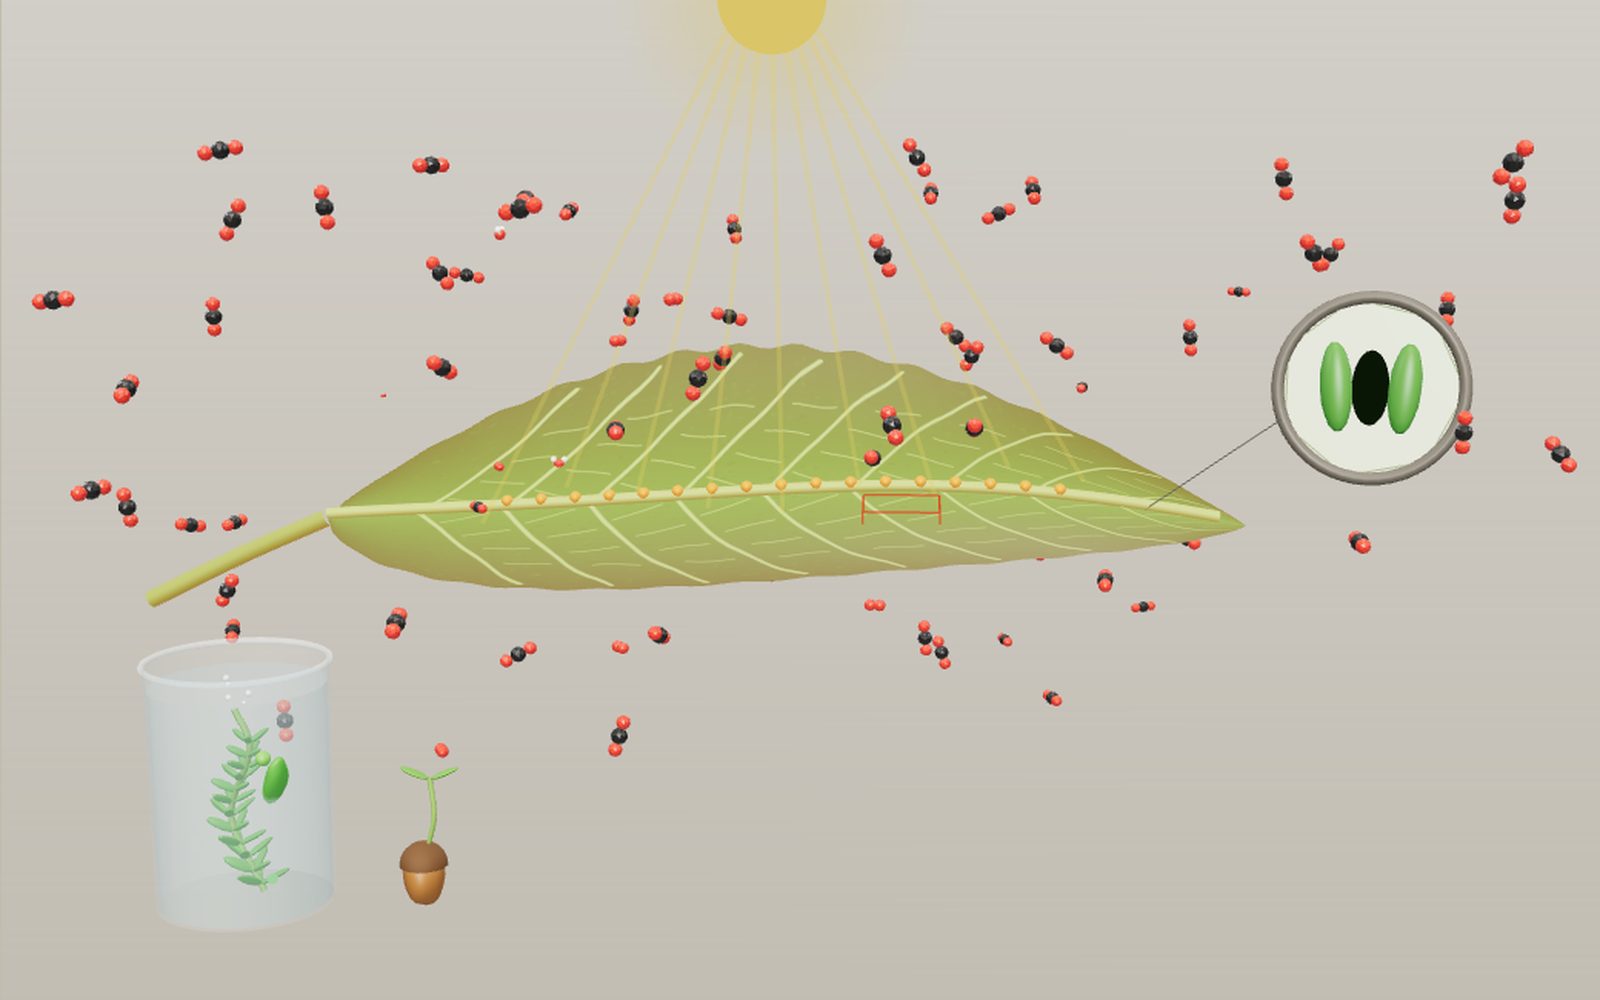
这台设备无法显示 3D 模型。下面的讲解步骤可以直接阅读文字。
1 / 8 阳光下的叶片从这片叶子开始。拖动太阳改变光的入射角,再观察空气:CO₂ 分子飘入,O₂ 离开,烧杯中的水草冒泡。红框标出下一步切出的组织块。
拖动可旋转,滚轮或双指缩放。
树木的木材从哪里来?
一粒种子不到一克重,由它长成的橡树却能重达许多吨。这些质量大多不是来自土壤,而是来自空气中的二氧化碳。绿色叶片利用光能,在内部把二氧化碳转变成糖。我们呼吸的氧气也由同一过程产生。OpenStax 的生物学教材用一句话说明了光合作用的影响范围:地球上 99% 的生态系统依靠光合作用获得能量。
总反应只需一行就能写完:六个二氧化碳分子与六个水分子变成一个糖分子和六个氧分子。但这一行背后隐藏着一长串步骤,涉及的尺度从整片叶子一直到宽度只有几纳米的单个蛋白质。本展品沿着这条链逐层深入。从一片叶子开始,切出一个组织块,打开其中一个叶绿体,再来到一小片把光能转化成化学能的类囊体膜上。三个滑块分别改变光照、二氧化碳和温度,角落的曲线显示速率如何响应。
叶片既要接收光,也要让空气进入
叶片有两项相互牵制的任务。它要让绿色细胞铺展开来接受光照,又要让空气到达这些细胞,同时尽可能少地失去水分。分层结构解决了这个问题。
最上面覆盖着蜡质角质层,能减缓水分流失。其下是表皮,通常由一层透明细胞组成。再下面是栅栏细胞,一根根高柱紧密并排。OpenStax 关于叶片的章节将它们描述为排列紧密、分成一至三层的柱状细胞。叶片的大多数叶绿体都在这里。模型把每根柱子画成透明的,内部的叶绿体便显示为深绿色小珠。
栅栏层下面的细胞形态有所不同。海绵组织由疏松、不规则的细胞构成,细胞间留有空气。这些气隙相当于叶片的肺:从下表面进入的气体通过它们扩散到每个细胞。一条叶脉穿过组织块中间,其中木质部把根部的水向上输送,韧皮部则把糖运走。
气孔以水分换取二氧化碳
叶片下表面散布着气孔,每个小孔夹在两个保卫细胞之间。保卫细胞吸水膨胀时向两侧弯曲,使孔口打开;失去膨压时,孔口就关闭。保卫细胞是表皮中唯一含叶绿体的细胞。
打开气孔有所得,也有代价。只有孔口打开,二氧化碳才能进入,但水蒸气也会沿同一路径逸出,因为叶片内部的空气几乎达到水汽饱和,外界通常并非如此。据 OpenStax,植物经根部吸收的水分中,最多可能有 90% 通过这种蒸腾作用流失。保卫细胞会响应光照、叶片水分状况和二氧化碳,因此植物能在炎热干燥的下午关闭气孔,以降低光合作用为代价保存水分。
模型中的「气孔」滑块会移动保卫细胞。深灰色与红色组成的 CO₂ 分子飘过孔口进入,蓝白色的水分子则向外飘出。关闭孔口,两股流动都会降至零。「水分流失」数值随开度和温度上升,因为暖空气能容纳更多水汽,使叶片干得更快。
叶绿体内部
栅栏细胞里的每颗绿色小珠都是一个叶绿体。它外面包着双层膜,内部是称为基质的水性空间。基质中悬浮着第三套膜结构,即类囊体。这些扁平囊袋堆成基粒,各堆之间由单层膜片相连。每个囊袋内部的空间称为类囊体腔。
这种布局将工作分成两部分。光反应在类囊体膜上进行,制造 ATP 和 NADPH 两种能量载体。卡尔文循环在基质中进行,利用这两种载体将二氧化碳合成为糖。展品最后一个尺度同时展示这两部分:膜横贯中央,上方是基质,下方是类囊体腔。
光系统 II 从水中夺取电子
光以光子的形式到来。叶绿素善于吸收红光和蓝光,并反射绿光,所以叶片呈绿色。植物利用的波长约为 400 至 700 nm,植物生理学家将这一范围称为光合有效辐射。
光子由天线复合物捕获。OpenStax 记载,每个捕光复合物含 300 至 400 个叶绿素分子,另有类胡萝卜素。吸收光子后,能量在色素之间传递,约一百万分之一秒后到达反应中心。在光系统 II 中,反应中心是一对称为 P680 的叶绿素,能量将其中一个电子推向受体。
此时 P680 需要补回一个电子,它从水中获得。光系统 II 的类囊体腔一侧有一个由四个锰原子、一个钙原子和五个氧原子组成的簇。Umena 及其同事在 2011 年以 1.9 Å 分辨率解析了它,发现其上结合着四个水分子。这个簇从水中逐个夺取电子。分解两个水分子会产生四个电子、四个质子和一个 O₂ 分子。OpenStax 指出,约 10% 的氧会被叶片自身的线粒体消耗,其余逸入空气。
模型中黄色光迹代表光子,青色小珠代表电子。每当四个电子离开光系统 II,一个 O₂ 分子就从簇上飘走,O₂ 计数器增加一。
从质体醌到 NADPH
电子不会停在原处。它先交给质体醌(黄色小珠),这种小分子能在膜内移动,将电子送往细胞色素 b6f 复合物。电子通过 b6f 时,复合物将质子从基质转移到类囊体腔。另一侧的质体蓝素(一种蓝色含铜蛋白)接过电子,沿腔侧表面将它送往光系统 I。
到这时,电子已经失去大部分能量,因此光系统 I 需要第二个光子。它的反应中心 P700 再次提高电子的能量,将其交给基质一侧的铁氧还蛋白。随后,铁氧还蛋白-NADP⁺ 还原酶(FNR)把两个电子加到 NADP⁺ 上,生成 NADPH。模型中,每到第二个电子,一个紫色 NADPH 分子就离开 FNR,朝卡尔文循环移动。
质子梯度驱动 ATP 合酶
两件事使类囊体腔内充满质子:光系统 II 处分解水,以及 b6f 的泵送。腔内变酸,基质的酸性则较低,而质子只能通过一道门流回去。这道门就是 ATP 合酶,与 ATP 合酶展品展示的是同一种旋转机器,它的头部位于基质一侧。
Seelert 及其同事在 2000 年用原子力显微镜拍摄了叶绿体中的这种酶,发现其转子环有 14 个亚基。每通过一个质子,环就移动一个亚基的位置,因此 14 个质子使它转一圈,每圈从头部释放 3 个 ATP。即每个 ATP 需要 14 ÷ 3 ≈ 4.67 个质子。光反应加速时,腔内红色小珠增多,你可以看到它们排队穿过转子环。
Rubisco 与卡尔文循环
基质中含有真正执行碳固定的酶:核酮糖-1,5-二磷酸羧化酶/加氧酶,通常简称 Rubisco。它把一个 CO₂ 与一种叫 RuBP 的五碳糖结合。生成的六碳产物立即分裂成两个三碳的 3-PGA 分子。OpenStax 将循环划分为固定、还原和再生三个阶段。
在还原阶段,ATP 和 NADPH 将 3-PGA 转变成 G3P,一种三碳糖磷酸。在再生阶段,大部分 G3P 被重新排列成 RuBP,让循环继续,这还需消耗更多 ATP。由于每转一圈只增加一个碳,需要三圈才能得到一个可供输出的多余 G3P。这三圈共消耗 9 个 ATP 和 6 个 NADPH。六圈的产出才够形成一个葡萄糖。
模型中的循环按顺时针绘制,Rubisco 在顶端。小珠绕行时会变色:蓝色代表 3-PGA,橙色代表 G3P,绿色代表 RuBP。每颗小珠经过 Rubisco 时,都会有一个 CO₂ 分子到达,ATP 和 NADPH 从下方的膜飞入,每第三次固定便向右送出一个代表糖的六边形。
核对数字
展品用一个数值把各项收支联系起来,即屏幕上每秒固定的 CO₂ 数量。其他数值都由资料中的关系推导。
- 每固定一个 CO₂,卡尔文循环消耗 9 ÷ 3 = 3 个 ATP 和 6 ÷ 3 = 2 个 NADPH。
- 每个 NADPH 携带 2 个电子,因此 2 个 NADPH 需要 4 个电子。四个电子来自两个水分子的分解,同时释放一个 O₂。因此每固定一个 CO₂,就有一个 O₂ 离开,与总反应式一致。
- 每个电子都经过两个光系统,在每处各需一个光子。因此在这条简单的线性路径中,四个电子对应的每个 O₂ 需要 8 个光子。
- 每个 CO₂ 需要 3 个 ATP,而每合成 3 个 ATP 需要 14 个质子,因此每固定一个 CO₂ 就有 14 个质子通过 ATP 合酶。
你可以用计数器核对这些关系。过一段时间后,「生成 ATP」接近「固定 CO₂」的三倍,「生成 NADPH」接近两倍,「释放 O₂」则接近相等。由于各计数器在动画中的计数时刻不同,数值会相差一两个。
速率曲线是模型,不是对真实叶片的测量。光响应采用教材常见的非直角双曲线。总速率 P 满足 θP² − (αI + Pc)P + αIPc = 0,其中 I 是光照,α = 0.11 是初始斜率,θ = 0.8 决定弯曲的急缓,Pc 则是由二氧化碳和温度决定的上限。上限随 CO₂ 按 100 × (C − 50) ÷ (C − 50 + 300) 上升,再乘以一个峰值在 25 °C 的非对称钟形曲线。最后减去呼吸作用,得到净速率:呼吸在 25 °C 时为 3 个单位,每升高 10 °C 就翻倍。速率采用模型单位,其标度中的 100 代表上限。
计算得到以下数值。在模型默认的 426 ppm 和 25 °C 下,黑暗中的净速率为 −3(叶片仅进行呼吸),光照为 200 时为 16.8,光照为 2,000 时为 49.4。光照约为 1,274 时,曲线达到上限的 90%。把 CO₂ 提高到 1,000 ppm,曲线顶部升至 62.8,而 90% 点移到约 1,636。模型中的最佳温度为 24.5 °C。默认的 426 ppm 来自 NOAA 的 Mauna Loa 记录,该记录给出 2026 年 9 月月均值为 426.07 ppm。
为什么光照、二氧化碳和温度都会构成限制
曲线有两部分。弱光下,它几乎沿直线上升:每多一个光子都能被利用,其他条件并不短缺。强光下,曲线趋平,因为卡尔文循环跟不上。Rubisco 工作缓慢,而且需要二氧化碳,增加光照不能增加它可获得的二氧化碳。读数会标出限制速率的因素。
因此,各滑块的作用不同。提高 CO₂ 几乎不改变曲线的弱光部分,却能抬高顶部,所以温室中补充 CO₂ 对叶片的益处在强光下最大。温度主要影响酶,因此会压低或抬高整个曲线顶部。关闭气孔会降低叶片内部的 CO₂(显示为「内部 CO₂」),即使外界空气不变,也会拉低上限。虚线始终代表默认叶片,供比较使用。
模型省略了什么
模型以清楚为目的,不同层级之间并非按同一比例绘制,蛋白质也只是光滑的团块,不是实测结构。模型省略了几种真实过程。
- Rubisco 也会与氧反应。这种副反应称为光呼吸,会浪费碳,而且叶片越暖越严重。模型仅通过温度曲线的形状暗示它。
- 植物还会在光系统 I 周围进行循环电子流,不产生 NADPH 却能额外制造 ATP。模型只展示线性路径,因此 ATP 和 NADPH 的数值恰好符合卡尔文循环的需求。
- C4 植物和仙人掌等 CAM 植物会先浓缩 CO₂,再供给 Rubisco。OpenStax 描述了仙人掌夜间吸收 CO₂、白天保持气孔关闭的方式。它们的曲线大不相同。
- 正如 Yamori 及其同事在 2014 年综述中所示,真实最适温度因物种而异,也会随植物对生长温度的适应而改变。这里的 25 °C 峰值是为模型选取的整数。
- 水分流失采用模型单位,由气孔开度及湿度为 50% 时空气的干燥能力缩放得出,使用的是 FAO 的饱和水汽压公式。
简史
Melvin Calvin 因研究植物中的二氧化碳同化作用获得 1961 年诺贝尔化学奖。这项工作追踪了碳在后来以他命名的循环中如何移动。许多教材将其称为卡尔文-本森循环,以纳入另一位参与研究的科学家。Peter Mitchell 的化学渗透理论解释了质子梯度如何在线粒体和叶绿体中驱动 ATP 合成,使他获得 1978 年诺贝尔化学奖。1988 年,Johann Deisenhofer、Robert Huber 和 Hartmut Michel 因确定光合反应中心的三维结构而共同获得化学奖,这是首个逐原子解析结构的膜蛋白。光系统 II 中分解水的簇的结构随后于 2011 年得到解析。
计算光子和储存的能量
八个光子的数值描述的是理想电子传递的收支,不是阳光变成作物的比例。要提供两个 NADPH,四个电子各需激发两次。将一个固定的 CO₂ 除以八个被吸收的光子,得到极限量子产额为每个光子 0.125 个 CO₂。假如一片叶子每固定一个 CO₂ 反而需要十个被吸收的光子,产额就变成 0.100。这些都是计算示例。第二个数值不是普遍实测的需求:额外 ATP 的生成、光呼吸及其他损耗会让需求随条件改变。
假设一束光每平方米每秒提供 800 微摩尔被吸收的光子,按八光子收支计算,每平方米每秒可固定 100 微摩尔 CO₂。按十光子计算则为 80。这两个结果都不能预测展品的「净速率」,因为其纵轴采用模型单位,并包含一个独立的呼吸项。光子通量和碳通量即使都以微摩尔计,含义也不同。仅数光子无法判断能量效率:蓝光子的能量高于红光子。
Zhu、Long 和 Ort 在 2008 年综述中估计,在 30 °C、CO₂ 为 380 ppm 时,C3 植物的太阳能到生物量最大转换效率为 4.6%,C4 植物为 6%。这个浓度属于该论文的假设,不是当前空气的浓度。这些百分比以全部入射太阳光谱为分母,不能直接与每个被吸收光子的产额比较,也不能与只按可见光计算的效率比较。许多阳光不在通常定义的光合有效波段内,反射和代谢成本又减少了剩余部分。
作为能量核算练习,假设一种作物在选定面积与时段内截获 1,000 MJ 总太阳能。若假定转换效率为 1%,就有 10 MJ 储存在生物量中;2% 则储存 20 MJ。这些百分比是用于举例的田间表现假设,不是所有作物的测量值。它们既不自动保证可食用产量,也不表示所有截获的光都到达正在工作的叶片。根和茎也含有储存的化学能。对光照良好叶片的短时测量,与整季收获量回答的是不同问题。
补偿点与饱和点有何不同
在光补偿点,光合作用的总碳吸收量恰好抵消呼吸的碳损失,因此净交换为零。低于此点,植物仍可能进行光合作用,只是呼吸在收支中占上风。在饱和状态下,增加光照几乎不再增加碳吸收。它们是曲线上不同的位置,不是第一个弯折的两种名称。
当「空气中 CO₂」为 426 ppm、「叶温」为 25 °C、「气孔开度」为 100% 时,代码算出的补偿光照水平约为每平方米每秒 27.6 微摩尔光子。这个值由展品的净速率方程等于零求解得出,是本模型的计算值,不是已发表的橡树叶阈值。控件使用整数光照,因此 28 是接近交点的实用设置。零光照时,净速率为 −3 个模型单位;跨过零不表示呼吸停止了。
90% 标记以总光合作用相对于计算上限的比例为依据。在这些设置下,它位于 1,274 附近。此处速率尚未达到数学上完全水平的平台,而且图中显示的净速率已减去呼吸。使用不同百分比就会得到不同的饱和标记,因此给出饱和数值时应始终说明采用的标准。
适应阴处的叶片可能呼吸速率更低,在更弱的光照下就能获得净碳收益。阳生叶则可能支持更高的最大速率。展品并不在实测的阳生叶、阴生叶参数组之间切换,其平滑响应也不包含过强光照造成的损伤。在真实冠层中,上层叶片接收的光可能多到无法全部处理,而下层叶片仍受光照限制。天线大小研究关注的是:更均匀地分配光照,能否提高整个冠层的生产量,而不是只增加顶层吸收。
C3 叶片、玉米与仙人掌
C3 和 C4 的名称指各自初始固定途径中首批稳定产物的碳原子数。在 C3 叶片中,Rubisco 直接把 CO₂ 加到 RuBP 上,最初的稳定产物是三碳的 3-PGA。小麦和水稻使用这条途径。Rubisco 也会与氧反应,这种加氧反应启动光呼吸,一条消耗能量并释放部分先前固定碳的回收途径。它与黑暗中线粒体的呼吸不是同一过程。
玉米和甘蔗是 C4 植物。它们在叶肉细胞中利用 PEP 羧化酶进行初次捕获,生成四碳化合物。这些化合物把碳运到维管束鞘细胞,在 Rubisco 附近释放 CO₂。卡尔文循环仍然运行;C4 代谢为它提供了更浓缩的 CO₂ 来源。维持这台泵需要额外能量,因此 C4 并非在所有温度或光照下都无条件更好。它的优势在高温、内部 CO₂ 较低而原本有利于光呼吸的条件下尤其有用。
许多仙人掌采用 CAM。它们在夜间吸收大部分外界 CO₂,暂时将碳储存在有机酸中。白天,酸的分解供应 CO₂,气孔可以保持更紧闭。C4 通常让初次捕获与卡尔文循环分别在不同细胞类型中进行,CAM 则让大部分工作分在夜间和白天进行。这些差别说明,把仙人掌放进普通白天 C3 叶片模型会产生误导。
因此,Rubisco 的羧化能力只是问题的一部分,底物能否送达同样重要。即使酶完好,关闭气孔也会限制碳吸收;增加外界 CO₂ 可能有帮助,但前提是有足够 CO₂ 到达叶绿体。「叶片类型」控件提供 C3 阳生叶、C3 阴生叶和类似玉米的 C4 叶片,三者都是模型曲线。C4 设置的 CO₂ 响应在接近当今空气浓度时饱和,补偿点接近零,最适温度较高,初始斜率较低,以代表泵送所需的额外 ATP。它不计算 Rubisco 的周转、加氧反应或泵本身。阴生叶依据 Boardman 对阳生植物和阴生植物的综述:容量较小、呼吸较少,因此弱光下即可收支平衡,也较早饱和。这里没有 CAM 设置,三者也都不能用来给实际作物产量排名。
绿色叶片不能告诉你的事
外观呈绿色,并不证明绿光子不能驱动光合作用。分离的叶绿素强烈吸收蓝光和红光波段,但叶片是厚实、会散射光且含许多叶绿体的结构。有些绿光逃逸,有些则在组织内走得更远才被吸收。色素溶液的吸收光谱与整片叶子的作用光谱不是可以互换的测量。
Liu 和 van Iersel 在 2021 年研究了不同光谱和光子通量下的生菜。低光强时,绿光的入射光量子产额较低,因为吸收较少;高光强时,它的量子产额却位居最高之列,与激发能在叶片内分布更均匀的解释相符。这是有条件的结果,并非建议只用绿灯总能种出更好的作物。「光色」控件大致遵循这个规律,只改变曲线初始斜率(绿光最低,其次是蓝光、白光和红光),所以不同颜色在弱光下差异最大,在强光下几乎汇合。这些系数是模型值,展品并不模拟随深度变化的吸收。
对于土壤的误解,需要作另一种区分。新木材中的碳主要来自大气 CO₂,但刚称重的树也含大量水。水从根部进入,土壤中的矿质养分虽然不是有机干物质碳的主要来源,却仍必不可少。花盆土壤损失很少、植物质量却增加,说明土壤并非主要来源,但仅凭这一点无法认定增加质量的每个来源。比较干质量并追踪碳,比只称湿植物更有说服力。
同样,屏幕上的糖符号是收支记号,不是说叶绿体每固定一次就吐出一个完整葡萄糖分子。卡尔文循环转过几圈后输出三碳产物,进一步的代谢再制造糖及其他物质。可见气泡能表明气体释放,却不能说明生长中茎的碳来源。
水草气泡与斜射光
学校用水生植物测量光合作用。Royal Society of Biology 的 Practical Biology 实验方案把一段剪下的 Elodea 或 Cabomba 放入灯下的水中,数 1 分钟内从切口上升的气泡,然后重复计数并求平均值。方案也说明了假设:气泡被视为纯氧,氧产量被视为与速率成正比,气泡被视为大小相同。小灯的光照随距离的平方反比减弱,因此灯远一倍,光照就只剩约四分之一。
舞台上的烧杯在模型内运行相同实验。每分钟的气泡数是模型净速率乘以固定系数,表示方向与比例,不是课堂中会测到的具体数值。水草被当作 C3 水生植物,因此「气孔开度」控件不改变它。
太阳可以拖动。斜射的光会铺在更大的叶面积上,每平方米叶片接收的光随偏离正上方的角度余弦而减少。角度为 60 度时,叶片接收的光是太阳直射头顶时的一半。读数同时显示两个数值:「光照」是光源强度,「叶面光照」才是速率曲线使用的数值。
在屏幕上试一试
- 保持初始设置,把太阳向地平线拖低。「叶面光照」随角度余弦下降,而「光照」不变,光线变稀,水草变慢。每分钟气泡数是模型值。
- 把「光照」调到 0。标题下方的文字变为释放 CO₂,分子流向反转,水草停止冒泡。缓慢提高光照,直到「净速率」跨过 0。这就是补偿点,在本模型的 426 ppm 和 25 °C 下约为 28 µmol/m²/s。
- 把「光照」设为 2,000,将圆点与「90%」标记比较。随后将「空气中 CO₂」提高至 1,000。叶片周围的 CO₂ 云变密,曲线上部升高,因为碳供应上限变了,灯却没有变。
- 将「叶温」提高至 40。水分流失上升,叶片变黄下垂,速率下降。缩小「气孔开度」,观察放大的气孔关闭:叶片失水减少,「内部 CO₂」也下降。
- 将「叶片类型」切换为 C4,「光色」切换为绿光。再用「尺度」深入类囊体膜,追踪电子从光系统 II 到 NADPH 的过程。生成 ATP、生成 NADPH 和固定 CO₂ 的计数器维持前文所述的 3 比 2 比 1 收支,它们不是独立测量值。
常见问题
光合作用产生的氧来自哪里?
来自水,不是二氧化碳。光系统 II 从水中获取电子,分解两个水分子释放一个 O₂。CO₂ 中的碳被纳入有机分子。总反应式并不是对氧与水之间交换逐原子作出的记录。
叶片为什么是绿色的?
叶绿素强烈吸收红光和蓝光,反射或透过绿光。这不表示绿光没有用。被吸收的绿光可以在叶片更深处驱动光合作用,尤其在强光下。
光反应与卡尔文循环有何区别?
光反应在类囊体膜上进行,将光转变为 ATP 和 NADPH,并释放氧。卡尔文循环在基质中进行,利用这些 ATP 和 NADPH 将 CO₂ 固定成糖。旧称「暗反应」容易误导,因为该循环在白天 ATP 和 NADPH 正在生成时运行。
强光下速率为什么不再上升?
超过一定光照水平后,卡尔文循环成为瓶颈。Rubisco 固定二氧化碳的速度有限,而且需要 CO₂ 经气孔到达。此时更多光照无济于事,但增加 CO₂ 或改善温度可能有用。
植物为什么关闭气孔?
为了节水。开放的气孔让 CO₂ 进入,也让水蒸气逸出,植物吸收的水分最多有 90% 会这样流失。炎热干燥时,关闭孔口能以光合作用为代价保护植物。
生成一个 O₂ 需要多少光子?
在简单线性路径中需要八个。两个水分子释放一个 O₂ 需要移走四个电子,每个电子都要激发两次,在光系统 II 和光系统 I 各一次。
叶绿体的 ATP 合酶与线粒体的一样吗?
工作方式相同,部件也相同,但叶片叶绿体的转子环有 14 个亚基,比动物线粒体的更多。环越大,每个 ATP 需要的质子越多。ATP 合酶展品可以改变环的大小。
绿光能驱动光合作用吗?
能。叶片内部吸收的绿光子会参与光合作用。表面吸收较少,可能让绿光到达更深的叶绿体;益处取决于光强和叶片结构。
C4 植物绕过卡尔文循环吗?
不会。它们先浓缩 CO₂,再供给 Rubisco 和卡尔文循环。这条额外的碳浓缩途径需要能量。
补偿点是光合作用开始的地方吗?
不是。它是光合吸收恰好抵消呼吸释放的地方。低于补偿点,即使净碳交换为负,光合作用仍可继续。
术语
- 气孔:叶表面两个保卫细胞之间的孔口。
- 叶肉:叶片内部组织,分为栅栏层和海绵层。
- 叶绿体:进行光合作用的细胞器。
- 类囊体:叶绿体内扁平的膜囊,一叠类囊体构成一个基粒。
- 基质:类囊体周围的液体,卡尔文循环在此进行。
- 类囊体腔:类囊体内部积累质子的空间。
- 光系统:一种蛋白质复合物,具有色素天线及利用光移动电子的反应中心。
- NADPH:光反应生成的电子载体,用于在卡尔文循环中还原碳。
- Rubisco:将 CO₂ 与 RuBP 结合的酶。
- G3P:甘油醛-3-磷酸,卡尔文循环输出的三碳糖。
- 蒸腾作用:植物以水蒸气形式失水,主要经气孔进行。
- 光饱和:超过该光照水平后,光合作用速率不再显著上升。
参考资料
OpenStax, Biology 2e, 8.1 Overview of Photosynthesis (99% 的生态系统、叶绿体、类囊体、基粒、基质、类囊体腔、下表面气孔). https://openstax.org/books/biology-2e/pages/8-1-overview-of-photosynthesis (核对日期:2026 年 10 月 16 日)
OpenStax, Biology 2e, 8.2 The Light-Dependent Reactions of Photosynthesis (400 至 700 nm、每个天线 300 至 400 个叶绿素、百万分之一秒、P680、P700、水的分解、约 10% 的 O₂ 被线粒体利用、质体醌、细胞色素复合物、质体蓝素). https://openstax.org/books/biology-2e/pages/8-2-the-light-dependent-reactions-of-photosynthesis (核对日期:2026 年 10 月 16 日)
OpenStax, Biology 2e, 8.3 Using Light Energy to Make Organic Molecules (Rubisco、RuBP、3-PGA、G3P、每输出一个 G3P 需三圈、还原阶段 6 个 ATP 和 6 个 NADPH 加上再生阶段 3 个 ATP、仙人掌). https://openstax.org/books/biology-2e/pages/8-3-using-light-energy-to-make-organic-molecules (核对日期:2026 年 10 月 16 日)
OpenStax, Biology 2e, 30.4 Leaves (角质层、表皮、栅栏组织和海绵组织、保卫细胞、叶脉). https://openstax.org/books/biology-2e/pages/30-4-leaves (核对日期:2026 年 10 月 16 日)
OpenStax, Biology 2e, 30.5 Transport of Water and Solutes in Plants (蒸腾作用使最多 90% 的水分流失、保卫细胞的响应). https://openstax.org/books/biology-2e/pages/30-5-transport-of-water-and-solutes-in-plants (核对日期:2026 年 10 月 16 日)
NOAA Global Monitoring Laboratory, Trends in Atmospheric Carbon Dioxide (Mauna Loa 月均值 426.07 ppm,2026 年 9 月). https://gml.noaa.gov/ccgg/trends/ (核对日期:2026 年 10 月 16 日)
Umena Y, Kawakami K, Shen J-R, Kamiya N, Crystal structure of oxygen-evolving photosystem II at a resolution of 1.9 Å, Nature 473, 55 (2011) (Mn4CaO5 簇、四个结合水分子). https://www.nature.com/articles/nature09913 (核对日期:2026 年 10 月 16 日)
Seelert H, Poetsch A, Dencher NA, Engel A, Stahlberg H, Müller DJ, Proton-powered turbine of a plant motor, Nature 405, 418 (2000) (叶绿体 ATP 合酶环中的 14 个亚基). https://www.nature.com/articles/35013148 (核对日期:2026 年 10 月 16 日)
Yamori W, Hikosaka K, Way DA, Temperature response of photosynthesis in C3, C4, and CAM plants: temperature acclimation and temperature adaptation, Photosynthesis Research 119, 101 (2014). https://link.springer.com/article/10.1007/s11120-013-9874-6 (核对日期:2026 年 10 月 16 日)
FAO, Crop evapotranspiration, Irrigation and Drainage Paper 56, 第 3 章 (饱和水汽压、公式 11). https://www.fao.org/4/x0490e/x0490e07.htm (核对日期:2026 年 10 月 16 日)
NobelPrize.org, The Nobel Prize in Chemistry 1961 (Melvin Calvin). https://www.nobelprize.org/prizes/chemistry/1961/summary/ (核对日期:2026 年 10 月 16 日)
NobelPrize.org, The Nobel Prize in Chemistry 1978 (Peter Mitchell). https://www.nobelprize.org/prizes/chemistry/1978/summary/ (核对日期:2026 年 10 月 16 日)
NobelPrize.org, Press release: The Nobel Prize in Chemistry 1988 (光合反应中心的结构). https://www.nobelprize.org/prizes/chemistry/1988/press-release/ (核对日期:2026 年 10 月 16 日)
Zhu, Long and Ort (2008), What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? University of Illinois 记录与摘要 (4.6%、6%、30 °C、380 ppm 的假设). https://experts.illinois.edu/en/publications/what-is-the-maximum-efficiency-with-which-photosynthesis-can-conv (HTTP 200,核对日期:2026 年 10 月 23 日)
Ort, Zhu and Melis (2011), Optimizing Antenna Size to Maximize Photosynthetic Efficiency, Plant Physiology (冠层光分布、量子产额、响应曲线). https://pmc.ncbi.nlm.nih.gov/articles/PMC3014228/ (HTTP 200,核对日期:2026 年 10 月 23 日)
Royal Society of Biology, Practical Biology, Investigating factors affecting the rate of photosynthesis (水草气泡计数、假设、光照与距离). https://practicalbiology.org/energy/photosynthesis/investigating-factors-affecting-the-rate-of-photosynthesis.html (核对日期:2026 年 10 月 26 日)
Boardman (1977), Comparative photosynthesis of sun and shade plants, Annual Review of Plant Physiology 28. https://doi.org/10.1146/annurev.pp.28.060177.002035 (核对日期:2026 年 10 月 26 日)
Liu and van Iersel (2021), Photosynthetic Physiology of Blue, Green, and Red Light, Frontiers in Plant Science (生菜、随光强变化的绿光响应). https://pmc.ncbi.nlm.nih.gov/articles/PMC7977723/ (HTTP 200,核对日期:2026 年 10 月 23 日)
解说文章与模拟采用 CC BY-NC-SA 4.0 许可,另有说明的除外。
更多展品
动物视觉:用 69 种动物的眼睛看世界
绿色草地上的红球,你很容易找到,狗却很难。同一朵花中,蜜蜂能看见你看不到的图案。

巨杉为什么能长这么大:走近谢尔曼将军树与海岸红杉林
站在高 83.8 m、约 2,200 岁的谢尔曼将军树脚下,再攀上树干,观察高处的水承受多强的拉力。
马怎样奔跑:慢步、快步、跑步与袭步
1878 年,迈布里奇的相机表明,袭步的马确实会四足同时离地,但腿收拢在躯体下方。有些快速移动的动物却从不离地。

CRISPR-Cas9:基因编辑怎样工作
向导 RNA 只读取 DNA 的 20 个字母,这通常就足以在人类基因组的 30 亿个碱基对中选出一个位置。

ATP 合酶如何工作:可转动的三维模型
在线粒体中,ATP 合酶转子每秒约转 100 圈,每转一整圈就释放三个 ATP 分子。

恐龙大小对比:172 种真实大小的史前动物
一座 600 m 宽的园区,按时代排列 172 种按真实大小呈现的史前动物,从第一批恐龙到霸王龙。