图 21感官馆
动物视觉:用 69 种动物的眼睛看世界
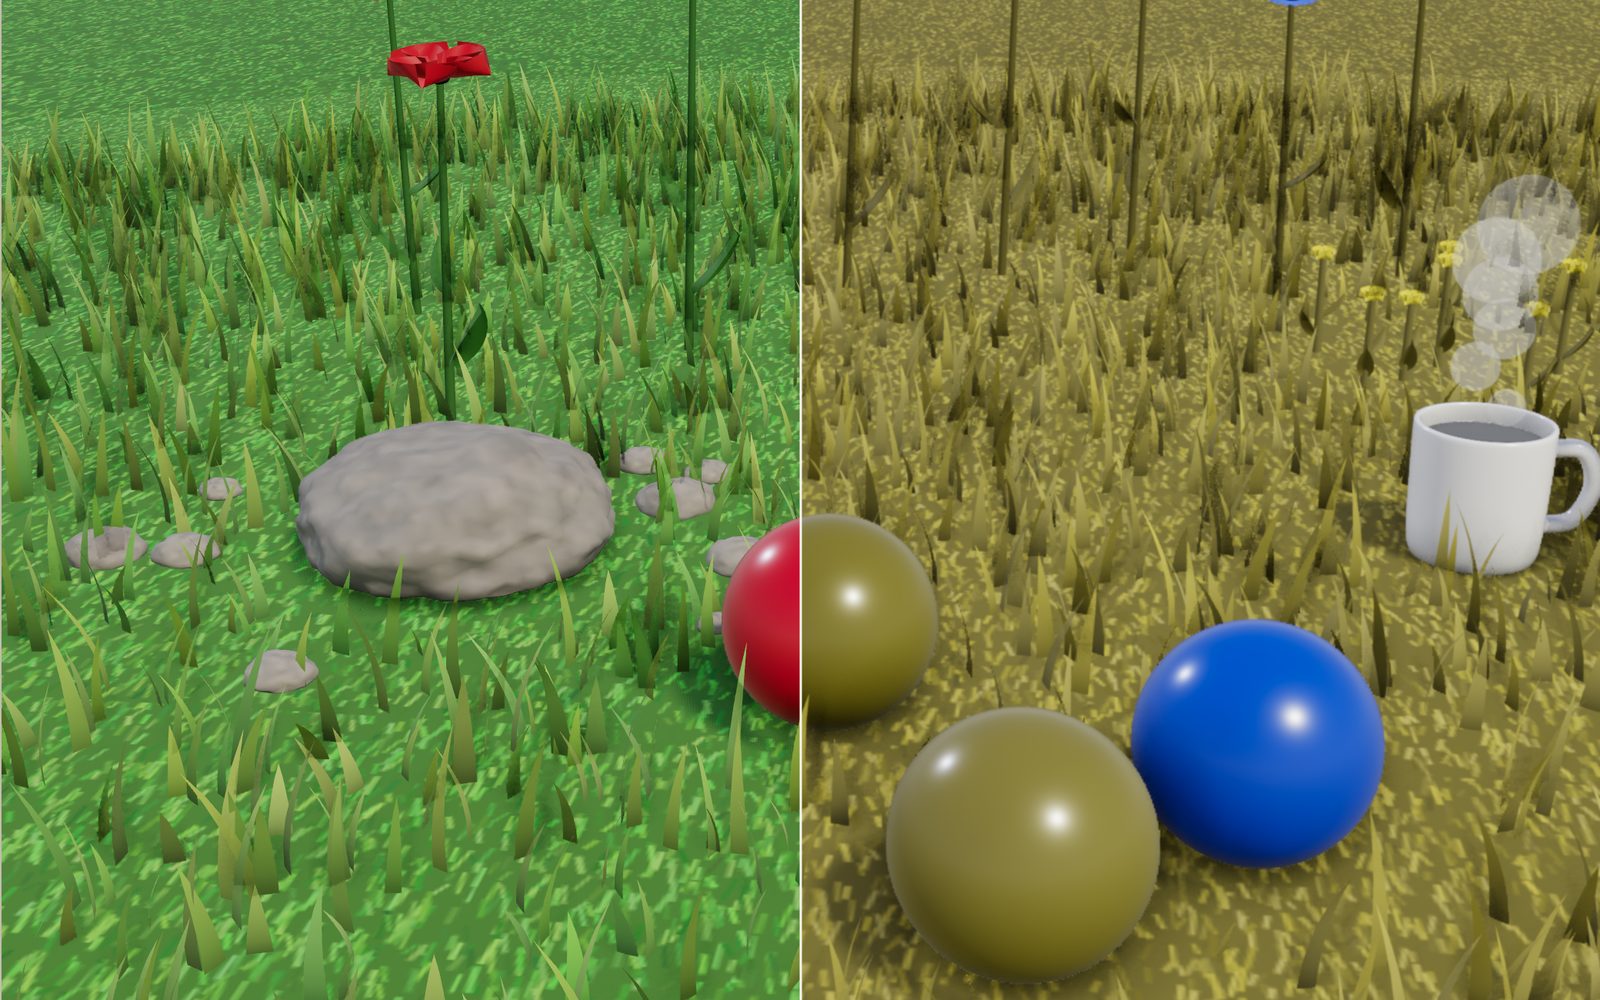
绿色草地上的红球,你很容易找到,狗却很难。同一朵花中,蜜蜂能看见你看不到的图案。
这台设备无法显示 3D 模型。下面的讲解步骤可以直接阅读文字。
1 / 20 一座花园,69 双眼睛同一座花园按每种动物重新绘制。颜色、清晰度、眼睛所需的光照以及看得多快都在变化。在图片下方的栏中选择动物,或在顶部选择场景。
拖动可旋转,滚轮或双指缩放。
狗为什么会错过红球
把一个红球扔到绿色草坪上,你能一直看着它落地。许多狗却径直跑过,再靠鼻子找到它。球并没有变得看不见。对狗来说,红色和绿色作用于同一种视锥细胞,因此球和草地呈现为同一种暗淡橄榄色的两种深浅。换成蓝球,狗就能立刻看见。
这个小场景包含了本展览的大部分内容。眼睛不是一台如实记录世界的相机。它用少数几种感光细胞,以特定的清晰度、速度和角度采样光线,而且只有亮度超过某个限度才行。每种动物在这些方面都有不同的取舍。舞台通过 69 种动物的眼睛,重新绘制同一座花园、一片夜间森林、一处珊瑚礁和从空中俯视的草地,显示的每个数字都来自文末列出的论文或大学网页中的测量。没有人测量过的项目,舞台会显示「无数据」,而不作猜测。
眼睛怎样把光变成颜色
视网膜有两类感光细胞。视杆细胞在弱光中工作,不能区分颜色。视锥细胞在日光下工作,分为几种类型,每种对一个波长范围敏感。单个视锥细胞不知道自己看到了什么颜色,只报告捕获了多少光。大脑比较不同类型视锥细胞的报告,这种比较就是我们体验到的颜色。
人通常有三种视锥细胞。在人类视网膜中逐个测量细胞,发现其峰值分别接近 420 nm(紫蓝色)、534 nm(绿色)和 564 nm(黄绿色)。绿色和长波视锥细胞的响应重叠很大,但红色物体和绿色物体仍会给出不同的响应比例,因此我们看到两种颜色。如果两束光让三种视锥细胞捕获的光量都相同,即使光谱不同,它们在我们看来也完全一样,这就是屏幕只用三种窄带基色就能模拟几乎任何颜色的原因。
只要知道峰值在哪里,不同色素的感光曲线形状就大致相同。Govardovskii 及其同事在 2000 年拟合了一个模板,仅凭峰值就能预测整条曲线,包括短波端一个较小的次峰。舞台读数中的曲线由这个模板绘制,每种感光细胞一条,颜色模型也使用同样的曲线。
两种视锥细胞:狗、猫、马与农场动物
大多数哺乳动物有两种视锥细胞,一种感受短波,另一种感受中长波。有两种视锥细胞的眼睛仍能分辨蓝色和黄色,但红色、橙色、黄色和绿色主要都作用于长波视锥细胞,差别主要在亮度。红绿色盲者的视觉与此相似。
1989 年发表的训练犬实验发现,狗的两种视锥色素峰值接近 429 nm 和 555 nm。猫也有这一对,接近 450 和 556 nm,是在 1969 年和 1979 年的视网膜记录中测得的。马的峰值为 428 和 539 nm,测量于 2001 年。牛、山羊和绵羊在 1998 年一起接受了测试,短波视锥细胞峰值在 444 至 455 nm 之间,长波在 552 至 555 nm 之间。白尾鹿有接近 450 至 460 nm 的短波视锥细胞,以及接近 537 nm 的中波视锥细胞。
选择狗并打开「左右对比」。左半边是你的视野,右半边是狗的。在 CIELAB 色差尺度上,你看到的红球和绿球相差超过 100 个单位,对狗来说却只有约 5 个单位。蓝球与草地仍相差超过 100 个单位。如果给在草地上玩耍的狗买玩具,蓝色或黄色比红色更合适。也试试马、牛和鹿,它们的长波视锥细胞峰值略有不同,所以红色变成橄榄色的程度也略有差异。
紫外线:小鼠、蜜蜂、虎皮鹦鹉与金鱼
许多动物能看到我们看不见的一段光,即波长低于约 400 nm 的紫外线。我们的晶状体在它到达视网膜前就吸收了其中的大部分。1991 年,Jacobs 及其同事发现,一些啮齿动物有一种对紫外线最敏感的视锥细胞,这是哺乳动物中首次发现的这类感光细胞。小鼠的一种视锥细胞峰值为 360 nm,另一种绿色视锥细胞为 508 nm,而且大多数视锥细胞同时携带两种色素。大鼠也有紫外和中波视锥细胞,在 2001 年发表的实验中,它们结合两者来区分颜色。
蜜蜂有紫外、蓝色和绿色感光细胞,峰值分别为 344、436 和 544 nm,没有感受红色的细胞。虎皮鹦鹉和斑胸草雀有四种视锥细胞,其中一种是真正的紫外视锥细胞,峰值在 360 至 380 nm。金鱼也有四种,分别为 356、447、537 和 623 nm。中南美洲一种食花蝙蝠,即帕氏长舌蝠,能对低至 310 nm 的紫外线作出响应,但它只靠一种色素完成两项工作,绿色色素较小的第二吸收带捕获紫外线,因此它把紫外线感知为亮度,而不是单独的颜色。
花朵上常有紫外图案。金光菊在我们看来是纯黄色,但花瓣靠近中心的部分吸收紫外线,尖端则反射紫外线,于是在花朵中央周围形成一个暗环。在 2014 年的一项野外研究中,相比紫外环被缩小的花头,野生蜜蜂更常访问紫外环被扩大的花头。在花园里,选择蜜蜂、小鼠或虎皮鹦鹉,近看黄色花朵。屏幕不能发出紫外线,因此舞台为每个表面另存一个紫外值,用伪彩色显示;打开「仅紫外线」就能只看这个通道。
感光细胞更多,辨色未必更好
柑橘凤蝶有分属六类的八种感光细胞。在 2008 年发表的行为实验中,经过训练选择一种颜色的蝴蝶,在光谱上接近 430、480 和 560 nm 的三处,能够将它与仅相差 1 nm 的另一种颜色区分开。这种模式表明有四种感光细胞共同工作,因此凤蝶虽然有更多感光细胞类型,却用四个通道看颜色。
螳螂虾是极端的例子。一些物种有 12 种感光细胞,分布在 300 至 720 nm。人们或许会以为它们比任何其他动物都更能区分颜色。Thoen 及其同事在 2014 年做了测试,却发现相反的结果,螳螂虾会混淆相差 12 至 25 nm 的光,分辨能力比蝴蝶粗,也比我们粗。研究者提出,螳螂虾可能不是精细比较感光细胞的响应,而是让眼睛扫过物体,根据哪一种窄带感光细胞响应来识别颜色。舞台用一条简单规则模拟这个想法,12 种感光细胞中响应最强的一种决定颜色,因此珊瑚礁分成一条条平坦的色带。这些动物还能看到圆偏振光,Chiou 及其同事在 2008 年证明了这一点。
一种视锥细胞:鲨鱼、章鱼与乌贼
Hart 及其同事在 2011 年测量了 17 种鲨鱼的视觉色素。每种都只有一种视锥细胞,峰值在 532 至 561 nm 之间。只有一种视锥细胞的动物可以判断亮度,却不能判断颜色,所以鲨鱼很可能是色盲。鲸、海豚和海豹也只有一种视锥细胞,它们独立演化出了同样的结构。
真蛸有一种视觉色素,峰值为 475 nm,大多数行为实验认为它是色盲。乌贼类似,只有一种峰值接近 500 nm 的感光细胞,却能改变皮肤颜色以匹配背景。Marshall 和 Messenger 在 1996 年把这称为「色盲伪装」。头足类另有偏振视觉,它们的感光细胞相互垂直排列,每个细胞对一个方向的偏振光吸收最强。在水下,银色鱼类反射的光有很强的偏振性,这是一个有用的信号。在珊瑚礁选择章鱼并打开「偏振光」,强偏振光显示为黄色,非偏振光显示为蓝色。
看得多清楚:每度周期数
清晰度用条纹测量。向动物展示成对的黑白条纹,逐渐缩细,直到它再也无法将条纹与纯灰色区分开。它仍能看出的最细图案,以每度视角内的条纹对数即周期数计量,就是它的视敏度。视力为 20/20 的人能分辨每度约 30 个周期;1965 年的一项研究用干涉条纹绕过眼睛光学系统的限制,让人分辨出了每度约 60 个周期的光栅。舞台采用 60 作为人的极限,并用 20/(600 ÷ 每度周期数) 把数值换算为斯内伦视力分数。
脑和视网膜记录显示,狗能达到每度 11.6 至 12.6 个周期,约为人类最佳值的五分之一。马在行为测试中最高达到 23.3。猫的数值为 3.5 至 9,小鼠约 0.5,大鼠约 1。一只灰林鸮在明亮光照下与两个人一起接受测试,看到的细节少于人,与鸽子大致相当。楔尾雕在另一端,Reymond 在 1985 年的测试中测得其视敏度为每度 132 至 143 个周期,超过人类的两倍,接近其瞳孔所能通过的 157。
昆虫的眼睛由许多小面构成,每个小面朝向自己的方向。相邻小面之间的角度决定了它们能分辨多少细节。这个角度从原始昆虫的数十度,到蜻蜓的 0.24 度不等,后者是已知最精细的。蜜蜂眼睛前部能分辨每度约 0.54 个周期。孔蛛属跳蛛的主眼是微型长焦相机,感光细胞间隔 2.4 角分,约合每度 12.5 个周期,远好于任何体型相近的昆虫。扇贝的贝壳边缘有多达 200 只小眼睛,能分辨约 2 度。
为了在屏幕上显示视敏度,舞台根据每度视角占多少像素来模糊图像。每度 c 个周期的光栅,每个周期需要两个像素,因此每度 p 个像素的视图最多只能显示每度 p ÷ 2 个周期。在宽 1440 px 的窗口上,花园中的一度只有约 16 至 20 个像素高,竖持手机上约为 8 至 10 个像素,足以显示每度 4 至 10 个周期。这比狗眼还粗,因此在正常视图下,狗的模糊半径算出来只有三分之一个像素,看起来和你一样清晰。画面并没有错,是屏幕本身比这两种眼睛都粗。
「远眺」像望远镜一样解决这个问题。它把相机视角缩窄 2、4 或 8 倍,让同样的一度分布在 2、4 或 8 倍的像素上,并按该视角下的真实尺度绘制模糊。在笔记本电脑上使用 ×4 时,每度占约 70 至 80 个像素,你的半边仍然清晰,狗的半边模糊约 2.5 至 3 个像素,蜜蜂只能看到少数小面。手机上用 ×8,每度约占 70 个像素。读数显示当前倍率下的每度像素数和模糊程度。比你更敏锐的眼睛,例如雕眼,完全无法展示,画面仍要经过你自己的眼睛,因此舞台不对它模糊,并明确说明。
空中场景用距离达到同样的效果。它像望远镜一样,通过只有 4 m 高的视图显示草地,距离可在 20 m 至 1.5 km 之间选择。在约 480 m 处,一只 40 cm 长的兔子对你约占 3 个周期,对雕约占 7 个周期,你看见的是一团,雕仍能看出是兔子。两只兔子相距 2.4 m,这样打开「左右对比」时,画面两边各有一只。
看得多快:闪光融合
让一盏灯反复亮灭,并提高频率。到某个频率时,闪光就融合成稳定的光。这个频率叫临界闪光融合频率,表示眼睛跟随变化的速度。Inger 及其同事在 2014 年汇总了 81 个物种的测量。人约为 60 Hz,猫为 55,狗为 80,鸽子因研究不同在 77 至 143 之间,鸡在 72 至 105 之间,丽蝇、蜜蜂和蜻蜓在 200 至 300 之间。已测量的鲨鱼在 18 至 37 Hz 之间。
花园的提灯和森林的路灯按你设定的频率闪烁,范围为 20 至 320 Hz。屏幕不能显示一秒闪烁 100 次的灯,因此当所选动物能看出闪烁时,提灯就缓慢脉动,提灯频率越低于动物的融合频率,脉动越深。在 100 Hz,也就是 50 Hz 市电供电灯具的闪烁频率下,你看到的提灯稳定,蜜蜂看到的则有脉动。在许多屏幕的刷新率 60 Hz 下,猫看到的稳定,狗看到的有脉动。
数值对照
控制区下方的图鉴列出全部 69 种动物及其来源。下面是测量项目最多的几种,采用舞台使用的单位。短横线表示在这些来源中没有找到数值。
| 动物 | 感光细胞峰值(nm) | 视敏度(cpd) | 视野 | 闪光融合频率(Hz) |
|---|---|---|---|---|
| 人 | 420, 534, 564 | 60 | 180° | 60 |
| 狗 | 429, 555 | 11.6 至 12.6 | 240° | 80 |
| 猫 | 450, 556 | 3.5 至 9 | 200° | 55 |
| 马 | 428, 539 | 23.3 | 350° | - |
| 小鼠 | 360, 508 | 0.5 | - | - |
| 大鼠 | 紫外和中波 | 1 | - | 30 |
| 蜜蜂 | 344, 436, 544 | 0.54 | - | 200 至 300 |
| 鸽子 | 409, 453, 507, 567 | - | - | 77 至 143 |
| 金鱼 | 356, 447, 537, 623 | - | - | - |
| 楔尾雕 | 对紫光敏感的短波视锥细胞 | 132 至 143 | - | - |
| 灰林鸮 | - | - | 201° | - |
| 蜻蜓 | 15 至 33 个视蛋白基因 | 2.1 | - | 300 |
| 跳蛛 | 紫外和绿色 | 12.5 | - | - |
| 鲨鱼 | 一种视锥细胞,532 至 561 | - | - | 18 至 37 |
沿着一行读,就能看出其中的取舍。雕的眼睛最敏锐,但没有特殊夜视能力的记录;猫能在弱光中看见东西,却会模糊精细细节;蜜蜂能看见紫外线和快速闪烁,但每度只能分辨约半个周期。
夜间视觉
在弱光中,视锥细胞停止工作,视杆细胞接替。视杆细胞更敏感,但只有一种,因此颜色逐渐消失。人在约 0.02 cd/m²、相当于暮光的亮度下失去颜色。猫能在比我们更暗的光线中看见东西,用相同图案测试时,它们的敏感度高出 0.74 个对数单位,约为 5.5 倍,其中大部分来自更大的瞳孔和光学系统的集光能力。仓鸮有管状眼,光圈数为 1.13;人在黑暗中的眼睛约为 f/2.4,因此仓鸮的视网膜图像亮度约为人的 4.5 倍。舞台把这个比值用作仓鸮的夜间增益,并标明它是模型值。
有两种动物能在我们不能辨色的光线下保留颜色。盔头守宫完全没有视杆细胞,只有三种大型视锥细胞,2004 年的测试中,它们在 0.002 cd/m² 的微弱月光下分辨出了蓝色和灰色。2002 年发表的实验中,红天蛾在 0.0001 cd/m² 的微弱星光下选择了彩色目标;同样光照下,人完全无法辨色。把夜间森林设为「微弱星光」,试试它们。对于这两种动物,舞台按其辨色极限与我们的比值把图像提亮 10 和 200 倍,同样标为模型值。
许多夜行性动物的视网膜后面有一层镜子,叫反光膜。未被捕获而穿过感光细胞的光,被反射回去,再获得一次被捕获的机会。狗、猫、马、牛和许多其他哺乳动物都有,鲨鱼也有。这就是手电光照过去时,它们眼睛会反光的原因。打开森林里的手电,看看鹿。
看得多宽:视野
位于头部前方的眼睛会看到两份相同场景,有助于判断深度;位于两侧的眼睛则能同时看到更大范围的世界。人向每侧约能看到 90 度,合计约 180 度,其中约 120 度由双眼共同看到。狗的视野约 240 度,重叠 30 至 60 度,猫约 200 度。马能覆盖约 350 度,只有正后方和额头正前方看不见。灰林鸮每只眼睛仅覆盖 124 度,是已测量脊椎动物中最窄的,因此总视野为 201 度,重叠 48 度。变色龙搜索时两眼独立转动,随后一起锁定猎物。
全景图显示相机周围整整一圈,正前方位于中央。动物的视野覆盖条带中部,范围之外用斜线标出。没有视野数据的动物,全景显示全部 360 度,并予以说明。
瞳孔形状
瞳孔有圆形、狭缝、横条、W 形和针孔形。Banks 及其同事在 2015 年比较了 214 种陆生动物,发现了一种规律。山羊、绵羊、马和鹿等食草被捕食动物有水平瞳孔,低头吃草时眼睛会转动,使瞳孔保持与地面平行。这能沿地平线提供清晰而宽广的视野。猫等贴近地面伏击的小型捕食者往往有竖直狭缝瞳孔,有助于利用模糊判断距离。乌贼的 W 形瞳孔能均衡来自上方和下方的光。盔头守宫的瞳孔会收缩成一排针孔。
瞳孔决定失焦物体的模糊形状。打开「瞳孔模糊」并选择山羊,相机旋转中心前后的物体会横向拖开,而竖直边缘保持较清晰。猫的狭缝效果相反。这里的模糊强度是为了清楚展示形状而选择的模型值,形状则来自动物本身。
水下
水会吸收光,红光最先消失。Pope 和 Fry 在 1997 年测量了纯水,在 650 nm 处每米吸收 0.34,在 450 nm 处仅为 0.0092,约为 650 nm 处的 1/37。在珊瑚礁场景中,光从水面向下到珊瑚礁,再横向到达眼睛,每种颜色沿途都会衰减。在 15 m 处,红光只剩约 2%,因此即使对你来说,红鱼也变成灰褐色,而蓝黄鱼能更久地保留颜色。真实海水还会散射光,含有浮游生物;舞台使用纯水和简单的雾效。
热:蝮蛇
蝮蛇、蟒蛇和蚺的脸上有能探测温暖物体红外线的颊窝。Bullock 和 Cowles 在 1952 年记录了颊窝神经的活动,证明它会对附近的热源响应。2010 年,Gracheva 及其同事找到了背后的分子,支配颊窝的神经纤维带有 TRPA1 通道,受热时就会打开。红外线使颊窝膜升温,通道报告这种变化。这是热觉,不是第三种眼睛。舞台在暗淡视图上用伪彩色绘出温暖表面,茶水发亮,被太阳晒暖的石头微微发亮,开阔天空则是冷的。
眼睛实验室
第五个场景把眼睛本身放在桌上。剖开的人眼显示角膜和晶状体如何把光折射到视网膜上的一点,图像倒置,中央凹处的视锥细胞最密集。复眼是由六边形小面构成的穹顶,部分被切开,露出长长的小眼,每个都有自己的透镜和感光细胞。第三只眼睛的视网膜后有反光膜,一条光线射入后又返回。五个虹膜展示瞳孔形状。最后一个模型是扇贝眼,它用曲面镜而非透镜聚焦。Palmer 及其同事在 2017 年证明,镜面由方形鸟嘌呤晶体铺成,把光送到两层视网膜,一层负责视野中央,另一层负责边缘。在实验室中选择一种动物,相机就会移到对应的眼睛类型。
69 种动物及其共用的视觉系统
本展览第三版将动物数量从 31 种增加到 69 种,分为十组,超过原来的两倍。新增动物来自人们常问的对象,包括农场动物和宠物、动物园动物、花园与海岸的鸟类、爬行动物和蛙类、叮咬或传粉的昆虫,以及少数眼睛独特、值得一看的海洋生物。每种动物都只有在找到测量其眼睛某个方面的论文后才加入,舞台上的数字链接到那篇论文。
有些动物没有直接测量数据,但明确与已测量的动物共用一种视觉系统。图鉴把它们标为「与某动物归组」,归组理由本身也有来源。黑猩猩与人归组,因为灵长类感光色素研究发现,旧世界猴、类人猿和人都有三种视锥细胞,峰值几乎相同。海豹与宽吻海豚归组,抗体染色在受检的五种海豹和海狮以及七种齿鲸中都没有发现蓝色视锥细胞,而它们的陆生近亲保留了这种细胞。蟒蛇和蚺与蝮蛇归组,因为三者的颊窝神经都发现了同样的感热通道。长颈鹿采用牛的两种视锥细胞来绘制,因为受测的有蹄哺乳动物大多有两种,但其每度 25 至 27 个周期的视敏度是自己的数据,来自视网膜计数。归组动物始终原样使用代表动物的曲线,舞台会说明这一点。
品种差异是一个常见问题。狗的两种视锥细胞来自对狗的一般研究,这些来源中没有研究比较不同品种的颜色视觉。真正不同的是密集细胞所在的位置。McGreevy 及其同事发现,长吻犬像狼一样有水平排列的神经节细胞带,而巴哥犬只有一个中央密集区。灵缇和巴哥犬看到的颜色可能相同,但扫描世界的方式不同。关于猫,这些来源完全没有品种比较。
大象是一个很清楚的例子。由非洲象和亚洲象基因制成的色素峰值为 419 和 552 nm,与患有绿色盲这一类红绿色盲的人相同。猪(439 和 556 nm)、豚鼠(429 和 529 nm)和兔(425 和 523 nm)也具有二色视觉,各自峰值略有不同。旧世界猴的峰值接近 430、535 和 565 nm,与我们自己的视锥细胞几乎完全相同。
鸟类有四种视锥细胞和彩色油滴。欧洲椋鸟的单视锥细胞峰值为 563、504、449 和约 362 nm,最后一种是真正的紫外视锥细胞。绿头鸭约为 420、452、502 和 570 nm。孔雀的色素峰值为 424、458、505 和 567 nm,经过油滴过滤后,敏感度峰值变为 432、477、537 和 605 nm。红耳龟将四种色素与油滴组合成七种视锥细胞。企鹅则走了另一条路,保留了三种视锥细胞,峰值为 403、450 和 543 nm,适合蓝绿色的水域。
从动物的高度看
新增的「视线高度」开关把相机移到动物眼睛所在的位置,让你从那里环顾四周。小鼠从 3 cm 高处向外看,低于草叶顶端,于是草坪变成草叶森林,盘子里的苹果藏着,直到你转向它们才看得见。狗从 50 cm 高处看,人从 1.6 m,长颈鹿从 5 m 高处俯看整座花园。传粉者从低矮黄花旁开始,蜜蜂的高度是 12 cm。
这些高度是模型值,代表成年动物站立或停栖时的典型高度,不是论文中的测量值。水生动物在这个舞台上没有眼睛高度,因为视线高度视图只在花园和森林中生效。高度的影响可能比你预想的更大。在 3 cm 高处,地面附近的一切都又大又近,天空占据视图的上半部,一米外的物体可能藏在一片草叶后面。在 5 m 高处,同一座花园变成一小块,花朵只是小点,长颈鹿视网膜每度 25 至 27 个周期的视敏度比它的颜色视觉更重要。
数小面
复眼通过许多彼此独立、朝向略有不同的小面采样世界。相邻小面之间的角度限制眼睛能分辨多细的图案,舞台按这个间距把视图画成蜂窝,每个六边形对自己的区域取平均。Seidl 和 Kaiser 在 1981 年计数发现,工蜂每只眼睛平均有 5,432 个小面,两只眼睛合起来几乎能看到完整的球面。把 5,432 个六边形铺在约半个球面上,平均间距接近 2 度。在蜜蜂看花的眼睛前部,小面的朝向更密,约相隔 0.93 度。读数给出这个数值,以及当前视图横向能容纳多少小面。
蚊子展示了昆虫眼睛可以有多粗糙。雌性埃及伊蚊(Aedes aegypti)的小面相隔 6.2 度,因此能分辨的最小角度约为 12.3 度,大致相当于伸直手臂时手掌的宽度。后来一项蜜蜂感光细胞研究发现,眼睛前部的单个感光细胞能对小至 0.6 乘 0.6 度的物体响应,比小面间距所暗示的更精细。蜂窝表示蜜蜂探测能力的下限,并非它所能注意到的一切。
并非每种复眼都逐小面独立工作。在某些大洋虾类和龙虾中,内衬镜面的方形管把许多小面的光反射到同一点,形成一个明亮的图像。Land 在 1976 年描述了这种反射重叠眼。舞台不能绘出这种差异,因此龙虾也采用相同的蜂窝,间距为模型值。
黑暗中的颗粒
光以光子的形式到达,在弱光中,每个感光细胞在形成图像的时间内只能捕获少量光子。数量每时每刻随机波动,波动幅度约等于数量的平方根。捕获 100 个光子的感光细胞波动为 10,即信号的 10%;捕获 4 个的波动为 2,即 50%。这种随机性就是光子噪声,也是月光下的场景显得有颗粒的原因。夜间视图加入遵循这一规律的颗粒,它随每处亮度的平方根增大,随光照或动物增益的提高而减小。猫的增益为人的 5.5 倍,在相同光照下颗粒更少。颗粒尺度是模型值,平方根规律不是。
体温低的动物还有一个优势。即使完全没有光,视杆细胞偶尔也会被热触发而产生信号,这种暗噪声为眼睛能探测的最微弱光线设下了下限。Aho 及其同事比较了不同温度下的物种,发现低温时视网膜噪声更低、绝对敏感度更高,这对蟾蜍和青蛙有帮助。青蛙还更进一步。它们有两种视杆细胞,在 2017 年的一项研究中,向光跳跃的青蛙能分辨蓝色和绿色,直到它们所能看见的最微弱光线。
几乎不能成像的眼睛
现在的动物名单包括一些眼睛功能比看清图像更特别的动物。鹦鹉螺的针孔眼没有晶状体,与海水相通,最小可分辨角为 5.5 至 11.25 度。石鳖的壳板上有数百只小眼睛,透镜由霰石这种矿物构成,在空气和水中都能分辨约 9 至 12 度。箱水母的透镜能形成几乎完美的图像,但视网膜偏离焦点,因此每个感光细胞看到的是一大片模糊区域。海星每条腕的末端都有一只没有透镜的复眼,反应慢且色盲,却足以引导它回到珊瑚礁。在尺度的另一端,大王乌贼直径约 27 cm、瞳孔 9 cm 的眼球是所有动物中最大的眼睛,而撒网蛛的后眼光圈数为 0.58,每个感光细胞捕获的光约为跳蛛的 2,000 倍。
测量其他眼睛的简史
20 世纪的大部分时间里,人们必须根据行为推断动物看到什么,训练它为获得奖励而选择一张卡片,再看它会混淆哪些卡片。这些实验很慢,但回答了关键问题,即动物实际上能利用什么信息。这里的许多数字仍来自它们,包括 1992 年的马视敏度、2002 年天蛾的星光辨色,以及 2014 年的螳螂虾实验。
生理学提供了第二条途径。1952 年,Bullock 和 Cowles 把电极放在蝮蛇面部颊窝的神经上,观察温暖物体靠近时神经产生的信号。显微分光光度法让研究者把一束微小的光照过单个感光细胞,读出其色素的吸收,1980 年的人类视锥细胞峰值、1997 年的鸟类视锥细胞和 2011 年的鲨鱼色素就是这样测得的。从眼表记录的视网膜电图,在无需解剖的情况下给出了马、牛和鹿的视锥细胞曲线。
遗传学是最新的途径。计算动物携带的视蛋白基因数量,可以知道它可能制造多少种色素,结果发现蜻蜓携带 15 至 33 个。不过,基因数量并不等于色觉。螳螂虾的故事提醒我们,行为仍有最终发言权,感光细胞多,本身并不能带来精细的颜色分辨能力。
自己试一试
控制区下方的面板有十二项任务,让你像研究者一样使用舞台。按下某项任务的「开始」,它会设置好场景;然后改变动物、光线或距离,直到方框打勾。其中一项要求找到只有能看紫外线的眼睛才看得到的花纹。另一项要求找到会混淆红球和绿球的动物。其他任务包括谁能在星光下保留颜色,谁能看到身后,哪种动物能看到 60 Hz 屏幕闪烁,在多远处只有雕仍认得兔子,红鱼在多深处变灰,水平瞳孔会模糊什么,以及要眺望多远,狗的视图才会在你的视图旁显得模糊。三个较新的任务使用视线高度视图,从蜜蜂高度寻找鹅绒委陵菜的蜜导,从 3 cm 高处以小鼠视角寻找苹果,以及查看三种视野延伸到身后的动物。任务下方的案例列表有 102 项研究,「展示」会把舞台设置成与各项研究相符的状态。
视图怎样计算
一切都在图形芯片上分两遍完成。首先以线性颜色把场景画到一张屏外图像中,另一张较小的图像记录每个表面的紫外反射率、温度、偏振强度以及距离。然后一个全屏着色器把这两张图像变成动物的视图。
颜色沿用 Machado 及其同事在 2009 年的方法,并扩展到其他动物。屏幕用三种窄带基色生成每种颜色,因此每个像素的光谱是已知的。把该光谱与动物每种感光细胞的曲线相乘,便得到捕获光量,再作归一化,使带平均紫外值的白色在每种感光细胞中都得到 1。随后舞台寻找能让你获得类似结果的屏幕颜色。两种感光细胞有精确答案,即白色与蓝色之间的平面上,能让动物两种感光细胞得到相同捕获量的颜色,因此动物会混淆的任意两种颜色显示出来都相同。对于包含紫外的三种感光细胞,最短波显示为蓝色,中间显示为绿色,最长波显示为红色,这是蜜蜂常用的伪彩色。四种感光细胞的眼睛无法在三色屏幕上呈现,因此保留你原本看到的颜色,若该眼睛感受紫外线,就叠加紫色色调。一种感光细胞产生灰色图像。
清晰度用模糊表示,半径等于屏幕每度像素数除以(2 × 动物每度周期数)。复眼按小面间距绘成蜂窝,每格对自己的区域取平均。在弱光中,亮度根据各动物的增益按对数尺度下降,低于动物的辨色极限时颜色消退,光子噪声增大(见「黑暗中的颗粒」)。水下,每种颜色都乘以沿途的透射率。全景中,场景先渲染成立方体贴图,再在你周围展开。
花园怎样绘制
这一版重建了场景,使形状看起来自然,而不再像平面三角形切片。每片草叶都是狭窄的曲面条带,数千片一次批量绘制,图形芯片上的小程序让它们随风弯曲,处理器无需逐片移动。花瓣和叶子是曲面,而非平面剪片。鹅绒委陵菜花朵带有只输入紫外通道的图案,因此蜜蜂和其他能看紫外线的眼睛能看到暗色花心,你自己的视图却永远看不到。石头是经分形噪声扭曲并保持表面光滑的球体,苹果、球、盘子和杯子使用精细细分的形状,表层覆盖一层透明、釉质般的涂层。每个场景通过预过滤环境贴图从自己的天空获得照明,阴影边缘柔和,性能较强的设备还增加一遍处理,压暗物体与地面接合的缝隙(环境光遮蔽)。较慢的设备会自动省去额外处理,保留相同的视图。
这些是用于比较眼睛的图像,不是照片。草没有种子,鹿没有毛,真实花朵的颜色变化远超过三片花坛能展示的范围。紫外图案遵循所引论文的描述,并未在这些花朵上实测。
模型省略了什么
屏幕发出的是为人类视锥细胞选择的三种颜色,因此这些视图都不能展示动物的主观体验,每一种只是把其感光细胞会接收的信息转成你能看到的颜色。标为「模型」的数字是选择值,而非测量值,包括这些来源没有给出色素数据的动物的感光细胞峰值、守宫和天蛾的亮度增益、瞳孔模糊强度、几种昆虫的小面尺寸,以及视线高度视图中的眼睛高度。视杆细胞有自己的光谱敏感度,接近 500 nm,会使夜景偏向蓝绿色;舞台只让颜色消退。大脑与眼睛同样重要,两种动物即使视锥细胞相同,也可能学会以不同方式解读它们。个体和品种也有差异,这里的数字是单项研究中的典型值。
你自己的照片与相机
「我的照片」和「相机」从设备加载图片或打开相机,但只在你按下时才执行。图像由你的图形芯片在本页处理,不会上传或存储。照片只记录相机传感器捕获的三种颜色,不含紫外、热或偏振信息,因此这些通道保持为空,舞台也会说明。
常见问题
狗是色盲吗?
不完全是。狗有两种视锥细胞,峰值接近 429 和 555 nm,因此能清楚看见蓝色和黄色,却会混淆红色、橙色和绿色。这接近人类的红绿色盲,而不是灰色世界。
什么颜色的玩具最容易被狗在草地上看到?
蓝色。在狗的视图中,红球和绿球的色差约为 5 个单位,蓝球与草地则相差约 100 个单位。
猫能在黑暗中看见东西吗?
任何眼睛都不能在完全黑暗中看见东西。猫能探测到比人类极限暗约 5.5 倍的光,主要靠大瞳孔和光学系统,代价是白天的视觉更模糊,色觉也较弱。
哪种动物夜间看得最好?
这取决于「最好」的含义。说辨色,是红天蛾,它能在 0.0001 cd/m² 的微弱星光下选择颜色。说亮度,鸮和猫能比我们收集更多光。许多夜行动物还有反光膜,让光再次通过。
哪种动物的眼睛最敏锐?
在这里的动物中是楔尾雕,每度 132 至 143 个周期。无脊椎动物中,跳蛛的长焦眼能达到约 12.5,远好于同样大小的昆虫。
为什么狗的视图看起来和我的一样清晰?
因为正常视图下的限制来自屏幕,而非眼睛。花园的一度仅占约 8 至 20 个像素,足以显示每度 4 至 10 个周期,而你(约 60)和狗(约 12)都能看得更细。把「远眺」调到 ×4 或 ×8,每度就有足够像素,狗的半边会模糊,你的仍然清晰。
有动物能看见自己身后吗?
马能覆盖约 350 度,因此除了正后方狭窄的一条和额头前的一小块,几乎能看到周围的一切。绿头鸭和丘鹬能达到整整 360 度。打开全景,与人的 180 度比较。
为什么有些动物看屏幕会闪烁?
许多屏幕和灯每秒改变亮度 60 或 100 次。这比人的闪光融合频率快,因此我们看到稳定的光。狗、许多鸟类和大多数飞行昆虫的融合频率更高,能看到闪烁。
这些视图中的紫外线是真实的吗?
模型依照已知图案,例如金光菊的环纹,为每个表面赋予紫外值,并用伪彩色绘出。屏幕不能产生紫外线,因此这些视图是替代表示。
螳螂虾看到的颜色最多吗?
它们有最多的感光细胞类型,共 12 种,但在实验中,颜色分辨比蝴蝶或人更粗。它们似乎根据哪种感光细胞产生响应来识别颜色,而不是比较各细胞。
鲨鱼是色盲吗?
很可能是。测量的全部 17 种鲨鱼都只有一种视锥细胞。它们仍能很好地看出对比、运动和亮度。
为什么手电光下动物的眼睛会发亮?
它们有反光膜,即视网膜后的一层镜面,把光送回感光细胞。再次逸出的光就是眼睛的反光。
山羊为什么有长方形瞳孔?
水平横条沿地面提供宽广清晰的视野,捕食者会从那里接近。低头时它们的眼睛会转动,因此吃草时瞳孔保持水平。
蛇用眼睛看热吗?
不是。蝮蛇、蟒蛇和蚺用面部独立的颊窝感受红外线。热量打开颊窝神经中的热敏 TRPA1 通道。眼睛与颊窝一起工作。
水下为什么一切都变蓝?
水对红光的吸收远强于蓝光,650 nm 处约为 450 nm 处的 37 倍。下潜几米,大部分红光就消失了。
不同品种的狗看颜色有差别吗?
这些来源中没有研究比较不同品种的颜色视觉,两种视锥细胞来自对狗的一般测量。品种间确实存在神经节细胞分布的差异。长吻犬像狼一样有水平细胞带,短吻犬则有中央密集区。
小鼠眼中的花园是什么样?
从 3 cm 高处看,草高过眼睛,苹果藏在草叶后面,每度约 0.5 个周期让一切都模糊柔和。小鼠的视锥细胞捕获紫外和绿色,因此红苹果显得暗。选择小鼠并打开「视线高度」试试。
蜜蜂眼睛有多少个透镜?
工蜂每只眼睛平均有 5,432 个小面,每个都有自己的透镜。在眼睛前部,它们的朝向相隔约 0.93 度。
夜间视图为什么有颗粒?
弱光中,每个感光细胞一次只能捕获少量光子,数量随机波动,幅度约为其平方根。舞台按这条规律加入颗粒,因此光越暗颗粒越强,眼睛更敏感的动物颗粒更弱。
哪种动物眼睛最大?
大王乌贼和大王酸浆鱿(Architeuthis 和 Mesonychoteuthis)。一个大王乌贼眼球测得直径约 27 cm,瞳孔 9 cm。
大象能看见颜色吗?
能,它们有二色视觉。色素峰值为 419 和 552 nm,与绿色盲者相同。
术语
- 视锥细胞:视网膜中在日光下工作的感光细胞。比较不同视锥细胞类型的响应产生颜色。
- 视杆细胞:感受弱光的细胞。视杆细胞不区分颜色。
- 二色视觉、三色视觉、四色视觉:比较两种、三种或四种感光细胞的眼睛。
- 峰值波长(λmax):感光细胞响应最强的波长,以纳米计。
- 每度周期数(cpd):眼睛在一度视角内能分辨多少对明暗条纹。
- 临界闪光融合频率(CFF):闪光融合成稳定光的闪烁频率。
- 反光膜:许多夜行动物视网膜后的一层反光结构。
- 小眼:复眼的一个单元,有自己的透镜和感光细胞。
- 颊窝:蝮蛇、蟒蛇和蚺面部感热的凹窝。
- cd/m²:每平方米坎德拉,衡量表面看起来有多亮;日光场景在数千左右,星光约为 0.0001。
- 偏振:光波振动的方向。水面和光亮鳞片反射的光常有偏振性。
- 眼睛高度:视线高度视图中,各动物的相机距地面的高度,是模型值。
- 重叠眼:通过透镜或镜面将许多小面的光合成一幅图像的复眼。
- 光子噪声:感光细胞捕获光子数量的随机波动,约为数量的平方根。
参考资料
所有地址(核查于 2026 年 10 月 18 日);第三版新增来源(核查于 2026 年 10 月 19 日)。
- Bowmaker, J. K. & Dartnall, H. J. A. (1980) Visual pigments of rods and cones in a human retina, Journal of Physiology 298: 501-511. https://doi.org/10.1113/jphysiol.1980.sp013097
- Govardovskii, V. I. et al. (2000) In search of the visual pigment template, Visual Neuroscience 17: 509-528. https://doi.org/10.1017/S0952523800174036
- Machado, G. M., Oliveira, M. M. & Fernandes, L. A. F. (2009) A physiologically-based model for simulation of color vision deficiency, IEEE Transactions on Visualization and Computer Graphics 15: 1291-1298. https://doi.org/10.1109/TVCG.2009.113
- Campbell, F. W. & Green, D. G. (1965) Optical and retinal factors affecting visual resolution, Journal of Physiology 181: 576-593. https://doi.org/10.1113/jphysiol.1965.sp007784
- Spector, R. H. (1990) Visual Fields, in Clinical Methods, 3rd edition, NCBI Bookshelf NBK220. https://www.ncbi.nlm.nih.gov/books/NBK220/
- Neitz, J., Geist, T. & Jacobs, G. H. (1989) Color vision in the dog, Visual Neuroscience 3: 119-125. https://doi.org/10.1017/S0952523800004430
- Odom, J. V., Bromberg, N. M. & Dawson, W. W. (1983) Canine visual acuity: retinal and cortical field potentials evoked by pattern stimulation, American Journal of Physiology 245: R637-R641. https://doi.org/10.1152/ajpregu.1983.245.5.R637
- Miller, P. E. & Murphy, C. J. (1995) Vision in dogs, Journal of the American Veterinary Medical Association 207: 1623-1634. https://doi.org/10.2460/javma.1995.207.12.1623
- Miller, P. E., Vision in Animals: What do Dogs and Cats See?, Veterinary Information Network. https://www.vin.com/apputil/content/defaultadv1.aspx?catId=29216&id=3844144
- Daw, N. W. & Pearlman, A. L. (1969) Cat colour vision: one cone process or several?, Journal of Physiology 201: 745-764. https://doi.org/10.1113/jphysiol.1969.sp008785
- Zrenner, E. & Gouras, P. (1979) Blue-sensitive cones of the cat produce a rodlike electroretinogram, Investigative Ophthalmology and Visual Science 18: 1076-1081, PubMed 478777. https://pubmed.ncbi.nlm.nih.gov/478777/
- Kang, I. et al. (2009) Contrast sensitivity of cats and humans in scotopic and mesopic conditions, Journal of Neurophysiology 102: 831-840. https://doi.org/10.1152/jn.90641.2008
- Carroll, J. et al. (2001) Photopigment basis for dichromatic color vision in the horse, Journal of Vision 1: 80-87. https://doi.org/10.1167/1.2.2
- Timney, B. & Keil, K. (1992) Visual acuity in the horse, Vision Research 32: 2289-2293. https://doi.org/10.1016/0042-6989(92)90092-W
- Harman, A. M. et al. (1999) Horse vision and an explanation for the visual behaviour originally explained by the ramp retina, Equine Veterinary Journal 31: 384-390. https://doi.org/10.1111/j.2042-3306.1999.tb03837.x
- UC Davis School of Veterinary Medicine, Center for Equine Health, Equine vision and performance. https://cehhorsereport.vetmed.ucdavis.edu/news/equine-vision-and-performance
- Jacobs, G. H., Deegan, J. F. & Neitz, J. (1998) Photopigment basis for dichromatic color vision in cows, goats, and sheep, Visual Neuroscience 15: 581-584. https://doi.org/10.1017/S0952523898153154
- Jacobs, G. H. et al. (1994) Electrophysiological measurements of spectral mechanisms in the retinas of two cervids, Journal of Comparative Physiology A 174: 551-557. https://doi.org/10.1007/BF00217375
- D'Angelo, G. J. et al. (2008) Visual specialization of an herbivore prey species, the white-tailed deer, Canadian Journal of Zoology 86: 735-743. https://doi.org/10.1139/Z08-050
- Banks, M. S. et al. (2015) Why do animal eyes have pupils of different shapes?, Science Advances 1: e1500391. https://doi.org/10.1126/sciadv.1500391
- Jacobs, G. H., Neitz, J. & Deegan, J. F. (1991) Retinal receptors in rodents maximally sensitive to ultraviolet light, Nature 353: 655-656. https://doi.org/10.1038/353655a0
- Wang, Y. V., Weick, M. & Demb, J. B. (2011) Spectral and temporal sensitivity of cone-mediated responses in mouse retinal ganglion cells, Journal of Neuroscience 31: 7670-7681. https://doi.org/10.1523/JNEUROSCI.0629-11.2011
- Prusky, G. T., West, P. W. & Douglas, R. M. (2000) Behavioral assessment of visual acuity in mice and rats, Vision Research 40: 2201-2209. https://doi.org/10.1016/S0042-6989(00)00081-X
- Jacobs, G. H., Fenwick, J. A. & Williams, G. A. (2001) Cone-based vision of rats for ultraviolet and visible lights, Journal of Experimental Biology 204: 2439-2446. https://doi.org/10.1242/jeb.204.14.2439
- Winter, Y., López, J. & von Helversen, O. (2003) Ultraviolet vision in a bat, Nature 425: 612-614. https://doi.org/10.1038/nature01971
- Peitsch, D. et al. (1992) The spectral input systems of hymenopteran insects and their receptor-based colour vision, Journal of Comparative Physiology A 170: 23-40. https://doi.org/10.1007/BF00190398
- Ryan, L. A. et al. (2020) The buzz around spatial resolving power and contrast sensitivity in the honeybee, Apis mellifera, Vision Research 169: 25-32. https://doi.org/10.1016/j.visres.2020.02.005
- Horth, L., Campbell, L. & Bray, R. (2014) Wild bees preferentially visit Rudbeckia flower heads with exaggerated ultraviolet absorbing floral guides, Biology Open 3, PubMed Central. https://pmc.ncbi.nlm.nih.gov/articles/PMC4001241/
- Koshitaka, H. et al. (2008) Tetrachromacy in a butterfly that has eight varieties of spectral receptors, Proceedings of the Royal Society B 275: 947-954. https://doi.org/10.1098/rspb.2007.1614
- Arikawa, K. (2003) Spectral organization of the eye of a butterfly, Papilio, Journal of Comparative Physiology A 189: 791-800. https://doi.org/10.1007/s00359-003-0454-7
- Kelber, A., Balkenius, A. & Warrant, E. J. (2002) Scotopic colour vision in nocturnal hawkmoths, Nature 419: 922-925. https://doi.org/10.1038/nature01065
- Johnsen, S. et al. (2006) Crepuscular and nocturnal illumination and its effects on color perception by the nocturnal hawkmoth Deilephila elpenor, Journal of Experimental Biology 209: 789-800. https://doi.org/10.1242/jeb.02053
- Thoen, H. H. et al. (2014) A different form of color vision in mantis shrimp, Science 343: 411-413. https://doi.org/10.1126/science.1245824
- Chiou, T.-H. et al. (2008) Circular polarization vision in a stomatopod crustacean, Current Biology 18: 429-434. https://doi.org/10.1016/j.cub.2008.02.066
- Reymond, L. (1985) Spatial visual acuity of the eagle Aquila audax, Vision Research 25: 1477-1491. https://doi.org/10.1016/0042-6989(85)90226-3
- Lind, O. et al. (2013) Ultraviolet sensitivity and colour vision in raptor foraging, Journal of Experimental Biology 216: 1819-1826. https://doi.org/10.1242/jeb.082834
- Martin, G. R. (1984) The visual fields of the tawny owl, Strix aluco L., Vision Research 24: 1739-1751. https://doi.org/10.1016/0042-6989(84)90005-1
- Martin, G. R. & Gordon, I. E. (1974) Visual acuity in the tawny owl (Strix aluco), Vision Research 14: 1393-1397. https://doi.org/10.1016/0042-6989(74)90014-5
- Orlowski, J. et al. (2012) Night vision in barn owls: visual acuity and contrast sensitivity under dark adaptation, Journal of Vision 12(13): 4. https://doi.org/10.1167/12.13.4
- Bowmaker, J. K. et al. (1997) Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds, Vision Research 37: 2183-2194. https://doi.org/10.1016/S0042-6989(97)00026-6
- Palacios, A. G. et al. (1998) Spectral sensitivity of cones in the goldfish, Carassius auratus, Vision Research 38: 2135-2146. https://doi.org/10.1016/S0042-6989(97)00411-2
- Bowmaker, J. K., Thorpe, A. & Douglas, R. H. (1991) Ultraviolet-sensitive cones in the goldfish, Vision Research 31: 349-352. https://doi.org/10.1016/0042-6989(91)90087-L
- Hart, N. S. et al. (2011) Microspectrophotometric evidence for cone monochromacy in sharks, Naturwissenschaften 98: 193-201. https://doi.org/10.1007/s00114-010-0758-8
- Hanke, F. D. & Kelber, A. (2020) The eye of the common octopus (Octopus vulgaris), Frontiers in Physiology 10: 1637. https://doi.org/10.3389/fphys.2019.01637
- Marshall, N. J. & Messenger, J. B. (1996) Colour-blind camouflage, Nature 382: 408-409. https://doi.org/10.1038/382408b0
- Kelman, E. J., Osorio, D. & Baddeley, R. J. (2008) A review of cuttlefish camouflage and object recognition and evidence for depth perception, Journal of Experimental Biology 211: 1757-1763. https://doi.org/10.1242/jeb.015149
- Mäthger, L. M. et al. (2013) The W-shaped pupil in cuttlefish (Sepia officinalis): functions for improving horizontal vision, Vision Research 83: 19-24. https://doi.org/10.1016/j.visres.2013.02.016
- Gracheva, E. O. et al. (2010) Molecular basis of infrared detection by snakes, Nature 464: 1006-1011. https://doi.org/10.1038/nature08943
- Bullock, T. H. & Cowles, R. B. (1952) Physiology of an infrared receptor: the facial pit of pit vipers, Science 115: 541-543. https://doi.org/10.1126/science.115.2994.541-b
- Roth, L. S. V. & Kelber, A. (2004) Nocturnal colour vision in geckos, Proceedings of the Royal Society B 271 (Suppl. 6): S485-S487. https://doi.org/10.1098/rsbl.2004.0227
- Roth, L. S. V. et al. (2009) The pupils and optical systems of gecko eyes, Journal of Vision 9(3): 27. https://doi.org/10.1167/9.3.27
- Ott, M. (2001) Chameleons have independent eye movements but synchronise both eyes during saccadic prey tracking, Experimental Brain Research 139: 173-179. https://doi.org/10.1007/s002210100774
- Land, M. F. (1997) Visual acuity in insects, Annual Review of Entomology 42: 147-177. https://doi.org/10.1146/annurev.ento.42.1.147
- Futahashi, R. et al. (2015) Extraordinary diversity of visual opsin genes in dragonflies, PNAS 112: E1247-E1256. https://doi.org/10.1073/pnas.1424670112
- Williams, D. S. & McIntyre, P. (1980) The principal eyes of a jumping spider have a telephoto component, Nature 288: 578-580. https://doi.org/10.1038/288578a0
- DeVoe, R. D. (1975) Ultraviolet and green receptors in principal eyes of jumping spiders, Journal of General Physiology 66: 193-207. https://doi.org/10.1085/jgp.66.2.193
- Zurek, D. B. et al. (2015) Spectral filtering enables trichromatic vision in colorful jumping spiders, Current Biology 25: R403-R404. https://doi.org/10.1016/j.cub.2015.03.033
- Palmer, B. A. et al. (2017) The image-forming mirror in the eye of the scallop, Science 358: 1172-1175. https://doi.org/10.1126/science.aam9506
- Speiser, D. I. & Johnsen, S. (2008) Scallops visually respond to the size and speed of virtual particles, Journal of Experimental Biology 211: 2066-2070. https://doi.org/10.1242/jeb.017038
- Ollivier, F. J. et al. (2004) Comparative morphology of the tapetum lucidum (among selected species), Veterinary Ophthalmology 7: 11-22. https://doi.org/10.1111/j.1463-5224.2004.00318.x
- Inger, R. et al. (2014) Potential biological and ecological effects of flickering artificial light, PLoS ONE 9: e98631 (Table S1, critical fusion frequencies). https://doi.org/10.1371/journal.pone.0098631
- Pope, R. M. & Fry, E. S. (1997) Absorption spectrum (380-700 nm) of pure water II: integrating cavity measurements, Applied Optics 36: 8710-8723. https://doi.org/10.1364/AO.36.008710
- Neitz, J. & Jacobs, G. H. (1989) Spectral sensitivity of cones in an ungulate, Visual Neuroscience 2: 97-100. https://doi.org/10.1017/S0952523800011949
- Nuboer, J. F. W., van Nuys, W. M. & Wortel, J. F. (1983) Cone systems in the rabbit retina revealed by ERG-null-detection, Journal of Comparative Physiology 151: 347-352. https://doi.org/10.1007/BF00623909
- Jacobs, G. H. & Deegan, J. F. (1994) Spectral sensitivity, photopigments, and color vision in the guinea pig (Cavia porcellus), Behavioral Neuroscience 108: 993-1004. https://doi.org/10.1037/0735-7044.108.5.993
- Coimbra, J. P. et al. (2013) Scene from above: retinal ganglion cell topography and spatial resolving power in the giraffe (Giraffa camelopardalis), Journal of Comparative Neurology 521: 2042-2057. https://doi.org/10.1002/cne.23271
- Yokoyama, S. et al. (2005) Elephants and human color-blind deuteranopes have identical sets of visual pigments, Genetics 170: 335-344. https://doi.org/10.1534/genetics.104.039511
- Fasick, J. I. et al. (1998) The visual pigments of the bottlenose dolphin (Tursiops truncatus), Visual Neuroscience 15: 643-651. https://doi.org/10.1017/S0952523898154056
- Peichl, L., Behrmann, G. & Kröger, R. H. H. (2001) For whales and seals the ocean is not blue: a visual pigment loss in marine mammals, European Journal of Neuroscience 13: 1520-1528. https://doi.org/10.1046/j.0953-816x.2001.01533.x
- Bowmaker, J. K. et al. (1991) Photosensitive and photostable pigments in the retinae of Old World monkeys, Journal of Experimental Biology 156: 1-19. https://doi.org/10.1242/jeb.156.1.1
- Jacobs, G. H. (1996) Primate photopigments and primate color vision, PNAS 93: 577-581. https://doi.org/10.1073/pnas.93.2.577
- Jacobs, G. H. (2009) Evolution of colour vision in mammals, Philosophical Transactions of the Royal Society B 364: 2957-2967. https://doi.org/10.1098/rstb.2009.0039
- Hogg, C. et al. (2011) Arctic reindeer extend their visual range into the ultraviolet, Journal of Experimental Biology 214: 2014-2019. https://doi.org/10.1242/jeb.053553
- Bowmaker, J. K. & Martin, G. R. (1985) Visual pigments and oil droplets in the penguin, Spheniscus humboldti, Journal of Comparative Physiology A 156: 71-77. https://doi.org/10.1007/BF00610668
- Martin, G. R. & Young, S. R. (1984) The eye of the Humboldt penguin, Spheniscus humboldti: visual fields and schematic optics, Proceedings of the Royal Society B 223: 197-222. https://doi.org/10.1098/rspb.1984.0090
- Herrera, G. et al. (2008) Spectral sensitivities of photoreceptors and their role in colour discrimination in the green-backed firecrown hummingbird (Sephanoides sephaniodes), Journal of Comparative Physiology A 194: 785-794. https://doi.org/10.1007/s00359-008-0349-8
- Hart, N. S., Partridge, J. C. & Cuthill, I. C. (1998) Visual pigments, oil droplets and cone photoreceptor distribution in the European starling (Sturnus vulgaris), Journal of Experimental Biology 201: 1433-1446. https://doi.org/10.1242/jeb.201.9.1433
- Hart, N. S. (2002) Vision in the peafowl (Aves: Pavo cristatus), Journal of Experimental Biology 205: 3925-3935. https://doi.org/10.1242/jeb.205.24.3925
- Jane, S. D. & Bowmaker, J. K. (1988) Tetrachromatic colour vision in the duck (Anas platyrhynchos L.): microspectrophotometry of visual pigments and oil droplets, Journal of Comparative Physiology A 162: 225-235. https://doi.org/10.1007/BF00606087
- Martin, G. R. (1986) Total panoramic vision in the mallard duck, Anas platyrhynchos, Vision Research 26: 1303-1305. https://doi.org/10.1016/0042-6989(86)90112-4
- Martin, G. R. (1994) Visual fields in woodcocks Scolopax rusticola (Scolopacidae; Charadriiformes), Journal of Comparative Physiology A 174. https://doi.org/10.1007/BF00192728
- Viitala, J. et al. (1995) Attraction of kestrels to vole scent marks visible in ultraviolet light, Nature 373: 425-427. https://doi.org/10.1038/373425a0
- Loew, E. R. & Govardovskii, V. I. (2001) Photoreceptors and visual pigments in the red-eared turtle, Trachemys scripta elegans, Visual Neuroscience 18: 753-757. https://doi.org/10.1017/S0952523801185081
- Loew, E. R. et al. (2002) Visual pigments and oil droplets in diurnal lizards: a comparative study of Caribbean anoles, Journal of Experimental Biology 205: 927-938. https://doi.org/10.1242/jeb.205.7.927
- Nagloo, N. et al. (2016) Spatial resolving power and spectral sensitivity of the saltwater crocodile, Crocodylus porosus, and the freshwater crocodile, Crocodylus johnstoni, Journal of Experimental Biology 219: 1394-1404. https://doi.org/10.1242/jeb.135673
- Yovanovich, C. A. M. et al. (2017) The dual rod system of amphibians supports colour discrimination at the absolute visual threshold, Philosophical Transactions of the Royal Society B 372: 20160066. https://doi.org/10.1098/rstb.2016.0066
- Aho, A.-C. et al. (1988) Low retinal noise in animals with low body temperature allows high visual sensitivity, Nature 334: 348-350. https://doi.org/10.1038/334348a0
- Allison, W. T. et al. (2004) Visual pigment composition in zebrafish: evidence for a rhodopsin-porphyropsin interchange system, Visual Neuroscience 21: 945-952. https://doi.org/10.1017/S0952523804216145
- Archer, S. N. & Lythgoe, J. N. (1990) The visual pigment basis for cone polymorphism in the guppy, Poecilia reticulata, Vision Research 30: 225-233. https://doi.org/10.1016/0042-6989(90)90038-M
- Muir, L. E., Thorne, M. J. & Kay, B. H. (1992) Aedes aegypti (Diptera: Culicidae) vision: spectral sensitivity and other perceptual parameters of the female eye, Journal of Medical Entomology 29: 278-281. https://doi.org/10.1093/jmedent/29.2.278
- Mote, M. I. & Wehner, R. (1980) Functional characteristics of photoreceptors in the compound eye and ocellus of the desert ant, Cataglyphis bicolor, Journal of Comparative Physiology 137: 63-71. https://doi.org/10.1007/BF00656918
- Salcedo, E. et al. (1999) Blue- and green-absorbing visual pigments of Drosophila: ectopic expression and physiological characterization of the R8 photoreceptor cell-specific Rh5 and Rh6 rhodopsins, Journal of Neuroscience 19: 10716-10726. https://doi.org/10.1523/JNEUROSCI.19-24-10716.1999
- Skorupski, P. & Chittka, L. (2010) Photoreceptor spectral sensitivity in the bumblebee, Bombus impatiens (Hymenoptera: Apidae), PLoS ONE 5: e12049. https://doi.org/10.1371/journal.pone.0012049
- Nityananda, V. et al. (2016) Insect stereopsis demonstrated using a 3D insect cinema, Scientific Reports 6: 18718. https://doi.org/10.1038/srep18718
- Land, M. F. (1976) Superposition images are formed by reflection in the eyes of some oceanic decapod Crustacea, Nature 263: 764-765. https://doi.org/10.1038/263764a0
- Nilsson, D.-E. et al. (2012) A unique advantage for giant eyes in giant squid, Current Biology 22: 683-688. https://doi.org/10.1016/j.cub.2012.02.031
- Muntz, W. R. A. & Raj, U. (1984) On the visual system of Nautilus pompilius, Journal of Experimental Biology 109: 253-263. https://doi.org/10.1242/jeb.109.1.253
- Speiser, D. I., Eernisse, D. J. & Johnsen, S. (2011) A chiton uses aragonite lenses to form images, Current Biology 21: 665-670. https://doi.org/10.1016/j.cub.2011.03.033
- Blest, A. D. & Land, M. F. (1977) The physiological optics of Dinopis subrufus L. Koch: a fish-lens in a spider, Proceedings of the Royal Society B 196: 197-222. https://doi.org/10.1098/rspb.1977.0037
- Nilsson, D.-E. et al. (2005) Advanced optics in a jellyfish eye, Nature 435: 201-205. https://doi.org/10.1038/nature03484
- Garm, A. & Nilsson, D.-E. (2014) Visual navigation in starfish: first evidence for the use of vision and eyes in starfish, Proceedings of the Royal Society B 281: 20133011. https://doi.org/10.1098/rspb.2013.3011
- Seidl, R. & Kaiser, W. (1981) Visual field size, binocular domain and the ommatidial array of the compound eyes in worker honey bees, Journal of Comparative Physiology 143: 17-26. https://doi.org/10.1007/BF00606065
- McGreevy, P., Grassi, T. D. & Harman, A. M. (2004) A strong correlation exists between the distribution of retinal ganglion cells and nose length in the dog, Brain, Behavior and Evolution 63: 13-22. https://doi.org/10.1159/000073756
- Koski, M. H. & Ashman, T.-L. (2015) Floral pigmentation patterns provide an example of Gloger's rule in plants, Nature Plants 1: 14007. https://doi.org/10.1038/nplants.2014.7
- Rigosi, E., Wiederman, S. D. & O'Carroll, D. C. (2017) Visual acuity of the honey bee retina and the limits for feature detection, Scientific Reports 7: 45972. https://doi.org/10.1038/srep45972
解说文章与模拟采用 CC BY-NC-SA 4.0 许可,另有说明的除外。
路线 7 / 8
光与声音更多展品
光合作用原理:从叶片深入类囊体膜
充足阳光下,叶片从二氧化碳含量仅约百万分之 426 的空气中吸取二氧化碳,用它合成糖。
胶片与即影即有相机:原理与操作
快门为 1/1000 秒时,相机从不会同时敞开整个画面,而是让一条狭缝扫过胶片。
光速:跟随闪光穿越宇宙
光一秒能绕赤道 7.5 圈,但同一道光抵达仙女座星系却需要 250 万年。
光与颜色:从棱镜到偏振片的实验
玻璃棱镜让紫光比红光多偏折约 1.6 度,这一点小小的差距就足以把白光展开成光谱。
视错觉:相同灰色方格为何看起来不同
方格 A 看起来深,方格 B 看起来浅,但屏幕从两者向你的眼睛发出相同的灰色。
光纤原理:一束光怎样穿过整片海洋
海底光缆里的光能在宽 8.2 微米的玻璃纤芯中传输数千公里,是因为它以大于 84.5° 的角度射到纤芯壁上。