図 21感覚館
動物の見え方:69種の目で色と視力を比べる体験
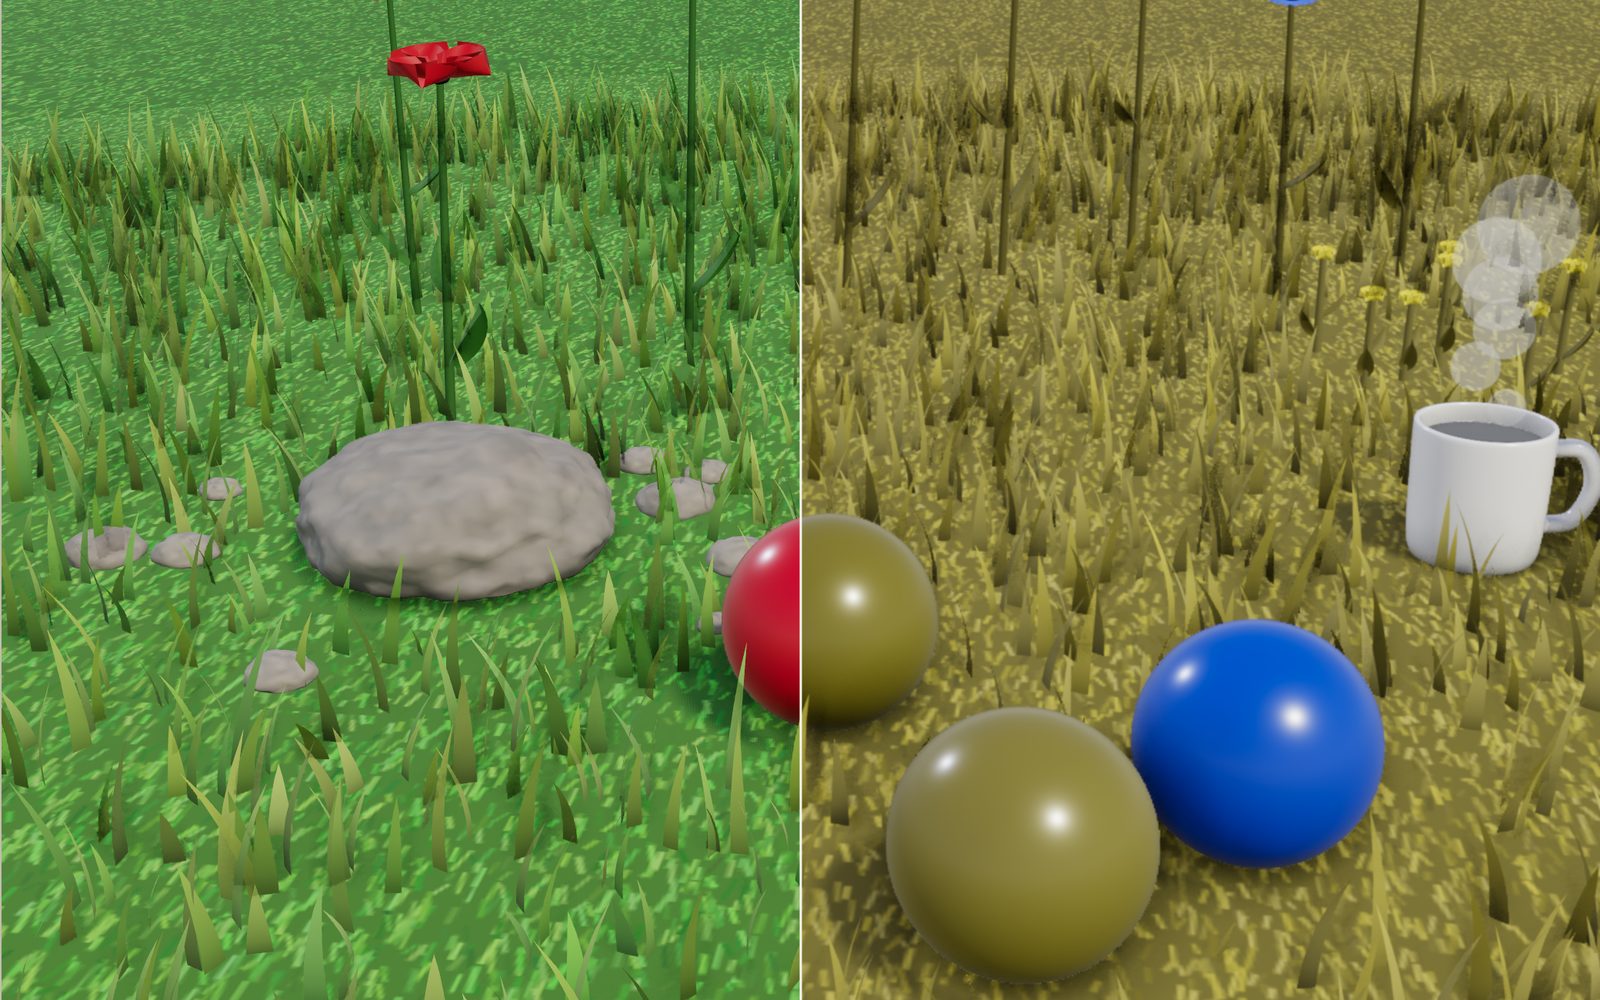
緑の芝生の赤いボールはヒトには見つけやすくても、イヌには難しいものです。同じ花にも、ミツバチだけが見える模様があります。
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 20 1 つの庭と 69 種の目同じ庭を動物ごとに描き直します。色、鮮明さ、必要な明るさ、変化を追う速さが変わります。画像下のバーで動物を、上部で場面を選びます。
ドラッグで回転、ホイールか二本指で拡大します。
イヌが赤いボールを見失う理由
動物の見え方は、光を受け取る細胞によって異なります。イヌは 2 種類の錐体で色を捉えるため、緑の芝生に投げた赤いボールをヒトのようには追えません。そのまま通り過ぎ、鼻で探す犬もいます。ボールが見えなくなったのではありません。赤と緑が同じ種類の錐体を刺激し、ボールと草がくすんだオリーブ色の濃淡に見えるのです。青いボールなら、すぐに見つけられます。
この小さな場面に、展示の主題が詰まっています。目は世界をそのまま記録するカメラではありません。限られた種類の受容器で、一定の細かさ、速さ、角度の範囲で光を拾い、一定以上の明るさがなければ働きません。これらの条件は動物ごとに異なります。展示は庭、夜の森、サンゴ礁、上空からの草地を 69 種の目で描き直します。表示する数値はすべて、末尾の論文や大学のページにある測定に基づきます。測定のない項目は推測せず、「数値なし」と示します。
目が光を色に変えるしくみ
網膜の光センサーには桿体と錐体があります。桿体は暗所で働き、色を区別しません。錐体は日中に働き、波長域の異なる数種類に分かれます。単独の錐体は色を知るのではなく、受け取った光の量だけを伝えます。脳が異なる錐体の応答を比較し、その比較を私たちは色として感じます。
ヒトは通常 3 種類の錐体を持ちます。網膜の細胞を 1 個ずつ測ると、ピークは約 420 nm(紫から青)、534 nm(緑)、564 nm(黄緑)です。緑と長波長の錐体は大きく重なりますが、赤と緑の物体は異なる応答比を生み、別の色に見えます。スペクトルが違っても、3 種の錐体に同じ応答を起こす光は同一に見えます。このため画面は狭い波長域の 3 原色だけで、ほとんどの色を再現できます。
受容器の感度曲線は、ピークの位置が分かれば色素が違ってもよく似ています。Govardovskii らは 2000 年に、短波長側の小さな第 2 の山も含め、ピークだけから曲線全体を予測するテンプレートを作りました。表示欄の曲線は受容器ごとにこのテンプレートで描き、色覚モデルにも同じ曲線を使います。
2 種類の錐体:イヌ、ネコ、ウマと家畜
哺乳類の多くは短波長用と中~長波長用の 2 種類の錐体を持ちます。青と黄色は区別できますが、赤、橙、黄、緑は主に長波長錐体を刺激し、違いの中心は明るさになります。赤緑色覚に違いのあるヒトも似た見え方をします。
訓練したイヌの実験を報告した 1989 年の研究では、約 429 nm と 555 nm の錐体色素が見つかりました。ネコは 450、556 nm 付近で、1969 年と 1979 年の網膜記録による値です。ウマは 2001 年に 428、539 nm と測定されました。ウシ、ヤギ、ヒツジは 1998 年に一緒に調べられ、短波長錐体は 444~455 nm、長波長錐体は 552~555 nm でした。オジロジカは短波長錐体が 450~460 nm、中波長錐体が約 537 nm です。
イヌを選び、「左右比較」を有効にします。左はヒト、右はイヌの表示です。CIELAB 色差でヒトには 100 以上離れる赤と緑のボールが、イヌには約 5 しか離れません。青いボールと草の差は 100 以上残ります。芝生で遊ぶ犬のおもちゃには、赤より青や黄色が向きます。ウマ、ウシ、シカも比べると、長波長錐体のピークの小さな違いに応じて、赤がオリーブ色に変わる度合いも少しずつ異なります。
紫外線:ネズミ、ハチ、インコ、キンギョ
多くの動物は、ヒトに見えない約 400 nm 未満の紫外線を見ます。ヒトの水晶体は網膜に届く前に大部分を吸収します。1991 年、Jacobs らは一部の齧歯類に紫外線に最も敏感な錐体を見つけ、哺乳類で初めて確認しました。ハツカネズミは 360 nm と緑の 508 nm の色素を持ち、大部分の錐体に両方が共存します。ラットも紫外線と中波長の錐体を持ち、2001 年発表の実験で、両方を使って色を区別しました。
ミツバチの受容器は紫外線、青、緑の 344、436、544 nm にピークがあり、赤用はありません。セキセイインコとキンカチョウには、360~380 nm の紫外線錐体を含む 4 種類の錐体があります。キンギョも 4 種類で、356、447、537、623 nm です。中南米で花を訪れるパラスシタナガコウモリは 310 nm までの紫外線に応答します。ただし 1 種類の色素が両方を受け持ち、緑の色素の小さな第 2 吸収帯が紫外線を捉えます。紫外線は別の色ではなく明るさとして見えます。
花の紫外線模様は珍しくありません。ヒトには一様に黄色いルドベキアも、花弁の中心近くで紫外線を吸収し、先端で反射するため、中央に暗い輪ができます。2014 年の野外研究では、紫外線の輪を大きくした花序に、輪を小さくしたものより野生のハチが多く訪れました。庭でミツバチ、ハツカネズミ、セキセイインコを選び、黄色い花に近づいて見ます。画面は紫外線を出せないため、各表面に独立した紫外線値を持たせて擬似カラーで示します。「紫外線のみ」ではそのチャンネルだけが見えます。
受容器が多くても色識別が優れるとは限らない
ナミアゲハには 6 分類、8 種類の受容器があります。2008 年発表の行動実験では、ある色を学習したチョウは、430、480、560 nm 付近の 3 か所で、わずか 1 nm 違う色を区別しました。これは 4 種類の受容器が協調する特徴です。受容器はそれ以上あっても、色覚に使うチャンネルは 4 つです。
極端な例がシャコです。一部の種には 300~720 nm に分布する 12 種類の受容器があり、あらゆる動物より細かく色を見分けそうに思えます。しかし Thoen らの 2014 年の実験では逆で、12~25 nm 違う光を混同し、チョウやヒトより粗い識別でした。研究者は、受容器を精密に比較せず、目で物体を走査しながら、どの狭帯域受容器が応答したかで色を認識すると提案しました。展示は 12 種のうち最も強く応答した受容器が色を決める単純な規則で再現し、サンゴ礁を平坦な色相の帯に分けます。シャコは円偏光も見え、Chiou らが 2008 年に示しました。
1 種類の錐体:サメ、タコ、コウイカ
Hart らは 2011 年にサメ 17 種の視物質を測定しました。すべてに錐体は 1 種類しかなく、ピークは 532~561 nm でした。錐体が 1 種類なら明るさは判断できても色は比較できず、サメは色を区別できない可能性が高いと考えられます。クジラ、イルカ、アザラシにも錐体が 1 種類しかなく、それぞれ独立に同じ設計に至りました。
マダコは 475 nm にピークを持つ視物質が 1 種類あり、多くの行動実験で色覚を示しません。コウイカも約 500 nm の 1 種類ですが、背景に合わせて体色を変えます。Marshall と Messenger は 1996 年にこれを「色覚のない擬態」と呼びました。頭足類には代わりに偏光視覚があります。受容器が互いに直角に並び、それぞれ特定方向の偏光を最もよく吸収します。銀色の魚からの反射光が強く偏光する水中では、有用な信号です。サンゴ礁でタコを選び「偏光」を有効にすると、強い偏光は黄色、無偏光は青で表示されます。
鮮明さ:1 度あたりの周期数
視力は縞で測ります。白黒の縞を次第に細かくし、一様な灰色と区別できなくなる境目を探します。見分けられる最も細かい縞の組、つまり周期が視角 1 度にいくつ入るかが視力です。20/20 の視力のヒトは 1 度あたり約 30 周期を分解します。干渉縞で目の光学系を迂回した 1965 年の研究では約 60 周期でした。展示はヒトの限界に 60 を使い、20/(600 ÷ 1 度あたりの周期数) でスネレン分数に換算します。
イヌの脳と網膜の記録では 1 度あたり 11.6~12.6 周期で、ヒトの最高値の約 5 分の 1 です。ウマの行動実験の最高値は 23.3、ネコは 3.5~9、ハツカネズミは約 0.5、ラットは約 1 です。明るい場所でヒト 2 人と比べたモリフクロウは、ヒトより細部が見えずハトに近い結果でした。対照的にオナガイヌワシは、Reymond の 1985 年の実験で 132~143 周期とヒトの 2 倍以上あり、瞳孔が通す限界の 157 に近い値です。
昆虫の目には、それぞれ違う方向を向く多数の個眼があります。隣り合う個眼の角度が、見分ける細かさを制限します。原始的な昆虫の数十度から、既知で最も細かいトンボの 0.24 度まであります。ミツバチの前面の分解能は 1 度あたり約 0.54 周期です。ハエトリグモ Portia の主眼は小さな望遠カメラで、受容器間隔は 2.4 分角、約 12.5 周期に相当し、同じ大きさの昆虫よりはるかに優れます。殻の縁に最大 200 個の目を持つホタテガイは約 2 度を分解します。
画面で視力を示すため、視角 1 度に当たる画素数に応じて像をぼかします。1 度あたり c 周期の縞には 1 周期につき 2 画素が必要なので、1 度あたり p 画素なら最大 p ÷ 2 周期です。庭では幅 1,440 px の窓でも 1 度が約 16~20 画素、縦持ちの携帯端末では約 8~10 画素しかなく、示せるのは 4~10 周期です。イヌの目より粗いため、通常の表示でイヌのぼけは約 3 分の 1 画素となり、ヒトと同じくらい鮮明に見えます。表示の誤りではなく、画面が両者の目より粗いのです。
「望遠」は望遠鏡と同じ方法で解決します。カメラの視野を 2、4、8 倍狭め、同じ 1 度をそれぞれ多くの画素に広げ、その視野に合う大きさでぼけを描きます。ノートパソコンの ×4 では 1 度に約 70~80 画素を使い、ヒト側は鮮明なまま、イヌ側は約 2.5~3 画素ぼけ、ミツバチには少数の個眼だけが見えます。携帯端末では ×8 にすると 1 度が約 70 画素です。表示欄には現在の倍率での画素密度とぼけが出ます。ワシのようにヒトより鋭い目は、そのまま示すことはできません。像は最後に自分の目を通るため、ぼかさず、その理由を示します。
空の場面では距離で同じことをします。20 m~1.5 km の距離を選び、高さ 4 m の草地を望遠鏡のように見ます。約 480 m で体長 40 cm のウサギの幅は、ヒトには約 3 周期、ワシには約 7 周期となり、ヒトには塊でもワシにはウサギと分かります。ウサギを 2.4 m 離して 2 匹置き、「左右比較」でそれぞれの側に 1 匹入るようにしています。
見る速さ:ちらつき融合
ついたり消えたりする光を照らし、その点滅の周波数を上げてみます。ある周波数に達すると、一つ一つの点滅が融合し、連続して光っているように見えます。この臨界ちらつき融合周波数は、目が変化を追う速さを示します。Inger らは 2014 年に 81 種の測定を集めました。ヒトは約 60 Hz、ネコは 55、イヌは 80、ハトは研究によって 77~143、ニワトリは 72~105、クロバエ、ミツバチ、トンボは 200~300 です。測定されたサメは 18~37 Hz です。
庭のランタンと森の街灯は、設定した 20~320 Hz でちらつきます。画面では毎秒 100 回の点滅を表示できないため、選んだ動物の目ならそのちらつきが見える場合に、ランタンをゆっくり点滅させて表します。ランタンの点滅の周波数が、その動物の融合周波数を下回る度合いが大きいほど、点滅の振幅が大きくなります。50 Hz 電源のランプに相当する 100 Hz ではヒトに一定、ハチに点滅して見えます。多くの画面の更新周波数である 60 Hz では、ネコに一定、イヌに点滅して見えます。
数値の比較
操作欄の下の図鑑には 69 種すべてと出典があります。測定が特に多い動物を、展示と同じ単位でまとめます。ハイフンは出典に数値がないことを示します。
| 動物 | 受容器のピーク(nm) | 視力(cpd) | 視野 | ちらつき融合(Hz) |
|---|---|---|---|---|
| ヒト | 420, 534, 564 | 60 | 180° | 60 |
| イヌ | 429, 555 | 11.6~12.6 | 240° | 80 |
| ネコ | 450, 556 | 3.5~9 | 200° | 55 |
| ウマ | 428, 539 | 23.3 | 350° | - |
| ハツカネズミ | 360, 508 | 0.5 | - | - |
| ラット | 紫外線と中波長 | 1 | - | 30 |
| ミツバチ | 344, 436, 544 | 0.54 | - | 200~300 |
| ハト | 409, 453, 507, 567 | - | - | 77~143 |
| キンギョ | 356, 447, 537, 623 | - | - | - |
| オナガイヌワシ | 紫に敏感な短波長錐体 | 132~143 | - | - |
| モリフクロウ | - | - | 201° | - |
| トンボ | オプシン遺伝子 15~33 個 | 2.1 | - | 300 |
| ハエトリグモ | 紫外線と緑 | 12.5 | - | - |
| サメ | 錐体 1 種、532~561 | - | - | 18~37 |
横に読むと、それぞれの得失が分かります。ワシは最も鋭い目を持ちますが、特別な夜間能力の記録はありません。ネコは暗所で見えますが細部はぼやけます。ハチは紫外線と速いちらつきが見える一方、分解能は 1 度あたり約半周期です。
夜の見え方
暗所では錐体が働かなくなり、桿体が引き継ぎます。桿体は高感度ですが 1 種類なので色は薄れます。ヒトが色を失うのは薄明ほどの約 0.02 cd/m² です。ネコは同じ模様の実験でヒトより 0.74 対数単位、約 5.5 倍高感度でした。その大部分は大きな瞳孔と光学系の集光力によります。メンフクロウの筒状の目は F 値 1.13、暗所のヒトは約 f/2.4 なので、網膜像は約 4.5 倍明るくなります。展示はこの比を夜間の感度増加に使い、モデルと明記します。
ヒトに見えない暗さでも色を保つ動物が 2 種います。ヘルメットゲッコーは桿体を全く持たず、大きな錐体が 3 種類だけで、2004 年に 0.002 cd/m² の弱い月明かりで青と灰色を区別しました。ベニスズメは 2002 年発表の実験で、0.0001 cd/m² の弱い星明かりでも色の標的を選びました。同じ光でヒトには全く色が見えません。夜の森を「弱い星明かり」にして比べられます。この 2 種の表示では、色の見える限界とヒトとの比(10 倍と 200 倍)で明るさを増し、これもモデルと記します。
夜に活動する多くの動物には、網膜の後ろにタペタムという鏡があります。受容器に吸収されず通り抜けた光を戻し、もう一度捉える機会を与えます。イヌ、ネコ、ウマ、ウシなど多くの哺乳類とサメにあります。懐中電灯で目が光る理由です。森で電灯を点け、シカを見ます。
見渡す広さ:視野
頭の前面の目は同じ景色を両目で見て奥行きを判断しやすくし、側面の目は一度に広い範囲を見ます。ヒトは左右それぞれ約 90 度、合計約 180 度を見渡し、約 120 度が両眼で重なります。イヌは約 240 度で重なりが 30~60 度、ネコは約 200 度です。ウマは約 350 度で、真後ろと額のすぐ前だけが死角です。モリフクロウの片目は脊椎動物で測定された最も狭い 124 度なので、合計 201 度、重なり 48 度です。カメレオンは探索中に両目を独立させ、獲物に向けると同期させます。
パノラマはカメラの全周を帯にし、正面を中央に示します。動物の視野を帯の中央に置き、その外側に斜線を引きます。視野の数値がない動物は全周 360 度を表示し、その旨を記します。
瞳孔の形
瞳孔には円形、縦長、横棒状、W 字形、小孔状があります。Banks らは 2015 年に陸上動物 214 種を比較し、規則性を見つけました。ヤギ、ヒツジ、ウマ、シカなど草を食べる被食動物は横長の瞳孔を持ち、頭を下げても眼球が回転して地面と平行に保ちます。地平線に沿う広く鮮明な視野が得られます。地面近くで待ち伏せするネコのような小型捕食者は縦長の瞳孔が多く、ぼけによる距離判断に役立ちます。コウイカの W 字形は上下の光を均等にし、ヘルメットゲッコーの瞳孔は小孔の列に閉じます。
瞳孔は焦点外のぼけの形を決めます。「瞳孔ぼけ」を有効にしてヤギを選ぶと、カメラの回転中心の前後にある物体が横ににじみ、縦の輪郭は鮮明に残ります。ネコの縦長瞳孔は逆です。強さは形が分かるよう選んだモデル値ですが、形状自体はその動物のものです。
水中
水は光を吸収し、赤から先に減ります。Pope と Fry の 1997 年の純水測定では、650 nm で 1 メートルあたり 0.34、450 nm では約 37 分の 1 の 0.0092 でした。サンゴ礁では光が水面から礁へ下り、さらに目まで進み、経路に沿って各色が弱まります。15 m では赤は約 2 パーセントしか残らず、ヒトにも赤い魚は灰褐色に見えます。青と黄色の魚は長く色を保ちます。実際の海水には散乱やプランクトンもありますが、展示は純水と単純なかすみを使います。
熱:マムシ類
マムシ類、ニシキヘビ、ボアは顔のピット器官で温かい体の赤外線を検出します。Bullock と Cowles は 1952 年に神経を記録し、近くの熱に応答することを示しました。2010 年、Gracheva らは仕組みとなる分子を見つけました。器官に伸びる神経線維には温まると開く TRPA1 チャネルがあります。赤外線が膜を温め、チャネルが変化を伝えます。これは熱の感覚で、第 3 の目ではありません。展示では暗い景色に暖かい表面の擬似カラーを重ねます。お茶は明るく、日なたの石は弱く光り、開けた空は冷たくなります。
目の実験室
5 つ目の場面では、目そのものを台に並べます。ヒトの目の断面では角膜と水晶体が光を網膜の一点に曲げ、上下逆の像を作り、中心窩には錐体が最も密に並びます。複眼は六角形の個眼のドームで、一部を切り欠き、独自のレンズと受容器を持つ長い個眼の内部を見せます。別の目は網膜の後ろにタペタムを持ち、光線が入り戻ります。5 つの虹彩は瞳孔の形を示します。最後はレンズではなく曲面鏡で焦点を結ぶホタテガイの目です。Palmer らは 2017 年に、鏡が正方形のグアニン結晶ででき、中央視野用と周辺視野用の 2 層の網膜へ光を送ることを示しました。動物を選ぶと、対応する目の模型へカメラが移動します。
69 種の動物と共通する目
この展示の第 3 版は、動物を 31 種から 10 群 69 種へ 2 倍以上に増やしました。家畜やペット、動物園の動物、庭や水辺の鳥、爬虫類とカエル、刺す昆虫や花粉を運ぶ昆虫、特徴的な目を持つ海の動物など、よく質問されるものを選びました。目の何かを測定した論文がある場合だけ追加し、表示の数値から論文をたどれます。
直接の測定がなくても、測定済みの動物と同じ視覚系を共有すると分かる場合があります。図鑑は「同じモデル」と示し、分類の理由にも出典があります。チンパンジーはヒトと共通です。霊長類の視物質研究で、旧世界ザル、類人猿、ヒトにほぼ同じピークの 3 種の錐体があるためです。アザラシはハンドウイルカと共通で、抗体染色したアザラシ・アシカ類 5 種とハクジラ類 7 種すべてに青錐体がなく、陸上の近縁種には残っていました。ニシキヘビとボアは、同じ熱感受性チャネルが神経で見つかったマムシ類と共通です。キリンは調べた有蹄哺乳類の多くと同じウシの 2 種の錐体で描きますが、1 度あたり 25~27 周期の視力は自身の網膜から数えた値です。共通モデルでは代表動物の曲線を変更せず使い、その旨を示します。
犬種の違いもよく聞かれます。2 種の錐体はイヌ全般の研究に基づき、ここに挙げた出典には犬種間の色覚比較はありません。違うのは細胞の密集する位置です。McGreevy らは、鼻の長い犬にはオオカミのような神経節細胞の水平帯があり、パグには中央の斑状領域があると示しました。グレーハウンドとパグの色覚はおそらく同じでも、景色の走査の仕方は異なります。ネコについては猫種比較の出典が全くありません。
ゾウも特徴的です。アフリカゾウとアジアゾウの遺伝子から作った色素のピークは 419、552 nm で、赤緑色覚の違いの一種である二型二色覚のヒトと同じです。ブタ(439、556 nm)、モルモット(429、529 nm)、ウサギ(425、523 nm)も二色型で、ピークは少しずつ違います。旧世界ザルは約 430、535、565 nm と、ヒトの錐体にほぼ一致します。
鳥は 4 種の錐体と色のついた油滴を持ちます。ホシムクドリの単錐体は 563、504、449、約 362 nm で、最後は紫外線です。マガモは約 420、452、502、570 nm です。クジャクの色素は 424、458、505、567 nm ですが、油滴を通ると感度のピークは 432、477、537、605 nm になります。ミシシッピアカミミガメは 4 色素と油滴から 7 種類の錐体を作ります。逆にペンギンは青緑の水に適した 403、450、543 nm の 3 種を保ちました。
動物の目の高さで見る
「目線」はカメラを動物の目の位置へ動かし、そこから周囲を見られる機能です。ハツカネズミは草先より低い 3 cm から見ます。芝生は葉の森となり、皿のリンゴはそちらを向くまで隠れます。イヌは 50 cm、ヒトは 1.6 m、キリンは 5 m から庭全体を見下ろします。花粉を運ぶ動物は低い黄色の花のそばから始め、ハチは 12 cm です。
これらは成体が立つか止まるときの典型的な高さとして選んだモデル値で、論文の測定値ではありません。水生動物に高さはなく、目線表示は庭と森だけで使えます。高さは景色を大きく変えます。3 cm では地面近くのものが大きく迫り、空が視野の上半分を占め、1 メートル先の物体が草 1 枚で隠れます。5 m では同じ庭も小さな区画で花は点になり、キリンの色覚より網膜の 1 度あたり 25~27 周期の視力が重要になります。
個眼を数える
複眼は少しずつ異なる方向を向く多数の個眼で世界を捉えます。隣接個眼の角度が分解できる細かさを制限し、展示はその間隔の蜂の巣模様を描き、各六角形で領域を平均します。Seidl と Kaiser が 1981 年に数えた働きバチの片目の平均は 5,432 個で、両目の視野はほぼ球全体です。約半球に 5,432 個を広げると平均間隔は約 2 度です。花を見る前面は密で、約 0.93 度間隔です。表示欄にはこの値と、現在の視野の幅に入る個眼の数を示します。
蚊は複眼の粗さの例です。雌の Aedes aegypti の間隔は 6.2 度なので、最小分離角は約 12.3 度で、腕を伸ばした手の幅ほどです。後年のミツバチの研究では、前面の単独受容器が 0.6 × 0.6 度という小物体にも応答し、間隔から予想されるより細かく検出しました。蜂の巣表示は検出能力の下限で、気づくものすべての再現ではありません。
すべての複眼が個眼単位で働くわけではありません。海洋のエビやロブスターの一部は、鏡で覆う四角い管で多数の個眼の光を一点に反射し、明るい像を作ります。Land は 1976 年にこの反射重複眼を記述しました。展示では違いを描けないため、ロブスターもモデル間隔の蜂の巣模様で示します。
暗所の粒状感
光は光子として届き、暗所では像を作る時間に各受容器が捉える数はわずかです。光子数は瞬間ごとに、個数の平方根ほどランダムに変動します。100 個なら変動は 10、信号の 10% で、4 個なら 2、50% です。これが光子雑音で、月明かりの景色が粒状になる理由です。夜の表示はこの規則に従い、各点の明るさの平方根に応じる粒を加え、照度や動物の感度増加が高いほど小さくします。ヒトの 5.5 倍の感度を持つネコは同じ光でも粒が少なくなります。粒の大きさはモデルですが、平方根の規則はモデル上の選択ではありません。
体の冷たい動物には別の利点もあります。桿体は光がなくても熱で時折反応し、その暗雑音が検出できる微弱光の限界を決めます。Aho らは異なる温度で種を比べ、低温で網膜雑音が減り絶対感度が上がることを見つけました。ヒキガエルやカエルに役立ちます。さらにカエルは 2 種類の桿体を持ち、2017 年の光に向かって跳ぶ実験で、見える限界の光でも青と緑を区別しました。
かろうじて像を作る目
鮮明な像を見る以外の働きをする目もあります。オウムガイは海に開いたレンズのないピンホール眼で、最小分離角は 5.5~11.25 度です。ヒザラガイは殻板に数百個の小さな目があり、鉱物のアラゴナイトのレンズで空気中も水中も約 9~12 度を分解します。ハコクラゲはほぼ完全な像を作るレンズを持ちながら、網膜が焦点外にあるため各受容器は広くぼやけた領域を見ます。ヒトデの腕先にはレンズのない複眼があり、遅く色を区別できなくても、礁へ戻るには十分です。反対の極には、直径約 27 cm、瞳孔 9 cm という動物最大のダイオウイカの眼球や、F 値 0.58 で受容器あたりハエトリグモの約 2,000 倍の光を集めるメダマグモの後眼があります。
他の動物の目を測った歴史
20 世紀の大半、動物の見え方は行動から調べました。報酬を得るカードを選ぶよう訓練し、どれと混同するかを見ます。時間はかかりますが、実際に使える情報は何かという重要な問いに答えます。1992 年のウマの視力、2002 年のガの星明かりの色覚、2014 年のシャコなど、ここでも多くの値が行動実験に由来します。
生理学は別の方法を加えました。1952 年、Bullock と Cowles はマムシ類のピット器官の神経に電極を置き、暖かい物体を近づけると応答するのを見ました。顕微分光測光では単独の受容器に小さな光を通し、色素の吸収を読めます。1980 年のヒトの錐体、1997 年の鳥の錐体、2011 年のサメの色素はこの方法です。目の表面から記録する網膜電図は、解剖なしにウマ、ウシ、シカの錐体曲線を得ました。
最も新しい方法は遺伝学です。オプシン遺伝子を数えると作れる色素の数が分かり、トンボは 15~33 個と判明しました。ただし遺伝子数は色の感覚そのものではありません。多い受容器だけでは精密な色識別にならないというシャコの例は、最後には行動が答えを決めることを示します。
自分で試す
操作欄の下には研究者のように展示を使う 12 の課題があります。「開始」で場面が設定され、動物、光、距離を変えて、課題の条件を満たした印が付くところまで試します。ある課題では、紫外線が見える目だけに見える花の模様を探します。別の課題では、赤と緑のボールを見分けられない動物を探します。他にも、星明かりで色を保つ動物、後ろが見える動物、60 Hz の画面のちらつきが見える動物、ワシだけがウサギと分かる距離、赤い魚が灰色になる水深、横長瞳孔のぼけ、自分の視界と比べてイヌの視界がぼやけるのは、どのくらい遠くを見たときかを調べます。新しい 3 課題では、ハチの高さでツルキンバイの蜜標を探し、地上 3 cm のネズミの目線でリンゴを見つけ、視野が自分の後方まで届く動物を 3 種訪れます。その下には 102 件の研究があり、「表示」で各研究に対応する場面を設定します。
見え方の計算
計算はグラフィックスチップの 2 段階で行います。最初に場面を線形色の画面外画像に描き、別の小さな画像に各表面の紫外線反射率、温度、偏光の強さ、距離を記録します。次に全画面のシェーダーが 2 枚を動物の表示に変えます。
色は Machado ら(2009)の方法を他の動物に拡張します。画面は狭帯域の 3 原色から色を作るため、各画素のスペクトルは既知です。各受容器曲線との積から応答を求め、平均的な紫外線を含む白で各受容器が 1 になるよう正規化します。次にヒトに似た応答を起こす画面色を探します。受容器が 2 種なら厳密解があり、白と青を結ぶ平面上で動物の受容器応答が同じになる色を選ぶと、その動物が混同する色は同一になります。紫外線を含む 3 種なら、短波長を青、中を緑、長波長を赤にするハチ用の擬似カラーを使います。4 種の目は 3 色の画面で示せないため、ヒトの色を残し、紫外線感度がある場合は紫の色合いを加えます。1 種なら灰色の画像です。
鮮明さは、画面の 1 度あたりの画素数を動物の周期数の 2 倍で割った半径のぼけです。複眼は個眼間隔の蜂の巣模様で各領域を平均します。暗所では各動物の感度増加に応じて明るさを対数的に下げ、色覚限界より暗ければ色を薄れさせ、光子雑音を増やします(「暗所の粒状感」参照)。水中では各色に経路の透過率を掛けます。パノラマはキューブマップに描き、周囲へ展開します。
庭の描き方
この版では平らな三角形に見えないよう、場面の形を作り直しました。草は細く曲がった帯で、数千枚を一括描画し、グラフィックスチップ上の小さなプログラムで風になびかせるため、プロセッサーが 1 枚ずつ動かす必要はありません。花弁と葉は平面の切り抜きでなく曲面です。ツルキンバイの模様は紫外線チャンネルだけに入り、ハチなどには暗い中心が見え、ヒトには見えません。石はフラクタル雑音で球を変形しつつ表面を滑らかに保ち、リンゴ、ボール、皿、マグカップは細分化した形状に透明な釉薬状の層を重ねます。各場面は事前にフィルター処理した環境マップで空から照明し、影の縁を柔らかくします。速い端末では物体と地面の接点のくぼみを暗くするアンビエントオクルージョンを追加し、遅い端末は追加処理を省いて同じ見え方を保ちます。
これは目を比べる図で、写真ではありません。草に種はなく、シカに毛はなく、実際の花の色は 3 つの花壇よりはるかに多様です。紫外線模様は引用論文の記述に基づき、この花そのものを測定したものではありません。
モデルが省くもの
画面はヒトの錐体向けの 3 色を出すため、動物の主観的体験を示すことはできません。受容器が捉える情報をヒトの見える色へ置き換えています。「モデル」の数値は測定値でなく選択値です。出典に色素測定のない動物のピーク、ヤモリとガの明るさ増加、瞳孔ぼけの強さ、一部の昆虫の個眼サイズ、目線の高さが該当します。桿体は約 500 nm に固有の分光感度を持ち、夜の景色を青緑寄りにしますが、展示は色を薄めるだけです。脳も目と同じく重要で、同じ錐体でも読み取りを違って学習できます。個体や品種でも異なり、ここでは個々の研究の代表値を使います。
自分の写真とカメラ
「自分の写真」と「カメラ」は、押したときだけ端末の画像を読み込むかカメラを開きます。画像はこのページでグラフィックスチップが処理し、アップロードも保存もしません。写真に記録されるのはセンサーの 3 色だけで、紫外線、熱、偏光の情報はありません。これらのチャンネルは空のままにし、その旨を示します。
よくある質問
イヌは色が見えないのですか?
全く見えないわけではありません。429、555 nm 付近の 2 種類の錐体で青と黄色をはっきり見ますが、赤、橙、緑を混同します。ヒトの赤緑色覚の違いに近く、灰色の世界ではありません。
芝生でイヌに見えやすいおもちゃの色は?
青です。イヌの表示では赤と緑のボールの色差は約 5 ですが、青と草の差は約 100 あります。
ネコは暗闇でも見えるのですか?
完全な暗闇ではどの目も見えません。ネコは大きな瞳孔と光学系によりヒトより約 5.5 倍暗い光を検出しますが、日中の細部はぼやけ、色覚は弱くなります。
夜に最もよく見える動物は?
何を「よい」とするかで異なります。色ならベニスズメで、弱い星明かりの 0.0001 cd/m² でも色を選びました。明るさならフクロウやネコはヒトより多く光を集めます。夜行性動物の多くは、光をもう一度通すタペタムも持ちます。
最も目が鋭い動物は?
ここではオナガイヌワシで、1 度あたり 132~143 周期です。無脊椎動物ではハエトリグモの望遠眼が約 12.5 周期に達し、同じ大きさの昆虫よりはるかに優れます。
イヌの表示がヒトと同じくらい鮮明なのはなぜ?
通常の視野では目ではなく画面が限界だからです。庭の 1 度は約 8~20 画素で、4~10 周期しか示せず、ヒト(約 60)もイヌ(約 12)もそれより細かく見えます。「望遠」を ×4 か ×8 にすると十分な画素が得られ、イヌ側だけがぼやけます。
自分の後ろが見える動物はいますか?
ウマは約 350 度を見渡し、真後ろの細い帯と額の前の小範囲以外はほぼ見えます。マガモとヤマシギは全周 360 度です。パノラマでヒトの 180 度と比べられます。
動物によって画面がちらつくのはなぜ?
多くの画面やランプは毎秒 60 回や 100 回明るさを変えます。ヒトの融合周波数を上回るので一定に見えますが、イヌ、多くの鳥、飛ぶ昆虫の多くは融合周波数が高く、ちらつきが見えます。
表示の紫外線は本物ですか?
ルドベキアの輪など既知の模様に従って表面に紫外線値を割り当て、擬似カラーで描きます。画面は紫外線を出せないため、あくまで代替表示です。
シャコが最も多くの色を見るのですか?
受容器は最も多い 12 種類ですが、実験の色識別はチョウやヒトより粗い結果でした。受容器同士を比較するより、どれが反応したかで認識するようです。
サメは色が見えないのですか?
おそらくそうです。測定した 17 種すべてで錐体は 1 種類でした。それでもコントラスト、動き、明るさはよく分かります。
懐中電灯で動物の目が光るのはなぜ?
網膜の後ろの鏡の層、タペタムが受容器へ光を戻すためです。再び外へ出た光が目の輝きです。
ヤギの瞳孔が四角いのはなぜ?
横棒状の瞳孔は、捕食者が来る地面に沿って広く鮮明な視野を作ります。頭を下げると眼球が回転するため、草を食べる間も水平を保ちます。
ヘビは目で熱を見るのですか?
いいえ。マムシ類、ニシキヘビ、ボアは顔の別のピット器官で赤外線を感知します。熱が神経の TRPA1 チャネルを開きます。目はピット器官と並行して働きます。
水中で青く見えるのはなぜ?
水は青より赤を強く吸収し、650 nm では 450 nm の約 37 倍です。数メートル潜ると赤の大部分が失われます。
犬種によって色の見え方は違いますか?
ここに挙げた出典に犬種の色覚比較はなく、2 種類の錐体はイヌ全般で測られました。神経節細胞の分布には違いがあり、鼻の長い犬はオオカミのような水平帯、短い犬は中央の斑状領域を持ちます。
ネズミには庭がどう見えますか?
3 cm の高さでは草がそびえ、リンゴが葉に隠れ、視力は 1 度あたり約 0.5 周期なので全体がぼやけます。錐体は紫外線と緑を捉え、赤いリンゴは暗く見えます。ハツカネズミを選び「目線」で試せます。
ミツバチの目にはレンズがいくつありますか?
働きバチの片目には平均 5,432 個の個眼があり、それぞれレンズを持ちます。前面の間隔は約 0.93 度です。
夜の表示が粒状なのはなぜ?
暗所では受容器に届く光子が少なく、その数は平方根ほどランダムに変動します。展示はこの規則に従う粒を加えるため、暗いほど強く、高感度の目では弱くなります。
最も大きい目を持つ動物は?
ダイオウイカとダイオウホウズキイカ(Architeuthis と Mesonychoteuthis)です。ダイオウイカの眼球の測定例は直径約 27 cm、瞳孔 9 cm でした。
ゾウは色を見ますか?
はい、二色型です。色素のピークは 419、552 nm で、二型二色覚のヒトと同じ組み合わせです。
用語
- 錐体:日中に働く網膜の光受容器です。種類の異なる錐体を比較して色を感じます。
- 桿体:暗所用の受容器で、色を区別しません。
- 二色型、三色型、四色型:2、3、4 種類の受容器を比較する目です。
- ピーク波長(λmax):受容器が最も強く応答する波長で、ナノメートルで表します。
- 1 度あたりの周期数(cpd):視角 1 度の中で分解できる明暗の縞の組数です。
- 臨界ちらつき融合(CFF):点滅が連続した光に見える周波数です。
- タペタム:夜に活動する多くの動物の網膜の後ろにある反射層です。
- 個眼:独自のレンズと受容器を持つ複眼の単位です。
- ピット器官:マムシ類、ニシキヘビ、ボアの顔にある熱感知器官です。
- cd/m²:カンデラ毎平方メートルです。表面の明るさを表し、日中の景色は数千、星明かりは約 0.0001 です。
- 偏光:光の波が振動する方向です。水や光沢のある鱗の反射光はしばしば偏光します。
- 目の高さ:目線表示の各動物のカメラの地上高で、モデル値です。
- 重複眼:多数の個眼の光をレンズや鏡で 1 つの像に重ねる複眼です。
- 光子雑音:受容器が捉える光子数のランダムな変動で、個数の平方根程度です。
参考資料
すべてのアドレスは 2026-10-18 に、第 3 版の追加資料は 2026-10-19 に確認されました。
- Bowmaker, J. K. & Dartnall, H. J. A. (1980) Visual pigments of rods and cones in a human retina, Journal of Physiology 298: 501-511. https://doi.org/10.1113/jphysiol.1980.sp013097
- Govardovskii, V. I. et al. (2000) In search of the visual pigment template, Visual Neuroscience 17: 509-528. https://doi.org/10.1017/S0952523800174036
- Machado, G. M., Oliveira, M. M. & Fernandes, L. A. F. (2009) A physiologically-based model for simulation of color vision deficiency, IEEE Transactions on Visualization and Computer Graphics 15: 1291-1298. https://doi.org/10.1109/TVCG.2009.113
- Campbell, F. W. & Green, D. G. (1965) Optical and retinal factors affecting visual resolution, Journal of Physiology 181: 576-593. https://doi.org/10.1113/jphysiol.1965.sp007784
- Spector, R. H. (1990) Visual Fields, in Clinical Methods, 3rd edition, NCBI Bookshelf NBK220. https://www.ncbi.nlm.nih.gov/books/NBK220/
- Neitz, J., Geist, T. & Jacobs, G. H. (1989) Color vision in the dog, Visual Neuroscience 3: 119-125. https://doi.org/10.1017/S0952523800004430
- Odom, J. V., Bromberg, N. M. & Dawson, W. W. (1983) Canine visual acuity: retinal and cortical field potentials evoked by pattern stimulation, American Journal of Physiology 245: R637-R641. https://doi.org/10.1152/ajpregu.1983.245.5.R637
- Miller, P. E. & Murphy, C. J. (1995) Vision in dogs, Journal of the American Veterinary Medical Association 207: 1623-1634. https://doi.org/10.2460/javma.1995.207.12.1623
- Miller, P. E., Vision in Animals: What do Dogs and Cats See?, Veterinary Information Network. https://www.vin.com/apputil/content/defaultadv1.aspx?catId=29216&id=3844144
- Daw, N. W. & Pearlman, A. L. (1969) Cat colour vision: one cone process or several?, Journal of Physiology 201: 745-764. https://doi.org/10.1113/jphysiol.1969.sp008785
- Zrenner, E. & Gouras, P. (1979) Blue-sensitive cones of the cat produce a rodlike electroretinogram, Investigative Ophthalmology and Visual Science 18: 1076-1081, PubMed 478777. https://pubmed.ncbi.nlm.nih.gov/478777/
- Kang, I. et al. (2009) Contrast sensitivity of cats and humans in scotopic and mesopic conditions, Journal of Neurophysiology 102: 831-840. https://doi.org/10.1152/jn.90641.2008
- Carroll, J. et al. (2001) Photopigment basis for dichromatic color vision in the horse, Journal of Vision 1: 80-87. https://doi.org/10.1167/1.2.2
- Timney, B. & Keil, K. (1992) Visual acuity in the horse, Vision Research 32: 2289-2293. https://doi.org/10.1016/0042-6989(92)90092-W
- Harman, A. M. et al. (1999) Horse vision and an explanation for the visual behaviour originally explained by the ramp retina, Equine Veterinary Journal 31: 384-390. https://doi.org/10.1111/j.2042-3306.1999.tb03837.x
- UC Davis School of Veterinary Medicine, Center for Equine Health, Equine vision and performance. https://cehhorsereport.vetmed.ucdavis.edu/news/equine-vision-and-performance
- Jacobs, G. H., Deegan, J. F. & Neitz, J. (1998) Photopigment basis for dichromatic color vision in cows, goats, and sheep, Visual Neuroscience 15: 581-584. https://doi.org/10.1017/S0952523898153154
- Jacobs, G. H. et al. (1994) Electrophysiological measurements of spectral mechanisms in the retinas of two cervids, Journal of Comparative Physiology A 174: 551-557. https://doi.org/10.1007/BF00217375
- D'Angelo, G. J. et al. (2008) Visual specialization of an herbivore prey species, the white-tailed deer, Canadian Journal of Zoology 86: 735-743. https://doi.org/10.1139/Z08-050
- Banks, M. S. et al. (2015) Why do animal eyes have pupils of different shapes?, Science Advances 1: e1500391. https://doi.org/10.1126/sciadv.1500391
- Jacobs, G. H., Neitz, J. & Deegan, J. F. (1991) Retinal receptors in rodents maximally sensitive to ultraviolet light, Nature 353: 655-656. https://doi.org/10.1038/353655a0
- Wang, Y. V., Weick, M. & Demb, J. B. (2011) Spectral and temporal sensitivity of cone-mediated responses in mouse retinal ganglion cells, Journal of Neuroscience 31: 7670-7681. https://doi.org/10.1523/JNEUROSCI.0629-11.2011
- Prusky, G. T., West, P. W. & Douglas, R. M. (2000) Behavioral assessment of visual acuity in mice and rats, Vision Research 40: 2201-2209. https://doi.org/10.1016/S0042-6989(00)00081-X
- Jacobs, G. H., Fenwick, J. A. & Williams, G. A. (2001) Cone-based vision of rats for ultraviolet and visible lights, Journal of Experimental Biology 204: 2439-2446. https://doi.org/10.1242/jeb.204.14.2439
- Winter, Y., López, J. & von Helversen, O. (2003) Ultraviolet vision in a bat, Nature 425: 612-614. https://doi.org/10.1038/nature01971
- Peitsch, D. et al. (1992) The spectral input systems of hymenopteran insects and their receptor-based colour vision, Journal of Comparative Physiology A 170: 23-40. https://doi.org/10.1007/BF00190398
- Ryan, L. A. et al. (2020) The buzz around spatial resolving power and contrast sensitivity in the honeybee, Apis mellifera, Vision Research 169: 25-32. https://doi.org/10.1016/j.visres.2020.02.005
- Horth, L., Campbell, L. & Bray, R. (2014) Wild bees preferentially visit Rudbeckia flower heads with exaggerated ultraviolet absorbing floral guides, Biology Open 3, PubMed Central. https://pmc.ncbi.nlm.nih.gov/articles/PMC4001241/
- Koshitaka, H. et al. (2008) Tetrachromacy in a butterfly that has eight varieties of spectral receptors, Proceedings of the Royal Society B 275: 947-954. https://doi.org/10.1098/rspb.2007.1614
- Arikawa, K. (2003) Spectral organization of the eye of a butterfly, Papilio, Journal of Comparative Physiology A 189: 791-800. https://doi.org/10.1007/s00359-003-0454-7
- Kelber, A., Balkenius, A. & Warrant, E. J. (2002) Scotopic colour vision in nocturnal hawkmoths, Nature 419: 922-925. https://doi.org/10.1038/nature01065
- Johnsen, S. et al. (2006) Crepuscular and nocturnal illumination and its effects on color perception by the nocturnal hawkmoth Deilephila elpenor, Journal of Experimental Biology 209: 789-800. https://doi.org/10.1242/jeb.02053
- Thoen, H. H. et al. (2014) A different form of color vision in mantis shrimp, Science 343: 411-413. https://doi.org/10.1126/science.1245824
- Chiou, T.-H. et al. (2008) Circular polarization vision in a stomatopod crustacean, Current Biology 18: 429-434. https://doi.org/10.1016/j.cub.2008.02.066
- Reymond, L. (1985) Spatial visual acuity of the eagle Aquila audax, Vision Research 25: 1477-1491. https://doi.org/10.1016/0042-6989(85)90226-3
- Lind, O. et al. (2013) Ultraviolet sensitivity and colour vision in raptor foraging, Journal of Experimental Biology 216: 1819-1826. https://doi.org/10.1242/jeb.082834
- Martin, G. R. (1984) The visual fields of the tawny owl, Strix aluco L., Vision Research 24: 1739-1751. https://doi.org/10.1016/0042-6989(84)90005-1
- Martin, G. R. & Gordon, I. E. (1974) Visual acuity in the tawny owl (Strix aluco), Vision Research 14: 1393-1397. https://doi.org/10.1016/0042-6989(74)90014-5
- Orlowski, J. et al. (2012) Night vision in barn owls: visual acuity and contrast sensitivity under dark adaptation, Journal of Vision 12(13): 4. https://doi.org/10.1167/12.13.4
- Bowmaker, J. K. et al. (1997) Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds, Vision Research 37: 2183-2194. https://doi.org/10.1016/S0042-6989(97)00026-6
- Palacios, A. G. et al. (1998) Spectral sensitivity of cones in the goldfish, Carassius auratus, Vision Research 38: 2135-2146. https://doi.org/10.1016/S0042-6989(97)00411-2
- Bowmaker, J. K., Thorpe, A. & Douglas, R. H. (1991) Ultraviolet-sensitive cones in the goldfish, Vision Research 31: 349-352. https://doi.org/10.1016/0042-6989(91)90087-L
- Hart, N. S. et al. (2011) Microspectrophotometric evidence for cone monochromacy in sharks, Naturwissenschaften 98: 193-201. https://doi.org/10.1007/s00114-010-0758-8
- Hanke, F. D. & Kelber, A. (2020) The eye of the common octopus (Octopus vulgaris), Frontiers in Physiology 10: 1637. https://doi.org/10.3389/fphys.2019.01637
- Marshall, N. J. & Messenger, J. B. (1996) Colour-blind camouflage, Nature 382: 408-409. https://doi.org/10.1038/382408b0
- Kelman, E. J., Osorio, D. & Baddeley, R. J. (2008) A review of cuttlefish camouflage and object recognition and evidence for depth perception, Journal of Experimental Biology 211: 1757-1763. https://doi.org/10.1242/jeb.015149
- Mäthger, L. M. et al. (2013) The W-shaped pupil in cuttlefish (Sepia officinalis): functions for improving horizontal vision, Vision Research 83: 19-24. https://doi.org/10.1016/j.visres.2013.02.016
- Gracheva, E. O. et al. (2010) Molecular basis of infrared detection by snakes, Nature 464: 1006-1011. https://doi.org/10.1038/nature08943
- Bullock, T. H. & Cowles, R. B. (1952) Physiology of an infrared receptor: the facial pit of pit vipers, Science 115: 541-543. https://doi.org/10.1126/science.115.2994.541-b
- Roth, L. S. V. & Kelber, A. (2004) Nocturnal colour vision in geckos, Proceedings of the Royal Society B 271 (Suppl. 6): S485-S487. https://doi.org/10.1098/rsbl.2004.0227
- Roth, L. S. V. et al. (2009) The pupils and optical systems of gecko eyes, Journal of Vision 9(3): 27. https://doi.org/10.1167/9.3.27
- Ott, M. (2001) Chameleons have independent eye movements but synchronise both eyes during saccadic prey tracking, Experimental Brain Research 139: 173-179. https://doi.org/10.1007/s002210100774
- Land, M. F. (1997) Visual acuity in insects, Annual Review of Entomology 42: 147-177. https://doi.org/10.1146/annurev.ento.42.1.147
- Futahashi, R. et al. (2015) Extraordinary diversity of visual opsin genes in dragonflies, PNAS 112: E1247-E1256. https://doi.org/10.1073/pnas.1424670112
- Williams, D. S. & McIntyre, P. (1980) The principal eyes of a jumping spider have a telephoto component, Nature 288: 578-580. https://doi.org/10.1038/288578a0
- DeVoe, R. D. (1975) Ultraviolet and green receptors in principal eyes of jumping spiders, Journal of General Physiology 66: 193-207. https://doi.org/10.1085/jgp.66.2.193
- Zurek, D. B. et al. (2015) Spectral filtering enables trichromatic vision in colorful jumping spiders, Current Biology 25: R403-R404. https://doi.org/10.1016/j.cub.2015.03.033
- Palmer, B. A. et al. (2017) The image-forming mirror in the eye of the scallop, Science 358: 1172-1175. https://doi.org/10.1126/science.aam9506
- Speiser, D. I. & Johnsen, S. (2008) Scallops visually respond to the size and speed of virtual particles, Journal of Experimental Biology 211: 2066-2070. https://doi.org/10.1242/jeb.017038
- Ollivier, F. J. et al. (2004) Comparative morphology of the tapetum lucidum (among selected species), Veterinary Ophthalmology 7: 11-22. https://doi.org/10.1111/j.1463-5224.2004.00318.x
- Inger, R. et al. (2014) Potential biological and ecological effects of flickering artificial light, PLoS ONE 9: e98631 (Table S1, critical fusion frequencies). https://doi.org/10.1371/journal.pone.0098631
- Pope, R. M. & Fry, E. S. (1997) Absorption spectrum (380-700 nm) of pure water II: integrating cavity measurements, Applied Optics 36: 8710-8723. https://doi.org/10.1364/AO.36.008710
- Neitz, J. & Jacobs, G. H. (1989) Spectral sensitivity of cones in an ungulate, Visual Neuroscience 2: 97-100. https://doi.org/10.1017/S0952523800011949
- Nuboer, J. F. W., van Nuys, W. M. & Wortel, J. F. (1983) Cone systems in the rabbit retina revealed by ERG-null-detection, Journal of Comparative Physiology 151: 347-352. https://doi.org/10.1007/BF00623909
- Jacobs, G. H. & Deegan, J. F. (1994) Spectral sensitivity, photopigments, and color vision in the guinea pig (Cavia porcellus), Behavioral Neuroscience 108: 993-1004. https://doi.org/10.1037/0735-7044.108.5.993
- Coimbra, J. P. et al. (2013) Scene from above: retinal ganglion cell topography and spatial resolving power in the giraffe (Giraffa camelopardalis), Journal of Comparative Neurology 521: 2042-2057. https://doi.org/10.1002/cne.23271
- Yokoyama, S. et al. (2005) Elephants and human color-blind deuteranopes have identical sets of visual pigments, Genetics 170: 335-344. https://doi.org/10.1534/genetics.104.039511
- Fasick, J. I. et al. (1998) The visual pigments of the bottlenose dolphin (Tursiops truncatus), Visual Neuroscience 15: 643-651. https://doi.org/10.1017/S0952523898154056
- Peichl, L., Behrmann, G. & Kröger, R. H. H. (2001) For whales and seals the ocean is not blue: a visual pigment loss in marine mammals, European Journal of Neuroscience 13: 1520-1528. https://doi.org/10.1046/j.0953-816x.2001.01533.x
- Bowmaker, J. K. et al. (1991) Photosensitive and photostable pigments in the retinae of Old World monkeys, Journal of Experimental Biology 156: 1-19. https://doi.org/10.1242/jeb.156.1.1
- Jacobs, G. H. (1996) Primate photopigments and primate color vision, PNAS 93: 577-581. https://doi.org/10.1073/pnas.93.2.577
- Jacobs, G. H. (2009) Evolution of colour vision in mammals, Philosophical Transactions of the Royal Society B 364: 2957-2967. https://doi.org/10.1098/rstb.2009.0039
- Hogg, C. et al. (2011) Arctic reindeer extend their visual range into the ultraviolet, Journal of Experimental Biology 214: 2014-2019. https://doi.org/10.1242/jeb.053553
- Bowmaker, J. K. & Martin, G. R. (1985) Visual pigments and oil droplets in the penguin, Spheniscus humboldti, Journal of Comparative Physiology A 156: 71-77. https://doi.org/10.1007/BF00610668
- Martin, G. R. & Young, S. R. (1984) The eye of the Humboldt penguin, Spheniscus humboldti: visual fields and schematic optics, Proceedings of the Royal Society B 223: 197-222. https://doi.org/10.1098/rspb.1984.0090
- Herrera, G. et al. (2008) Spectral sensitivities of photoreceptors and their role in colour discrimination in the green-backed firecrown hummingbird (Sephanoides sephaniodes), Journal of Comparative Physiology A 194: 785-794. https://doi.org/10.1007/s00359-008-0349-8
- Hart, N. S., Partridge, J. C. & Cuthill, I. C. (1998) Visual pigments, oil droplets and cone photoreceptor distribution in the European starling (Sturnus vulgaris), Journal of Experimental Biology 201: 1433-1446. https://doi.org/10.1242/jeb.201.9.1433
- Hart, N. S. (2002) Vision in the peafowl (Aves: Pavo cristatus), Journal of Experimental Biology 205: 3925-3935. https://doi.org/10.1242/jeb.205.24.3925
- Jane, S. D. & Bowmaker, J. K. (1988) Tetrachromatic colour vision in the duck (Anas platyrhynchos L.): microspectrophotometry of visual pigments and oil droplets, Journal of Comparative Physiology A 162: 225-235. https://doi.org/10.1007/BF00606087
- Martin, G. R. (1986) Total panoramic vision in the mallard duck, Anas platyrhynchos, Vision Research 26: 1303-1305. https://doi.org/10.1016/0042-6989(86)90112-4
- Martin, G. R. (1994) Visual fields in woodcocks Scolopax rusticola (Scolopacidae; Charadriiformes), Journal of Comparative Physiology A 174. https://doi.org/10.1007/BF00192728
- Viitala, J. et al. (1995) Attraction of kestrels to vole scent marks visible in ultraviolet light, Nature 373: 425-427. https://doi.org/10.1038/373425a0
- Loew, E. R. & Govardovskii, V. I. (2001) Photoreceptors and visual pigments in the red-eared turtle, Trachemys scripta elegans, Visual Neuroscience 18: 753-757. https://doi.org/10.1017/S0952523801185081
- Loew, E. R. et al. (2002) Visual pigments and oil droplets in diurnal lizards: a comparative study of Caribbean anoles, Journal of Experimental Biology 205: 927-938. https://doi.org/10.1242/jeb.205.7.927
- Nagloo, N. et al. (2016) Spatial resolving power and spectral sensitivity of the saltwater crocodile, Crocodylus porosus, and the freshwater crocodile, Crocodylus johnstoni, Journal of Experimental Biology 219: 1394-1404. https://doi.org/10.1242/jeb.135673
- Yovanovich, C. A. M. et al. (2017) The dual rod system of amphibians supports colour discrimination at the absolute visual threshold, Philosophical Transactions of the Royal Society B 372: 20160066. https://doi.org/10.1098/rstb.2016.0066
- Aho, A.-C. et al. (1988) Low retinal noise in animals with low body temperature allows high visual sensitivity, Nature 334: 348-350. https://doi.org/10.1038/334348a0
- Allison, W. T. et al. (2004) Visual pigment composition in zebrafish: evidence for a rhodopsin-porphyropsin interchange system, Visual Neuroscience 21: 945-952. https://doi.org/10.1017/S0952523804216145
- Archer, S. N. & Lythgoe, J. N. (1990) The visual pigment basis for cone polymorphism in the guppy, Poecilia reticulata, Vision Research 30: 225-233. https://doi.org/10.1016/0042-6989(90)90038-M
- Muir, L. E., Thorne, M. J. & Kay, B. H. (1992) Aedes aegypti (Diptera: Culicidae) vision: spectral sensitivity and other perceptual parameters of the female eye, Journal of Medical Entomology 29: 278-281. https://doi.org/10.1093/jmedent/29.2.278
- Mote, M. I. & Wehner, R. (1980) Functional characteristics of photoreceptors in the compound eye and ocellus of the desert ant, Cataglyphis bicolor, Journal of Comparative Physiology 137: 63-71. https://doi.org/10.1007/BF00656918
- Salcedo, E. et al. (1999) Blue- and green-absorbing visual pigments of Drosophila: ectopic expression and physiological characterization of the R8 photoreceptor cell-specific Rh5 and Rh6 rhodopsins, Journal of Neuroscience 19: 10716-10726. https://doi.org/10.1523/JNEUROSCI.19-24-10716.1999
- Skorupski, P. & Chittka, L. (2010) Photoreceptor spectral sensitivity in the bumblebee, Bombus impatiens (Hymenoptera: Apidae), PLoS ONE 5: e12049. https://doi.org/10.1371/journal.pone.0012049
- Nityananda, V. et al. (2016) Insect stereopsis demonstrated using a 3D insect cinema, Scientific Reports 6: 18718. https://doi.org/10.1038/srep18718
- Land, M. F. (1976) Superposition images are formed by reflection in the eyes of some oceanic decapod Crustacea, Nature 263: 764-765. https://doi.org/10.1038/263764a0
- Nilsson, D.-E. et al. (2012) A unique advantage for giant eyes in giant squid, Current Biology 22: 683-688. https://doi.org/10.1016/j.cub.2012.02.031
- Muntz, W. R. A. & Raj, U. (1984) On the visual system of Nautilus pompilius, Journal of Experimental Biology 109: 253-263. https://doi.org/10.1242/jeb.109.1.253
- Speiser, D. I., Eernisse, D. J. & Johnsen, S. (2011) A chiton uses aragonite lenses to form images, Current Biology 21: 665-670. https://doi.org/10.1016/j.cub.2011.03.033
- Blest, A. D. & Land, M. F. (1977) The physiological optics of Dinopis subrufus L. Koch: a fish-lens in a spider, Proceedings of the Royal Society B 196: 197-222. https://doi.org/10.1098/rspb.1977.0037
- Nilsson, D.-E. et al. (2005) Advanced optics in a jellyfish eye, Nature 435: 201-205. https://doi.org/10.1038/nature03484
- Garm, A. & Nilsson, D.-E. (2014) Visual navigation in starfish: first evidence for the use of vision and eyes in starfish, Proceedings of the Royal Society B 281: 20133011. https://doi.org/10.1098/rspb.2013.3011
- Seidl, R. & Kaiser, W. (1981) Visual field size, binocular domain and the ommatidial array of the compound eyes in worker honey bees, Journal of Comparative Physiology 143: 17-26. https://doi.org/10.1007/BF00606065
- McGreevy, P., Grassi, T. D. & Harman, A. M. (2004) A strong correlation exists between the distribution of retinal ganglion cells and nose length in the dog, Brain, Behavior and Evolution 63: 13-22. https://doi.org/10.1159/000073756
- Koski, M. H. & Ashman, T.-L. (2015) Floral pigmentation patterns provide an example of Gloger's rule in plants, Nature Plants 1: 14007. https://doi.org/10.1038/nplants.2014.7
- Rigosi, E., Wiederman, S. D. & O'Carroll, D. C. (2017) Visual acuity of the honey bee retina and the limits for feature detection, Scientific Reports 7: 45972. https://doi.org/10.1038/srep45972
解説とシミュレーションは CC BY-NC-SA 4.0(特記のあるものを除く)。
コース 7 / 8
光と音ほかの展示
光合成のしくみ:葉から反応をたどる
十分な日光を受ける葉は、約 426 ppm しか二酸化炭素を含まない空気からそれを取り出し、糖を作ります。
フィルムカメラとインスタントカメラのしくみ
1/1000秒のとき、カメラのシャッターは画面全体を一度に開きません。代わりに細いスリットがフィルムの上を走り抜けます。
光の速さを体験:月から太陽へ閃光を追うシミュレーター
光は一秒で赤道を 7.5 周しますが、同じ光がアンドロメダ銀河に届くには 250 万年かかります。
光と色のしくみ:プリズムから偏光板まで体験
ガラスのプリズムは紫の光を赤よりも約 1.6 度多く曲げます。そのわずかな差だけで、白い光はスペクトルに広がります。
錯視はなぜ起こるのか:チェッカーの影、エイムズの部屋、大きさと動き
マス A は暗く、マス B は明るく見えます。けれども画面が目に送っている灰色は、どちらもまったく同じです。
光ファイバーの仕組みを光線で確かめるシミュレーター
海底ケーブルの光は、コアの壁に 84.5° より大きな角度で当たるので、幅 8.2 マイクロメートルのガラスのコアの中に数千 km 閉じ込められます。