FIG. 21Sentidos
Visão dos animais: veja o mundo pelos olhos de 69 animais
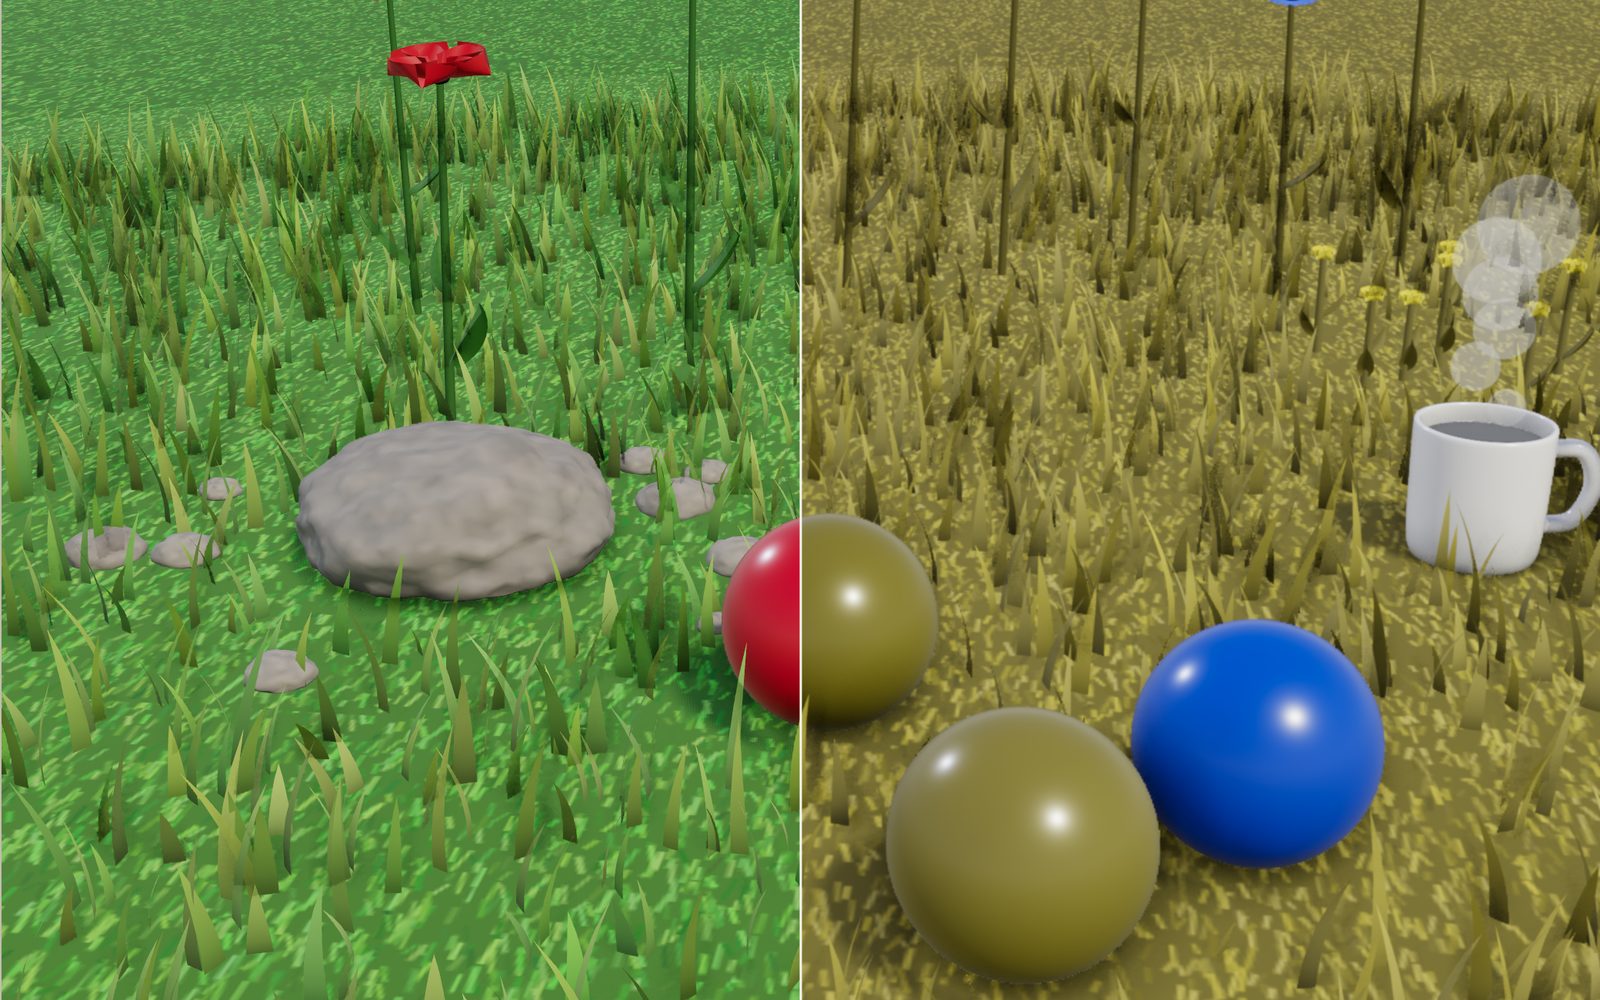
Uma bola vermelha na grama verde é fácil para você achar, mas difícil para um cachorro. Na mesma flor, uma abelha vê um padrão que você não vê.
Este dispositivo não consegue mostrar o modelo 3D. Abaixo, você pode ler as etapas do guia em texto.
1 / 20 Um jardim, 69 pares de olhosO jardim é redesenhado para cada animal. Mudam cor, nitidez, luz necessária e rapidez visual. Escolha um animal na barra inferior ou uma cena no alto.
Arraste para girar. Use a rolagem ou o gesto de pinça para ampliar.
Por que um cachorro perde a bola vermelha
Jogue uma bola vermelha sobre um gramado verde e você consegue acompanhá-la durante todo o trajeto. Muitos cães passam correndo direto por ela e depois a encontram com o nariz. A bola não se tornou invisível. Para um cachorro, vermelho e verde recaem sobre o mesmo tipo de célula cone, de modo que a bola e a grama aparecem como dois tons de um mesmo verde-oliva apagado. Jogue uma bola azul no lugar da vermelha e o cachorro a verá imediatamente.
Essa pequena cena contém a maior parte do assunto desta exposição. Um olho não é uma câmera que registra o mundo exatamente como ele é. Ele faz uma amostragem da luz com alguns tipos de receptores, com determinada nitidez, em determinada velocidade, cobrindo certo ângulo e apenas acima de um determinado nível de luminosidade. Cada animal resolveu cada uma dessas condições de uma maneira diferente. O cenário redesenha um jardim, uma floresta noturna, um recife e um prado visto do ar pelos olhos de 69 animais, e cada número que mostra vem de uma medição em um artigo ou em uma página universitária listada ao final. Quando ninguém mediu alguma característica, o cenário informa "sem número", em vez de fazer uma suposição.
Como o olho transforma luz em cor
A retina tem dois tipos de sensores de luz. Os bastonetes funcionam com pouca luz e não distinguem as cores umas das outras. Os cones funcionam à luz do dia e existem em alguns tipos, cada um ajustado a uma faixa de comprimentos de onda. Nenhum cone sozinho sabe que cor está vendo: ele apenas informa quanta luz captou. O cérebro compara os relatos dos diferentes tipos de cones, e essa comparação é o que experimentamos como cor.
As pessoas geralmente têm três tipos de cones. Medidos uma célula por vez em uma retina humana, seus picos ficam perto de 420 nm (violeta-azul), 534 nm (verde) e 564 nm (amarelo-verde). As sensibilidades do cone verde e do cone de ondas longas se sobrepõem bastante, mas um objeto vermelho e um verde ainda produzem proporções diferentes entre eles, de modo que vemos duas cores. Duas luzes que produzem as mesmas capturas nos três cones parecem idênticas para nós, mesmo quando seus espectros são diferentes, e é por isso que uma tela consegue imitar quase qualquer cor usando apenas três primárias de faixa estreita.
O formato da curva de sensibilidade de um receptor é muito semelhante de um pigmento para outro, desde que se saiba onde fica seu pico. Govardovskii e colegas ajustaram em 2000 um padrão que prevê a curva inteira apenas a partir do pico, incluindo uma pequena segunda elevação nos comprimentos de onda curtos. As curvas mostradas no painel do cenário são desenhadas com esse padrão, uma para cada tipo de receptor, e o modelo de cores usa essas mesmas curvas.
Dois cones: cães, gatos, cavalos e animais de fazenda
A maioria dos mamíferos tem dois tipos de cones: um para comprimentos de onda curtos e outro para os médios a longos. Com dois cones, o olho ainda consegue distinguir azul de amarelo, mas vermelho, laranja, amarelo e verde recaem principalmente sobre o cone de ondas longas e diferem sobretudo no brilho. Uma pessoa com deficiência na visão de vermelho e verde enxerga de maneira semelhante.
Nos cães, testes com animais treinados publicados em 1989 encontraram dois pigmentos de cones perto de 429 nm e 555 nm. Os gatos têm o mesmo par, perto de 450 e 556 nm, medido em registros da retina em 1969 e 1979. Os cavalos têm os seus em 428 e 539 nm, medidos em 2001. Bovinos, cabras e ovelhas foram testados juntos em 1998: um cone de ondas curtas entre 444 e 455 nm e um de ondas longas entre 552 e 555 nm. Veados-de-cauda-branca têm um cone curto perto de 450 a 460 nm e um médio perto de 537 nm.
Escolha o cachorro e ative "Metade e metade". A metade esquerda é a sua visão; a metade direita é a do cachorro. As bolas vermelha e verde, separadas para você por mais de 100 unidades na escala de diferença de cores CIELAB, aparecem separadas por cerca de 5 unidades para o cachorro. A bola azul continua a mais de 100 unidades de distância da grama. Se você for comprar um brinquedo para um cachorro que brinca na grama, azul ou amarelo é uma escolha melhor que vermelho. Experimente também o cavalo, a vaca e o veado: seus cones de ondas longas ficam em comprimentos de onda ligeiramente diferentes, de modo que os vermelhos se tornam oliva em graus um pouco diferentes.
Ultravioleta: camundongos, abelhas, periquitos e peixes-dourados
Muitos animais veem uma faixa de luz que nós não conseguimos ver: o ultravioleta, abaixo de cerca de 400 nm. Nosso próprio cristalino absorve a maior parte dessa luz antes de ela chegar à retina. Em 1991, Jacobs e colegas descobriram que alguns roedores têm um cone mais sensível ao ultravioleta, o primeiro receptor desse tipo conhecido em um mamífero. Camundongos têm um com pico em 360 nm e outro verde em 508 nm, e a maioria de seus cones carrega os dois pigmentos ao mesmo tempo. Ratos também têm um cone ultravioleta e outro de ondas médias e, em testes publicados em 2001, usaram os dois juntos para distinguir cores.
Abelhas-do-mel têm receptores ultravioletas, azuis e verdes, com picos em 344, 436 e 544 nm, e não têm receptor para o vermelho. Periquitos-australianos e diamantes-mandarins têm quatro tipos de cones, um deles um cone ultravioleta verdadeiro em 360 a 380 nm. Peixes-dourados também têm quatro, em 356, 447, 537 e 623 nm. Um morcego que visita flores na América Central e do Sul, o morcego-beija-flor de Pallas, de língua longa, responde ao ultravioleta até 310 nm, mas, nesse caso, um único pigmento faz os dois trabalhos: a pequena segunda banda de absorção do pigmento verde capta o ultravioleta, de modo que o morcego vê essa luz como brilho, não como uma cor separada.
Padrões ultravioletas são comuns nas flores. As rudbéquias parecem simplesmente amarelas para nós, mas suas pétalas absorvem ultravioleta perto do centro e o refletem nas pontas, formando um anel escuro em torno do meio da flor. Em um estudo de campo de 2014, abelhas silvestres visitaram com mais frequência os capítulos florais cujo anel ultravioleta tinha sido ampliado do que aqueles cujo anel tinha sido reduzido. No jardim, escolha a abelha-do-mel, o camundongo ou o periquito-australiano e olhe as flores amarelas de perto. Sua tela não consegue emitir ultravioleta, por isso o cenário guarda um valor ultravioleta separado para cada superfície e o mostra em falsas cores; com "Só ultravioleta", você vê apenas esse canal.
Mais receptores nem sempre significam cores melhores
A borboleta japonesa cauda-de-andorinha-amarela tem oito variedades de receptores em seis classes. Em testes comportamentais publicados em 2008, borboletas treinadas para uma cor conseguiam distingui-la de outra a apenas 1 nm de distância em três pontos do espectro, perto de 430, 480 e 560 nm. Esse padrão é a marca de quatro tipos de receptores trabalhando juntos, portanto a cauda-de-andorinha vê com quatro canais, embora tenha mais tipos de receptores do que isso.
Os camarões-louva-a-deus são o caso extremo. Algumas espécies têm 12 tipos de receptores distribuídos de 300 a 720 nm. Seria de esperar que distinguissem cores melhor do que qualquer outro ser vivo. Thoen e colegas testaram isso em 2014 e encontraram o contrário: os camarões confundiam luzes separadas por 12 a 25 nm, uma discriminação mais grosseira que a da borboleta e que a nossa. A sugestão dos pesquisadores é que os camarões não comparam os receptores em detalhe, mas reconhecem uma cor pelo receptor estreito que responde, varrendo o objeto com o olho. O cenário representa essa ideia com uma regra simples: o mais ativo dos 12 receptores dá nome à cor, de modo que o recife se divide em faixas uniformes de tonalidade. Os mesmos animais também conseguem ver luz circularmente polarizada, como Chiou e colegas mostraram em 2008.
Um cone: tubarões, polvos e sépias
Hart e colegas mediram os pigmentos visuais de 17 espécies de tubarão em 2011. Todas tinham um único tipo de cone, com pico entre 532 e 561 nm. Com um cone, um animal pode avaliar o brilho, mas não a cor; portanto, os tubarões podem de fato ser cegos às cores. Baleias, golfinhos e focas também têm um único tipo de cone; chegaram à mesma solução independentemente.
O polvo-comum tem um pigmento visual, com pico em 475 nm, e a maioria dos testes comportamentais o considera cego às cores. As sépias são semelhantes, com um tipo de receptor perto de 500 nm, mas ainda assim mudam a cor da pele para combinar com o fundo. Marshall e Messenger chamaram isso de "camuflagem cega às cores" em 1996. O que os cefalópodes têm em vez disso é visão de polarização: seus receptores ficam em ângulos retos entre si, e cada um absorve melhor a luz polarizada em uma direção. Debaixo d’água, onde a luz refletida por peixes prateados é fortemente polarizada, esse é um sinal útil. Escolha o polvo no recife e ative "Polarização": a luz fortemente polarizada aparece amarela, e a luz não polarizada, azul.
Nitidez: ciclos por grau
A nitidez é medida com listras. Mostre a um animal pares de listras pretas e brancas e vá afinando-as até que ele não consiga mais distingui-las de um cinza uniforme. O padrão mais fino que ainda enxerga, contado como pares de listras (ciclos) por grau do campo visual, é sua acuidade. Uma pessoa com visão 20/20 resolve cerca de 30 ciclos por grau; quando a óptica do olho foi contornada por franjas de interferência, pessoas resolveram grades de cerca de 60 ciclos por grau em um estudo de 1965. O cenário usa 60 como limite humano e converte qualquer valor em uma fração de Snellen com 20/(600 ÷ ciclos por grau).
Cães chegam a 11,6 a 12,6 ciclos por grau em registros do cérebro e da retina, cerca de um quinto do melhor valor humano. Cavalos chegaram, no melhor caso, a 23,3 em testes comportamentais. Para gatos são indicados 3,5 a 9, para camundongos cerca de 0,5 e para ratos cerca de 1. Uma coruja-do-mato testada sob luz forte ao lado de duas pessoas viu menos detalhes que elas e aproximadamente tantos quanto um pombo. A águia-audaz está no outro extremo: 132 a 143 ciclos por grau nos testes de Reymond de 1985, mais que o dobro do valor humano e perto dos 157 que sua pupila permite transmitir.
Insetos constroem seus olhos com muitas pequenas facetas, cada uma voltada para uma direção própria. O ângulo entre facetas vizinhas determina o limite dos detalhes que podem captar. Esse ângulo vai de dezenas de graus em insetos primitivos a 0,24 grau nas libélulas, o menor conhecido. A parte frontal do olho da abelha-do-mel resolve cerca de 0,54 ciclo por grau. Os olhos principais da aranha-saltadora Portia são minúsculas câmeras teleobjetivas com receptores separados por 2,4 minutos de arco, cerca de 12,5 ciclos por grau, muito melhor que qualquer inseto do seu tamanho. Vieiras, com até 200 pequenos olhos ao longo da borda da concha, resolvem cerca de 2 graus.
Para mostrar acuidade numa tela, o cenário desfoca a imagem em uma quantidade que depende de quantos pixels cobrem um grau da vista. Uma grade de c ciclos por grau precisa de dois pixels por ciclo, portanto uma vista com p pixels por grau pode mostrar, no máximo, p ÷ 2 ciclos por grau. No jardim, um grau tem apenas cerca de 16 a 20 pixels de altura numa janela de 1440 px de largura e cerca de 8 a 10 num telefone na vertical, o suficiente para 4 a 10 ciclos por grau. Isso é mais grosseiro que a visão de um cachorro; na vista normal, portanto, o desfoque do cão equivale a um terço de pixel e ele parece enxergar tão nítido quanto você. A imagem não está errada: a própria tela é mais grosseira que os dois olhos.
"Teleobjetiva" corrige isso da mesma forma que um telescópio. Ela estreita o campo da câmera em 2, 4 ou 8 vezes, de modo que o mesmo grau passa a ocupar 2, 4 ou 8 vezes mais pixels, e o desfoque é desenhado no tamanho correto para aquela vista. Em ×4 num notebook, um grau cobre cerca de 70 a 80 pixels: sua metade continua nítida, a do cachorro desfoca cerca de 2,5 a 3 pixels e a abelha-do-mel vê apenas algumas facetas. Num telefone, use ×8, em que um grau cobre cerca de 70 pixels. O painel mostra os pixels por grau e o desfoque na ampliação atual. Um olho mais nítido que o seu, como o da águia, não pode ser mostrado de modo algum: a imagem ainda precisa passar pelos seus próprios olhos, por isso o cenário a deixa sem desfoque e informa isso.
A cena "Do alto" faz o mesmo com a distância. Ela mostra um prado por um campo de apenas 4 m de altura, como um telescópio, a uma distância que você escolhe entre 20 m e 1,5 km. A cerca de 480 m, um coelho de 40 cm ocupa cerca de 3 ciclos para você e cerca de 7 para a águia: uma mancha para você, ainda um coelho para ela. Dois coelhos ficam a 2,4 m um do outro para que, com "Metade e metade", cada lado da imagem tenha um.
Rapidez: fusão de cintilação
Acenda uma luz que liga e desliga e aumente a frequência. A certa frequência, os flashes se fundem em um brilho contínuo. Essa é a frequência crítica de fusão de cintilação e indica a rapidez com que um olho acompanha mudanças. Inger e colegas reuniram medições de 81 espécies em 2014. As pessoas ficam em cerca de 60 Hz, gatos em 55, cães em 80, pombos entre 77 e 143 conforme o estudo, galinhas entre 72 e 105, e moscas-varejeiras, abelhas-do-mel e libélulas em 200 a 300. Os tubarões medidos até agora ficam entre 18 e 37 Hz.
A lanterna do jardim e o poste da floresta cintilam na frequência que você define, de 20 a 320 Hz. Uma tela não consegue mostrar uma luz piscando 100 vezes por segundo, por isso a lanterna pulsa lentamente quando o animal escolhido conseguiria perceber a cintilação; a pulsação fica mais profunda quanto mais a frequência da lanterna estiver abaixo da frequência de fusão do animal. A 100 Hz, a cintilação de uma lâmpada numa rede elétrica de 50 Hz, a lanterna parece contínua para você e pulsa para uma abelha. A 60 Hz, frequência de atualização de muitas telas, continua estável para um gato e pulsa para um cachorro.
Os números lado a lado
O atlas abaixo dos controles lista todos os 69 animais com suas fontes. A seguir estão os que têm mais medições, nas unidades usadas pelo cenário. Um traço indica que nenhum valor foi encontrado nessas fontes.
| Animal | Picos dos receptores (nm) | Acuidade (cpd) | Campo | Fusão de cintilação (Hz) |
|---|---|---|---|---|
| Pessoa | 420, 534, 564 | 60 | 180° | 60 |
| Cachorro | 429, 555 | 11,6 a 12,6 | 240° | 80 |
| Gato | 450, 556 | 3,5 a 9 | 200° | 55 |
| Cavalo | 428, 539 | 23,3 | 350° | - |
| Camundongo | 360, 508 | 0,5 | - | - |
| Rato | ultravioleta e ondas médias | 1 | - | 30 |
| Abelha-do-mel | 344, 436, 544 | 0,54 | - | 200 a 300 |
| Pombo | 409, 453, 507, 567 | - | - | 77 a 143 |
| Peixe-dourado | 356, 447, 537, 623 | - | - | - |
| Águia-audaz | cone curto sensível ao violeta | 132 a 143 | - | - |
| Coruja-do-mato | - | - | 201° | - |
| Libélula | 15 a 33 genes de opsina | 2,1 | - | 300 |
| Aranha-saltadora | ultravioleta e verde | 12,5 | - | - |
| Tubarões | um cone, 532 a 561 | - | - | 18 a 37 |
Ao ler uma linha inteira, você vê as compensações. A águia tem os olhos mais nítidos, mas nenhuma capacidade noturna especial registrada; o gato enxerga com pouca luz, mas borra os detalhes finos; a abelha vê ultravioleta e cintilação rápida, mas resolve apenas cerca de meio ciclo por grau.
Ver à noite
Com pouca luz, os cones param de funcionar e os bastonetes assumem. Os bastonetes são mais sensíveis, mas há um único tipo, portanto a cor desaparece. As pessoas perdem a cor a cerca de 0,02 cd/m², um nível próximo do crepúsculo. Gatos enxergam com luz mais fraca que nós: testados com os mesmos padrões, foram 0,74 unidade logarítmica, cerca de 5,5 vezes, mais sensíveis, e a maior parte dessa vantagem veio das pupilas maiores e da captação de luz de sua óptica. Corujas-das-torres têm olhos tubulares com número f de 1,13; o olho humano no escuro fica perto de f/2,4, de modo que a imagem retiniana da coruja é cerca de 4,5 vezes mais clara. O cenário usa essa razão como ganho noturno da coruja-das-torres e a identifica como um modelo.
Dois animais conservam a cor onde nós não conseguimos. Lagartixas-de-capacete não têm bastonetes, apenas três tipos de cones grandes, e em 2004 distinguiram azul de cinza a 0,002 cd/m², luz fraca de luar. Mariposas-elefante escolheram alvos coloridos a 0,0001 cd/m², luz estelar fraca, em testes publicados em 2002; na mesma luz, as pessoas são completamente cegas às cores. Ponha a floresta noturna em "Luz estelar fraca" e experimente as duas. Para elas, o cenário clareia a imagem pela razão entre seu limite de cor e o nosso (10 e 200 vezes) e também marca isso como um modelo.
Muitos animais ativos à noite têm um espelho atrás da retina, o tapetum lucidum. A luz que atravessa os receptores sem ser captada é enviada de volta por eles para ter uma segunda chance. Cães, gatos, cavalos, bovinos e muitos outros mamíferos o possuem, assim como os tubarões. É por isso que seus olhos devolvem brilho ao feixe de uma lanterna. Ligue a lanterna na floresta e olhe para o veado.
Amplitude: campos visuais
Olhos na frente da cabeça veem a mesma cena duas vezes, o que ajuda a avaliar profundidade; olhos nas laterais veem uma parte maior do mundo ao mesmo tempo. Uma pessoa vê cerca de 90 graus de cada lado, aproximadamente 180 no total, com cerca de 120 vistos pelos dois olhos. O campo de um cachorro é de cerca de 240 graus, com 30 a 60 graus de sobreposição, e o de um gato é de cerca de 200. Um cavalo cobre aproximadamente 350 graus e só não vê diretamente atrás e bem à frente da testa. Cada olho de uma coruja-do-mato cobre apenas 124 graus, o campo mais estreito medido em qualquer vertebrado, por isso o total é de 201 graus com sobreposição de 48 graus. Camaleões movem seus olhos de forma independente enquanto procuram, depois fixam ambos na presa.
O panorama mostra o círculo inteiro em torno da câmera, com a direção à sua frente no meio. O campo do animal cobre o meio da faixa; tudo que fica fora dele recebe hachuras. Para animais sem um valor de campo visual, o panorama mostra os 360 graus completos e informa isso.
Formatos de pupilas
As pupilas podem ser redondas, em fenda, em barra, em W ou em pequenos orifícios. Banks e colegas compararam 214 animais terrestres em 2015 e encontraram um padrão. Presas que pastam, como cabras, ovelhas, cavalos e veados, têm pupilas horizontais, e seus olhos giram quando a cabeça se inclina para pastar, mantendo a pupila paralela ao chão. Isso oferece uma visão ampla e nítida ao longo do horizonte. Pequenos predadores que emboscam perto do chão, como gatos, tendem a ter fendas verticais, que ajudam a julgar a distância pelo desfoque. Sépias têm pupilas em W que equilibram a luz vinda de cima e de baixo. A pupila da lagartixa-de-capacete se fecha numa fileira de pequenos orifícios.
A pupila determina o formato do desfoque de tudo que está fora de foco. Ative "Desfoque pupilar" e escolha a cabra: objetos à frente e atrás do ponto em torno do qual a câmera gira se espalham para os lados, enquanto as bordas verticais continuam mais nítidas. A fenda do gato faz o contrário. A intensidade do desfoque aqui é um valor do modelo, escolhido para mostrar a forma com clareza; o formato é o do animal.
Debaixo d’água
A água absorve luz, e o vermelho desaparece primeiro. Pope e Fry mediram a água pura em 1997: em 650 nm, ela absorve 0,34 por metro; em 450 nm, apenas 0,0092, cerca de 37 vezes menos. Na cena do recife, a luz percorre da superfície até o recife e depois até seu olho, e cada cor enfraquece ao longo desse caminho. A 15 m, resta apenas cerca de 2 por cento do vermelho, por isso o peixe vermelho fica cinza-amarronzado até para você, enquanto peixes azuis e amarelos conservam a cor por mais tempo. A água do mar real também espalha luz e carrega plâncton; o cenário usa água pura e uma névoa simples.
Calor: víboras-de-fosseta
Víboras-de-fosseta, pítons e jiboias têm fossetas no rosto que detectam o infravermelho de corpos quentes. Bullock e Cowles registraram os nervos da fosseta em 1952 e mostraram que ela responde ao calor próximo. Em 2010, Gracheva e colegas encontraram a molécula responsável: as fibras nervosas que chegam às fossetas carregam canais TRPA1, que se abrem quando aquecidos. O infravermelho aquece a membrana da fosseta, e os canais informam a mudança. É um sentido de calor, não um terceiro tipo de olho. O cenário pinta superfícies quentes em falsas cores sobre uma vista escura: o chá brilha, a pedra aquecida pelo sol brilha fracamente e o céu aberto é frio.
O laboratório dos olhos
A quinta cena põe os próprios olhos sobre uma mesa. Um olho humano cortado ao meio mostra a córnea e o cristalino desviando a luz para um ponto na retina, com a imagem de cabeça para baixo e a fóvea onde os cones estão mais densamente agrupados. Um olho composto é uma cúpula de facetas hexagonais; uma parte foi cortada para mostrar os longos omatídios, cada um com suas próprias lentes e receptores. Um terceiro olho tem um tapetum atrás da retina, com um raio entrando e voltando para fora. Cinco íris mostram os formatos das pupilas. O último modelo é um olho de vieira, que focaliza com um espelho curvo em vez de uma lente. Palmer e colegas mostraram em 2017 que o espelho é formado por um mosaico de cristais quadrados de guanina e envia luz a duas retinas, uma para o centro da vista e outra para a borda. Escolha um animal enquanto estiver no laboratório e a câmera irá até o tipo de olho dele.
Sessenta e nove animais e os olhos que compartilham
A terceira versão desta exposição mais que dobra o elenco, de 31 para 69 animais em dez grupos. Os novos foram escolhidos porque as pessoas perguntam sobre eles: animais de fazenda e de estimação, de zoológico, aves de jardim e litoral, répteis e rãs, insetos que picam ou polinizam e algumas criaturas marinhas cujos olhos são incomuns o bastante para valer a observação. Cada um só foi acrescentado com um artigo que medisse alguma característica de seu olho, e o número no cenário leva a esse artigo.
Alguns animais não foram medidos diretamente, mas claramente compartilham um sistema visual com outro que já foi. O atlas os marca como "agrupado com" outro animal, e o próprio motivo do agrupamento também tem uma fonte. Um chimpanzé é agrupado com uma pessoa porque estudos de fotopigmentos de primatas mostram que macacos do Velho Mundo, grandes símios e pessoas têm três tipos de cones com picos quase iguais. Uma foca é agrupada com o golfinho-nariz-de-garrafa: a marcação com anticorpos não encontrou cones azuis em nenhuma das cinco espécies de focas e leões-marinhos nem nos sete cetáceos dentados examinados, enquanto seus parentes terrestres os conservaram. Pítons e jiboias são agrupadas com víboras-de-fosseta porque o mesmo canal sensível ao calor foi encontrado nos nervos das fossetas dos três grupos. A girafa é desenhada com os dois cones da vaca, pois a maioria dos mamíferos ungulados testados tem dois, mas sua acuidade de 25 a 27 ciclos por grau é própria, contada a partir de sua retina. Um animal agrupado sempre usa sem alterações as curvas do representante, e o cenário informa isso.
Raças são uma pergunta frequente. Os dois tipos de cones do cachorro vêm de estudos de cães em geral, e nenhum estudo destas fontes compara a visão de cores entre raças. O que difere é onde ficam as células mais densamente agrupadas. McGreevy e colegas encontraram nos cães de focinho longo uma faixa horizontal de células ganglionares, como a do lobo, enquanto o pug tem um único ponto central. Um galgo e um pug provavelmente veem as mesmas cores, mas examinam o mundo de formas diferentes. Para gatos, as fontes não trazem nenhuma comparação entre raças.
Elefantes se mostraram um caso interessante. Pigmentos produzidos a partir de genes de elefantes africanos e asiáticos têm picos em 419 e 552 nm, o mesmo par das pessoas com deuteranopia, um tipo de deficiência na visão de vermelho e verde. Porcos (439 e 556 nm), porquinhos-da-índia (429 e 529 nm) e coelhos (425 e 523 nm) também são dicromatas, cada um com picos ligeiramente diferentes. Macacos do Velho Mundo ficam perto de 430, 535 e 565 nm, quase exatamente onde estão os nossos cones.
Aves trazem quatro cones e gotículas de óleo coloridas. O estorninho-malhado tem cones simples em 563, 504, 449 e cerca de 362 nm, o último um cone ultravioleta verdadeiro. Os do pato-real ficam em cerca de 420, 452, 502 e 570 nm. No pavão, os pigmentos em 424, 458, 505 e 567 nm passam a ter picos de sensibilidade de 432, 477, 537 e 605 nm depois de filtrados pelas gotículas. A tartaruga-de-orelha-vermelha combina quatro pigmentos com gotículas em sete tipos de cones. Pinguins seguiram o outro caminho e conservaram três cones, em 403, 450 e 543 nm, adequados à água azul-esverdeada.
Ver da altura de um animal
O novo controle "Altura dos olhos" leva a câmera até onde os olhos do animal estariam e permite olhar ao redor dessa posição. Um camundongo olha a partir de 3 cm, abaixo das pontas da grama, de modo que o gramado vira uma floresta de folhas e as maçãs no prato ficam escondidas até você se virar para elas. Um cachorro olha de 50 cm, uma pessoa de 1,6 m e uma girafa de 5 m, vendo o jardim inteiro de cima. Os polinizadores começam junto às flores amarelas baixas, uma abelha a 12 cm.
Essas alturas são valores do modelo, alturas típicas de um adulto em pé ou pousado, não medições de artigos. Animais que vivem na água não têm altura dos olhos neste cenário porque essa vista só funciona no jardim e na floresta. A altura muda mais do que você talvez espere. A 3 cm, tudo perto do solo é grande e próximo, o céu preenche a metade superior da vista e um objeto a um metro pode ficar escondido atrás de uma única folha. A 5 m, o mesmo jardim é uma pequena área com flores parecendo pontos, e os 25 a 27 ciclos por grau da retina de uma girafa importam mais que suas cores.
Contando facetas
Um olho composto faz uma amostragem do mundo por muitas facetas separadas, cada uma voltada para uma direção ligeiramente diferente. O ângulo entre facetas vizinhas limita a finura dos padrões que o olho consegue resolver, e o cenário desenha a vista como uma colmeia com esse espaçamento, cada hexágono calculando a média de sua própria área. Uma abelha-do-mel operária tem em média 5432 facetas em cada olho, contadas por Seidl e Kaiser em 1981, e os dois olhos juntos veem quase uma esfera completa. Distribua 5432 hexágonos por cerca de meia esfera e o espaçamento médio fica perto de 2 graus. Na frente, onde a abelha olha para as flores, as facetas apontam para direções mais próximas, separadas por cerca de 0,93 grau. O painel apresenta esse número e quantas facetas cabem na vista atual.
O mosquito mostra como um olho de inseto pode ser grosseiro. Nas fêmeas de Aedes aegypti, as facetas ficam a 6,2 graus umas das outras, portanto o menor ângulo resolvido é de cerca de 12,3 graus, aproximadamente a largura da sua mão com o braço estendido. Um estudo posterior dos fotorreceptores da abelha-do-mel encontrou receptores individuais na frente do olho que respondem a objetos de apenas 0,6 por 0,6 grau, mais finos do que sugere o espaçamento entre facetas. A colmeia é um limite inferior do que uma abelha pode detectar, não uma imagem de tudo que ela percebe.
Nem todo olho composto funciona faceta por faceta. Em alguns camarões e lagostas oceânicos, tubos quadrados revestidos de espelhos refletem luz de muitas facetas para um ponto e formam uma única imagem clara. Land descreveu esses olhos de superposição por reflexão em 1976. O cenário não consegue desenhar essa diferença, por isso a lagosta recebe a mesma colmeia com um espaçamento do modelo.
Granulado no escuro
A luz chega em fótons e, com pouca luz, cada receptor capta apenas alguns deles no tempo necessário para formar uma imagem. A contagem varia aleatoriamente de um instante para outro em cerca de sua própria raiz quadrada. Um receptor que capta 100 fótons varia em 10, o que equivale a 10% do sinal; um que capta 4 varia em 2, o que equivale a 50%. Essa aleatoriedade é o ruído de fótons e explica por que uma cena ao luar parece granulada. As vistas noturnas acrescentam granulado segundo essa regra: ele cresce com a raiz quadrada do brilho de cada ponto e diminui conforme aumentam o nível de luz ou o ganho do animal. Um gato, com ganho de 5,5 em relação a uma pessoa, tem menos granulado sob a mesma luz. A escala do granulado é um modelo; a regra da raiz quadrada não é.
Animais frios têm uma vantagem adicional. Às vezes os bastonetes disparam sem nenhuma luz, ativados pelo calor, e esse ruído no escuro estabelece um limite para a luz mais fraca que um olho pode detectar. Aho e colegas compararam espécies em temperaturas diferentes e encontraram menos ruído retiniano e melhor sensibilidade absoluta no frio, o que ajuda sapos e rãs. As rãs vão além. Elas têm dois tipos de bastonetes e, em um estudo de 2017, rãs que saltavam em direção à luz distinguiram azul de verde até a luz mais fraca que conseguiam enxergar de qualquer modo.
Olhos que mal formam uma imagem
O elenco agora inclui animais cujos olhos fazem algo mais estranho que ver uma imagem nítida. O náutilo tem um olho de orifício sem lente, aberto ao mar, e seu menor ângulo separável é de 5,5 a 11,25 graus. O quíton tem centenas de olhos minúsculos nas placas da concha, com lentes de aragonita, um mineral, que resolvem cerca de 9 a 12 graus no ar e na água. O cubozoário tem lentes que formam uma imagem quase perfeita, mas a retina fica fora do foco, de modo que cada receptor vê uma área ampla e borrada. A estrela-do-mar tem um olho composto sem lentes na ponta de cada braço, lento e cego às cores, mas suficiente para orientá-la de volta ao seu recife. No outro extremo da escala, um globo ocular de lula-gigante de cerca de 27 cm, com uma pupila de 9 cm, é o maior olho de qualquer animal, e os olhos posteriores de uma aranha-lançadora-de-rede têm número f de 0,58 e captam cerca de 2000 vezes mais luz por receptor que os de uma aranha-saltadora.
Uma breve história da medição de olhos
Durante a maior parte do século 20, o que um animal vê precisava ser descoberto pelo comportamento: treiná-lo para escolher um cartão em troca de uma recompensa e observar quais cartões ele confunde. Esses experimentos são lentos, mas respondem à pergunta que importa, o que o animal realmente consegue usar. Muitos dos números aqui ainda vêm deles: a acuidade do cavalo de 1992, as cores da mariposa sob luz estelar de 2002 e os testes com camarões-louva-a-deus de 2014.
A fisiologia acrescentou uma segunda via. Em 1952, Bullock e Cowles colocaram eletrodos nos nervos da fosseta facial de uma víbora e observaram seus disparos quando um objeto quente se aproximava. A microespectrofotometria permite fazer passar um feixe minúsculo por um único receptor e ler a absorção de seu pigmento; foi assim que se mediram os picos dos cones humanos de 1980, os cones das aves de 1997 e os pigmentos dos tubarões de 2011. Eletrorretinogramas, registrados na superfície do olho, forneceram as curvas dos cones de cavalos, bovinos e veados sem dissecar nada.
A genética é a via mais recente. Contar os genes de opsina de um animal mostra quantos pigmentos ele poderia produzir: descobriu-se que libélulas carregam de 15 a 33. Uma contagem de genes, porém, não é um sentido de cor. A história do camarão-louva-a-deus lembra que o comportamento ainda tem a palavra final: muitos receptores, por si só, não dão uma discriminação fina das cores.
Experimente
O painel abaixo dos controles tem doze tarefas que pedem que você use o cenário como um pesquisador usaria. Aperte "Iniciar" em uma tarefa e ela prepara uma cena; depois mude o animal, a luz ou a distância até que a caixa receba a marca de conclusão. Uma delas pede que você encontre o padrão floral que só olhos ultravioletas veem. Outra pede um animal que confunda a bola vermelha com a verde. Outras perguntam quem mantém as cores sob luz estelar, quem consegue ver atrás de si, qual animal percebe a cintilação de uma tela de 60 Hz, a que distância só a águia ainda reconhece um coelho, a que profundidade o peixe vermelho fica cinza, o que uma pupila horizontal desfoca e quanto é preciso ampliar para a vista de um cachorro ficar borrada ao lado da sua. Três tarefas mais novas usam a vista à altura dos olhos: encontre o guia de néctar na argentina à altura de uma abelha, encontre as maçãs como um camundongo a 3 cm de altura e visite três animais cujo campo alcança a região atrás deles. A lista de exemplos abaixo das tarefas reúne 102 estudos; "Mostrar" ajusta o cenário para corresponder a cada um.
Como as vistas são calculadas
Tudo acontece em duas passagens no chip gráfico. Primeiro, a cena é desenhada em uma imagem fora da tela em cor linear, e uma segunda imagem menor registra, para cada superfície, sua refletância ultravioleta, sua temperatura, o quanto ela polariza a luz e a distância em que está. Depois, um único sombreador de tela inteira transforma essas duas imagens na vista do animal.
A cor segue a abordagem de Machado e colegas (2009), ampliada para outros animais. A tela produz cada cor com três primárias estreitas, de modo que cada pixel tem um espectro conhecido. Multiplicar esse espectro por cada curva de receptor do animal fornece as capturas dos receptores, normalizadas para que o branco com ultravioleta médio dê 1 em cada receptor. O cenário então procura a cor da tela que ofereça a você um resultado semelhante. Para dois receptores existe uma resposta exata: a cor no plano entre branco e azul que dá aos dois receptores do animal as mesmas capturas, de modo que quaisquer duas cores que ele confunda apareçam idênticas. Para três receptores que incluem ultravioleta, o mais curto aparece como azul, o médio como verde e o mais longo como vermelho, a falsa cor usual para abelhas. Olhos com quatro receptores não podem ser mostrados numa tela de três cores, por isso as cores que você vê ficam como estão e o ultravioleta, quando o olho o possui, é acrescentado como uma tonalidade roxa. Um receptor produz uma imagem cinza.
A nitidez é um desfoque cujo raio é o número de pixels por grau da tela dividido por duas vezes os ciclos por grau do animal. Olhos compostos são desenhados como uma colmeia com o espaçamento entre facetas, cada célula calculando a média de sua área. Na penumbra, o brilho diminui numa escala logarítmica com o ganho de cada animal, a cor desaparece abaixo de seu limite cromático e o ruído de fótons aumenta (veja "Granulado no escuro"). Debaixo d’água, cada cor é multiplicada por sua transmissão ao longo do caminho. No panorama, a cena é renderizada num mapa cúbico e desenrolada ao seu redor.
Como o jardim é desenhado
Esta versão reconstruiu as cenas para que suas formas pareçam naturais em vez de recortadas de triângulos planos. Cada folha de grama é uma tira curva estreita; milhares são desenhadas em um único lote, e um pequeno programa no chip gráfico as curva com a brisa, para o processador não precisar movê-las uma por uma. Pétalas e folhas são superfícies curvas em vez de recortes planos. As flores de argentina carregam um padrão que alimenta apenas o canal ultravioleta, por isso seus centros escuros aparecem para abelhas e outros olhos ultravioletas, mas nunca na sua própria vista. As pedras são esferas deformadas por ruído fractal com a superfície mantida lisa, e maçãs, bolas, prato e caneca usam formas finamente subdivididas com uma cobertura transparente, semelhante a esmalte. Cada cena se ilumina pelo próprio céu por meio de um mapa de ambiente pré-filtrado, as sombras têm bordas suaves e, em aparelhos rápidos, uma passagem extra escurece as reentrâncias onde os objetos encontram o chão (oclusão ambiente). Aparelhos mais lentos removem automaticamente as passagens extras e mantêm as mesmas vistas.
Estas são imagens para comparar olhos, não fotografias. A grama não tem sementes, o veado não tem pelo e as cores das flores reais variam muito mais do que três canteiros conseguem mostrar. Os padrões ultravioletas seguem o que descrevem os artigos citados; não foram medidos nessas flores.
O que o modelo deixa de fora
Uma tela emite três cores escolhidas para cones humanos, portanto nenhuma dessas vistas mostra o que um animal experimenta; cada uma mostra o que seus receptores captariam, traduzido para cores que você consegue ver. Os números marcados como "modelo" são escolhas, não medições: picos de receptores de animais cujos pigmentos não estavam nessas fontes, ganhos de brilho da lagartixa e da mariposa, intensidade do desfoque pupilar, tamanhos de faceta de vários insetos e alturas dos olhos nessa vista. Bastonetes têm sensibilidade espectral própria perto de 500 nm, que desloca cenas noturnas para azul-esverdeado; o cenário apenas faz a cor desaparecer. O cérebro importa tanto quanto os olhos: dois animais com os mesmos cones ainda podem aprender a interpretá-los de formas diferentes. Indivíduos e raças também variam, e as cifras aqui são valores típicos de estudos individuais.
Sua foto e câmera
"Minha foto" e "Câmera" carregam uma imagem do seu aparelho ou abrem a câmera, mas somente quando você aperta esses botões. A imagem é processada nesta página pelo chip gráfico e não é enviada nem armazenada. Uma foto registra apenas as três cores captadas pelo sensor de uma câmera, por isso não carrega ultravioleta, calor nem polarização; esses canais ficam vazios e o cenário informa isso.
Perguntas
Cães são cegos às cores?
Não completamente. Cães têm dois tipos de cones, perto de 429 e 555 nm, por isso veem azuis e amarelos claramente, mas confundem vermelhos, laranjas e verdes. Isso se aproxima da deficiência de vermelho e verde nas pessoas, não de um mundo cinza.
Que cor de brinquedo um cão vê melhor na grama?
Azul. Na visão do cachorro, as bolas vermelha e verde diferem em cerca de 5 unidades de diferença de cor, enquanto a bola azul fica a cerca de 100 unidades de distância da grama.
Gatos enxergam no escuro?
Nenhum olho enxerga na escuridão total. Gatos detectam luz cerca de 5,5 vezes mais fraca que as pessoas, principalmente graças às pupilas grandes e à sua óptica, e pagam por isso com visão diurna mais borrada e cores fracas.
Qual animal vê melhor à noite?
Depende do que significa "melhor". Para cor, a mariposa-elefante: ela escolheu cores a 0,0001 cd/m², luz estelar fraca. Para brilho, corujas e gatos captam mais luz que nós. Muitos animais noturnos também têm um tapetum que dá à luz uma segunda passagem.
Qual animal tem a visão mais nítida?
Entre os animais daqui, a águia-audaz, com 132 a 143 ciclos por grau. Entre os invertebrados, aranhas-saltadoras chegam a cerca de 12,5 com seus olhos teleobjetivos, muito melhor que insetos do mesmo tamanho.
Por que a vista do cão parece tão nítida quanto a minha?
Porque, na vista normal, sua tela é o limite, não o olho. Um grau do jardim cobre apenas cerca de 8 a 20 pixels, suficientes para 4 a 10 ciclos por grau, e tanto você (cerca de 60) quanto um cachorro (cerca de 12) enxergam detalhes mais finos que isso. Aumente "Teleobjetiva" para ×4 ou ×8: cada grau passa a ter pixels suficientes, e a metade do cachorro fica borrada enquanto a sua continua nítida.
Algum animal vê atrás de si?
Um cavalo cobre cerca de 350 graus, por isso vê quase tudo ao redor, exceto uma faixa estreita diretamente atrás e uma pequena área à frente da testa. Patos-reais e galinholas chegam aos 360 graus completos. Ative o panorama para compará-los com os 180 graus de uma pessoa.
Por que telas cintilam para alguns animais?
Muitas telas e lâmpadas mudam de brilho 60 ou 100 vezes por segundo. Isso é mais rápido que a fusão de cintilação de uma pessoa, por isso vemos luz contínua. Cães, muitas aves e a maioria dos insetos voadores fundem em frequências maiores e conseguem perceber a cintilação.
O ultravioleta das vistas é real?
Os valores ultravioletas são atribuídos a cada superfície do modelo, seguindo padrões conhecidos como o anel das rudbéquias, e desenhados em falsas cores. Sua tela não consegue produzir luz ultravioleta, portanto essas vistas são representações substitutas.
Camarões-louva-a-deus veem mais cores?
Eles têm o maior número de tipos de receptores, 12, mas nos testes distinguiram cores com menos precisão que borboletas ou pessoas. Parecem reconhecer as cores pelo receptor que dispara, em vez de compará-los entre si.
Tubarões são cegos às cores?
Provavelmente. Todas as 17 espécies medidas tinham um único tipo de cone. Ainda conseguem ver contraste, movimento e brilho muito bem.
Por que olhos brilham com uma lanterna?
Eles têm um tapetum lucidum, uma camada espelhada atrás da retina que manda a luz de volta pelos receptores. A luz que escapa novamente é o brilho dos olhos.
Por que cabras têm pupilas retangulares?
A barra horizontal dá uma visão ampla e nítida ao longo do chão, de onde vêm os predadores. Seus olhos giram quando abaixam a cabeça, por isso a pupila continua nivelada enquanto pastam.
Serpentes veem calor com os olhos?
Não. Víboras-de-fosseta, pítons e jiboias detectam infravermelho com fossetas separadas no rosto. O calor abre canais TRPA1 sensíveis à temperatura nos nervos das fossetas. Seus olhos trabalham em conjunto com elas.
Por que tudo fica azul debaixo d’água?
A água absorve luz vermelha muito mais intensamente que a azul: cerca de 37 vezes mais em 650 nm que em 450 nm. A alguns metros de profundidade, a maior parte do vermelho já desapareceu.
Raças de cães veem cores diferentes?
Nenhum estudo destas fontes compara a visão de cores entre raças; os dois tipos de cones foram medidos em cães em geral. As raças diferem, sim, na distribuição das células ganglionares. Cães de focinho longo têm uma faixa horizontal como um lobo; os de focinho curto, uma área central.
Como um camundongo vê o jardim?
A 3 cm de altura, a grama se ergue acima do olho, as maçãs se escondem atrás das folhas e, a cerca de 0,5 ciclo por grau, tudo fica pouco nítido. Os cones do camundongo captam ultravioleta e verde, por isso as maçãs vermelhas parecem escuras. Escolha o camundongo e ative "Altura dos olhos" para experimentar.
Quantas lentes tem o olho de uma abelha?
Uma abelha-do-mel operária tem em média 5432 facetas em cada olho, cada uma com sua própria lente. Na frente do olho, elas apontam para direções separadas por cerca de 0,93 grau.
Por que a noite fica granulada?
Com pouca luz, cada receptor capta apenas alguns fótons de cada vez, e seu número varia aleatoriamente em cerca da própria raiz quadrada. O cenário acrescenta granulado segundo essa regra, por isso ele fica mais forte com menos luz e mais fraco para animais de olhos mais sensíveis.
Qual animal tem os maiores olhos?
Lulas-gigantes e colossais (Architeuthis e Mesonychoteuthis). Um globo ocular de lula-gigante mediu cerca de 27 cm de diâmetro, com uma pupila de 9 cm.
Elefantes veem cores?
Sim, em duas cores. Seus pigmentos têm picos em 419 e 552 nm, o mesmo par das pessoas com deuteranopia.
Termos
- Cone: receptor de luz na retina que funciona à luz do dia. Comparar tipos de cones produz a cor.
- Bastonete: receptor para luz fraca. Bastonetes não separam as cores.
- Dicromata, tricromata, tetracromata: olho que compara dois, três ou quatro tipos de receptores.
- Comprimento de onda de pico (λmax): comprimento de onda ao qual um receptor responde com mais intensidade, em nanômetros.
- Ciclos por grau (cpd): quantos pares de listras claras e escuras um olho resolve em um grau do campo visual.
- Fusão crítica de cintilação (CFF): frequência de cintilação em que os flashes se fundem em luz contínua.
- Tapetum lucidum: camada refletora atrás da retina em muitos animais ativos à noite.
- Omatídio: uma unidade de um olho composto, com lente e receptores próprios.
- Órgão de fosseta: fosseta sensível ao calor no rosto de víboras-de-fosseta, pítons e jiboias.
- cd/m²: candela por metro quadrado, medida de quanto uma superfície parece luminosa; cenas diurnas ficam nos milhares, e a luz estelar perto de 0,0001.
- Polarização: direção em que as ondas de luz vibram. A luz refletida pela água e por escamas brilhantes costuma ser polarizada.
- Altura dos olhos: na vista à altura dos olhos, distância da câmera ao chão para cada animal; um valor do modelo.
- Olho de superposição: olho composto em que luz de muitas facetas se combina em uma imagem, por lentes ou espelhos.
- Ruído de fótons: variação aleatória na quantidade de fótons captados por um receptor, cerca da raiz quadrada da contagem.
Fontes
Todos os endereços foram conferidos em 18 de outubro de 2026; as fontes acrescentadas na terceira versão, em 19 de outubro de 2026.
- Bowmaker, J. K. & Dartnall, H. J. A. (1980) Visual pigments of rods and cones in a human retina, Journal of Physiology 298: 501-511. https://doi.org/10.1113/jphysiol.1980.sp013097
- Govardovskii, V. I. et al. (2000) In search of the visual pigment template, Visual Neuroscience 17: 509-528. https://doi.org/10.1017/S0952523800174036
- Machado, G. M., Oliveira, M. M. & Fernandes, L. A. F. (2009) A physiologically-based model for simulation of color vision deficiency, IEEE Transactions on Visualization and Computer Graphics 15: 1291-1298. https://doi.org/10.1109/TVCG.2009.113
- Campbell, F. W. & Green, D. G. (1965) Optical and retinal factors affecting visual resolution, Journal of Physiology 181: 576-593. https://doi.org/10.1113/jphysiol.1965.sp007784
- Spector, R. H. (1990) Visual Fields, in Clinical Methods, 3rd edition, NCBI Bookshelf NBK220. https://www.ncbi.nlm.nih.gov/books/NBK220/
- Neitz, J., Geist, T. & Jacobs, G. H. (1989) Color vision in the dog, Visual Neuroscience 3: 119-125. https://doi.org/10.1017/S0952523800004430
- Odom, J. V., Bromberg, N. M. & Dawson, W. W. (1983) Canine visual acuity: retinal and cortical field potentials evoked by pattern stimulation, American Journal of Physiology 245: R637-R641. https://doi.org/10.1152/ajpregu.1983.245.5.R637
- Miller, P. E. & Murphy, C. J. (1995) Vision in dogs, Journal of the American Veterinary Medical Association 207: 1623-1634. https://doi.org/10.2460/javma.1995.207.12.1623
- Miller, P. E., Vision in Animals: What do Dogs and Cats See?, Veterinary Information Network. https://www.vin.com/apputil/content/defaultadv1.aspx?catId=29216&id=3844144
- Daw, N. W. & Pearlman, A. L. (1969) Cat colour vision: one cone process or several?, Journal of Physiology 201: 745-764. https://doi.org/10.1113/jphysiol.1969.sp008785
- Zrenner, E. & Gouras, P. (1979) Blue-sensitive cones of the cat produce a rodlike electroretinogram, Investigative Ophthalmology and Visual Science 18: 1076-1081, PubMed 478777. https://pubmed.ncbi.nlm.nih.gov/478777/
- Kang, I. et al. (2009) Contrast sensitivity of cats and humans in scotopic and mesopic conditions, Journal of Neurophysiology 102: 831-840. https://doi.org/10.1152/jn.90641.2008
- Carroll, J. et al. (2001) Photopigment basis for dichromatic color vision in the horse, Journal of Vision 1: 80-87. https://doi.org/10.1167/1.2.2
- Timney, B. & Keil, K. (1992) Visual acuity in the horse, Vision Research 32: 2289-2293. https://doi.org/10.1016/0042-6989(92)90092-W
- Harman, A. M. et al. (1999) Horse vision and an explanation for the visual behaviour originally explained by the ramp retina, Equine Veterinary Journal 31: 384-390. https://doi.org/10.1111/j.2042-3306.1999.tb03837.x
- UC Davis School of Veterinary Medicine, Center for Equine Health, Equine vision and performance. https://cehhorsereport.vetmed.ucdavis.edu/news/equine-vision-and-performance
- Jacobs, G. H., Deegan, J. F. & Neitz, J. (1998) Photopigment basis for dichromatic color vision in cows, goats, and sheep, Visual Neuroscience 15: 581-584. https://doi.org/10.1017/S0952523898153154
- Jacobs, G. H. et al. (1994) Electrophysiological measurements of spectral mechanisms in the retinas of two cervids, Journal of Comparative Physiology A 174: 551-557. https://doi.org/10.1007/BF00217375
- D'Angelo, G. J. et al. (2008) Visual specialization of an herbivore prey species, the white-tailed deer, Canadian Journal of Zoology 86: 735-743. https://doi.org/10.1139/Z08-050
- Banks, M. S. et al. (2015) Why do animal eyes have pupils of different shapes?, Science Advances 1: e1500391. https://doi.org/10.1126/sciadv.1500391
- Jacobs, G. H., Neitz, J. & Deegan, J. F. (1991) Retinal receptors in rodents maximally sensitive to ultraviolet light, Nature 353: 655-656. https://doi.org/10.1038/353655a0
- Wang, Y. V., Weick, M. & Demb, J. B. (2011) Spectral and temporal sensitivity of cone-mediated responses in mouse retinal ganglion cells, Journal of Neuroscience 31: 7670-7681. https://doi.org/10.1523/JNEUROSCI.0629-11.2011
- Prusky, G. T., West, P. W. & Douglas, R. M. (2000) Behavioral assessment of visual acuity in mice and rats, Vision Research 40: 2201-2209. https://doi.org/10.1016/S0042-6989(00)00081-X
- Jacobs, G. H., Fenwick, J. A. & Williams, G. A. (2001) Cone-based vision of rats for ultraviolet and visible lights, Journal of Experimental Biology 204: 2439-2446. https://doi.org/10.1242/jeb.204.14.2439
- Winter, Y., López, J. & von Helversen, O. (2003) Ultraviolet vision in a bat, Nature 425: 612-614. https://doi.org/10.1038/nature01971
- Peitsch, D. et al. (1992) The spectral input systems of hymenopteran insects and their receptor-based colour vision, Journal of Comparative Physiology A 170: 23-40. https://doi.org/10.1007/BF00190398
- Ryan, L. A. et al. (2020) The buzz around spatial resolving power and contrast sensitivity in the honeybee, Apis mellifera, Vision Research 169: 25-32. https://doi.org/10.1016/j.visres.2020.02.005
- Horth, L., Campbell, L. & Bray, R. (2014) Wild bees preferentially visit Rudbeckia flower heads with exaggerated ultraviolet absorbing floral guides, Biology Open 3, PubMed Central. https://pmc.ncbi.nlm.nih.gov/articles/PMC4001241/
- Koshitaka, H. et al. (2008) Tetrachromacy in a butterfly that has eight varieties of spectral receptors, Proceedings of the Royal Society B 275: 947-954. https://doi.org/10.1098/rspb.2007.1614
- Arikawa, K. (2003) Spectral organization of the eye of a butterfly, Papilio, Journal of Comparative Physiology A 189: 791-800. https://doi.org/10.1007/s00359-003-0454-7
- Kelber, A., Balkenius, A. & Warrant, E. J. (2002) Scotopic colour vision in nocturnal hawkmoths, Nature 419: 922-925. https://doi.org/10.1038/nature01065
- Johnsen, S. et al. (2006) Crepuscular and nocturnal illumination and its effects on color perception by the nocturnal hawkmoth Deilephila elpenor, Journal of Experimental Biology 209: 789-800. https://doi.org/10.1242/jeb.02053
- Thoen, H. H. et al. (2014) A different form of color vision in mantis shrimp, Science 343: 411-413. https://doi.org/10.1126/science.1245824
- Chiou, T.-H. et al. (2008) Circular polarization vision in a stomatopod crustacean, Current Biology 18: 429-434. https://doi.org/10.1016/j.cub.2008.02.066
- Reymond, L. (1985) Spatial visual acuity of the eagle Aquila audax, Vision Research 25: 1477-1491. https://doi.org/10.1016/0042-6989(85)90226-3
- Lind, O. et al. (2013) Ultraviolet sensitivity and colour vision in raptor foraging, Journal of Experimental Biology 216: 1819-1826. https://doi.org/10.1242/jeb.082834
- Martin, G. R. (1984) The visual fields of the tawny owl, Strix aluco L., Vision Research 24: 1739-1751. https://doi.org/10.1016/0042-6989(84)90005-1
- Martin, G. R. & Gordon, I. E. (1974) Visual acuity in the tawny owl (Strix aluco), Vision Research 14: 1393-1397. https://doi.org/10.1016/0042-6989(74)90014-5
- Orlowski, J. et al. (2012) Night vision in barn owls: visual acuity and contrast sensitivity under dark adaptation, Journal of Vision 12(13): 4. https://doi.org/10.1167/12.13.4
- Bowmaker, J. K. et al. (1997) Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds, Vision Research 37: 2183-2194. https://doi.org/10.1016/S0042-6989(97)00026-6
- Palacios, A. G. et al. (1998) Spectral sensitivity of cones in the goldfish, Carassius auratus, Vision Research 38: 2135-2146. https://doi.org/10.1016/S0042-6989(97)00411-2
- Bowmaker, J. K., Thorpe, A. & Douglas, R. H. (1991) Ultraviolet-sensitive cones in the goldfish, Vision Research 31: 349-352. https://doi.org/10.1016/0042-6989(91)90087-L
- Hart, N. S. et al. (2011) Microspectrophotometric evidence for cone monochromacy in sharks, Naturwissenschaften 98: 193-201. https://doi.org/10.1007/s00114-010-0758-8
- Hanke, F. D. & Kelber, A. (2020) The eye of the common octopus (Octopus vulgaris), Frontiers in Physiology 10: 1637. https://doi.org/10.3389/fphys.2019.01637
- Marshall, N. J. & Messenger, J. B. (1996) Colour-blind camouflage, Nature 382: 408-409. https://doi.org/10.1038/382408b0
- Kelman, E. J., Osorio, D. & Baddeley, R. J. (2008) A review of cuttlefish camouflage and object recognition and evidence for depth perception, Journal of Experimental Biology 211: 1757-1763. https://doi.org/10.1242/jeb.015149
- Mäthger, L. M. et al. (2013) The W-shaped pupil in cuttlefish (Sepia officinalis): functions for improving horizontal vision, Vision Research 83: 19-24. https://doi.org/10.1016/j.visres.2013.02.016
- Gracheva, E. O. et al. (2010) Molecular basis of infrared detection by snakes, Nature 464: 1006-1011. https://doi.org/10.1038/nature08943
- Bullock, T. H. & Cowles, R. B. (1952) Physiology of an infrared receptor: the facial pit of pit vipers, Science 115: 541-543. https://doi.org/10.1126/science.115.2994.541-b
- Roth, L. S. V. & Kelber, A. (2004) Nocturnal colour vision in geckos, Proceedings of the Royal Society B 271 (Suppl. 6): S485-S487. https://doi.org/10.1098/rsbl.2004.0227
- Roth, L. S. V. et al. (2009) The pupils and optical systems of gecko eyes, Journal of Vision 9(3): 27. https://doi.org/10.1167/9.3.27
- Ott, M. (2001) Chameleons have independent eye movements but synchronise both eyes during saccadic prey tracking, Experimental Brain Research 139: 173-179. https://doi.org/10.1007/s002210100774
- Land, M. F. (1997) Visual acuity in insects, Annual Review of Entomology 42: 147-177. https://doi.org/10.1146/annurev.ento.42.1.147
- Futahashi, R. et al. (2015) Extraordinary diversity of visual opsin genes in dragonflies, PNAS 112: E1247-E1256. https://doi.org/10.1073/pnas.1424670112
- Williams, D. S. & McIntyre, P. (1980) The principal eyes of a jumping spider have a telephoto component, Nature 288: 578-580. https://doi.org/10.1038/288578a0
- DeVoe, R. D. (1975) Ultraviolet and green receptors in principal eyes of jumping spiders, Journal of General Physiology 66: 193-207. https://doi.org/10.1085/jgp.66.2.193
- Zurek, D. B. et al. (2015) Spectral filtering enables trichromatic vision in colorful jumping spiders, Current Biology 25: R403-R404. https://doi.org/10.1016/j.cub.2015.03.033
- Palmer, B. A. et al. (2017) The image-forming mirror in the eye of the scallop, Science 358: 1172-1175. https://doi.org/10.1126/science.aam9506
- Speiser, D. I. & Johnsen, S. (2008) Scallops visually respond to the size and speed of virtual particles, Journal of Experimental Biology 211: 2066-2070. https://doi.org/10.1242/jeb.017038
- Ollivier, F. J. et al. (2004) Comparative morphology of the tapetum lucidum (among selected species), Veterinary Ophthalmology 7: 11-22. https://doi.org/10.1111/j.1463-5224.2004.00318.x
- Inger, R. et al. (2014) Potential biological and ecological effects of flickering artificial light, PLoS ONE 9: e98631 (Table S1, critical fusion frequencies). https://doi.org/10.1371/journal.pone.0098631
- Pope, R. M. & Fry, E. S. (1997) Absorption spectrum (380-700 nm) of pure water II: integrating cavity measurements, Applied Optics 36: 8710-8723. https://doi.org/10.1364/AO.36.008710
- Neitz, J. & Jacobs, G. H. (1989) Spectral sensitivity of cones in an ungulate, Visual Neuroscience 2: 97-100. https://doi.org/10.1017/S0952523800011949
- Nuboer, J. F. W., van Nuys, W. M. & Wortel, J. F. (1983) Cone systems in the rabbit retina revealed by ERG-null-detection, Journal of Comparative Physiology 151: 347-352. https://doi.org/10.1007/BF00623909
- Jacobs, G. H. & Deegan, J. F. (1994) Spectral sensitivity, photopigments, and color vision in the guinea pig (Cavia porcellus), Behavioral Neuroscience 108: 993-1004. https://doi.org/10.1037/0735-7044.108.5.993
- Coimbra, J. P. et al. (2013) Scene from above: retinal ganglion cell topography and spatial resolving power in the giraffe (Giraffa camelopardalis), Journal of Comparative Neurology 521: 2042-2057. https://doi.org/10.1002/cne.23271
- Yokoyama, S. et al. (2005) Elephants and human color-blind deuteranopes have identical sets of visual pigments, Genetics 170: 335-344. https://doi.org/10.1534/genetics.104.039511
- Fasick, J. I. et al. (1998) The visual pigments of the bottlenose dolphin (Tursiops truncatus), Visual Neuroscience 15: 643-651. https://doi.org/10.1017/S0952523898154056
- Peichl, L., Behrmann, G. & Kröger, R. H. H. (2001) For whales and seals the ocean is not blue: a visual pigment loss in marine mammals, European Journal of Neuroscience 13: 1520-1528. https://doi.org/10.1046/j.0953-816x.2001.01533.x
- Bowmaker, J. K. et al. (1991) Photosensitive and photostable pigments in the retinae of Old World monkeys, Journal of Experimental Biology 156: 1-19. https://doi.org/10.1242/jeb.156.1.1
- Jacobs, G. H. (1996) Primate photopigments and primate color vision, PNAS 93: 577-581. https://doi.org/10.1073/pnas.93.2.577
- Jacobs, G. H. (2009) Evolution of colour vision in mammals, Philosophical Transactions of the Royal Society B 364: 2957-2967. https://doi.org/10.1098/rstb.2009.0039
- Hogg, C. et al. (2011) Arctic reindeer extend their visual range into the ultraviolet, Journal of Experimental Biology 214: 2014-2019. https://doi.org/10.1242/jeb.053553
- Bowmaker, J. K. & Martin, G. R. (1985) Visual pigments and oil droplets in the penguin, Spheniscus humboldti, Journal of Comparative Physiology A 156: 71-77. https://doi.org/10.1007/BF00610668
- Martin, G. R. & Young, S. R. (1984) The eye of the Humboldt penguin, Spheniscus humboldti: visual fields and schematic optics, Proceedings of the Royal Society B 223: 197-222. https://doi.org/10.1098/rspb.1984.0090
- Herrera, G. et al. (2008) Spectral sensitivities of photoreceptors and their role in colour discrimination in the green-backed firecrown hummingbird (Sephanoides sephaniodes), Journal of Comparative Physiology A 194: 785-794. https://doi.org/10.1007/s00359-008-0349-8
- Hart, N. S., Partridge, J. C. & Cuthill, I. C. (1998) Visual pigments, oil droplets and cone photoreceptor distribution in the European starling (Sturnus vulgaris), Journal of Experimental Biology 201: 1433-1446. https://doi.org/10.1242/jeb.201.9.1433
- Hart, N. S. (2002) Vision in the peafowl (Aves: Pavo cristatus), Journal of Experimental Biology 205: 3925-3935. https://doi.org/10.1242/jeb.205.24.3925
- Jane, S. D. & Bowmaker, J. K. (1988) Tetrachromatic colour vision in the duck (Anas platyrhynchos L.): microspectrophotometry of visual pigments and oil droplets, Journal of Comparative Physiology A 162: 225-235. https://doi.org/10.1007/BF00606087
- Martin, G. R. (1986) Total panoramic vision in the mallard duck, Anas platyrhynchos, Vision Research 26: 1303-1305. https://doi.org/10.1016/0042-6989(86)90112-4
- Martin, G. R. (1994) Visual fields in woodcocks Scolopax rusticola (Scolopacidae; Charadriiformes), Journal of Comparative Physiology A 174. https://doi.org/10.1007/BF00192728
- Viitala, J. et al. (1995) Attraction of kestrels to vole scent marks visible in ultraviolet light, Nature 373: 425-427. https://doi.org/10.1038/373425a0
- Loew, E. R. & Govardovskii, V. I. (2001) Photoreceptors and visual pigments in the red-eared turtle, Trachemys scripta elegans, Visual Neuroscience 18: 753-757. https://doi.org/10.1017/S0952523801185081
- Loew, E. R. et al. (2002) Visual pigments and oil droplets in diurnal lizards: a comparative study of Caribbean anoles, Journal of Experimental Biology 205: 927-938. https://doi.org/10.1242/jeb.205.7.927
- Nagloo, N. et al. (2016) Spatial resolving power and spectral sensitivity of the saltwater crocodile, Crocodylus porosus, and the freshwater crocodile, Crocodylus johnstoni, Journal of Experimental Biology 219: 1394-1404. https://doi.org/10.1242/jeb.135673
- Yovanovich, C. A. M. et al. (2017) The dual rod system of amphibians supports colour discrimination at the absolute visual threshold, Philosophical Transactions of the Royal Society B 372: 20160066. https://doi.org/10.1098/rstb.2016.0066
- Aho, A.-C. et al. (1988) Low retinal noise in animals with low body temperature allows high visual sensitivity, Nature 334: 348-350. https://doi.org/10.1038/334348a0
- Allison, W. T. et al. (2004) Visual pigment composition in zebrafish: evidence for a rhodopsin-porphyropsin interchange system, Visual Neuroscience 21: 945-952. https://doi.org/10.1017/S0952523804216145
- Archer, S. N. & Lythgoe, J. N. (1990) The visual pigment basis for cone polymorphism in the guppy, Poecilia reticulata, Vision Research 30: 225-233. https://doi.org/10.1016/0042-6989(90)90038-M
- Muir, L. E., Thorne, M. J. & Kay, B. H. (1992) Aedes aegypti (Diptera: Culicidae) vision: spectral sensitivity and other perceptual parameters of the female eye, Journal of Medical Entomology 29: 278-281. https://doi.org/10.1093/jmedent/29.2.278
- Mote, M. I. & Wehner, R. (1980) Functional characteristics of photoreceptors in the compound eye and ocellus of the desert ant, Cataglyphis bicolor, Journal of Comparative Physiology 137: 63-71. https://doi.org/10.1007/BF00656918
- Salcedo, E. et al. (1999) Blue- and green-absorbing visual pigments of Drosophila: ectopic expression and physiological characterization of the R8 photoreceptor cell-specific Rh5 and Rh6 rhodopsins, Journal of Neuroscience 19: 10716-10726. https://doi.org/10.1523/JNEUROSCI.19-24-10716.1999
- Skorupski, P. & Chittka, L. (2010) Photoreceptor spectral sensitivity in the bumblebee, Bombus impatiens (Hymenoptera: Apidae), PLoS ONE 5: e12049. https://doi.org/10.1371/journal.pone.0012049
- Nityananda, V. et al. (2016) Insect stereopsis demonstrated using a 3D insect cinema, Scientific Reports 6: 18718. https://doi.org/10.1038/srep18718
- Land, M. F. (1976) Superposition images are formed by reflection in the eyes of some oceanic decapod Crustacea, Nature 263: 764-765. https://doi.org/10.1038/263764a0
- Nilsson, D.-E. et al. (2012) A unique advantage for giant eyes in giant squid, Current Biology 22: 683-688. https://doi.org/10.1016/j.cub.2012.02.031
- Muntz, W. R. A. & Raj, U. (1984) On the visual system of Nautilus pompilius, Journal of Experimental Biology 109: 253-263. https://doi.org/10.1242/jeb.109.1.253
- Speiser, D. I., Eernisse, D. J. & Johnsen, S. (2011) A chiton uses aragonite lenses to form images, Current Biology 21: 665-670. https://doi.org/10.1016/j.cub.2011.03.033
- Blest, A. D. & Land, M. F. (1977) The physiological optics of Dinopis subrufus L. Koch: a fish-lens in a spider, Proceedings of the Royal Society B 196: 197-222. https://doi.org/10.1098/rspb.1977.0037
- Nilsson, D.-E. et al. (2005) Advanced optics in a jellyfish eye, Nature 435: 201-205. https://doi.org/10.1038/nature03484
- Garm, A. & Nilsson, D.-E. (2014) Visual navigation in starfish: first evidence for the use of vision and eyes in starfish, Proceedings of the Royal Society B 281: 20133011. https://doi.org/10.1098/rspb.2013.3011
- Seidl, R. & Kaiser, W. (1981) Visual field size, binocular domain and the ommatidial array of the compound eyes in worker honey bees, Journal of Comparative Physiology 143: 17-26. https://doi.org/10.1007/BF00606065
- McGreevy, P., Grassi, T. D. & Harman, A. M. (2004) A strong correlation exists between the distribution of retinal ganglion cells and nose length in the dog, Brain, Behavior and Evolution 63: 13-22. https://doi.org/10.1159/000073756
- Koski, M. H. & Ashman, T.-L. (2015) Floral pigmentation patterns provide an example of Gloger's rule in plants, Nature Plants 1: 14007. https://doi.org/10.1038/nplants.2014.7
- Rigosi, E., Wiederman, S. D. & O'Carroll, D. C. (2017) Visual acuity of the honey bee retina and the limits for feature detection, Scientific Reports 7: 45972. https://doi.org/10.1038/srep45972
Texto e simulação: CC BY-NC-SA 4.0, salvo indicação em contrário.
Mais exposições
Fotossíntese: como funciona
Uma folha em pleno sol retira dióxido de carbono do ar, que contém apenas cerca de 426 partes por milhão desse gás, e produz açúcar a partir dele.
Como funcionam as câmeras de filme e instantâneas
A 1/1000 de segundo, o obturador de uma câmera nunca descobre o quadro inteiro de uma vez: uma fenda estreita varre o filme.
Viajando à velocidade da luz
A luz dá 7,5 voltas no equador em um segundo, mas essa mesma luz precisa de 2,5 milhões de anos para chegar à galáxia de Andrômeda.
Luz e cor: dos prismas aos polarizadores
Um prisma de vidro desvia a luz violeta cerca de 1,6 grau a mais que a vermelha, e essa pequena diferença basta para abrir a luz branca num espectro.
Ilusões de ótica: sombra, sala de Ames, tamanho e movimento
A casa A parece escura e a casa B parece clara, mas a sua tela manda o mesmo cinza para o seu olho a partir das duas.
Como funciona a fibra óptica: um raio de luz sob o oceano
A luz de um cabo submarino fica dentro de um núcleo de vidro de 8,2 micrômetros de largura por milhares de quilômetros porque atinge a parede do núcleo num ângulo maior que 84,5°.