図 96探検館
アリの巣の構造としくみ:アリの大きさで地下の部屋を歩く
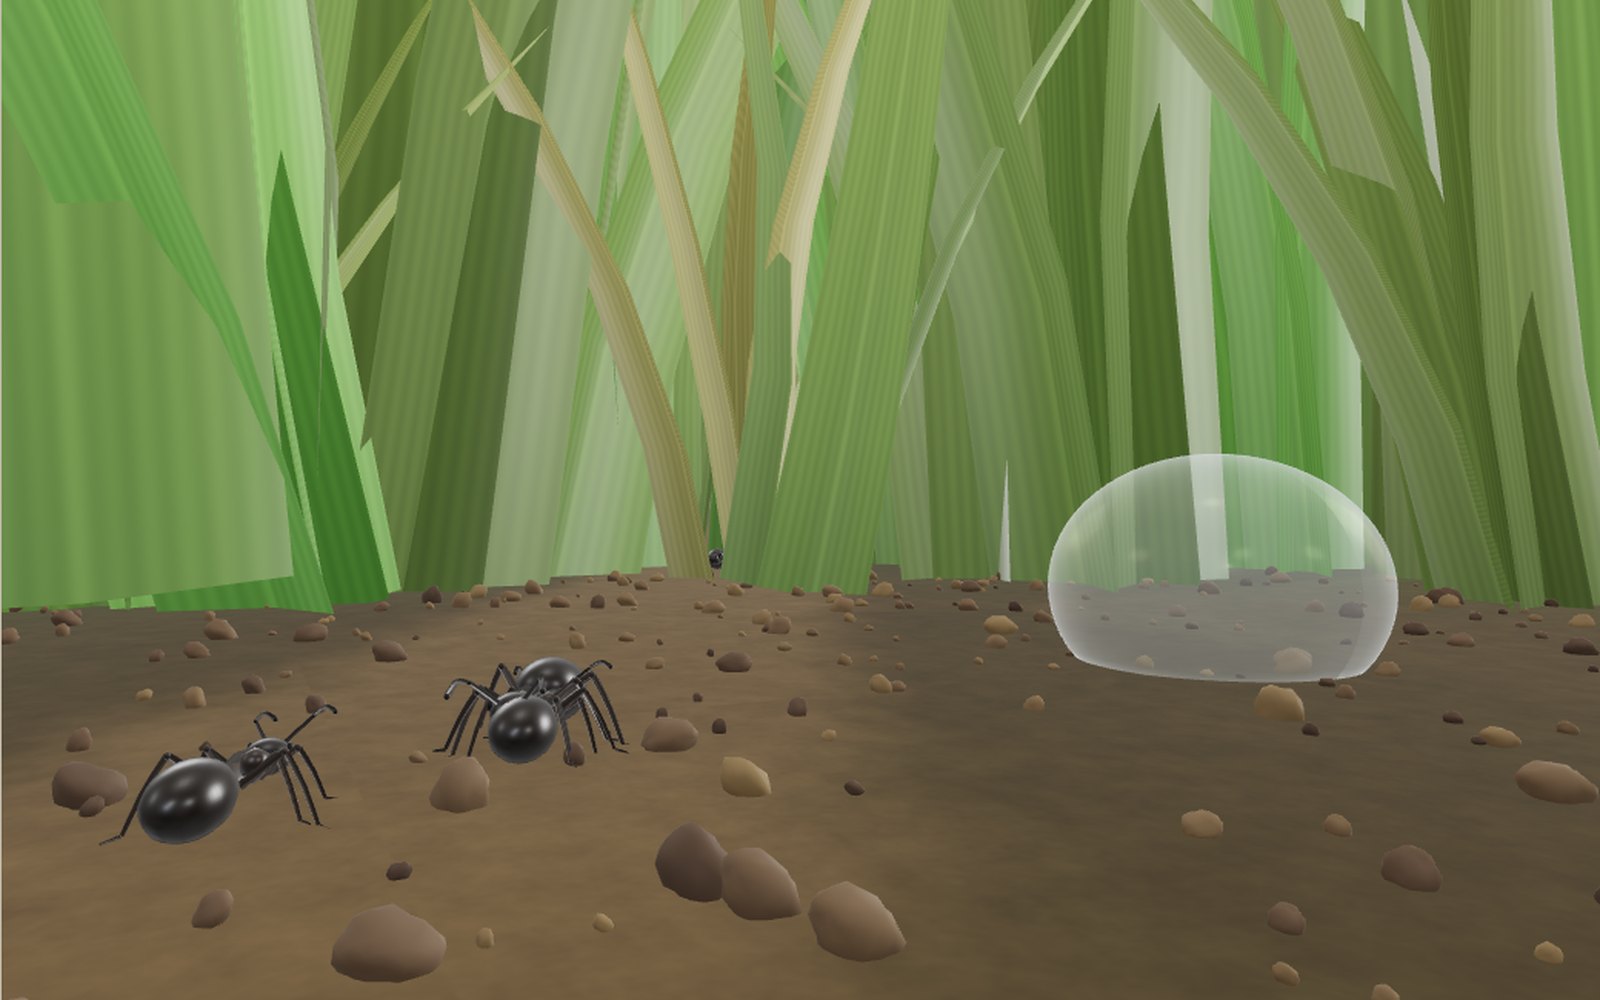
身長が 5 mm になると、芝草の葉は身長の 20 倍にそびえ、ヨーロッパケアリが胸の高さを通り過ぎます。
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 19 5 mm に縮む身長が 1.7 m から、庭のアリの体長ほどの 5 mm に縮みます。草の葉が木のようにそびえ、アリが胸の高さを通り過ぎます。歩いて見回し、「小さく」「大きく」や「大きさ」スライダーで大きさを変えられます。
ドラッグで回転、ホイールか二本指で拡大します。
歩いている場所
アリの巣の構造は、通路でつながる部屋からできています。この展示では身長 1.7 m からヨーロッパケアリの体長ほどの 5 mm に縮み、庭とその地下の巣を歩けます。芝生に寝そべり、頬を土に付けて地面に沿って眺めると、数週間おきに刈る草は密な壁になり、クローバーの葉の露には空が映り、隙間を触角で探りながらアリが走り抜けます。この展示は、その視点をさらに進めたものです。
庭は一辺 4.8 m の正方形で、小さな裏庭ほどの広さです。巣の塚を中心に四つの区画に分かれています。北西は芝生で、クローバー、アブラムシに覆われた茎、アリの道の先にあるクッキーのかけらがあります。北東は砂と露の区画で、砂漠のアリ、ミツツボアリの火口状の巣口、水たまりがあります。南西は熱帯雨林の落ち葉の層で、グンタイアリが狩りをし、丸太の下にアリの体でできた巣がぶら下がっています。南東は低木で、高い枝に葉を縫い合わせたツムギアリの巣があります。
中央の塚の下には、入口の縦穴、女王の部屋、育児室、蜜の貯蔵室、菌園、ごみ部屋の六つがトンネルでつながっています。身長 5 mm なら塚の上の入口を下り、どの部屋も歩けます。本物の巣は一つの種のものです。この巣はいくつかを組み合わせたもので、一つのコロニーというより博物館の展示室です。何を変えたかは、現実との違いの節に記しています。
ここには体長 2 mm のイエヒメアリから 3 cm の Dinoponera まで、27 種、合計 1,300 匹以上のアリがいます。それぞれの道を歩き、葉を運び、天井からぶら下がり、いかだになって浮かび、つかまり合って生きた巣を作ります。図鑑には全種の大きさ、食べ物、速度、出典が載っています。主な場面には、今の自分と同じ大きさの滑らかで顔のない人型が立ち、いつでも大きさを比べられます。
最初の 10 秒
展示は本来の身長で、塚の隣の芝生を見下ろすところから始まります。7 秒かけて身長が 340 分の 1 になります。視点は地面へ下がり、草が早送りで育つ森のようにそびえていきます。縮小が止まると、目の前の道をヨーロッパケアリが胸の高さで横切ります。左には直径約 9 mm、今の身長のほぼ 2 倍の露の滴があります。
340 という数は 1,700 mm を 5 mm で割った値です。展示内のどこでも同じ倍率で、高さ 10 cm の草は自分にとって約 34 m の塔になり、直径 1 mm の砂粒は 34 cm の岩になります。舞台の左下の表示で身長と、本来の大きさの何分の 1 かを確認できます。
大きさはいつでも変えられます。「操作」の「大きさ」スライダーは 2 mm から 1.7 m までの対数目盛りです。「小さく」「大きく」ボタン(または Z と X キー)で、一度に 40 パーセントに縮小するか、2.5 倍に拡大できます。地下ではトンネルの幅がわずか 15 mm なので、9 mm より大きくはなれません。
身長 5 mm の世界
草
芝草の葉は幅が数 mm、長さは普通 5 から 15 cm です。身長 5 mm だと、葉の先は頭上の 10 倍から 30 倍の高さになります。ここの草は曲がった四枚の葉が束になり、一本ずつ本物のように主脈で折れ、風で揺れています。「風」スライダーで揺れの強さを変えられます。根元は細いため間を縫って歩けますが、葉を通り抜けることはできません。この大きさでは堅い壁です。
露
涼しく晴れた朝には、水が葉や地面で凝結します。展示の滴の直径は 2 から 9 mm です。人間の大きさならピンの頭ほどですが、アリの大きさではガラスの大岩です。画質を高くするとレンズのように光を曲げ、後ろの草が上下逆に拡大して見えます。この大きさの水が丸い形を保つのは、滴の重さより表面張力、つまり表面の水分子が互いに引く力の影響が大きいためです。「操作」の時計で時刻を変えられます。露は 8:00 まで十分な大きさを保ち、8:00 から 11:00 にかけて縮み、昼前にはなくなります。
砂
地質学では、Chester Wentworth が 1922 年に示した尺度に従い、直径 0.0625 mm から 2 mm の粒を砂と呼びます。それより大きいものは礫、小さいものはシルトです。身長 5 mm では粗い砂粒は膝まで届き、砂の区画にある 2 から 3 cm の小石は身長の 4 倍から 6 倍の大岩です。近くの砂は粒ごとに描かれ、本物がさまざまな鉱物の混合物であるように、多くの色をしています。
雨
小さくなると、雨は本当の危険です。直径 2 mm の雨粒は毎秒約 6.5 m で落ちます。Ross Gunn と Gilbert Kinzer が 1949 年に測定した値です。身長 5 mm では身長の 5 分の 2 もあり、全力疾走する人より速く飛んできます。「操作」で「雨」をオンにすると、周囲の地面に滴が当たり、輪状に水がはねます。音をオンにすると、近くに落ちるたびに鈍い音がします。
自分と大きさを比べる
道具の「自分」を開き、本来の身長と体重を入力してください。体長 4 mm の庭のアリを何匹並べると自分の身長になるか(身長 1.7 m なら 425 匹)と、今どれだけ縮んでいるかが表示されます。
図鑑でも同じ数値を使います。各種のカードには、本来の身長にアリ何匹分が収まるかと、今の自分に対する体長の比が表示されます。カードの縮尺図では、身長 5 mm の人と、その種の最小・最大の働きアリ、1 cm の棒を並べています。
場面内で直接比べるには「大きさの比較」をオンにしてください。目の前に今の自分と同じ大きさの人型、ヨーロッパケアリ(4 mm)、ハキリアリの兵アリ(14 mm)、サシハリアリ(25 mm)、Dinoponera(30 mm)、直径 2 mm の雨粒が並びます。そのまま 1.7 m に戻ると、列全体が足元の小さな点になります。
アリを間近で見る
身長 5 mm で歩くアリの横に立つと、体のつくりがよく分かります。すべての昆虫と同じく主な部分は三つですが、アリは甲虫やハエとは少し違います。前方の頭には、ペンチのように左右に開く一対の大あご、二つの複眼、二本の触角があります。触角は根元近くで肘のように鋭く曲がり、長い最初の節である柄節に、小さな節の柔らかいむち状の部分が続きます。におい、味、触覚の主な感覚器で、絶えず動いています。
頭の後ろには六本の脚が付く中央の部分、腹胸部があります。その後ろが、アリらしい輪郭を作る細い腰です。ヨーロッパケアリなどでは小さな節が一つ、ハキリアリ、ヒアリ、イエヒメアリでは二つあります。腰の後ろの丸い腹部には、仲間と分ける餌をためる素嚢があり、多くの種では針もあります。
アリは三脚歩行をします。片側の前脚と後脚が反対側の中脚と一緒に動くので、三本の脚が常に安定した三角形を作って地面に付き、残りの三本が前へ進みます。展示のどのアリでも、二組の三角形が交互に動くのが見えます。体の比率は種によって違い、砂漠のアリは長い脚で熱い砂から体を離し、ハキリアリの大型の働きアリは切断用の筋肉が詰まった巨大な頭を持ち、蜜をためる働きアリの腹部は通常の何倍にもなります。
アリの力は実際にどのくらい?
「アリは体重の 50 倍を持ち上げられる」は繰り返し語られる動物の豆知識ですが、語られるたびに数が変わり、多くは測定に基づいていません。ここでは根拠のある三つの数値を示します。道具の「力」パネルでは、自分と並べて棒グラフで比べられます。
最初はハキリアリの値です。2019 年、Pauline Segre と Gavin Taylor は Atta cephalotes の働きアリに少しずつ重い荷を与え、各個体がまだ運べる最大の重さを記録しました。平均は体重の 8.78 倍で、小型から大型まで比率はほぼ同じでした。ただし野外では、大型のアリは自分の限界に対してより軽い葉を選び、力に余裕を残していました。
二つ目は推測です。葉や獲物を運ぶアリを観察した博物学者は、体重の 100 倍以上を扱うとよく書きました。Ohio State University も、三つ目の値を発表した際にこの推測を引用しました。
三つ目は別のものを測っています。2014 年、Ohio State の技術者はアレゲニーヤマアリを顔を下にして遠心機に接着し、回転を速めました。首の関節は体重の約 350 倍の力で伸び始め、3,400 倍から 5,000 倍で切れました。「アリは体重の 5,000 倍を持ち上げられる」という見出しの出所ですが、測ったのは持ち上げる力ではなく、首が切れるまで耐えられる引張力です。
体重 60 kg の人なら、ハキリアリの 8.78 倍は 527 kg を運ぶことに相当します。首の関節の 3,400 倍から 5,000 倍は、204 から 300 トンを支えることに当たります。
巨大なアリが力持ちにならない理由
小さな動物が力持ちに見える理由は幾何学です。筋肉が出せる力は断面積に依存し、動物の長さの二乗に比例して増えます。体重は体積に依存し、長さの三乗に比例します。長さを二倍にすると、筋力は 4 倍ですが、重さは 8 倍になります。
アリで逆に考えてみます。体重の 8.78 倍を運べる体長 6 mm の働きアリを、1.7 m まで拡大します。長さは 1,700 / 6 = 283 倍です。筋力は 283² = 80,089 倍ですが、体重は 283³ = 2270 万倍になります。体重当たりの力は 283 分の 1 に下がり、8.78 から 8.78 / 283 = 0.031 になります。人間ほどのアリが運べるのは体重の約 3 パーセントで、立つことさえ難しいでしょう。「力」パネルでは、自分の身長でこの計算を確認できます。
大きなものを運ぶアリは普通、共同作業で対処します。ヒゲナガアメイロアリの群れは一匹の何倍もの重さの餌を運びます。2015 年の Aviram Gelblum らの研究では、帰り道を知る少数のアリが群れ全体を誘導するしくみが示されました。
においの道
「操作」で「においの道」をオンにすると、道が色付きの点で現れます。ヨーロッパケアリは紫、ハキリアリは緑、グンタイアリはオレンジといった具合です。本物の庭では見えないものを可視化しています。アリは体内の腺から放出する化学物質、フェロモンで道を付け、触角でにおいをかいでたどります。
道は偵察アリが餌を見つけ、帰り道に印を付けるところから始まります。ほかのアリが印をたどり、餌を見つけた個体は帰りに自分の印を加えます。そのため、よい餌場には強い道ができ、多くのアリが訪れます。餌が尽きると新しいにおいが加わらず、古いにおいが蒸発して道が消えます。誰かが経路を計画するのではなく、多くの小さな判断の積み重ねです。
道は方向も伝えます。Duncan Jackson らは 2004 年、イエヒメアリの道の網が約 50 度から 60 度で分岐すると発見しました。二本の枝が合流する先端は巣を向くため、アリは分岐の形だけで帰り道を判断できます。翌年、同じ研究グループは、イエヒメアリが行き止まりへ続く枝の入口に付ける忌避フェロモンを報告しました。アリで知られた最初の「進入禁止」の信号です。
課題「においをたどる」では、採餌するアリと同じことをします。「においの道」をオンにしてクッキーのかけらへ行き、紫の道を巣の入口までたどってください。ヨーロッパケアリの道は途中で分岐します。分岐がどちらを向くかに注目してください。
アブラムシを飼うアリ
紫の道の先に、小さな緑のアブラムシに覆われた茎があり、ヨーロッパケアリが一日中上り下りしています。アブラムシは植物の糖分を含む汁を吸い、余った分を甘露として出します。アリは触角でなでて甘露を集め、その見返りにテントウムシなどの敵を追い払います。多くの庭のアリにとって甘露は主なエネルギー源で、巣からアブラムシへの道は庭でも特に往来が多い場所です。最近は、アブラムシの体内の細菌がこの協力関係をどう変えるかも研究されています。
歩数と太陽を読む
すべてのアリがにおいで帰るわけではありません。Cataglyphis 属の砂漠のアリは、においが長持ちしない熱く開けた砂地で単独で採餌します。移動した方向と距離を逐次合計し、餌を見つけるとまっすぐ巣へ戻ります。
方向は太陽と空の偏光パターンから、距離は歩数から求めます。2006 年、Matthias Wittlinger、Rüdiger Wehner、Harald Wolf は Cataglyphis fortis を餌場まで歩くよう訓練しました。餌場で一部のアリの脚に豚の剛毛を接着して長くし、別のアリの脚を短くしました。帰り道では竹馬のアリが巣を通り過ぎ、脚の短いアリは手前で止まりました。ずれは歩幅の変化にほぼ対応していました。アリは歩数を数えて距離を測っていたのです。砂漠のアリの巣の近くの隠されたカードで、この実験を紹介しています。
最速のアリ
砂の区画ではサハラギンアリが巣の周囲を回り、アリで測定された最高速度、毎秒 855 mm、体長の約 108 倍で走ります。Sarah Pfeffer らが 2019 年にチュニジアの砂丘で撮影しました。砂が 60 °C を超え、捕食者が避難する正午に採餌します。近縁種より短い脚を、毎秒最大 47 歩の歩調で補っています。
銀色も同じ生活への適応です。2015 年、Norman Shi らは、アリが三角形の断面を持つ毛に覆われていることを示しました。毛は可視光と近赤外線の太陽光を反射し、放射による放熱を助け、体温を数度低く保ちます。
移動方法で「アリに乗る」を選ぶと、サハラギンアリの実測最高速度で移動します。毎秒体長の 108 倍を身長 1.7 m の人に当てはめると、108 × 1.7 = 184 m を毎秒進むことになり、音速の半分を少し上回ります。
巣の塚と入口
庭の中央の塚は高さ約 4 cm、直径約 20 cm です。自分には身長の 8 倍の丘になります。働きアリが部屋を掘る際、地下から一粒ずつ運び上げた土でできています。上の穴が入口です。
穴に歩いて入ると、床が入口のトンネルへ下っていきます。そこから六つの部屋へ道が分かれます。地下にいる間は舞台の隅の地図が巣の平面図に変わり、部屋をクリックして移動できます。ランプが壁を照らします。本物の巣は暗く、アリは触覚とにおいで進みます。地下にすむ多くの種では目が小さく、ないものもいます。
女王の部屋
最も深い枝道の先には、体長約 9 mm のヨーロッパケアリの女王が卵の山の隣にいます。数年前の夏の飛行で交尾して精子を蓄え、その後ずっと卵を産んでいます。働きアリが餌を与え、体を掃除し、卵を運び出します。
女王はとても長生きします。Laurent Keller と Michel Genoud が 1997 年に記録を集めたところ、最長は実験室で 28 年 9 か月生きた Lasius niger の女王でした。社会性昆虫では、女王は働きアリの約 10 倍、雄の最大 500 倍も長生きします。ヨーロッパケアリの働きアリは普通 1 年から 2 年生きます。
育児室
アリは卵、幼虫、蛹、成虫の四段階で育ちます。育児室では成長段階ごとに分けられています。長さ約 0.5 mm の卵が積まれ、その周りの広い輪に丸まった白い幼虫が並び、薄茶色の絹の繭に包まれた蛹は片側に積まれています。幼虫は自分で食べられず、育児をする働きアリが口へ餌を運びます。
その中に、本来ここにいないものがいます。どのアリの幼虫よりも大きなピンクのチョウの幼虫です。Maculinea 属のシジミチョウの幼虫は、子と間違えた働きアリによって Myrmica 属の巣へ運ばれます。2009 年、Francesca Barbero らは Myrmica の女王が体の部分をこすって出す音を記録し、チョウの幼虫も似た音を出すと発見しました。働きアリは王族のように扱って餌を与え、巣が乱されると優先して救出します。この巣は Myrmica ではなくヨーロッパケアリのものなので、チョウは別の巣からの客として置いています。
近くでは二匹の働きアリが口を触れ合わせています。これは栄養交換で、一匹の素嚢からもう一匹へ液体の餌を渡しています。2016 年、Adria LeBoeuf らは液を分析し、幼虫の成長を調節する信号になるタンパク質、小分子、幼若ホルモンを見つけました。共有する餌は、化学的な情報を共有する経路でもあります。
菌園
最大の部屋はハキリアリのものです。灰色のスポンジ状の菌園が大部分を占めます。働きアリは新鮮な葉を切り取り、巣へ運び、かんでペーストにして菌を植えます。菌はその中で育ち、ゴンギリディアという膨らんだ先端を作り、アリと幼虫の食料になります。葉自体を食べるのではありません。
Ted Schultz と Seán Brady の 2008 年の菌類栽培アリの進化研究によると、アリは約 5000 万年前から菌類を栽培しています。ハキリアリはその中で最も新しく、最大規模の農業を営みます。Michael Branstetter らの 2017 年の研究は、菌が菌園の外へ逃げられない乾燥した環境で、完全な家畜化への移行が起きたことを示唆しています。
菌園も害を受けます。カビの Escovopsis が栽培菌を襲います。1999 年、Cameron Currie らは、ハキリアリが白い粉のように見える細菌を体に付け、Escovopsis に対する抗生物質を作らせていると発見しました。菌園の働きアリの一匹にこの白いものが付いています。
本物のハキリアリの巣は巨大です。Aldenise Moreira らはブラジルで Atta laevigata の三つの巣にセメントを流し、掘り出しました。各巣には 1,149 から 7,864 の部屋があり、深さ最大 7 m、容量は数 cL から約 50 L、採餌用のトンネルは塚から最大 70 m に達しました。コロニーは生涯で何トンもの土を動かします。展示の菌園の部屋は直径約 24 cm です。
蜜の貯蔵室
小さな部屋では、オーストラリアミツツボアリの働きアリが天井から逆さにぶら下がっています。体の後ろの腹部が、蜜を入れた琥珀色の球に膨らんでいます。こうしたアリを蜜を貯蔵する働きアリと呼びます。採餌するアリが花蜜や甘露を運び帰って与えると、素嚢が伸び、腹部は通常の何倍にもなります。外で食料が不足すると、蜜を戻します。
このようなミツツボアリは、北アメリカの砂漠の Myrmecocystus 属やオーストラリアの Camponotus inflatus など、乾燥地のいくつかの系統で進化しました。オーストラリアでは先住民アボリジナルの人々が甘い食べ物として掘り出します。Andrew Dong らの 2023 年の研究では、Camponotus inflatus の蜜が実験室で一部の細菌や菌類の増殖を止めました。
ごみ部屋
最も深い部屋には、使い終わった菌、葉のかけら、死んだアリが置かれています。ハキリアリはごみを菌園から十分に離し、ブラジルで掘り出された巣では、ごみ部屋は菌園とは別の、塚の専用の区域の下にありました。
アリは仲間の死をどう知るのでしょうか。動かずに横たわる姿ではなく、においで見分けます。1958 年、Edward O. Wilson らが生きたアリに、死体の分解で増える脂肪酸のオレイン酸を塗ると、仲間はごみ捨て場へ運びました。生きたアリは歩いて戻りますが、また運び出されました。ずっと後の 2009 年、Dong-Hwan Choe らは、生きたアルゼンチンアリの体には仲間による運び出しを止める化学物質があり、死後すぐに薄れると示しました。生きているにおいが消えると、死んだアリは運び去られます。
グンタイアリの生きた建築
熱帯雨林の区画では、Eciton burchellii の隊列が落ち葉の中を巡ります。この種のコロニーは 10 万から 200 万匹で、巣穴を掘りません。数日おきにコロニー全体が移動します。その間は働きアリが脚をかけ合い、女王と卵や幼虫などを中に収めた球状の生きた巣をぶら下げます。この区画の丸太の下にもあります。
グンタイアリはほかにも体で建築します。隊列が隙間に出合うと、働きアリがつかまり合って橋を作ります。2015 年、Chris Reid らは、橋が隙間の狭い方へ移動し、橋に拘束される働きアリの損失が近道の利益を上回るところで成長を止めると示しました。この区画の二本の小枝の間の小さな橋は、隠れた発見の一つです。
アフリカの Dorylus 属のサスライアリは、女王一匹の昆虫コロニーとして知られる最大のものです。推定は異なり、Daniel Kronauer の 2009 年の総説では最大 1000 万匹、Graeme Boswell らの 2001 年の研究では働きアリ 2000 万匹とされています。女王はおそらくどの昆虫よりも多くの卵を産みます。
林床の狩り手
落ち葉の層にはほかの狩り手もいます。サシハリアリ Paraponera clavata は体長約 2.5 cm で、刺された痛みは昆虫の中でも最も強い部類とされます。主な毒素ポネラトキシンは、神経が信号を伝えるナトリウムチャネルに作用します。
アギトアリは長いあごを大きく開き、留め金で固定します。引き金となる毛に触れると解放され、2006 年に Sheila Patek らは毎秒 35 から 64 m で閉じると測定しました。地面にあごを打ち付けると空中へ跳ね上がり、逃走に使います。
記録を持つのはドラキュラアリ Mystrium camillae です。あごの先端を押し合わせ、指を鳴らすように一方を他方の横へ滑らせます。2018 年、Fredrick Larabee らは先端が最大毎秒 90 m で動く様子を撮影しました。測定された動物の動きで最速です。
ほかには、体長約 3 cm の最大級のアリで、女王がおらず交尾した働きアリが産卵する Dinoponera、隊列でシロアリを襲い負傷した仲間を運び帰るマタベレアリ、大きな目で跳躍する Gigantiops、視覚で狩るオーストラリアのブルアリ Myrmecia、コロニー全体が石の隙間に収まる小さな Temnothorax がいます。
岩場のアリは教えることで知られます。2006 年、Nigel Franks と Tom Richardson は、餌への道を知る働きアリが仲間を一匹ずつ先導し、後続が遅れると減速し、追いつくと進むと示しました。先導役は時間を費やし、後続は道を早く学びます。人間以外の動物で初めて、正式に教育を実証した例です。
低木の上へ
「飛ぶ」に切り替えると、結婚飛行中の有翅の女王のように移動します。南東の区画の低木には、展示でも特に変わった三種がいます。
ツムギアリは生きた葉で巣を作ります。鎖状の働きアリが二枚の葉の縁を引き寄せ、別の働きアリは大あごで幼虫を持ち、継ぎ目に沿って往復させます。幼虫の糸が葉を接着します。Edward O. Wilson と Bert Hölldobler が 1980 年に幼虫の役割を記述しました。ツムギアリは足の粘着性のパッドで滑らかな葉を走れます。Thomas Endlein と Walter Federle が 2015 年に研究しました。
滑空するアリは熱帯雨林の樹冠にすみます。2005 年、Stephen Yanoviak、Robert Dudley、Michael Kaspari が Cephalotes atratus の働きアリを木から落とすと、空中で向きを変え、腹部を先にして幹へ滑空し、多くは同じ木に着地しました。低木のアリも数秒おきに一匹が落ち、向きを調節して戻ります。
ボルネオ島の自爆するアリは、さらに違う方法で木を守ります。襲われた小型の働きアリは体を締め付け、腹部を破裂させて粘る黄色い毒を敵に噴射します。働きアリは死にます。Alice Laciny らが 2018 年に Colobopsis explodens を記載しました。
幹の高い場所の琥珀の滴にアリが閉じ込められています。アリは思うより古い生き物です。Corrie Moreau らの 2006 年の研究では、DNA と化石から起源を 1 億 4000 万年前から 1 億 6800 万年前と推定しました。琥珀のアリは恐竜と同じ時代に暮らしていたことを示します。
アリは何匹いる?
2022 年、Patrick Schultheiss らはアリがすむすべての大陸の 489 件の研究の個体数をまとめ、同時に約 2 京匹、2 × 10¹⁶ が生きていると推定しました。地球の人間一人につき約 250 万匹です。
アリの総生物量も乾燥炭素量で約 1200 万トンと推定しました。野生の鳥類と野生の哺乳類の合計を上回りますが、人類の約 5 分の 1 です。Yinon Bar-On、Rob Phillips、Ron Milo の 2018 年の研究では、人類は炭素量約 6000 万トンです。アリ全体と人間全体の重さが同じというよく引用される説は、以前の大まかな計算によるものでした。新しい推定は初めてこれほど多くの野外データに基づいています。著者らは、一部の環境ではデータが不足するため控えめな推定だとしています。
塚の近くの天秤は結果を示しています。片方はアリ、もう片方は人間で、人間側が下がっています。課題「アリを量る」ではこの点を問います。
スーパーコロニー
多くのコロニーは隣と争います。南アメリカから世界各地へ運ばれたアルゼンチンアリは、新天地で異なる行動をします。2002 年、Tatiana Giraud らが南ヨーロッパの地中海・大西洋沿岸のアリを調べると、約 6,000 km 離れた巣の個体同士でも争いませんでした。研究者はこれをスーパーコロニーと呼びました。芝生の区画のアルゼンチンアリは、始まりも終わりもない道を走っています。
現実とモデルの違い
一か所で多くを見せるため、いくつかの点を単純化したり配置し直したりしています。
- 一つの庭に各地のアリ。 ヨーロッパ、アジア、南北アメリカ、アフリカ、オーストラリアのアリが集まっています。本物の庭にはその地域の数種がすみます。図鑑のカードに各種の生息地を記しています。
- 一つの巣に多くの種。 巣は一種の一つのコロニーのものです。ここではヨーロッパケアリの女王の部屋、オーストラリアミツツボアリの貯蔵室、ハキリアリの菌園が同じトンネルでつながっています。
- 広いトンネル。 身長 5 mm の来館者が通れるように幅を 15 mm にしています。本物の小さなアリのトンネルは数 mm 幅です。
- アリの大きさと速度。 働きアリの体長は範囲で示し、多くは概数です。図鑑に明記しています。速度が実測値なのはサハラギンアリだけで、ほかは毎秒体長の数倍というモデルの速度で歩きます。
- アリの体。 各種の色をした滑らかな管と楕円体で作っています。毛、体表の彫刻、正確な比率は単純化しています。脚と触角の動きや三脚歩行はグラフィックスカードで描いています。
- 地下の明かり。 見えるようにランプで巣を照らしています。本物の巣は暗闇です。
- におい。 フェロモンの道は見えません。「においの道」では色付きの点で描きます。
- 時間。 アリは実時間で歩き続け、自分は大きさに合った速度で移動します。庭に季節はありません。
移動する
WASD か矢印キーで歩き、ドラッグで見回します。スマートフォンでは左の親指で歩き、画面の右側で見回します。地面をタップかクリックするとそこへ歩きます。何かにぶつかると短い案内が出ます。
移動方法は四つで、キーボードでは 1 から 4 に対応します。「歩く」は今の大きさに合った歩調、「走る」は約 4 倍の速さです。「アリに乗る」は毎秒 855 mm のサハラギンアリに乗る方法で、大きさが 4 cm 以下のときだけ使えます。「飛ぶ」では有翅の女王のように草の上へ上がります。地下では飛べません。
左上の地図には庭を上から見た道と場面が表示され、どこでもクリックして移動できます。地下では巣の平面図になります。「図鑑」で種の図鑑、「発見」で隠れたカード、「課題」で問題を開きます。「写真」はパネルを隠し、構図を決めて画像を保存できます。「音あり」で風、近くのアリの足音、雨粒が聞こえます。キーは G が図鑑、M が地図、T が課題、F が発見、P が写真、Z が小さく、X が大きくです。
展示の案内
パネルの案内は 19 段階です。縮小から始まり、露の滴、砂粒、アブラムシの牧場、分岐するにおいの道、働くハキリアリ、塚を訪れます。地下では女王、育児室、菌園、蜜の貯蔵室、ごみ部屋へ進みます。地上へ戻るとグンタイアリと生きた巣を訪れ、ツムギアリへ飛び、サハラギンアリに乗り、ヒアリのいかだを見ます。本来の大きさに戻り、最後に地面を透かして巣全体を眺めます。
課題と隠れた発見
11 の課題の答えは、庭、巣、図鑑にあります。回答ボタンのあるものも、指定場所へ行くものもあります。女王の部屋へ下り、蜜の貯蔵室へ入り、かけらから巣までにおいをたどり、日差しで乾く前に身長 5 mm で大きな露の隣に立つ、といった課題です。解くと星が付き、ブラウザーに保存されます。
庭と巣には 24 枚のカードが隠れています。アリの大きさで近づき、その場所を見ると開きます。そのうち 8 枚は思い込みを見直すカードです。「ハキリアリは葉を食べる」「アリは人間と同じ重さ」といった一般的な考えから始め、研究で分かったことを紹介します。どのカードにも出典へのリンクがあります。
よくある質問
地球には何匹のアリがいますか?
Schultheiss らが 489 件の研究に基づいて行った 2022 年の推定では、同時に約 2 京匹(2 × 10¹⁶)です。人間一人当たり約 250 万匹に相当します。
すべてのアリはすべての人間と同じ重さですか?
いいえ。それは古い大まかな推定です。2022 年の研究では、アリの乾燥炭素量は約 1200 万トンで、人類の約 5 分の 1 です。それでも野生の鳥類と野生の哺乳類の合計を上回ります。
アリはどのくらい持ち上げられますか?
何を測るかによります。2019 年の実験ではハキリアリの働きアリは平均で体重の 8.78 倍を運べました。有名な 5,000 倍は首の関節が切れるまで引っ張る実験の値で、持ち上げる力ではありません。
人間ほどのアリはとても力持ちですか?
いいえ。筋力は長さの二乗、体重は三乗で増えます。6 mm のアリを 1.7 m にすると長さは 283 倍になり、運べるのは体重の約 3 パーセントだけです。
アリは木から落ちても生き残れますか?
普通は生き残れます。小さく軽い動物は、低い速度で空気抵抗と重力が釣り合うので、着地が穏やかです。樹冠の Cephalotes 属はさらに、空中で方向を調節し、落ちた木の幹へ滑空して戻ります。
ハキリアリは葉を食べますか?
いいえ。葉をかんで菌の培地にし、菌の膨らんだ先端を食べます。アリは約 5000 万年前に菌類の栽培を始めました。
女王アリは何年生きますか?
記録は実験室で 28 年 9 か月生きたヨーロッパケアリの女王です。女王は働きアリの約 10 倍も長生きします。
アリはどうやって巣に戻りますか?
多くの種はにおいの道をたどります。イエヒメアリは分岐の形から巣の方向を読めます。裸の砂地で採餌する砂漠のアリは、太陽を使い、歩数を数えます。
最速のアリはどれですか?
サハラギンアリで、毎秒 855 mm、体長の約 108 倍が測定されています。最速のあごはドラキュラアリのもので、先端は毎秒 90 m に達します。
最も大きなアリはどれですか?
Dinoponera の働きアリは体長約 3 cm で、最大級です。サシハリアリは約 2.5 cm に達し、アフリカのサスライアリの女王はどの働きアリよりも大きくなります。
アリは仲間とよそ者をどう見分けますか?
においです。各コロニーは体表に独自のろう状の化学物質の混合物を持ちます。2005 年、Mamiko Ozaki らはクロオオアリの触角に、仲間の混合物には反応せず、よそ者のものに反応する感覚毛を発見しました。
なぜ死んだ仲間を巣の外へ運びますか?
死んだアリはにおいで見分けられます。死体ではオレイン酸などの脂肪酸が増え、生きた個体を示す化学物質は死後すぐに薄れます。死体を除くことで、コロニーから病気を遠ざけます。
アリは本当に水に浮けますか?
ヒアリは浮けます。洪水では働きアリがつかまり合っていかだを作り、体の間の空気が水を防ぎます。陸に着くまで女王や幼虫などが上に乗ります。
アリは恐竜より古い生き物ですか?
恐竜より古くはありませんが、同じ世界で暮らしていました。DNA と化石の研究では、最初のアリは恐竜時代の 1 億 4000 万年前から 1 億 6800 万年前に現れたとされています。
本物の巣は暗いのに、なぜここは明るいのですか?
地下の巣には光がなく、アリは触覚とにおいで進みます。展示のランプは、部屋を見えるようにするためです。
巣全体を一度に見られますか?
はい。「操作」の「巣の断面」で塚の上へ移動して地面を透かすと、土の下の部屋とトンネルが現れます。オフにすると再び歩けます。
用語
- 働きアリ:コロニーの仕事を担う雌で、ほとんどの種では卵を産みません。
- 女王:コロニーで卵を産む雌です。
- 腹部:細い腰の後ろにある丸い後部です。
- 腹柄節:胸部と腹部の間の細い腰の部分で、節が一つまたは二つあります。
- フェロモン:動物が放出し、同種のほかの個体の行動を変える化学信号です。
- 栄養交換:液体の餌を口移しで渡すことです。
- 蜜を貯蔵する働きアリ:膨らんだ腹部にコロニーの食料を蓄えるミツツボアリです。
- 生きた巣:グンタイアリが働きアリ自身の体で作る巣です。
- ゴンギリディア:ハキリアリが食べる、栽培菌の膨らんだ先端です。
- スーパーコロニー:広域にわたり、アリ同士が争わない巣の網です。
- 二乗三乗の法則:形を拡大すると、面積は長さの二乗、体積は三乗で増えるという関係です。
参考資料
- Schultheiss, P. et al., The abundance, biomass, and distribution of ants on Earth, PNAS 119: e2201550119 (2022). https://pmc.ncbi.nlm.nih.gov/articles/PMC9546634/ (checked 19 October 2026)
- Bar-On, Y. M., Phillips, R. and Milo, R., The biomass distribution on Earth, PNAS 115: 6506 (2018). https://pmc.ncbi.nlm.nih.gov/articles/PMC6016768/ (checked 19 October 2026)
- Keller, L. and Genoud, M., Extraordinary lifespans in ants: a test of evolutionary theories of ageing, Nature 389: 958 (1997). https://www.nature.com/articles/40130 (checked 19 October 2026)
- Jemielity, S., Chapuisat, M., Parker, J. D. and Keller, L., Long live the queen: studying aging in social insects, Age 27: 241 (2005). https://pmc.ncbi.nlm.nih.gov/articles/PMC3458492/ (checked 19 October 2026)
- Segre, P. S. and Taylor, E. D., Large ants do not carry their fair share: maximal load-carrying performance of leaf-cutter ants (Atta cephalotes), Journal of Experimental Biology 222: jeb199240 (2019). https://pubmed.ncbi.nlm.nih.gov/31138634/ (checked 19 October 2026)
- Nguyen, V., Lilly, B. and Castro, C., The exoskeletal structure and tensile loading behavior of an ant neck joint, Journal of Biomechanics 47: 497 (2014). https://pubmed.ncbi.nlm.nih.gov/24287400/ (checked 19 October 2026)
- The Ohio State University, With their amazing necks, ants don't need "high hopes" to do heavy lifting (2014). https://news.osu.edu/with-their-amazing-necks-ants-dont-need-high-hopes-to-do-heavy-lifting (checked 19 October 2026)
- Gelblum, A. et al., Ant groups optimally amplify the effect of transiently informed individuals, Nature Communications 6: 7729 (2015). https://pubmed.ncbi.nlm.nih.gov/26218613/ (checked 19 October 2026)
- Jackson, D. E., Holcombe, M. and Ratnieks, F. L. W., Trail geometry gives polarity to ant foraging networks, Nature 432: 907 (2004). https://pubmed.ncbi.nlm.nih.gov/15602563/ (checked 19 October 2026)
- Robinson, E. J. H. et al., Insect communication: "no entry" signal in ant foraging, Nature 438: 442 (2005). https://pubmed.ncbi.nlm.nih.gov/16306981/ (checked 19 October 2026)
- Wittlinger, M., Wehner, R. and Wolf, H., The ant odometer: stepping on stilts and stumps, Science 312: 1965 (2006). https://pubmed.ncbi.nlm.nih.gov/16809544/ (checked 19 October 2026)
- Pfeffer, S. E., Wahl, V. L., Wittlinger, M. and Wolf, H., High-speed locomotion in the Saharan silver ant, Cataglyphis bombycina, Journal of Experimental Biology 222: jeb198705 (2019). https://pubmed.ncbi.nlm.nih.gov/31619540/ (checked 19 October 2026)
- Shi, N. N. et al., Keeping cool: enhanced optical reflection and radiative heat dissipation in Saharan silver ants, Science 349: 298 (2015). https://pubmed.ncbi.nlm.nih.gov/26089358/ (checked 19 October 2026)
- Currie, C. R. et al., Fungus-growing ants use antibiotic-producing bacteria to control garden parasites, Nature 398: 701 (1999). https://www.nature.com/articles/19519 (checked 19 October 2026)
- Schultz, T. R. and Brady, S. G., Major evolutionary transitions in ant agriculture, PNAS 105: 5435 (2008). https://pubmed.ncbi.nlm.nih.gov/18362345/ (checked 19 October 2026)
- Branstetter, M. G. et al., Dry habitats were crucibles of domestication in the evolution of agriculture in ants, Proceedings of the Royal Society B 284: 20170095 (2017). https://pubmed.ncbi.nlm.nih.gov/28404776/ (checked 19 October 2026)
- Moreira, A. A. et al., Nest architecture of Atta laevigata, Studies on Neotropical Fauna and Environment 39: 109 (2004), reviewed in Foundation and architecture of leaf-cutting ant nests in the genus Atta, Brazilian Journal of Biology. http://www.scielo.br/j/bjb/a/dbr5BPNvp3gzpSrqJfv7zWq?lang=en (checked 19 October 2026)
- Forti, L. C. et al., Discovering the giant nest architecture of grass-cutting ants, Atta capiguara, Insects 8: 39 (2017). https://pmc.ncbi.nlm.nih.gov/articles/PMC5492053/ (checked 19 October 2026)
- Forti, L. C. et al., Nest architecture and colony growth of Atta bisphaerica grass-cutting ants, Insects 11: 741 (2020). https://pmc.ncbi.nlm.nih.gov/articles/PMC7693648/ (checked 19 October 2026)
- Dong, A. Z. et al., Unique antimicrobial activity in honey from the Australian honeypot ant (Camponotus inflatus), PeerJ 11: e15645 (2023). https://pmc.ncbi.nlm.nih.gov/articles/PMC10386826/ (checked 19 October 2026)
- Islam, M. K. et al., Australian honeypot ant (Camponotus inflatus) honey: a comprehensive analysis of the physiochemical characteristics, Molecules 27: 2154 (2022). https://pmc.ncbi.nlm.nih.gov/articles/PMC9000567/ (checked 19 October 2026)
- van Elst, T. et al., Comprehensive phylogeny of Myrmecocystus honey ants, Molecular Phylogenetics and Evolution 155: 107036 (2021). https://pubmed.ncbi.nlm.nih.gov/33278587/ (checked 19 October 2026)
- Choe, D.-H., Millar, J. G. and Rust, M. K., Chemical signals associated with life inhibit necrophoresis in Argentine ants, PNAS 106: 8251 (2009). https://pubmed.ncbi.nlm.nih.gov/19416815/ (checked 19 October 2026)
- University of Michigan Museum of Zoology, Animal Diversity Web, Eciton burchellii. https://animaldiversity.org/accounts/Eciton_burchellii/ (checked 19 October 2026)
- Reid, C. R. et al., Army ants dynamically adjust living bridges in response to a cost-benefit trade-off, PNAS 112: 15113 (2015). https://pmc.ncbi.nlm.nih.gov/articles/PMC4679032/ (checked 19 October 2026)
- Boswell, G. P., Franks, N. R. and Britton, N. F., Arms races and the evolution of big fierce societies, Proceedings of the Royal Society B 268: 1723 (2001). https://pmc.ncbi.nlm.nih.gov/articles/PMC1088800/ (checked 19 October 2026)
- Kronauer, D. J. C., Recent advances in army ant biology, Myrmecological News 12: 51 (2009). https://myrmecologicalnews.org/cms/index.php?option=com_download&view=download&filename=volume12/mn12_51-65_printable.pdf&format=raw (checked 19 October 2026)
- Johnson, S. R. et al., A reexamination of poneratoxin from the venom of the bullet ant Paraponera clavata, Peptides 98: 51 (2017). https://pubmed.ncbi.nlm.nih.gov/27266841/ (checked 19 October 2026)
- Patek, S. N. et al., Multifunctionality and mechanical origins: ballistic jaw propulsion in trap-jaw ants, PNAS 103: 12787 (2006). https://pubmed.ncbi.nlm.nih.gov/16924120/ (checked 19 October 2026)
- Larabee, F. J., Smith, A. A. and Suarez, A. V., Snap-jaw morphology is specialized for high-speed power amplification in the Dracula ant, Mystrium camillae, Royal Society Open Science 5: 181447 (2018). https://pubmed.ncbi.nlm.nih.gov/30662749/ (checked 19 October 2026)
- Medeiros, S. et al., Central-marginal dynamics in Dinoponera quadriceps, Naturwissenschaften (2026). https://pmc.ncbi.nlm.nih.gov/articles/PMC13246570/ (checked 19 October 2026)
- Frank, E. T. et al., Saving the injured: rescue behavior in the termite-hunting ant Megaponera analis, Science Advances 3: e1602187 (2017). https://pubmed.ncbi.nlm.nih.gov/28439543/ (checked 19 October 2026)
- Franks, N. R. and Richardson, T., Teaching in tandem-running ants, Nature 439: 153 (2006). https://pubmed.ncbi.nlm.nih.gov/16407943/ (checked 19 October 2026)
- Ye, D. et al., Effects of abdominal rotation on jump performance in the ant Gigantiops destructor, Integrative Organismal Biology 2: obz033 (2020). https://pmc.ncbi.nlm.nih.gov/articles/PMC7671114/ (checked 19 October 2026)
- Penmetcha, B. et al., Ocellar spatial vision in Myrmecia ants, Journal of Experimental Biology 224: jeb242948 (2021). https://pmc.ncbi.nlm.nih.gov/articles/PMC8546673/ (checked 19 October 2026)
- Wilson, E. O. and Hölldobler, B., Sex differences in cooperative silk-spinning by weaver ant larvae, PNAS 77: 2343 (1980). https://pmc.ncbi.nlm.nih.gov/articles/PMC348711/ (checked 19 October 2026)
- Endlein, T. and Federle, W., On heels and toes: how ants climb with adhesive pads and tarsal friction hair arrays, PLoS ONE 10: e0141269 (2015). https://pubmed.ncbi.nlm.nih.gov/26559941/ (checked 19 October 2026)
- Yanoviak, S. P., Dudley, R. and Kaspari, M., Directed aerial descent in canopy ants, Nature 433: 624 (2005). https://pubmed.ncbi.nlm.nih.gov/15703745/ (checked 19 October 2026)
- Laciny, A. et al., Colobopsis explodens sp. n., model species for studies on "exploding ants", ZooKeys 751: 1 (2018). https://pubmed.ncbi.nlm.nih.gov/29706783/ (checked 19 October 2026)
- Moreau, C. S. et al., Phylogeny of the ants: diversification in the age of angiosperms, Science 312: 101 (2006). https://pubmed.ncbi.nlm.nih.gov/16601190/ (checked 19 October 2026)
- LeBoeuf, A. C. et al., Oral transfer of chemical cues, growth proteins and hormones in social insects, eLife 5: e20375 (2016). https://pubmed.ncbi.nlm.nih.gov/27894417/ (checked 19 October 2026)
- Barbero, F. et al., Queen ants make distinctive sounds that are mimicked by a butterfly social parasite, Science 323: 782 (2009). https://pubmed.ncbi.nlm.nih.gov/19197065/ (checked 19 October 2026)
- Hughes, D. P. et al., Behavioral mechanisms and morphological symptoms of zombie ants dying from fungal infection, BMC Ecology 11: 13 (2011). https://pmc.ncbi.nlm.nih.gov/articles/PMC3118224/ (checked 19 October 2026)
- Giraud, T., Pedersen, J. S. and Keller, L., Evolution of supercolonies: the Argentine ants of southern Europe, PNAS 99: 6075 (2002). https://pubmed.ncbi.nlm.nih.gov/11959924/ (checked 19 October 2026)
- Mlot, N. J., Tovey, C. A. and Hu, D. L., Fire ants self-assemble into waterproof rafts to survive floods, PNAS 108: 7669 (2011). https://pubmed.ncbi.nlm.nih.gov/21518911/ (checked 19 October 2026)
- Ozaki, M. et al., Ant nestmate and non-nestmate discrimination by a chemosensory sensillum, Science 309: 311 (2005). https://pubmed.ncbi.nlm.nih.gov/15947139/ (checked 19 October 2026)
- Jossart, M. et al., Infected connections: unraveling the impact of a bacterial symbiont on ant-aphid partnership, PLoS ONE (2025). https://pmc.ncbi.nlm.nih.gov/articles/PMC12184899/ (checked 19 October 2026)
- Kadochová, Š. and Frouz, J., Thermoregulation strategies in ants in comparison to other social insects, with a focus on red wood ants, F1000Research 2: 280 (2013). https://pmc.ncbi.nlm.nih.gov/articles/PMC3962001/ (checked 19 October 2026)
- Kronauer, D. J. C., The biology of the clonal raider ant (Ooceraea biroi) and its role as a social insect model system, Annual Review of Entomology (2026). https://pubmed.ncbi.nlm.nih.gov/42868045/ (checked 19 October 2026)
- University of Michigan Museum of Zoology, Animal Diversity Web, species accounts for Solenopsis invicta, Linepithema humile, Monomorium pharaonis, Cataglyphis bombycina, Megaponera analis, Colobopsis explodens and Temnothorax albipennis. https://animaldiversity.org/accounts/Solenopsis_invicta/ (checked 19 October 2026)
- U.S. Geological Survey, Open-File Report 2006-1195, Nomenclature (Wentworth grain-size scale). https://pubs.usgs.gov/of/2006/1195/htmldocs/nomenclature.htm (checked 19 October 2026)
- Gunn, R. and Kinzer, G. D., The terminal velocity of fall for water droplets in stagnant air, Journal of Meteorology 6: 243 (1949). https://doi.org/10.1175/1520-0469(1949)006%3C0243:TTVOFF%3E2.0.CO;2 (checked 19 October 2026)
ほかの展示
実物大の恐竜のあいだを歩く
幅 600 m の園内に、最初の恐竜からティラノサウルスまで、172 種の古生物が実物大で時代順に並んでいます。
細胞の中を歩く:動物細胞・植物細胞・細菌
百万倍に拡大すると、ミトコンドリアはソファほどの大きさになり、大腸菌は丸ごと 2 m、すぐ横で小胞を引いていくキネシンは秒速 0.8 メートルで歩きます。
マンモスの大きさをゾウや氷河期の動物と比較
ケナガマンモスから剣歯ネコまで、最終氷期の 65 種を実物大で並べた幅 600 m の園内を歩けます。50,000 年を動かす時間スライダーもあります。
CRISPR-Cas9ゲノム編集を動かして見るシミュレーター
ガイド RNA が読むのは DNA のわずか 20 文字。それだけで、ヒトゲノムの 30 億塩基対の中からたいてい 1 か所を選び出せます。
惑星や衛星で変わる体重とジャンプのしくみ
地球で 50 cm のジャンプが、月では 3 m、ケレスでは 18 m に達し、小惑星ベンヌでは戻ってこられなくなります。
食塩が立方体になるしくみと結晶の単位格子
食塩の粒は、辺が 0.564 nm の立方体の積み重ねです。各辺にはナトリウムと塩素が交互に並びます。