FIG. 86Les sens
Écholocation des chauves-souris : voir par le son
L’écho d’un papillon de nuit situé à 1 m revient à la chauve-souris en moins de 6 millièmes de seconde, et ce délai lui donne la distance.
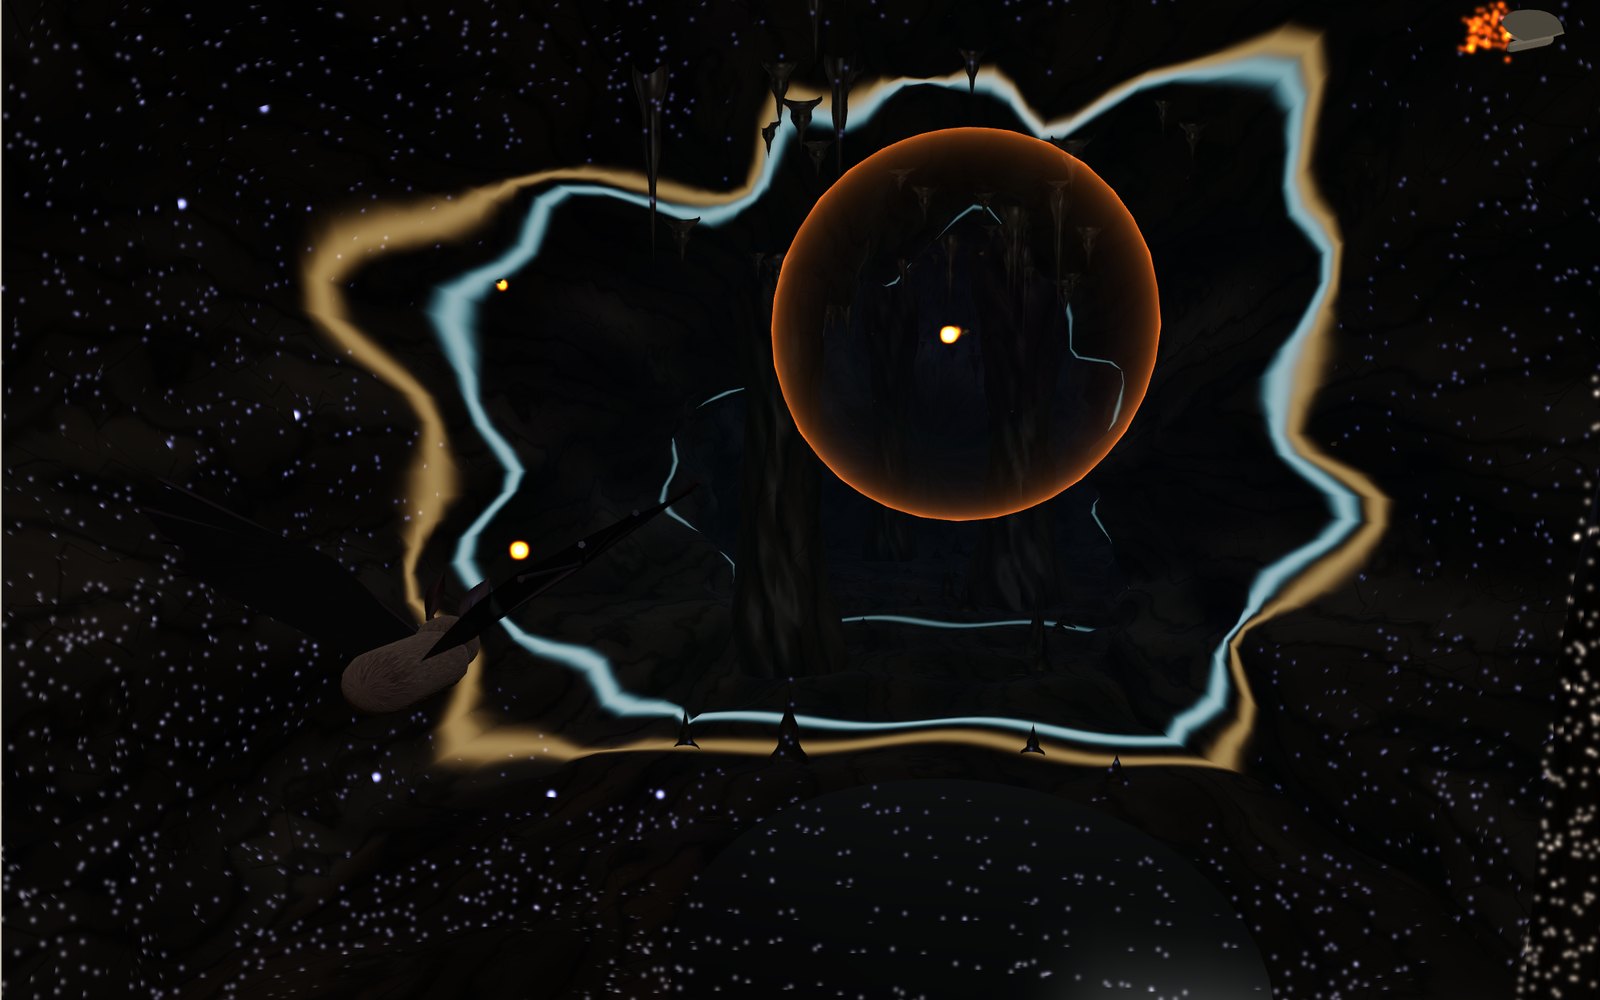
Cet appareil ne peut pas afficher le modèle 3D. Les étapes de la visite ci-dessous se lisent sous forme de texte.
1 / 10 Une grotte sans lumièreIl n’y a aucune lumière dans cette grotte. La chauve-souris a émis un cri ; la coque lumineuse est le son qui se propage à 343 m/s. Appuyez sur Clic pour crier de nouveau, ou suivez ces étapes.
Faites glisser pour tourner. Molette ou pincement pour zoomer.
Un claquement de mains dans un couloir sombre
Placez-vous dans un long couloir vide, les yeux fermés, et frappez une fois dans vos mains. Vous entendez le claquement, puis une faible copie de celui-ci un instant plus tard, et vous avez une idée approximative de la distance du mur du fond. Une chauve-souris fait la même chose des centaines de fois par minute, avec des sons trop aigus pour nous, et elle le fait assez bien pour attraper un papillon de nuit en plein vol dans l’obscurité totale.
Cela s’appelle l’écholocation : émettre un son, écouter ce qui revient, et déduire de l’écho où se trouvent les choses et à quoi elles ressemblent. Cette exposition vous place dans une grotte calcaire sans aucune lumière. Une sérotine brune émet un cri, et vous pouvez regarder chaque cri se propager dans la grotte, rebondir sur les parois, les colonnes, les gouttes et les insectes, puis revenir. Quand un écho arrive à destination, il devient un point lumineux. Au bout de quelques secondes, ces points forment une image de la grotte, et cette image est la seule que la chauve-souris possède.
Comment utiliser la scène
Appuyez sur Clic pour que la chauve-souris émette un cri. La coque lumineuse est le front du son, dessiné plus clair là où la chauve-souris vise. Quand la coque atteint un objet solide, une coque ambrée peut repartir de celui-ci, et quand l’écho arrive à la chauve-souris, un point apparaît dans la carte d’échos. Les points aux couleurs chaudes sont proches, les points bleus sont lointains, et les points orange sont des papillons de nuit. Les points s’effacent au bout du temps réglé par le curseur Mémoire des échos.
Les boutons sous la scène règlent le ralenti. Le son dans l’air parcourt 343 mètres en une seconde, si bien qu’un cri entier et tous ses échos seraient terminés avant que vous ayez le temps de voir quoi que ce soit. À une vitesse 100 fois plus lente, le cri avance à environ 3,4 mètres par seconde. Chasser le papillon de nuit lance la chauve-souris sur le papillon de nuit le plus proche à la vitesse de vol réelle (affichée 10 fois plus lente), et la cadence des cris augmente d’elle-même à mesure qu’elle se rapproche.
Dans le volet Réglages, vous pouvez changer l’espèce de chauve-souris, fixer à la main la phase de chasse, arrêter les cris automatiques, activer le son, afficher le décalage Doppler de l’écho du papillon de nuit, laisser le papillon de nuit brouiller le sonar, allumer une lampe et afficher le faisceau sonar. Sous les réglages, un calculateur d’échos fait l’arithmétique de cette page pour n’importe quelle distance, température et fréquence. Sous la scène se trouve une liste de 34 animaux et machines qui repèrent les choses grâce à l’écho.
La distance à partir d’un délai
La règle au cœur de l’écholocation est courte. Le son se propage à une vitesse connue. Si un écho arrive un temps t après le départ du cri, le son a fait l’aller-retour jusqu’à la cible, et la cible se trouve donc à
distance = vitesse du son × t ÷ 2
Dans l’air sec, la vitesse du son dépend de la température. Elle est égale à la racine carrée de 1,4 × 287,05 × T, où T est la température en kelvins. À 20 °C, cela donne 343,2 m/s. À 0 °C, elle vaut 331,3 m/s, et par une nuit d’été à 30 °C, 349,0 m/s. Une chauve-souris dans une grotte froide et une chauve-souris au-dessus d’une prairie tiède vivent avec des règles légèrement différentes, séparées d’environ 5 %.
Avec 343,2 m/s, les délais des échos sont les suivants :
| Distance | Délai de l’écho |
|---|---|
| 10 cm | 0,58 ms |
| 1 m | 5,83 ms |
| 3 m | 17,48 ms |
| 5 m | 29,14 ms |
| 10 m | 58,27 ms |
| 20 m | 116,54 ms |
Ainsi, la colonne située à 10 mètres devant la chauve-souris répond au bout d’environ 58 millièmes de seconde, et le papillon de nuit situé à 3 mètres au bout d’environ 17. Une différence d’une microseconde dans le délai ne correspond qu’à 0,17 mm de différence de distance. Les chauves-souris ne peuvent pas exploiter une précision temporelle aussi fine, mais les expériences de James Simmons dans les années 1970 ont montré que des sérotines brunes entraînées savaient dire laquelle de deux cibles était la plus proche à partir du seul délai de l’écho.
Sur la scène, le temps est réel : chaque point est dessiné au moment où son écho arriverait, mis à l’échelle du ralenti. Regardez un cri atteindre le fond du tunnel et vous verrez les points les plus lointains s’allumer en dernier.
Pourquoi les cris sont si aigus
La plupart des cris de chauves-souris sont des ultrasons, au-dessus de la limite d’environ 20 kHz de l’audition humaine. La sérotine brune de la scène balaie en quelques millisecondes des fréquences descendant d’environ 50 kHz à 25 kHz. La pipistrelle commune est la plus sonore près de 45 kHz et le grand rhinolophe maintient un son proche de 82 kHz.
La raison tient à la taille de l’onde. La longueur d’onde est la vitesse du son divisée par la fréquence. À 10 kHz, elle est de 34 mm, à 35 kHz d’environ 10 mm, à 82 kHz d’environ 4 mm. Une cible beaucoup plus petite que la longueur d’onde perturbe à peine l’onde et renvoie très peu de son ; l’écho d’une petite sphère diminue à peu près comme la puissance quatre du rapport entre la taille et la longueur d’onde. Un moustique mesure quelques millimètres. Pour en obtenir un écho fort, une chauve-souris a besoin d’une longueur d’onde de quelques millimètres elle aussi.
Les hautes fréquences ont un coût. L’air absorbe le son, et il absorbe beaucoup plus les hautes fréquences. D’après la formule standard d’absorption dans l’air (ISO 9613-1), à 20 °C et 50 % d’humidité, la perte est d’environ 0,16 dB par mètre à 10 kHz, 0,52 dB à 20 kHz, 1,13 dB à 35 kHz, 2,67 dB à 82 kHz et 3,28 dB à 100 kHz. L’écho paie ce prix deux fois, à l’aller et au retour. À 100 kHz, une cible située à 5 mètres perd 33 dB rien qu’à cause de l’air.
Faites passer le curseur Chauve-souris de la sérotine brune au grand rhinolophe et regardez la carte d’échos : le son aigu dessine une carte plus nette mais plus courte. Passez à la chauve-souris tachetée, qui crie entre 9 et 12 kHz : la carte s’enfonce loin dans le tunnel, mais chaque point est plus flou.
Quelle intensité, et jusqu’où
Les chauves-souris sont bruyantes. Des enregistrements de terrain réalisés au Panama par Annemarie Surlykke et Elisabeth Kalko ont mesuré des niveaux d’émission de 122 à 134 dB SPL, à 10 cm devant la chauve-souris, pour des espèces chassant en espace dégagé. Deux espèces qui chassent au-dessus de l’eau atteignaient en moyenne environ 137 dB et dépassaient 140 dB. Nous n’en entendons rien uniquement parce que ces sons sont trop aigus.
Il le faut. Un son qui se propage dans toutes les directions perd 6 dB chaque fois que la distance double. L’écho se disperse de nouveau au retour, si bien que l’aller-retour perd 12 dB à chaque doublement de la distance. Un papillon de nuit ne réfléchit qu’une infime partie de ce qui le frappe. Le modèle de la scène utilise l’équation du sonar :
niveau de l’écho = niveau d’émission − 40 log₁₀(r ÷ 0,1 m) − 2 × absorption × r + indice de cible
Avec un cri de 120 dB à 10 cm, un indice de cible de −30 dB pour un papillon de nuit et un seuil d’audition de 20 dB, la chauve-souris du modèle entend un papillon de nuit jusqu’à environ 3,5 m à 35 kHz, 3,1 m à 50 kHz et 2,6 m à 82 kHz. Une paroi rocheuse renvoie bien plus, de sorte qu’on peut l’entendre jusqu’à environ 8 m à 35 kHz. Ce sont des valeurs de modèle, mais elles concordent avec ce qu’on observe sur le terrain : les proies sont repérées à quelques mètres, les parois et les arbres à plusieurs fois cette distance. Surlykke et Kalko ont aussi remarqué que les chauves-souris les plus bruyantes utilisaient les fréquences les plus hautes, ce qui semble ramener leurs distances de détection au niveau de celles des autres.
La ligne Portée (papillon de nuit) de l’affichage de la scène donne cette distance du modèle pour la chauve-souris que vous avez choisie. Le papillon de nuit ne devient orange dans la carte d’échos que lorsqu’il se trouve à l’intérieur de cette portée.
Recherche, approche et buzz terminal
Vers 1960, Donald Griffin et ses collègues ont enregistré des chauves-souris chassant des insectes et ont constaté que leurs cris changent de façon régulière. Pendant la recherche, une sérotine brune crie environ 10 fois par seconde, chaque cri durant plusieurs millisecondes. De nombreuses chauves-souris crient une fois par battement d’aile durant cette phase, si bien que le battement, la respiration et le cri partagent un même rythme. Quand elle détecte un insecte, elle entre dans la phase d’approche : les cris deviennent plus courts et plus rapprochés. Dans les dernières centaines de millisecondes survient le buzz terminal, où la cadence dépasse 160 cris par seconde et où les cris se réduisent à bien moins d’une milliseconde.
Une partie de l’explication est une simple question de temps. Une chauve-souris attend en général l’écho qui l’intéresse avant de crier de nouveau, pour que cet écho et le cri ne se chevauchent pas. À 5 mètres, l’écho met 29 ms, ce qui autorise au plus environ 34 cris par seconde. À 1 mètre, il met 5,8 ms, ce qui en autorise 172. À 50 cm, 343. Plus la proie est proche, plus vite la chauve-souris a le droit de crier, et plus souvent elle apprend où le papillon de nuit s’est déplacé.
Ce n’est pas toute l’histoire. En 2011, Coen Elemans et ses collègues ont découvert que les chauves-souris possèdent dans le larynx des muscles ultrarapides, parmi les plus rapides connus chez les mammifères, et que la cadence maximale des cris est fixée par la vitesse à laquelle ces muscles peuvent travailler, et pas seulement par le chevauchement des échos. Placez le curseur Phase de chasse sur Buzz terminal et les coques jaillissent de la chauve-souris si vite qu’elles s’emboîtent les unes dans les autres.
De quelle direction : deux oreilles
La distance vient du temps. La direction vient de la comparaison entre les deux oreilles. Un écho venu de la droite atteint l’oreille droite un peu avant la gauche, et il y est aussi un peu plus fort, parce que la tête fait de l’ombre à l’oreille éloignée. Dans le modèle, les oreilles sont distantes d’environ 1,6 cm, si bien que la plus grande différence de temps, pour un écho venant directement du côté, est d’environ 47 microsecondes. Un écho décalé de 10 degrés par rapport au centre donne environ 8 microsecondes. L’affichage indique cette différence pour le papillon de nuit.
Le haut et le bas sont plus difficiles, parce que les deux oreilles sont à la même hauteur. Ici, la forme de l’oreille externe aide. Le petit lobe devant l’ouverture de l’oreille, le tragus, ajoute son propre écho à l’intérieur de l’oreille, et le moment où arrive ce minuscule écho supplémentaire dépend de la provenance du son, d’en haut ou d’en bas. Les chauves-souris bougent aussi la tête et les oreilles entre deux cris, et à chaque cri elles entendent la scène sous un angle légèrement différent. La chauve-souris de la scène tourne un peu la tête entre deux cris, et c’est ainsi que sa carte se remplit.
Doppler : le papillon de nuit se rapproche-t-il ?
Quand la chauve-souris vole vers une paroi, chaque crête d’onde de son cri est émise d’un peu plus près que la précédente, de sorte que la paroi reçoit une fréquence légèrement plus élevée. La paroi renvoie ensuite ce son vers une chauve-souris qui s’approche toujours, et la fréquence augmente de nouveau. Pour une chauve-souris volant à la vitesse v vers une cible immobile, l’écho revient à
f × (c + v) ÷ (c − v)
À 4 m/s, un cri de 82 kHz revient à environ 83,9 kHz, presque 2 kHz plus haut. Si la cible bouge aussi, sa propre vitesse s’ajoute de la même façon. Activez Décalage Doppler et l’affichage donne la fréquence de l’écho du papillon de nuit et l’écart qui la sépare de celle du cri.
Les rhinolophes tirent le meilleur parti de ce phénomène. Leur cri est un long son presque constant, et leur audition possède une bande étroite d’accord très fin près de la fréquence de leur écho, parfois appelée fovéa acoustique. En volant vers l’avant, un rhinolophe abaisse son cri juste assez pour que l’écho décalé par effet Doppler tombe dans cette bande. À 4 m/s, il crie à environ 80,1 kHz pour que l’écho revienne près de 82 kHz. Sur ce son stable, les battements d’ailes d’un insecte font vaciller l’écho en hauteur et en intensité, et la chauve-souris peut repérer un papillon de nuit qui bat des ailes parmi des feuilles immobiles. Choisissez le grand rhinolophe avec le curseur Chauve-souris pour voir les chiffres.
Ce que les échos disent des surfaces
La roche rugueuse diffuse le son dans toutes les directions. Partout où le faisceau tombe, une partie revient directement, c’est pourquoi les parois de la grotte se couvrent de points. Une surface lisse se comporte au contraire comme un miroir. Le cri rebondit avec le même angle que celui d’arrivée et s’éloigne, et seule la partie de l’eau située directement sous la chauve-souris renvoie un écho.
C’est pourquoi le bassin de la scène reste sombre dans la carte d’échos. Stefan Greif et Björn Siemers ont montré en 2010 que les chauves-souris traitent toute grande surface acoustiquement lisse comme de l’eau. Des chauves-souris sauvages de 15 espèces ont essayé de boire sur des plaques lisses de métal, de bois et de plastique, même lorsque les plaques étaient bien visibles. De jeunes chauves-souris qui n’avaient jamais vu d’eau ont fait de même, ce qui suggère que la règle est innée. Sur la scène, le bassin apparaît comme un trou dans la carte avec un seul point brillant sous la chauve-souris.
Les papillons de nuit se défendent
Les papillons de nuit sont chassés par les chauves-souris depuis des dizaines de millions d’années, et beaucoup ont trouvé des parades. Une grande partie des papillons de nuit ont des oreilles qui entendent les cris de chauves-souris. Quand un cri devient fort, ils plongent, font des boucles ou se laissent tomber au sol. Certaines chauves-souris, à leur tour, crient à des fréquences que ces oreilles entendent mal, ou crient très doucement. L’oreillard roux est connu en Grande-Bretagne sous le nom de chauve-souris murmurante.
Certains arctiidés répondent. En 2009, Aaron Corcoran, Jesse Barber et William Conner ont filmé des sérotines brunes attaquant dans le noir l’arctiidé Bertholdia trigona. Quand la chauve-souris entrait dans son buzz terminal, le papillon de nuit produisait des salves denses de clics ultrasonores, et les chauves-souris manquaient leur cible. Les clics semblent perturber l’estimation que fait la chauve-souris de la distance du papillon de nuit. Activez Papillon de nuit brouilleur et lancez une chasse : l’écho du papillon de nuit se disperse en points rouges à de fausses distances, et dans ce modèle la chauve-souris dépasse le plus souvent sa cible.
Les papillons lune utilisent une autre astuce. Les longues queues de leurs ailes postérieures tournoient pendant le vol et renvoient leurs propres échos. Dans les expériences de Barber et de ses collègues, les chauves-souris visaient les queues dans plus de la moitié de leurs attaques, et les papillons de nuit munis de queues survivaient environ 47 % plus souvent que ceux qui en étaient dépourvus. Les chauves-souris se brouillent aussi entre elles : les molosses mexicains qui poursuivent le même insecte émettent un cri particulier qui fait manquer sa cible au rival.
D’autres animaux qui font de l’écholocation
Les chauves-souris sont les plus connues, mais pas les seules. Les cétacés à dents, dauphins et marsouins compris, pratiquent l’écholocation sous l’eau, où le son se propage environ 4,4 fois plus vite que dans l’air. Leurs clics sont brefs et très puissants. Les clics émis dans l’axe par des cachalots, enregistrés par Bertel Møhl et ses collègues, atteignaient 236 dB re 1 µPa, les sons les plus forts connus chez un animal. Peter Madsen et Annemarie Surlykke ont montré à quel point les sonars des chauves-souris et des cétacés à dents ont convergé, alors que les deux groupes les ont développés séparément.
Deux sortes d’oiseaux pratiquent aussi l’écholocation. Le guacharo des cavernes d’Amérique du Sud se nourrit de fruits la nuit et niche au fond des grottes, et les salanganes des grottes de l’Indo-Pacifique nichent elles aussi dans des grottes obscures. Tous deux utilisent des clics assez graves pour que les humains les entendent, qui portent bien mais montrent moins de détails. Les musaraignes gazouillent davantage quand elles explorent des endroits encombrés, et les enregistrements suggèrent que leurs cris donnent des échos utiles à courte portée. Même certaines roussettes que l’on a longtemps crues incapables d’écholocation s’orientent dans le noir grâce à des clics produits par leurs ailes.
Les humains qui pratiquent l’écholocation
Certaines personnes aveugles pratiquent l’écholocation avec des claquements de bouche. En 2011, Lore Thaler, Stephen Arnott et Melvyn Goodale ont scanné le cerveau de deux experts aveugles pendant qu’ils écoutaient des enregistrements de leurs propres clics et échos. Les échos activaient la région du cerveau qui traite normalement la vision, et non des aires auditives supplémentaires. Une étude d’entraînement menée en 2021 à l’université de Durham a appris à des adultes aveugles et voyants âgés de 21 à 79 ans à pratiquer l’écholocation par claquements en 20 séances réparties sur dix semaines. Les deux groupes ont beaucoup progressé, et ni l’âge ni la cécité n’ont limité la vitesse d’apprentissage.
Les claquements humains se situent à quelques kilohertz, de sorte que leurs longueurs d’onde sont d’environ 10 cm. Cela suffit pour percevoir un mur, une porte ou une voiture garée, mais pas un papillon de nuit.
Des machines qui font la même chose
Les navires utilisent le sonar, qui obéit à la même règle que la chauve-souris avec la vitesse du son dans l’eau, environ 1500 m/s. Un écho venu d’un fond marin situé 10 m plus bas revient au bout d’environ 13 ms. L’échographie médicale envoie dans le corps des sons de l’ordre du mégahertz, dont les longueurs d’onde de l’ordre du millimètre peuvent montrer le contour des organes et du cœur. Les capteurs de stationnement d’un pare-chocs de voiture utilisent les ultrasons pour mesurer le temps des échos et repérer des obstacles d’environ 15 cm à 5 m.
Une brève histoire
Dans les années 1790, Lazzaro Spallanzani constata que des chauves-souris aveuglées volaient toujours sans heurter d’obstacles, et Louis Jurine montra que celles dont les oreilles étaient bouchées ne le pouvaient pas. Personne ne parvenait à expliquer comment, puisque les chauves-souris semblaient silencieuses. La réponse devait attendre un microphone capable d’entendre les ultrasons. En 1938, Donald Griffin, alors étudiant à Harvard, apporta des chauves-souris au physicien George Pierce, qui avait construit un détecteur d’ultrasons. Avec Robert Galambos, Griffin montra ensuite que les chauves-souris émettent des impulsions ultrasonores et se servent de leurs échos pour éviter les obstacles, et en 1944 il donna à cette capacité le nom d’écholocation.
Ce que le modèle simplifie
La chauve-souris de la scène reste en place entre deux chasses, afin que vous puissiez regarder autour d’elle. Une vraie chauve-souris en vol de recherche ne s’arrête jamais. La grotte est faite d’une forme mathématique lisse, et les échos sont trouvés en suivant quelques centaines de rayons à travers cette même forme. Le son réel est une onde, et non un faisceau de rayons : il contourne les arêtes, et les échos se chevauchent et interfèrent. La force de l’écho provient d’une simple équation du sonar avec un indice de cible fixe pour la roche, et le seuil d’audition est un nombre unique.
Les papillons de nuit sont traités comme des points. L’écho réel d’un papillon de nuit change à chaque battement d’aile, ce qui contribue à la façon dont les chauves-souris reconnaissent les insectes. Le modèle de brouillage n’est qu’une image du résultat rapporté pour Bertholdia trigona : l’écho du papillon de nuit apparaît à la mauvaise distance. Le son que vous entendez est le cri ralenti du même facteur que l’image, si bien qu’un cri de 40 kHz 100 fois plus lent ressort à 400 Hz. Les détecteurs de chauves-souris vendus pour le travail de terrain emploient la même méthode, appelée expansion de temps.
Lire un écho d’une milliseconde
Supposons que l’air soit immobile et que la vitesse du son soit arrondie à 343 m/s. Un délai d’écho de 1 ms signifie un trajet sonore total de 343 × 0,001 = 0,343 m. La moitié correspond au trajet aller, de sorte que le réflecteur se trouve à 0,1715 m, soit environ 17 cm. Oublier le trajet de retour le placerait deux fois plus loin. Cet exemple suppose que l’écho revient directement de la cible en ligne droite. Une réflexion qui rebondit sur une autre paroi avant de revenir a un trajet plus long et ne peut pas s’interpréter comme la même distance en ligne droite.
La fréquence n’intervient pas dans cette équation de la distance. À la même température de l’air, un cri de 40 kHz et un cri de 82 kHz ont essentiellement le même temps de trajet jusqu’à la même cible. Leurs longueurs d’onde diffèrent. Avec la vitesse du son arrondie, 343 ÷ 40 000 = 0,008575 m, soit environ 8,6 mm. Ce nombre décrit l’espacement de crêtes d’onde successives, et non la longueur minimale d’insecte que la chauve-souris peut détecter. Un insecte plus petit peut quand même renvoyer un écho ; la possibilité pour la chauve-souris de l’entendre dépend de son orientation et de ses surfaces réfléchissantes, de la distance et du bruit de fond. Les ailes d’un insecte bougent aussi pendant une attaque. Une cible sphérique fixe est un calcul utile, pas une règle d’identification d’un insecte.
Dans le Calculateur d’échos, réglez Température de l’air sur 20 °C, Fréquence du cri sur 40 kHz et Distance à la cible sur 1 m. La vitesse affichée utilise la formule de la température plutôt que les 343 m/s arrondis supposés plus haut ; attendez-vous donc à environ 5,83 ms et 8,6 mm. Doubler la distance double le délai sans changer la longueur d’onde. Augmenter la fréquence modifie la longueur d’onde et l’absorption sans doubler le délai. Ce sont des effets distincts qu’une image unique d’un écho brillant peut sinon masquer.
Pourquoi le dernier buzz n’est pas un cri de recherche plus rapide
L’article de synthèse de Ratcliffe et ses collègues, How the bat got its buzz, traite de bien plus que du nombre de sons émis pendant une attaque. Certaines chauves-souris abaissent la fréquence fondamentale dans une seconde partie du buzz. Avec la même ouverture de la bouche, une fréquence plus basse élargit le faisceau émis. À courte portée, un insecte n’a besoin de se déplacer que d’une courte distance sur le côté pour sortir d’un faisceau étroit ; un champ de vision acoustique plus large peut donc aider la chauve-souris à continuer de suivre une proie qui esquive. C’est un compromis avec l’avantage habituel des longueurs d’onde plus courtes pour les petites cibles, et non une contradiction de celui-ci.
Prenons une cadence de 200 cris par seconde : 1 ÷ 200 = 0,005 s, soit 5 ms entre les débuts de deux cris. Le son peut faire l’aller-retour depuis environ 0,86 m dans cet intervalle à 343 m/s. C’est un calcul de temps idéal, et non une portée de chasse garantie. La durée du cri occupe une partie de l’intervalle, les échos de l’environnement continuent d’arriver, et le larynx doit se relâcher et se contracter de nouveau. L’article rapporte des cadences allant jusqu’à environ 220 cris par seconde chez certaines espèces ; 200 n’est pas un plafond universel.
La scène utilise plutôt une cadence nominale de Buzz terminal de 170 cris par seconde, avec d’autres limites fondées sur le délai de la cible. La cadence affichée peut donc être plus basse quand le papillon de nuit est loin. Elle dessine aussi un faisceau plus étroit pendant cette phase, alors que l’étude décrit un élargissement du faisceau dans le buzz de certaines espèces réelles. Servez-vous des coques pour comparer les intervalles entre cris, et non pour en déduire que toute chauve-souris rétrécit son faisceau sonar avant la capture. La grotte animée ne reproduit pas l’ensemble des changements de forme du cri propres à chaque espèce.
Essayer une comparaison contrôlée à l’écran
Commencez sans chasse. Utilisez Effacer la carte d’échos, puis Clic, et suivez les premières coques qui reviennent avant que les points plus anciens ne s’accumulent. Allumez la lampe pour comparer la forme réelle de la grotte avec la carte d’échos incomplète. Un point manquant ne signifie pas forcément de la roche manquante : le faisceau peut ne pas l’avoir échantillonnée, ou le retour peut être trop faible. C’est différent du fait de retirer un objet solide de la scène.
Pour une deuxième comparaison, gardez l’espèce inchangée et servez-vous du Calculateur d’échos pour ne faire varier que la Distance à la cible. Lisez ensemble Délai de l’écho et Cadence maximale sans chevauchement. Une distance plus grande donne un délai plus long et une cadence de répétition idéale plus basse. Le calculateur est indépendant de la position réelle du papillon de nuit ; faire glisser sa distance ne déplace pas le papillon de nuit. Cette distinction compte quand on compare ses nombres avec l’affichage de la scène.
Sélectionnez enfin Grand rhinolophe, puis revenez à Sérotine brune. Le premier préréglage représente un long cri à fréquence constante, le second un court balayage FM descendant. L’accord auditif étroit du vrai rhinolophe l’aide à détecter les changements liés au battement d’ailes sur fond de feuillage ; un cri FM à large bande fournit une information temporelle utile sur les réflecteurs proches. Ces cris privilégient des informations différentes, sans correspondre à des sens qui s’excluent. Les vrais cris de rhinolophes comportent aussi des parties modulées en fréquence. L’étiquette de son constant du modèle omet volontairement ces détails.
Quatorze chauves-souris coréennes et leurs cris
Le catalogue sous la scène commence par 14 espèces enregistrées en Corée entre 2011 et 2012 par Dai Fukui, David Hill, Sun-Sook Kim et Sang-Hoon Han. Ils ont analysé 1129 impulsions issues de 93 séquences de cris et publié la moyenne de chaque enregistrement : la fréquence la plus haute et la plus basse, la fréquence portant le plus d’énergie, la durée du cri et le temps entre les cris. Le catalogue présente la moyenne de ces moyennes d’enregistrement pour chaque espèce, ainsi que la plage de la fréquence la plus forte selon les enregistrements, ce qui permet de voir à quel point une même espèce varie.
Les impulsions se répartissent en trois formes. Le grand rhinolophe émet un long son constant avec un court balayage à chaque extrémité. Neuf espèces des genres Myotis, Murina et Plecotus émettent des balayages descendants abrupts qui ne durent que 1 à 6 ms. Quatre espèces (la sérotine commune, la pipistrelle d’Alashan, le minioptère oriental et la pipistrelle japonaise) commencent par un balayage abrupt qui s’aplatit en une queue presque constante. Avec cinq mesures, les auteurs ont pu attribuer 76,4 % des cris à la bonne espèce. Les cris à son constant et ceux à balayage suivi d’un plateau se distinguaient facilement ; les balayages abrupts des Myotis se recouvraient beaucoup.
Deux détails ressortent. Le murin de l’Extrême-Orient a balayé la bande la plus large, 113 kHz dans un enregistrement, d’environ 135 kHz à 22 kHz. Et le grand rhinolophe, la même espèce qui crie près de 82 kHz en Grande-Bretagne, criait entre 66 et 72 kHz en Corée, les chauves-souris de Jeju étant plus aiguës que celles du continent. Une espèce, deux régions, environ 12 kHz d’écart : un rappel que le nombre unique donné pour une espèce est une moyenne régionale, et non une constante. Les noms coréens suivent la National Species List of Korea (2019) ; deux chauves-souris que l’étude appelait Myotis formosus et Murina leucogaster y figurent sous les noms Myotis rufoniger et Murina hilgendorfi.
Trois façons d’écouter les chauves-souris
Un détecteur de chauves-souris transforme les ultrasons en quelque chose que nous pouvons entendre, et la méthode décide de ce qui survit. Les lignes directrices italiennes de suivi (Agnelli et collègues, 2004) en décrivent trois.
Un détecteur hétérodyne mélange le cri avec un son que vous réglez à la main et joue la différence. Seule la partie du cri située à environ 5 kHz du réglage s’entend ; on balaie donc le cadran pour trouver une chauve-souris, et l’affichage indique alors une valeur proche de sa fréquence la plus forte. Il est bon marché et fonctionne en temps réel, mais le son ne conserve plus la durée ni la forme du cri. Sur la scène, choisissez Hétérodyne et réglez-le près du son stable d’un rhinolophe : le son passe comme une note grave stable, tandis qu’un balayage abrupt traverse la fenêtre sous la forme d’un bref bip.
La division de fréquence divise chaque fréquence par un rapport fixe, ici 10, à mesure que le son arrive. Elle entend toutes les chauves-souris à la fois et conserve le véritable rythme, mais elle ne garde que la partie la plus forte du signal à une seule intensité, et les harmoniques sont perdues. L’expansion de temps enregistre le cri à une fréquence d’échantillonnage élevée et le rejoue lentement. Les lignes directrices donnent l’exemple d’un cri de 40 kHz long de 5 ms : avec une expansion de 10 fois, il devient un son de 4 kHz long de 50 ms. Toute la forme est conservée, ce qui explique que les enregistrements destinés à l’identification se fassent ainsi, mais pendant la relecture le détecteur ne peut pas écouter : 2 secondes d’enregistrement signifient 20 secondes de surdité. Appuyez sur Lecture dans chaque mode et écoutez la même chasse : cris de recherche, cris d’approche et buzz.
Pourquoi un rhinolophe abaisse son cri
L’oreille interne d’un rhinolophe comporte une région très développée, accordée sur une bande étroite juste au-dessus du cri qu’il émet au repos. Hans-Ulrich Schnitzler et Annette Denzinger l’appellent une fovéa auditive, par analogie avec le centre net de notre rétine. En vol, l’écho de tout ce qui se trouve devant revient plus haut à cause de l’effet Doppler. Si rien ne changeait, l’écho sortirait de la fovéa. Au lieu de cela, la chauve-souris abaisse son cri pour que l’écho retombe sur la fréquence de référence.
Pour une chauve-souris volant à la vitesse v vers une paroi immobile, l’écho revient à f × (c + v) ÷ (c − v), de sorte que le cri doit être f_réf × (c − v) ÷ (c + v). À 5 m/s et avec une référence de 69,9 kHz, la valeur coréenne, cela donne environ 67,89 kHz, soit à peu près 2,9 % de moins. Dans le laboratoire de compensation Doppler, réglez une vitesse et déplacez la fréquence du cri jusqu’à ce que l’écart entre l’écho et la référence ne dépasse pas 0,2 kHz ; Réglage automatique donne la réponse exacte. Garder l’écho stable laisse à la chauve-souris la liberté de remarquer le vacillement rythmique que le battement d’une aile d’insecte y ajoute.
Les petites cibles et la longueur d’onde
Un objet diffuse bien le son lorsqu’il est au moins aussi grand que la longueur d’onde divisée par π. En dessous, il entre dans la région de diffusion faible, où l’écho diminue comme la puissance quatre de la taille rapportée à la longueur d’onde. La longueur d’onde dans l’air est de 343 m/s divisé par la fréquence : 17 mm à 20 kHz, 7 mm à 50 kHz et 3 mm à 110 kHz.
C’est l’une des raisons pour lesquelles les chauves-souris insectivores crient aigu. Un moucheron de 2 mm ne donne un écho complet qu’au-dessus de c ÷ (π × 2 mm), soit environ 54,6 kHz. Un cri grave porte plus loin dans l’air mais glisse sur les petites proies. Le laboratoire de taille montre ce compromis : réduisez la cible et regardez la perte d’écho augmenter, puis élevez la fréquence jusqu’à ce que le facteur de taille atteigne 1. La distance de détection qu’il affiche est une valeur de modèle tirée de l’équation du sonar de cette page, avec la cible mise à l’échelle selon sa surface.
Des écailles qui avalent le son
De nombreux papillons de nuit n’ont aucune oreille et comptent sur une défense passive. Thomas Neil et ses collègues ont mesuré des corps de papillons de nuit avec et sans leur épaisse couche d’écailles du thorax. Les écailles absorbaient entre 32 % et 85 % des ultrasons incidents et abaissaient la force de l’écho du corps d’une médiane de 5,6 dB. Dans une seconde étude, ils ont montré que la mince couche d’écailles des ailes fonctionne comme un métamatériau acoustique : un absorbeur qui prend jusqu’à 72 % de l’intensité sonore à 78 kHz tout en étant 111 fois plus mince que la plus grande longueur d’onde qu’il absorbe.
Les papillons de nuit dotés d’oreilles ajoutent des défenses actives. Ils plongent ou font des boucles quand ils entendent une chauve-souris toute proche, et certains arctiidés répondent à l’attaque par des clics ultrasonores qui brouillent la télémétrie de la chauve-souris. Les niveaux de chasse reprennent ces trois étapes. Facile est un papillon de nuit sans aucune d’entre elles. Normal ajoute l’écho plus faible de 5,6 dB et un plongeon dans une direction aléatoire quand la chauve-souris est à moins de 1,2 m. Difficile est un arctiidé avec les mêmes écailles et le même plongeon, plus des clics de brouillage, et la chauve-souris manque la plupart de ses attaques, comme dans les expériences d’Aaron Corcoran et de ses collègues. Votre capture la plus rapide et votre nombre de cris le plus faible sont conservés sur votre appareil pour chaque niveau.
Des écholocalisateurs fabriqués par l’humain
La règle est la même pour tout écholocalisateur : la distance est égale à la vitesse du son multipliée par le délai, divisée par deux. Ce qui change, c’est le milieu et la fréquence. Un capteur de stationnement de voiture fonctionne près de 48 kHz dans l’air, presque comme une pipistrelle japonaise à 47,5 kHz, et les deux ont des longueurs d’onde d’environ 7 mm. La portée du capteur de stationnement est de 2,5 à 3 m, ce qui suffit pour un pare-chocs.
Sous l’eau, le son se propage à environ 1500 m/s, de sorte qu’un écho venu de 1 m revient en 1,33 ms au lieu de 5,83 ms dans l’air. Les marsouins communs émettent des clics près de 130 kHz, ce qui donne une longueur d’onde d’environ 11,5 mm dans l’eau de mer. L’échographie médicale utilise de 1 à 20 MHz, et les appareils supposent 1540 m/s dans les tissus mous ; à 5 MHz, la longueur d’onde est d’environ 0,31 mm, ce qui explique qu’elle puisse montrer la structure fine à l’intérieur du corps mais ne puisse pas y voir loin. Le tableau de comparaison sous le laboratoire présente ces quatre cas côte à côte.
Une aile faite d’une main
Appuyez sur Os de l’aile sur la scène pour voir le squelette sous la peau. L’aile d’une chauve-souris est une main : un bras, un long avant-bras, un court pouce muni d’une griffe, et quatre doigts très longs. La peau est tendue entre les doigts, du cinquième doigt jusqu’à la patte, devant le bras, et entre les pattes et la queue, où un éperon de cartilage à la cheville maintient le bord écarté. Dans le modèle, la main se replie à la remontée de l’aile et s’ouvre largement à la descente. Les longueurs d’os du modèle sont des valeurs de modèle mises à l’échelle d’une sérotine brune d’environ 32 cm d’envergure.
Questions
Les humains peuvent-ils entendre les chauves-souris ?
La plupart des cris de chauves-souris se situent au-dessus de 20 kHz, au-delà de l’audition humaine. Certaines espèces crient plus bas : la chauve-souris tachetée crie entre 9 et 12 kHz, et beaucoup de personnes l’entendent. Les chauves-souris émettent aussi des cris sociaux plus graves. Avec un détecteur de chauves-souris, vous pouvez entendre le reste.
Les chauves-souris sont-elles aveugles ?
Non. Les chauves-souris ont des yeux qui fonctionnent, et les roussettes en particulier voient bien. L’écholocation ajoute un sens qui marche dans l’obscurité complète et qui est précis à courte portée.
Jusqu’où une chauve-souris peut-elle entendre grâce aux échos ?
Cela dépend de la taille de la cible et de la fréquence. Dans le modèle de cette page, un papillon de nuit est détectable jusqu’à environ 3,5 m à 35 kHz et une paroi rocheuse jusqu’à environ 8 m. Les objets plus grands et les fréquences plus basses portent plus loin.
Pourquoi les chauves-souris ne confondent-elles pas leurs propres échos avec les cris d’autres chauves-souris ?
Elles décalent souvent légèrement la fréquence de leurs cris par rapport à celle de leurs voisines, et elles guettent les échos au délai qu’elles attendent. Dans les grottes bondées, cela reste difficile, et certaines chauves-souris brouillent délibérément leurs rivales quand elles poursuivent le même insecte.
Pourquoi les échos sont-ils tellement plus faibles que le cri ?
Le cri s’étale en allant vers la cible, et l’écho s’étale de nouveau au retour, perdant 12 dB chaque fois que la distance double. L’air absorbe en plus une part du son, et un petit insecte ne réfléchit qu’une infime partie du son qui l’atteint.
Toutes les chauves-souris pratiquent-elles l’écholocation ?
Presque toutes les chauves-souris insectivores le font. On a longtemps cru que la plupart des roussettes de l’Ancien Monde n’y recouraient pas, mais la roussette d’Égypte émet des clics avec sa langue, et en 2014 on a découvert que deux autres espèces de roussettes perçoivent les objets dans le noir grâce à des clics produits par leurs ailes.
Qu’est-ce que le buzz terminal ?
La dernière partie d’une attaque, quand la cadence des cris dépasse 160 cris par seconde et que chaque cri dure moins d’une milliseconde. La chauve-souris obtient une nouvelle mise à jour de la position de l’insecte toutes les quelques millisecondes.
Pourquoi le bassin ressemble-t-il à un trou dans la carte d’échos ?
L’eau lisse renvoie le cri ailleurs comme un miroir, si bien que presque aucun écho ne revient. Les chauves-souris y voient un signe d’eau, et elles essaient de boire sur n’importe quelle plaque lisse.
Les sons de cette page viennent-ils de vraies chauves-souris ?
Non. Ils sont synthétisés à partir de la forme du cri de chaque espèce et ralentis du facteur de ralenti, ce qui abaisse la hauteur du même facteur. C’est ainsi que les détecteurs de chauves-souris à expansion de temps rendent les cris audibles.
Les dauphins et les chauves-souris font-ils de l’écholocation de la même façon ?
Le principe est le même, et les deux groupes l’ont développé séparément. Les dauphins travaillent dans l’eau, où le son est environ 4,4 fois plus rapide, de sorte que leurs échos reviennent plus tôt depuis la même distance. Leurs clics sont bien plus courts que la plupart des cris de chauves-souris.
Pourquoi la même chauve-souris crie-t-elle à une hauteur différente en Corée et en Grande-Bretagne ?
La fréquence des cris varie d’une population à l’autre. Le grand rhinolophe crie près de 82 kHz en Grande-Bretagne et entre 66 et 72 kHz en Corée, et les chauves-souris coréennes de Jeju criaient plus aigu que celles du continent. L’étude ne tranche pas sur la cause ; les valeurs du catalogue se lisent donc mieux comme des moyennes régionales.
Que fait réellement un détecteur de chauves-souris ?
Il rend les ultrasons audibles. Un détecteur hétérodyne joue la différence entre le cri et un son que vous réglez, la division de fréquence divise chaque fréquence par un nombre fixe en temps réel, et l’expansion de temps enregistre le cri et le rejoue plusieurs fois plus lentement. Le laboratoire des cris vous permet d’écouter les trois sur la même chasse.
Les papillons de nuit peuvent-ils se cacher des chauves-souris ?
En partie. Les écailles du corps et des ailes absorbent les ultrasons et affaiblissent l’écho de plusieurs décibels, ce qui raccourcit la distance à laquelle une chauve-souris peut trouver le papillon de nuit. Les papillons de nuit dotés d’oreilles plongent aussi pour s’éloigner, et certains arctiidés brouillent le sonar de la chauve-souris avec des clics.
Vocabulaire
- Écholocation : repérer des objets en émettant un son et en analysant les échos.
- Délai de l’écho : le temps entre un cri et son écho. Distance = vitesse du son × délai ÷ 2.
- Ultrasons : son au-dessus d’environ 20 kHz, au-delà de l’audition humaine.
- Cri FM : un cri qui balaie rapidement des hautes vers les basses fréquences, bien adapté à la mesure de la distance.
- Cri CF : un cri de fréquence presque constante, bien adapté à la détection des ailes qui battent et des décalages Doppler.
- Buzz terminal : l’émission de cris très rapide à la fin d’une attaque.
- Décalage Doppler : le changement de fréquence quand la source ou le réflecteur bouge.
- Indice de cible : la part d’un son qu’une cible réfléchit, en décibels.
- Tragus : le petit lobe devant l’ouverture de l’oreille d’une chauve-souris.
- Expansion de temps : enregistrer des ultrasons et les rejouer plus lentement, ce qui abaisse toutes les fréquences du même facteur.
- Hétérodyne : mélanger un cri avec un son réglé pour que la différence tombe dans le domaine audible.
- Compensation du décalage Doppler : abaisser le cri en vol pour que l’écho revienne à la fréquence de référence de la chauve-souris.
- Camouflage acoustique : écailles ou fourrure qui absorbent le son et affaiblissent l’écho d’une proie.
Sources
Toutes les adresses ont été vérifiées le 17 octobre 2026. Les pages PubMed répondent à curl par le code HTTP 203 et la page complète.
- Annemarie Surlykke et Elisabeth K. V. Kalko, Echolocating bats cry out loud to detect their prey. PLoS ONE 3 (2008), e2036. Niveaux d’émission de 122 à 134 dB SPL, plus de 140 dB pour Noctilio. https://pmc.ncbi.nlm.nih.gov/articles/PMC2323577/
- Coen P. H. Elemans, Andrew F. Mead, Lasse Jakobsen et John M. Ratcliffe, Superfast muscles set maximum call rate in echolocating bats. Science 333 (2011), 1885 à 1888. https://pubmed.ncbi.nlm.nih.gov/21960635/
- John M. Ratcliffe, Coen P. H. Elemans, Lasse Jakobsen et Annemarie Surlykke, How the bat got its buzz. Biology Letters 9 (2013). https://pmc.ncbi.nlm.nih.gov/articles/PMC3639754/
- Lasse Jakobsen, John M. Ratcliffe et Annemarie Surlykke, Convergent acoustic field of view in echolocating bats. Nature 493 (2013), 93 à 96. https://www.nature.com/articles/nature11664
- James A. Simmons, The resolution of target range by echolocating bats. Journal of the Acoustical Society of America 54 (1973), 157 à 173. https://pubmed.ncbi.nlm.nih.gov/4738624/
- Brian D. Lawrence et James A. Simmons, Measurements of atmospheric attenuation at ultrasonic frequencies and the significance for echolocation by bats. J. Acoust. Soc. Am. 71 (1982), 585 à 590. https://pubmed.ncbi.nlm.nih.gov/7085967/
- Stefan Greif et Björn M. Siemers, Innate recognition of water bodies in echolocating bats. Nature Communications 1 (2010), 107. https://pmc.ncbi.nlm.nih.gov/articles/PMC3060641/
- Aaron J. Corcoran, Jesse R. Barber et William E. Conner, Tiger moth jams bat sonar. Science 325 (2009), 325 à 327. https://pubmed.ncbi.nlm.nih.gov/19608920/
- Aaron J. Corcoran et William E. Conner, Bats jamming bats: food competition through sonar interference. Science 346 (2014), 745 à 747. https://pubmed.ncbi.nlm.nih.gov/25378624/
- Jesse R. Barber et autres, Moth tails divert bat attack: evolution of acoustic deflection. PNAS 112 (2015), 2812 à 2816. https://pmc.ncbi.nlm.nih.gov/articles/PMC4352808/
- Hannah M. ter Hofstede et John M. Ratcliffe, Evolutionary escalation: the bat-moth arms race. Journal of Experimental Biology 219 (2016), 1589 à 1602. https://pubmed.ncbi.nlm.nih.gov/27252453/
- Alan D. Grinnell, Early milestones in the understanding of echolocation in bats. Journal of Comparative Physiology A 204 (2018), 519 à 536. https://pubmed.ncbi.nlm.nih.gov/29687162/
- Peter T. Madsen et Annemarie Surlykke, Functional convergence in bat and toothed whale biosonars. Physiology 28 (2013), 276 à 283. https://pubmed.ncbi.nlm.nih.gov/23997187/
- Bertel Møhl et autres, The monopulsed nature of sperm whale clicks. J. Acoust. Soc. Am. 114 (2003), 1143 à 1154. https://pubmed.ncbi.nlm.nih.gov/12942991/
- Signe Brinkløv, M. Brock Fenton et John M. Ratcliffe, Echolocation in oilbirds and swiftlets. Frontiers in Physiology 4 (2013), 123. https://pmc.ncbi.nlm.nih.gov/articles/PMC3664765/
- Björn M. Siemers et autres, Why do shrews twitter? Communication or simple echo-based orientation. Biology Letters 5 (2009), 593 à 596. https://pmc.ncbi.nlm.nih.gov/articles/PMC2781971/
- Lore Thaler, Stephen R. Arnott et Melvyn A. Goodale, Neural correlates of natural human echolocation in early and late blind echolocation experts. PLoS ONE 6 (2011), e20162. https://pmc.ncbi.nlm.nih.gov/articles/PMC3102086/
- Liam J. Norman, Caitlin Dodsworth, Denise Foresteire et Lore Thaler, Human click-based echolocation: effects of blindness and age, and real-life implications in a 10-week training program. PLoS ONE 16 (2021), e0252330. https://pmc.ncbi.nlm.nih.gov/articles/PMC8171922/
- Yossi Yovel, Michal Geva-Sagiv et Nachum Ulanovsky, Click-based echolocation in bats: not so primitive after all. J. Comp. Physiol. A 197 (2011), 515 à 530. https://pubmed.ncbi.nlm.nih.gov/21465138/
- Animal Diversity Web (University of Michigan), Eptesicus fuscus : cris FM de 1 à 5 ms, de 50 à 25 kHz. https://animaldiversity.org/accounts/Eptesicus_fuscus/
- Animal Diversity Web, Euderma maculatum : cris de 9 à 12 kHz. https://animaldiversity.org/accounts/Euderma_maculatum/
- Bat Conservation Trust, Greater horseshoe bat : cri à fréquence presque constante d’environ 82 kHz. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/greater-horseshoe
- Bat Conservation Trust, Brown long-eared bat (the whispering bat). https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/brown-long-eared-bat
- Hans-Ulrich Schnitzler et Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. J. Comp. Physiol. A 197 (2011), 541 à 559. https://www.ebi.ac.uk/europepmc/webservices/rest/search?query=EXT_ID:20857119&format=json&resultType=core
- Arjan Boonman, Sara Bumrungsri et Yossi Yovel, Nonecholocating fruit bats produce biosonar clicks with their wings. Current Biology 24 (2014), 2962 à 2967. https://pubmed.ncbi.nlm.nih.gov/25484290/
- NASA Glenn Research Center, Speed of Sound. https://www.grc.nasa.gov/www/k-12/airplane/sound.html
- NOAA Ocean Service, What is sonar? https://oceanservice.noaa.gov/facts/sonar.html
- National Institute of Biomedical Imaging and Bioengineering, Ultrasound. https://www.nibib.nih.gov/science-education/science-topics/ultrasound
- Bosch Mobility, Ultrasonic sensor : portée de détection de 15 cm à 5 m. https://www.bosch-mobility.com/en/solutions/sensors/ultrasonic-sensor/
- Absorption du son dans l’air : ISO 9613-1:1993, Acoustics, attenuation of sound during propagation outdoors, part 1 (formule utilisée dans le modèle).
- Les sources de chaque animal et de chaque machine de la liste sous la scène sont liées depuis sa fiche.
- Dai Fukui, David A. Hill, Sun-Sook Kim et Sang-Hoon Han, Echolocation call structure of fourteen bat species in Korea. Animal Systematics, Evolution and Diversity 31 (2015), 160 à 175. L’annexe 1 donne chaque enregistrement. https://accesson.kr/ased/v.31/3/160/56358
- National Institute of Biological Resources, National Species List of Korea (2019), Chiroptera. https://www.nibr.go.kr/aiibook/catImage/21/National%20Species%202.pdf
- Paolo Agnelli et collègues (éditeurs), Guidelines for bat monitoring. Quaderni di Conservazione della Natura 19 bis, Italian Ministry of the Environment and ISPRA (2004). Hétérodyne, division de fréquence et expansion de temps. https://www.isprambiente.gov.it/files/pubblicazioni/quaderni/conservazione-natura/files/6732_19bisEngChirotteri_completo.pdf
- Hans-Ulrich Schnitzler et Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. Journal of Comparative Physiology A 197 (2011), 541 à 559. https://pubmed.ncbi.nlm.nih.gov/20857119/
- Thomas R. Neil et collègues, Thoracic scales of moths as a stealth coating against bat biosonar. Journal of the Royal Society Interface 17 (2020), 20190692. https://pubmed.ncbi.nlm.nih.gov/32093539/
- Thomas R. Neil et collègues, Moth wings are acoustic metamaterials. PNAS 117 (2020), 31134 à 31141. https://pmc.ncbi.nlm.nih.gov/articles/PMC7733855/
- Bat Conservation Trust, pages d'espèces pour le murin de Natterer, le murin à moustaches, la barbastelle, la noctule de Leisler, la pipistrelle de Nathusius, l'oreillard gris et le murin d'Alcathoe. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats
- Line A. Kyhn et collègues, Clicking in a killer whale habitat: narrow-band, high-frequency biosonar clicks of harbour porpoise and Dall's porpoise. PLOS ONE 8 (2013), e63763. https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0063763
- StatPearls (NCBI Bookshelf), Ultrasound Physics and Instrumentation. Fréquences cliniques de 1 à 20 MHz, 1540 m/s dans les tissus mous. https://www.ncbi.nlm.nih.gov/books/NBK570593/
- NOAA National Ocean Service, Basics of Underwater Sound. 1500 m/s dans l’eau de mer. https://cdn.oceanservice.noaa.gov/oceanserviceprod/about/environmental-compliance/final-fact-sheets/NOS%20Final%20PEIS_Fact%20Sheet_Basics%20of%20Underwater%20Sound.pdf
- Bosch, Ultrasonic sensor (Gen. 4) for parking aid systems, key data sheet. Environ 48 kHz, portée de 2,5 à 3 m. https://hexagondownloads.blob.core.windows.net/public/AutonomouStuff/wp-content/uploads/2019/05/Neobotix_Ultrasonic_sensors_whitelabel.pdf
Textes et simulations : CC BY-NC-SA 4.0, sauf mention contraire.
Parcours 4 sur 8
Lumière et sonD'autres expositions
Comment fonctionne une boîte à musique : peigne et cylindre
Une dent d’acier de 30,6 mm sonne à 261,6 Hz, et la couper à la moitié de sa longueur ferait monter la note de deux octaves.
Phonographe : comment le son est enregistré et relu
Le premier phonographe d’Edison grava une voix dans l’étain en 1877, et la même aiguille la relut dans un sillon espacé de 2,54 mm.
Comment fonctionne un piano : mécanique et tempérament égal
Enfoncez une touche de 10 millimètres : un marteau de feutre file vers la corde, la frappe et s’écarte avant de pouvoir étouffer la note.
Voir le son : ondes sonores, fréquence et décibels
Un son de 440 Hz comprime l’air en couches denses espacées de 78 centimètres, mais même à 94 dB chaque portion d’air bouge de moins d’un millième de millimètre.
Comment un disque vinyle garde le son
Au bord extérieur d’un LP, le sillon défile sous la pointe à un demi-mètre par seconde ; à la dernière chanson, il n’avance plus qu’à 21 centimètres.
Éclair et tonnerre : comprendre leur fonctionnement
Un canal d’éclair chauffe l’air à environ cinq fois la température de la surface du Soleil, et son tonnerre met environ 3 secondes par kilomètre pour vous atteindre.