РИС. 86Чувства
Как летучие мыши видят звуком? Эхолокация простыми словами
Эхо от бабочки в 1 м возвращается к летучей мыши меньше чем за 6 тысячных секунды, и по этой задержке мышь узнаёт расстояние.
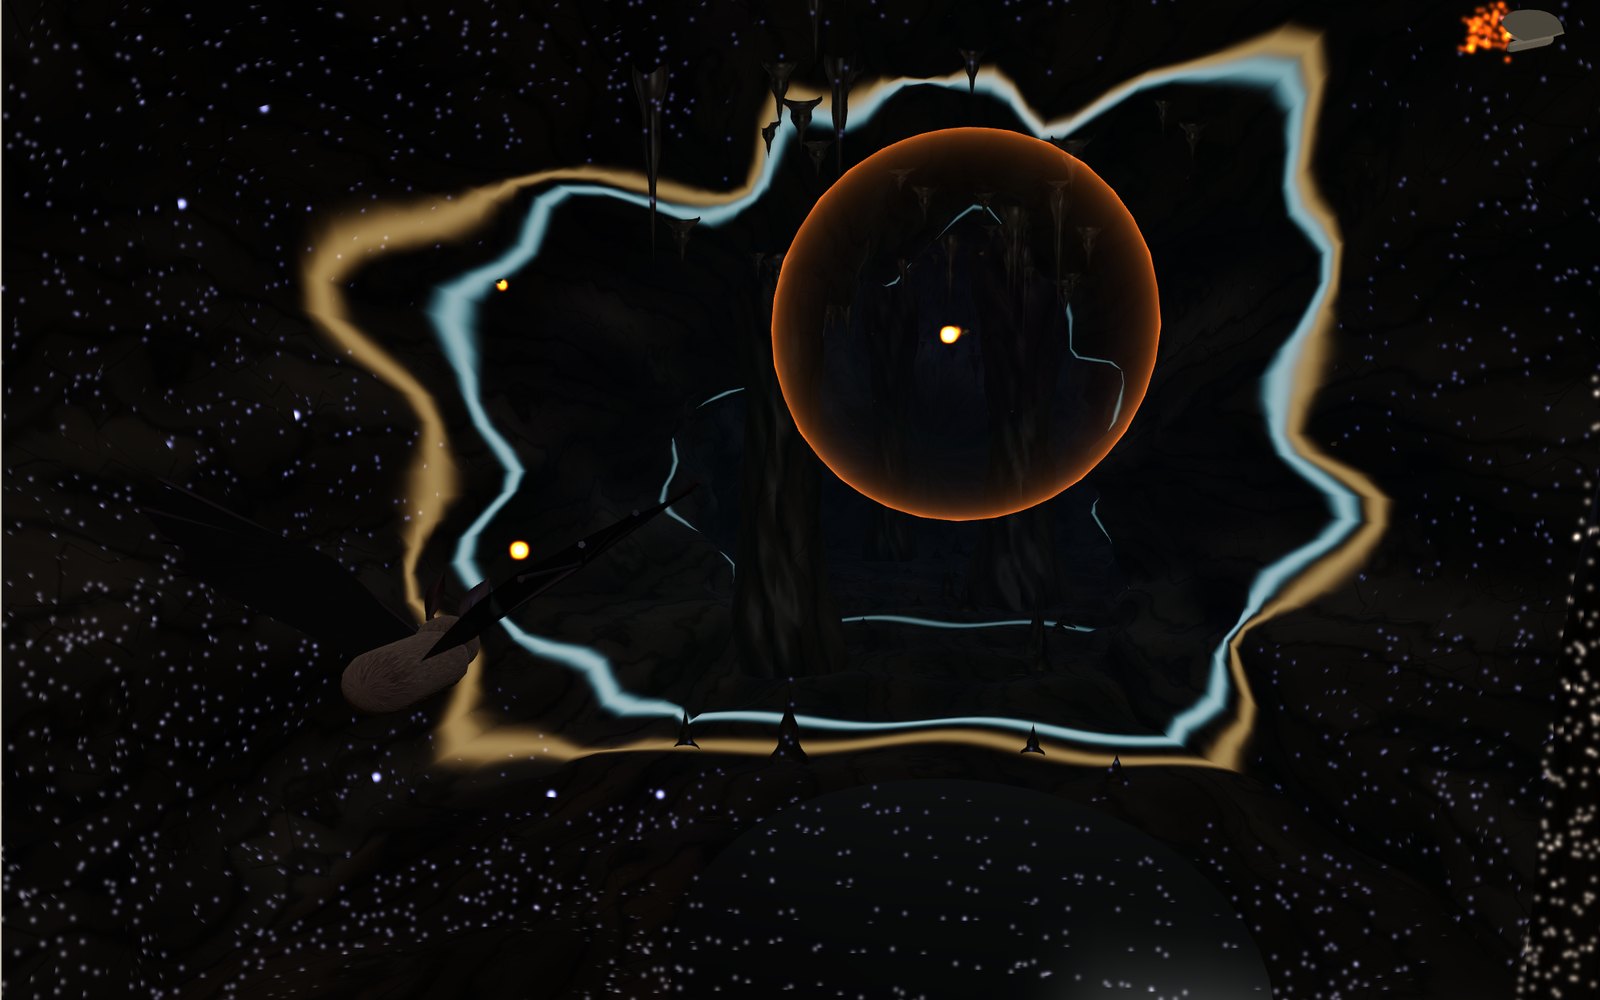
На этом устройстве не получается показать 3D-модель. Шаги экскурсии ниже можно прочитать текстом.
1 / 10 Пещера без светаВ этой пещере нет света. Мышь послала один сигнал; яркая оболочка это звук, расходящийся со скоростью 343 м/с. Нажмите «Крик», чтобы крикнуть снова, или идите по этим шагам.
Тяните для поворота. Колесо или щипок меняют масштаб.
Хлопок в тёмном коридоре
Встаньте с закрытыми глазами в длинном пустом коридоре и хлопните в ладоши один раз. Вы услышите хлопок, а чуть позже его слабую копию и поймёте, примерно как далеко дальняя стена. Летучая мышь делает то же самое сотни раз в минуту, звуками, слишком высокими для нас, и делает это так хорошо, что ловит на лету ночную бабочку в полной темноте.
Это называется эхолокацией: послать звук, послушать, что вернулось, и по эху понять, где находятся предметы и каковы они. Этот экспонат помещает вас в известняковую пещеру, где совсем нет света. Большой бурый кожан кричит, и вы видите, как каждый крик расходится по пещере, отражается от стен, колонн, капель и насекомых и возвращается. Когда эхо доходит до мыши, оно становится светящейся точкой. Через несколько секунд точки складываются в картину пещеры, и эта картина единственная, какая есть у мыши.
Как пользоваться сценой
Нажмите «Крик», и мышь крикнет один раз. Яркая оболочка это фронт звука; она рисуется ярче в том направлении, куда целится мышь. Когда оболочка доходит до чего-то твёрдого, от него может пойти назад янтарная оболочка, а когда эхо приходит к мыши, на эхо-карте появляется точка. Тёплые точки близко, синие далеко, оранжевые это бабочки. Точки бледнеют через время, которое задаёт ползунок «Память эха».
Кнопки под сценой задают замедление. Звук в воздухе проходит 343 метра за секунду, и весь крик со всеми эхо закончился бы раньше, чем вы что-то увидите. При замедлении в 100 раз крик ползёт со скоростью около 3,4 метра в секунду. «Охота на бабочку» отправляет мышь за ближайшей бабочкой с настоящей скоростью полёта (показано в 10 раз медленнее), и частота криков растёт сама по мере сближения.
На панели «Управление» можно сменить вид мыши, вручную задать фазу охоты, остановить автоматические крики, включить звук, показать доплеровский сдвиг эха бабочки, позволить бабочке глушить сонар, включить лампу и показать луч сонара. Под управлением калькулятор эха выполняет арифметику этой страницы для любого расстояния, температуры и частоты. Под сценой расположен список из 34 животных и машин, которые находят предметы по эху.
Расстояние по задержке
Правило в основе эхолокации короткое. Звук идёт с известной скоростью. Если эхо приходит через время t после крика, звук прошёл до цели и обратно, а значит, цель находится на расстоянии
расстояние = скорость звука × t ÷ 2
В сухом воздухе скорость звука зависит от температуры. Это квадратный корень из 1,4 × 287,05 × T, где T это температура в кельвинах. При 20 °C получается 343,2 м/с. При 0 °C это 331,3 м/с, а в летнюю ночь при 30 °C 349,0 м/с. Мышь в холодной пещере и мышь над тёплым лугом живут с чуть разными линейками, различающимися примерно на 5 процентов.
При 343,2 м/с задержки эха получаются такими:
| Расстояние | Задержка эха |
|---|---|
| 10 см | 0,58 мс |
| 1 м | 5,83 мс |
| 3 м | 17,48 мс |
| 5 м | 29,14 мс |
| 10 м | 58,27 мс |
| 20 м | 116,54 мс |
Значит, колонна в 10 метрах перед мышью отвечает примерно через 58 тысячных секунды, а бабочка в 3 метрах примерно через 17. Разница в одну микросекунду задержки это всего 0,17 мм расстояния. Так точно мыши время использовать не умеют, но опыты Джеймса Симмонса в 1970-х показали, что обученные большие бурые кожаны могли по одной задержке эха определить, какая из двух целей ближе.
На сцене время настоящее: каждая точка рисуется в момент, когда пришло бы её эхо, с учётом замедления. Посмотрите, как крик доходит до дальнего конца туннеля, и вы увидите, что дальние точки загораются последними.
Почему сигналы такие высокие
Большинство криков летучих мышей ультразвуковые, выше предела человеческого слуха около 20 кГц. Большой бурый кожан на сцене за несколько миллисекунд опускается от примерно 50 кГц до 25 кГц. Обыкновенный нетопырь громче всего около 45 кГц, а большой подковонос держит тон около 82 кГц.
Причина в размере волны. Длина волны это скорость звука, делённая на частоту. При 10 кГц она равна 34 мм, при 35 кГц около 10 мм, при 82 кГц около 4 мм. Цель, намного меньшая длины волны, почти не возмущает волну и отражает очень мало; эхо от маленькой сферы падает примерно как четвёртая степень отношения размера к длине волны. Длина комара составляет несколько миллиметров. Чтобы получить от него сильное эхо, мыши нужна длина волны тоже в несколько миллиметров.
У высоких частот есть цена. Воздух поглощает звук, а высокие частоты гораздо сильнее. По стандартной формуле поглощения в воздухе (ISO 9613-1) при 20 °C и влажности 50 процентов потери составляют около 0,16 dB на метр при 10 кГц, 0,52 dB при 20 кГц, 1,13 dB при 35 кГц, 2,67 dB при 82 кГц и 3,28 dB при 100 кГц. Эхо платит эту цену дважды, на пути туда и на пути обратно. При 100 кГц цель в 5 метрах теряет только в воздухе 33 dB.
Переведите ползунок «Мышь» от большого бурого кожана к большому подковоносу и посмотрите на эхо-карту: высокий тон рисует более резкую, но более короткую карту. Включите пятнистую летучую мышь, которая кричит на 9–12 кГц, и карта уйдёт глубоко в туннель, но каждая точка будет размытее.
Как громко и как далеко
Летучие мыши громкие. Полевые записи Аннемари Сурлюкке и Элизабет Калько в Панаме дали уровни источника 122–134 dB SPL на расстоянии 10 см перед мышью у тех, кто охотится на открытом пространстве. Два вида, охотящихся над водой, в среднем давали около 137 dB и превышали 140 dB. Мы ничего из этого не слышим только потому, что звук слишком высокий.
Им это нужно. Звук, расходящийся во все стороны, теряет 6 dB при каждом удвоении расстояния. Эхо снова расходится на обратном пути, поэтому путь туда и обратно теряет 12 dB на каждое удвоение расстояния. Бабочка отражает лишь крошечную часть того, что на неё попало. Модель на сцене использует уравнение сонара:
уровень эха = уровень источника − 40 log₁₀(r ÷ 0,1 м) − 2 × поглощение × r + сила цели
При крике 120 dB на расстоянии 10 см, силе цели бабочки −30 dB и пороге слышимости 20 dB мышь в модели слышит бабочку примерно до 3,5 м на 35 кГц, до 3,1 м на 50 кГц и до 2,6 м на 82 кГц. Скальная стена отражает гораздо больше, и её слышно примерно до 8 м на 35 кГц. Это числа модели, но они совпадают с картиной в природе: добычу находят в нескольких метрах, а стены и деревья в несколько раз дальше. Сурлюкке и Калько заметили также, что самые громкие мыши используют самые высокие частоты, и это, похоже, возвращает дальность их обнаружения к уровню остальных.
Строка «Бабочка слышна до» в показаниях сцены даёт это модельное расстояние для выбранной мыши. На эхо-карте бабочка становится оранжевой, только если находится в этой зоне.
Поиск, сближение и финальное жужжание
Около 1960 года Дональд Гриффин с коллегами записали охотящихся на насекомых летучих мышей и обнаружили, что крики меняются закономерно. Во время поиска большой бурый кожан кричит примерно 10 раз в секунду, каждый крик длится несколько миллисекунд. Многие мыши в этой фазе кричат один раз за взмах крыла, так что взмахи, дыхание и крик идут в одном ритме. Обнаружив насекомое, мышь переходит к фазе сближения: крики становятся короче и чаще. В последние несколько сотен миллисекунд наступает финальное жужжание: частота поднимается выше 160 криков в секунду, а сами крики сжимаются до значительно меньше миллисекунды.
Часть причины, простой расчёт времени. Мышь обычно ждёт нужное эхо, прежде чем кричать снова, чтобы эхо и крик не накладывались. С 5 метров эхо идёт 29 мс, что допускает не больше 34 криков в секунду. С 1 метра 5,8 мс, что допускает 172. С 50 см допускается 343. Чем ближе добыча, тем быстрее мыши позволено кричать и тем чаще она узнаёт, куда сместилась бабочка.
Это не вся история. В 2011 году Коэн Элеманс с коллегами обнаружили, что у летучих мышей в гортани есть сверхбыстрые мышцы, одни из самых быстрых среди млекопитающих, и что предельную частоту криков задаёт скорость работы этих мышц, а не только наложение эха. Поставьте ползунок «Фаза охоты» на «Финальное жужжание», и оболочки вылетают из мыши так быстро, что вкладываются друг в друга.
Какое направление: два уха
Расстояние получается из времени. Направление получается из сравнения двух ушей. Эхо справа доходит до правого уха чуть раньше, чем до левого, и там оно чуть громче, потому что голова затеняет дальнее ухо. В модели уши находятся примерно в 1,6 см друг от друга, поэтому наибольшая разница во времени, для эха прямо сбоку, составляет около 47 микросекунд. Эхо в 10 градусах от центра даёт около 8 микросекунд. В показаниях выводится эта разница для бабочки.
Вверх и вниз определить труднее, потому что оба уха находятся на одной высоте. Здесь помогает форма наружного уха. Небольшой выступ перед входом в ухо, козелок, добавляет внутри уха своё эхо, и время этого крошечного дополнительного эха зависит от того, пришёл звук сверху или снизу. Кроме того, мыши двигают головой и ушами между криками и с каждым криком слышат сцену под чуть другим углом. Мышь на сцене слегка поворачивает голову между криками, и так заполняется её карта.
Доплер: бабочка приближается?
Когда мышь летит к стене, каждый гребень волны её крика посылается из чуть более близкой точки, чем предыдущий, и стена получает чуть более высокую частоту. Стена отправляет этот звук обратно к мыши, которая всё ещё приближается, и частота снова растёт. Для мыши, летящей со скоростью v к неподвижной цели, эхо возвращается с частотой
f × (c + v) ÷ (c − v)
При 4 м/с крик 82 кГц возвращается примерно на 83,9 кГц, почти на 2 кГц выше. Если цель тоже движется, её скорость добавляется таким же образом. Включите «Доплеровский сдвиг», и в показаниях появится частота эха бабочки и её отклонение от частоты крика.
Подковоносы используют это лучше всех. Их крик это долгий почти постоянный тон, а в слухе есть узкая полоса очень острой настройки возле частоты эха, иногда её называют акустической ямкой. Летя вперёд, подковонос понижает крик ровно настолько, чтобы эхо со сдвигом Доплера попало в эту полосу. При 4 м/с он кричит на частоте около 80,1 кГц, чтобы эхо вернулось около 82 кГц. На фоне этого ровного тона бьющиеся крылья насекомого заставляют эхо мерцать по высоте и громкости, и мышь может выделить трепещущую бабочку среди неподвижных листьев. Выберите большого подковоноса на ползунке «Мышь», чтобы увидеть числа.
Что эхо говорит о поверхностях
Шероховатая скала рассеивает звук во все стороны. Куда бы ни попал луч, часть его возвращается прямо назад, поэтому стены пещеры покрываются точками. Гладкая поверхность вместо этого работает как зеркало. Сигнал отскакивает под тем же углом, под каким пришёл, и уходит прочь, а эхо возвращает только та часть воды, которая находится прямо под мышью.
Поэтому пруд на сцене остаётся тёмным на эхо-карте. Штефан Грайф и Бьорн Зимерс показали в 2010 году, что мыши принимают за воду любую большую акустически гладкую поверхность. Дикие мыши 15 видов пытались пить с гладких плит из металла, дерева и пластика, даже если плиты были хорошо видны. Молодые мыши, никогда не видевшие воды, делали то же самое, что говорит о врождённости этого правила. На сцене пруд выглядит как дыра на карте с единственным ярким пятном под мышью.
Бабочки защищаются
На бабочек охотятся летучие мыши десятки миллионов лет, и у многих есть ответы. У большой доли бабочек есть уши, слышащие крики мышей. Когда крик становится громким, они пикируют, делают петли или падают на землю. Некоторые мыши в ответ кричат на частотах, которые эти уши слышат плохо, или очень тихо. Бурого ушана в Британии называют «шепчущей мышью».
Некоторые медведицы отвечают. В 2009 году Аарон Коркоран, Джесси Барбер и Уильям Коннер сняли в темноте, как большие бурые кожаны атакуют медведицу Bertholdia trigona. Когда мышь входила в финальное жужжание, бабочка издавала плотные залпы ультразвуковых щелчков, и мыши промахивались. Щелчки, похоже, путают мышь в том, как далеко бабочка. Включите «Бабочка глушит сонар» и начните охоту: эхо бабочки размазывается в красные точки на неверных расстояниях, и в этой модели мышь обычно пролетает мимо.
Лунные павлиноглазки используют другой приём. Их длинные хвосты задних крыльев вращаются в полёте и возвращают собственное эхо. В опытах Барбера с коллегами мыши целились в хвосты в более чем половине атак, а бабочки с хвостами выживали примерно на 47 процентов чаще, чем без них. Мыши мешают и друг другу: мексиканские складчатогубы, гонящиеся за одним насекомым, издают особый сигнал, из-за которого соперник промахивается.
Другие животные с эхолокацией
Летучие мыши известны лучше всех, но не единственные. Зубатые киты, включая дельфинов и морских свиней, пользуются эхолокацией под водой, где звук идёт примерно в 4,4 раза быстрее, чем в воздухе. Их щелчки короткие и очень громкие. Щелчки кашалотов на оси, записанные Бертелем Мёлем с коллегами, достигали 236 dB re 1 µPa, самых громких звуков, известных у любого животного. Питер Мадсен и Аннемари Сурлюкке показали, как близко сошлись сонары летучих мышей и зубатых китов, хотя обе группы развили его независимо.
Эхолокацией пользуются и две группы птиц. Гуахаро Южной Америки ест плоды ночью и гнездится глубоко в пещерах, а пещерные саланганы Индо-Тихоокеанского региона тоже гнездятся в тёмных пещерах. Обе используют щелчки достаточно низкие, чтобы их слышали люди; они хорошо распространяются, но показывают меньше деталей. Землеройки чирикают больше, когда исследуют загромождённые места, и записи говорят, что их сигналы дают полезное эхо на малой дистанции. Даже некоторые крыланы, которых долго считали не владеющими эхолокацией, находят путь в темноте с помощью щелчков, издаваемых крыльями.
Люди с эхолокацией
Некоторые слепые люди пользуются эхолокацией с помощью щелчков ртом. В 2011 году Лор Талер, Стивен Арнотт и Мелвин Гудейл сканировали мозг двух слепых экспертов, пока те слушали записи собственных щелчков и эха. Эхо активировало ту часть мозга, которая обычно занимается зрением, а не дополнительные слуховые области. Обучающее исследование 2021 года в Даремском университете научило слепых и зрячих взрослых от 21 до 79 лет эхолокации щелчками за 20 занятий в течение десяти недель. Обе группы заметно улучшились, и ни возраст, ни слепота не ограничивали скорость обучения.
Человеческие щелчки лежат в несколько килогерц, поэтому их длина волны около 10 см. Этого хватает, чтобы почувствовать стену, дверной проём или припаркованную машину, но не бабочку.
Машины, которые делают то же
Корабли используют сонар, который работает по тому же правилу, что и мышь, только со скоростью звука в воде около 1500 м/с. Эхо от морского дна на глубине 10 м возвращается примерно через 13 мс. Медицинский ультразвук посылает в тело звук мегагерцевого диапазона, где длины волн порядка миллиметра позволяют увидеть контуры органов и сердца. Парковочные датчики в бампере автомобиля с помощью ультразвука измеряют время эха и находят препятствия на расстоянии от 15 см до 5 м.
Краткая история
В 1790-х годах Лаццаро Спалланцани обнаружил, что ослеплённые летучие мыши всё равно летают, ни на что не натыкаясь, а Луи Жюрин показал, что мыши с заткнутыми ушами не могут. Никто не мог объяснить как, ведь мыши казались беззвучными. Ответ пришлось ждать, пока не появился микрофон, слышащий ультразвук. В 1938 году Дональд Гриффин, тогда студент Гарварда, принёс летучих мышей физику Джорджу Пирсу, который построил ультразвуковой детектор. Вместе с Робертом Галамбосом Гриффин показал, что мыши издают ультразвуковые импульсы и используют их эхо, чтобы избегать препятствий, а в 1944 году назвал эту способность эхолокацией.
Что модель упрощает
Мышь на сцене стоит на месте между охотами, чтобы вы могли обойти её вокруг. Настоящая мышь в поисковом полёте никогда не останавливается. Пещера состоит из гладкой математической формы, а эхо находят, прослеживая несколько сотен лучей в этой форме. Настоящий звук это волна, а не пучок лучей: он огибает края, и эхо накладываются и интерферируют. Сила эха берётся из простого уравнения сонара с фиксированной силой цели для скалы, а порог слышимости это одно число.
Бабочки считаются точками. Настоящее эхо бабочки меняется с каждым взмахом крыльев, и это отчасти то, как мыши узнают насекомых. Модель глушения лишь картинка результата, о котором сообщили для Bertholdia trigona: эхо бабочки появляется на неверном расстоянии. Звук, который вы слышите, это крик, замедленный в то же число раз, что и картинка, поэтому крик 40 кГц при замедлении в 100 раз звучит как 400 Гц. Детекторы летучих мышей, продающиеся для полевой работы, используют тот же метод, называемый растяжением времени.
Как читать миллисекундное эхо
Допустим, воздух неподвижен, а скорость звука округлена до 343 м/с. Задержка эха 1 мс означает полный путь звука 343 × 0,001 = 0,343 м. Половина этого это путь туда, поэтому отражатель находится в 0,1715 м, примерно в 17 см. Если забыть обратный путь, получится вдвое дальше. В этом примере предполагается, что эхо идёт обратно от цели по прямой. Отражение, которое перед возвращением отскакивает от другой стены, проходит более длинный путь, и его нельзя читать как то же расстояние по прямой.
Частота в это уравнение расстояния не входит. При одной температуре воздуха крик 40 кГц и крик 82 кГц идут до одной цели по сути одинаковое время. Различаются их длины волн. С округлённой скоростью звука 343 ÷ 40 000 = 0,008575 м, около 8,6 мм. Это число описывает расстояние между гребнями волны, а не минимальную длину насекомого, которое мышь может обнаружить. Более мелкое насекомое всё равно может вернуть эхо; услышит ли его мышь, зависит от ориентации и отражающих поверхностей, расстояния и фонового шума. Во время атаки к тому же движутся крылья насекомого. Неподвижная шарообразная цель это полезный расчёт, а не правило распознавания насекомых.
В калькуляторе эха задайте «Температура воздуха» 20 °C, «Частота сигнала» 40 кГц и «Расстояние до цели» 1 м. Показанная скорость берётся по формуле температуры, а не из округлённых 343 м/с, принятых выше, поэтому ожидайте около 5,83 мс и 8,6 мм. Удвоение расстояния удваивает задержку, не меняя длину волны. Повышение частоты меняет длину волны и поглощение, но не удваивает задержку. Это отдельные эффекты, которые одна картинка яркого эха может скрыть.
Почему последнее жужжание не просто быстрый поисковый крик
Обзор Рэтклиффа с коллегами, How the bat got its buzz, обсуждает больше, чем число звуков в атаке. Некоторые мыши понижают основную частоту во второй части жужжания. При том же раскрытии рта более низкая частота расширяет излучаемый луч. На близком расстоянии насекомому достаточно сместиться вбок на небольшое расстояние, чтобы выйти из узкого луча, поэтому более широкое акустическое поле зрения может помочь мыши следить за увёртывающейся добычей. Это компромисс с обычным преимуществом коротких волн для мелких целей, а не противоречие ему.
Расчётный пример в 200 криков в секунду даёт 1 ÷ 200 = 0,005 с, то есть 5 мс между началами криков. За этот интервал звук при 343 м/с может пройти туда и обратно примерно с расстояния 0,86 м. Это идеальный расчёт времени, а не гарантированная дальность охоты. Длительность крика занимает часть интервала, эхо от окружения продолжает приходить, а гортани нужно расслабиться и снова сократиться. Обзор сообщает о частотах до примерно 220 криков в секунду у некоторых видов; 200 не является общим потолком.
Сцена вместо этого использует номинальную частоту финального жужжания 170 криков в секунду с дополнительными ограничениями по задержке цели. Поэтому показанная частота может быть ниже, когда бабочка далеко. В этой фазе она также рисует более узкий луч, тогда как исследование описывает расширение луча в жужжании у отдельных настоящих видов. Используйте оболочки, чтобы сравнивать интервалы между криками, а не чтобы заключать, что каждая мышь сужает луч сонара перед поимкой. Анимированная пещера не воспроизводит всех видоспецифичных изменений в устройстве крика.
Контролируемое сравнение на экране
Начните без охоты. Нажмите «Очистить эхо-карту», затем «Крик» и проследите за первыми возвращающимися оболочками, прежде чем накопятся старые точки. Включите лампу, чтобы сравнить настоящую форму пещеры с неполной эхо-картой. Отсутствие точки не обязательно означает отсутствие скалы: луч мог не попасть туда, или возврат слишком слаб. Это не то же самое, что убрать твёрдый предмет из сцены.
Для второго сравнения оставьте вид неизменным и меняйте в калькуляторе эха только «Расстояние до цели». Читайте «Задержка эха» и «Максимум без наложения» вместе. Большее расстояние даёт более долгую задержку и более низкую идеальную частоту повторения. Калькулятор не зависит от настоящего положения бабочки; сдвиг его расстояния не двигает бабочку. Это важно, когда вы сравниваете его числа с показаниями сцены.
Наконец, выберите большого подковоноса, затем вернитесь к большому бурому кожану. Первая настройка представляет долгий крик постоянной частоты, вторая это короткий нисходящий ЧМ-сдвиг. Узкая слуховая настройка настоящего подковоноса помогает ему замечать связанные с трепетом изменения на фоне листвы; широкополосный ЧМ-крик даёт полезную информацию о времени для ближних отражателей. Это разные акценты, а не взаимоисключающие чувства. В настоящих криках подковоносов тоже есть частотно-модулированные участки. Подпись модели «постоянный тон» намеренно опускает эти детали.
Четырнадцать корейских видов и их сигналы
Каталог начинается с 14 видов, записанных в Корее в 2011–2012 годах исследователями Dai Fukui, David Hill, Sun-Sook Kim и Sang-Hoon Han. Они проанализировали 1129 импульсов из 93 последовательностей и опубликовали средние значения каждой записи: верхнюю и нижнюю частоты, частоту наибольшей энергии, длительность и интервал между сигналами. Каталог усредняет эти средние по видам и показывает диапазон частоты максимума энергии между записями. Так видна изменчивость внутри вида.
Есть три формы сигнала. Большой подковонос издаёт долгий постоянный тон с коротким частотным переходом на каждом конце. Девять видов родов Myotis, Murina и Plecotus дают крутые нисходящие сигналы длительностью всего 1–6 мс. Четыре вида (поздний кожан, Hypsugo alaschanicus, Miniopterus fuliginosus и Pipistrellus abramus) начинают с крутого спада, переходящего в почти постоянный конец. По пяти измерениям авторы верно определили вид для 76,4% сигналов. Постоянный тон и спад с ровным концом легко различались, а крутые спады Myotis сильно перекрывались.
Выделяются две детали. Myotis bombinus показал самую широкую полосу: 113 кГц в одной записи, примерно от 135 до 22 кГц. А большой подковонос, издающий в Британии около 82 кГц, в Корее подавал сигналы 66–72 кГц; на Чеджу они были выше материковых. Один вид, две области, около 12 кГц разницы: видовое значение представляет региональное среднее, не константу. Корейские названия следуют Национальному списку видов Кореи (2019). Названные в исследовании Myotis formosus и Murina leucogaster там записаны как Myotis rufoniger и Murina hilgendorfi.
Три способа услышать летучую мышь
Детектор делает ультразвук слышимым. От метода зависит, что сохранится. Итальянское руководство по мониторингу (Agnelli и коллеги, 2004) описывает три способа.
Гетеродин смешивает сигнал с тоном, который настраивают вручную, и воспроизводит разность. Слышна лишь часть в пределах примерно 5 кГц от настройки. Поворачивая ручку, находят мышь; показание оказывается близко к частоте максимума энергии. Метод дешёвый и работает в реальном времени, но теряет длительность и форму. Выберите Гетеродин около постоянного тона подковоноса: он станет низким ровным звуком, а крутой спад пересечёт окно коротким всплеском.
Деление частоты в реальном времени делит все частоты на заданное число, здесь 10. Слышны сразу все виды и сохраняются временные отношения, но остаётся только сильнейшая часть с одной громкостью, без гармоник. Растяжение времени записывает сигнал с высокой частотой дискретизации и воспроизводит медленно. Руководство приводит 40 кГц и 5 мс: при растяжении в 10 раз получаются 4 кГц и 50 мс. Форма сохраняется целиком, поэтому так записывают для определения вида. Но при воспроизведении детектор не слышит: 2 секунды записи означают 20 секунд глухоты. Нажмите Воспроизвести в каждом режиме для одной и той же охоты с поиском, сближением и жужжанием.
Почему подковонос снижает частоту
Во внутреннем ухе сильно увеличена область, настроенная на узкую полосу чуть выше сигнала в покое. Hans-Ulrich Schnitzler и Annette Denzinger называют её слуховой фовеей по аналогии с областью чёткого зрения в центре сетчатки. В полёте эхо впереди становится выше из-за эффекта Доплера. Без изменения оно вышло бы из этой полосы. Мышь снижает сигнал, возвращая эхо к опорной частоте.
При полёте со скоростью v к неподвижной стене эхо имеет частоту f × (c + v) ÷ (c − v), поэтому сигнал должен быть f_ref × (c − v) ÷ (c + v). При 5 м/с и корейской опорной частоте 69,9 кГц получаются около 67,89 кГц, примерно на 2,9% ниже. В панели Компенсация Доплера задайте скорость и меняйте сигнал, пока разница с опорным тоном не станет меньше 0,2 кГц. Пусть мышь настроит показывает точное решение. Постоянное эхо позволяет замечать ритмические колебания от взмахов крыльев насекомого.
Малые цели и длина волны
Объект хорошо рассеивает звук, когда его размер не меньше длины волны, делённой на π. Ниже начинается область слабого рассеяния: эхо уменьшается с четвёртой степенью отношения размера к длине волны. В воздухе длина волны равна 343 м/с, делённым на частоту: 17 мм при 20 кГц, 7 мм при 50 кГц и 3 мм при 110 кГц.
Поэтому насекомоядные виды издают высокие сигналы. Мошка размером 2 мм даёт полное эхо только выше c ÷ (π × 2 мм), около 54,6 кГц. Низкий сигнал идёт дальше, но плохо отражается от мелкой добычи. Уменьшите цель и проследите рост потерь, затем повышайте частоту до размерного коэффициента 1. Показанная дальность представляет модельное значение по уравнению сонара на этой странице с масштабированием цели по площади.
Чешуйки, поглощающие звук
У многих бабочек нет слуха, и они используют пассивную защиту. Thomas Neil и коллеги измерили тела с толстым слоем грудных чешуек и без него. Чешуйки поглощали 32–85% входящего ультразвука и ослабляли эхо тела на медианные 5,6 dB. Вторая работа показала, что тонкие крыловые чешуйки действуют как акустический метаматериал: поглощают до 72% интенсивности при 78 кГц, будучи в 111 раз тоньше самой длинной поглощаемой волны.
Слышащие бабочки добавляют активную защиту: пикируют или делают петли, услышав мышь рядом. Некоторые медведицы отвечают ультразвуковыми щелчками, мешая измерять расстояние. Уровни охоты используют три ступени. Лёгкий обходится без защиты. Обычный добавляет ослабление 5,6 dB и пике в случайном направлении при расстоянии меньше 1,2 м. Сложный добавляет щелчки к тем же чешуйкам и пике. Мышь промахивается в большинстве атак, как в опытах Aaron Corcoran и коллег. Быстрейший захват и минимум сигналов для каждого уровня сохраняются на устройстве.
Эхолокаторы, созданные человеком
Правило общее: расстояние равно скорости звука, умноженной на задержку и делённой на два. Различаются среда и частота. Датчик парковки работает около 48 кГц в воздухе, почти как Pipistrellus abramus при 47,5 кГц. У обоих длина волны около 7 мм. Датчик достигает 2,5–3 м, достаточно для бампера.
В воде звук идёт примерно со скоростью 1500 м/с. Эхо с 1 м возвращается за 1,33 мс вместо 5,83 мс в воздухе. Обыкновенные морские свиньи щёлкают около 130 кГц, с длиной волны около 11,5 мм в морской воде. Медицинский ультразвук использует 1–20 МГц, принимая скорость в мягких тканях за 1540 м/с. При 5 МГц получается около 0,31 мм. Поэтому видны мелкие структуры, но не на неограниченной глубине. Таблица сравнивает эти четыре примера.
Крыло из кисти
Нажмите Кости крыла, чтобы увидеть скелет под кожей. Крыло состоит из плеча, длинного предплечья, короткого большого пальца с когтем и четырёх очень длинных пальцев. Кожа натянута между пальцами, от пятого пальца к ноге, перед рукой, а также между ногами и хвостом. Хрящевой вырост у голеностопа держит край перепонки. В модели кисть складывается при взмахе вверх и раскрывается при взмахе вниз. Длины костей модельные, масштабированы под большого бурого кожана с размахом около 32 см.
Вопросы
Слышат ли люди летучих мышей?
Большинство криков летучих мышей выше 20 кГц, за пределами человеческого слуха. Некоторые виды кричат ниже: пятнистая летучая мышь кричит на 9–12 кГц, и многие люди её слышат. Мыши издают и более низкие социальные сигналы. С помощью детектора летучих мышей можно услышать остальное.
Слепы ли летучие мыши?
Нет. У летучих мышей работающие глаза, а крыланы видят особенно хорошо. Эхолокация добавляет чувство, которое работает в полной темноте и точно на малых расстояниях.
Как далеко летучая мышь слышит с помощью эха?
Это зависит от размера цели и частоты. В модели на этой странице бабочка обнаруживается примерно до 3,5 м на 35 кГц, а скальная стена примерно до 8 м. Более крупные предметы и более низкие частоты достают дальше.
Почему летучие мыши не путают своё эхо с криками других мышей?
Они часто слегка сдвигают частоту крика от частоты соседей и слушают эхо с той задержкой, которую ожидают. В тесных пещерах это всё равно трудно, а некоторые мыши намеренно глушат соперников, когда гонятся за одним насекомым.
Почему эхо гораздо тише крика?
Крик расходится по пути к цели, а эхо снова расходится на обратном пути, теряя 12 dB при каждом удвоении расстояния. Сверх того воздух поглощает звук, а маленькое насекомое отражает лишь крошечную часть дошедшего до него звука.
Все ли летучие мыши пользуются эхолокацией?
Почти все насекомоядные мыши. Большинство крыланов Старого Света долго считали неспособными к ней, но нильский крылан щёлкает языком, а в 2014 году выяснилось, что ещё два вида крыланов воспринимают предметы в темноте с помощью щелчков, издаваемых крыльями.
Что такое финальное жужжание?
Последняя часть атаки, когда частота криков поднимается выше 160 в секунду, а каждый крик длится меньше миллисекунды. Мышь получает свежие сведения о положении насекомого каждые несколько миллисекунд.
Почему пруд выглядит дырой на эхо-карте?
Гладкая вода отбрасывает крик, как зеркало, поэтому эхо почти не возвращается. Мыши принимают это за признак воды и пытаются пить с любой гладкой плиты.
Звуки на этой странице взяты у настоящих летучих мышей?
Нет. Они синтезированы по форме крика каждого вида и замедлены в число раз, равное замедлению на сцене, что понижает тон во столько же раз. Так детекторы летучих мышей с растяжением времени делают крики слышимыми.
Дельфины и летучие мыши пользуются эхолокацией одинаково?
Принцип тот же, и обе группы развили его независимо. Дельфины работают в воде, где звук примерно в 4,4 раза быстрее, поэтому их эхо возвращается с того же расстояния раньше. Их щелчки намного короче большинства криков летучих мышей.
Почему один вид звучит по-разному в Корее и Британии?
Частота различается между популяциями. Большой подковонос издаёт около 82 кГц в Британии и 66–72 кГц в Корее, причём на Чеджу выше, чем на материке. Работа не устанавливает причину: значения каталога лучше читать как региональные средние.
Что делает детектор летучих мышей?
Он делает ультразвук слышимым. Гетеродин воспроизводит разность с настроенным тоном, деление частоты делит каждую частоту на фиксированное число в реальном времени, а растяжение времени записывает и воспроизводит в несколько раз медленнее. Панель позволяет услышать три метода на одной охоте.
Могут ли бабочки скрыться?
Отчасти. Чешуйки тела и крыльев поглощают ультразвук, ослабляя эхо на несколько децибел и сокращая дальность обнаружения. Слышащие бабочки также пикируют, а некоторые медведицы мешают сонару щелчками.
Термины
Эхолокация: поиск предметов с помощью издаваемого звука и анализа эха.
Задержка эха: время между криком и его эхом. Расстояние = скорость звука × задержка ÷ 2.
Ультразвук: звук выше примерно 20 кГц, за пределами человеческого слуха.
ЧМ-крик: крик, быстро идущий от высокой частоты к низкой, хорош для измерения расстояния.
Крик с постоянной частотой (ПЧ): крик почти постоянной частоты, хорош для обнаружения трепещущих крыльев и сдвигов Доплера.
Финальное жужжание: очень быстрые крики в конце атаки.
Доплеровский сдвиг: изменение частоты, когда движется источник или отражатель.
Сила цели: сколько звука отражает цель, в децибелах.
Козелок: небольшой выступ перед входом в ухо летучей мыши.
Растяжение времени: запись ультразвука и замедленное воспроизведение, понижающее все частоты в одинаковое число раз.
Гетеродин: смешение сигнала с настроенным тоном, чтобы разность частот стала слышимой.
Компенсация Доплера: снижение частоты в полёте, возвращающее эхо к опорной частоте.
Акустический камуфляж: чешуйки или мех, поглощающие звук и ослабляющие эхо добычи.
Источники
Все адреса проверены 17 октября 2026 года. Страницы PubMed отвечают на curl кодом HTTP 203 и полной страницей.
- Annemarie Surlykke and Elisabeth K. V. Kalko, Echolocating bats cry out loud to detect their prey. PLoS ONE 3 (2008), e2036. Source levels 122 to 134 dB SPL, above 140 dB for Noctilio. https://pmc.ncbi.nlm.nih.gov/articles/PMC2323577/
- Coen P. H. Elemans, Andrew F. Mead, Lasse Jakobsen and John M. Ratcliffe, Superfast muscles set maximum call rate in echolocating bats. Science 333 (2011), 1885 to 1888. https://pubmed.ncbi.nlm.nih.gov/21960635/
- John M. Ratcliffe, Coen P. H. Elemans, Lasse Jakobsen and Annemarie Surlykke, How the bat got its buzz. Biology Letters 9 (2013). https://pmc.ncbi.nlm.nih.gov/articles/PMC3639754/
- Lasse Jakobsen, John M. Ratcliffe and Annemarie Surlykke, Convergent acoustic field of view in echolocating bats. Nature 493 (2013), 93 to 96. https://www.nature.com/articles/nature11664
- James A. Simmons, The resolution of target range by echolocating bats. Journal of the Acoustical Society of America 54 (1973), 157 to 173. https://pubmed.ncbi.nlm.nih.gov/4738624/
- Brian D. Lawrence and James A. Simmons, Measurements of atmospheric attenuation at ultrasonic frequencies and the significance for echolocation by bats. J. Acoust. Soc. Am. 71 (1982), 585 to 590. https://pubmed.ncbi.nlm.nih.gov/7085967/
- Stefan Greif and Björn M. Siemers, Innate recognition of water bodies in echolocating bats. Nature Communications 1 (2010), 107. https://pmc.ncbi.nlm.nih.gov/articles/PMC3060641/
- Aaron J. Corcoran, Jesse R. Barber and William E. Conner, Tiger moth jams bat sonar. Science 325 (2009), 325 to 327. https://pubmed.ncbi.nlm.nih.gov/19608920/
- Aaron J. Corcoran and William E. Conner, Bats jamming bats: food competition through sonar interference. Science 346 (2014), 745 to 747. https://pubmed.ncbi.nlm.nih.gov/25378624/
- Jesse R. Barber and others, Moth tails divert bat attack: evolution of acoustic deflection. PNAS 112 (2015), 2812 to 2816. https://pmc.ncbi.nlm.nih.gov/articles/PMC4352808/
- Hannah M. ter Hofstede and John M. Ratcliffe, Evolutionary escalation: the bat-moth arms race. Journal of Experimental Biology 219 (2016), 1589 to 1602. https://pubmed.ncbi.nlm.nih.gov/27252453/
- Alan D. Grinnell, Early milestones in the understanding of echolocation in bats. Journal of Comparative Physiology A 204 (2018), 519 to 536. https://pubmed.ncbi.nlm.nih.gov/29687162/
- Peter T. Madsen and Annemarie Surlykke, Functional convergence in bat and toothed whale biosonars. Physiology 28 (2013), 276 to 283. https://pubmed.ncbi.nlm.nih.gov/23997187/
- Bertel Møhl and others, The monopulsed nature of sperm whale clicks. J. Acoust. Soc. Am. 114 (2003), 1143 to 1154. https://pubmed.ncbi.nlm.nih.gov/12942991/
- Signe Brinkløv, M. Brock Fenton and John M. Ratcliffe, Echolocation in oilbirds and swiftlets. Frontiers in Physiology 4 (2013), 123. https://pmc.ncbi.nlm.nih.gov/articles/PMC3664765/
- Björn M. Siemers and others, Why do shrews twitter? Communication or simple echo-based orientation. Biology Letters 5 (2009), 593 to 596. https://pmc.ncbi.nlm.nih.gov/articles/PMC2781971/
- Lore Thaler, Stephen R. Arnott and Melvyn A. Goodale, Neural correlates of natural human echolocation in early and late blind echolocation experts. PLoS ONE 6 (2011), e20162. https://pmc.ncbi.nlm.nih.gov/articles/PMC3102086/
- Liam J. Norman, Caitlin Dodsworth, Denise Foresteire and Lore Thaler, Human click-based echolocation: effects of blindness and age, and real-life implications in a 10-week training program. PLoS ONE 16 (2021), e0252330. https://pmc.ncbi.nlm.nih.gov/articles/PMC8171922/
- Yossi Yovel, Michal Geva-Sagiv and Nachum Ulanovsky, Click-based echolocation in bats: not so primitive after all. J. Comp. Physiol. A 197 (2011), 515 to 530. https://pubmed.ncbi.nlm.nih.gov/21465138/
- Animal Diversity Web (University of Michigan), Eptesicus fuscus: FM calls of 1 to 5 ms from 50 to 25 kHz. https://animaldiversity.org/accounts/Eptesicus_fuscus/
- Animal Diversity Web, Euderma maculatum: calls of 9 to 12 kHz. https://animaldiversity.org/accounts/Euderma_maculatum/
- Bat Conservation Trust, Greater horseshoe bat: almost constant frequency call of about 82 kHz. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/greater-horseshoe
- Bat Conservation Trust, Brown long-eared bat (the whispering bat). https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/brown-long-eared-bat
- Hans-Ulrich Schnitzler and Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. J. Comp. Physiol. A 197 (2011), 541 to 559. https://www.ebi.ac.uk/europepmc/webservices/rest/search?query=EXT_ID:20857119&format=json&resultType=core
- Arjan Boonman, Sara Bumrungsri and Yossi Yovel, Nonecholocating fruit bats produce biosonar clicks with their wings. Current Biology 24 (2014), 2962 to 2967. https://pubmed.ncbi.nlm.nih.gov/25484290/
- NASA Glenn Research Center, Speed of Sound. https://www.grc.nasa.gov/www/k-12/airplane/sound.html
- NOAA Ocean Service, What is sonar? https://oceanservice.noaa.gov/facts/sonar.html
- National Institute of Biomedical Imaging and Bioengineering, Ultrasound. https://www.nibib.nih.gov/science-education/science-topics/ultrasound
- Bosch Mobility, Ultrasonic sensor: detection range 15 cm to 5 m. https://www.bosch-mobility.com/en/solutions/sensors/ultrasonic-sensor/
- Поглощение звука в воздухе: ISO 9613-1:1993, Acoustics, attenuation of sound during propagation outdoors, part 1 (формула, использованная в модели).
- Источники для каждого животного и машины в списке под сценой даны ссылками на их карточках.
- Dai Fukui, David A. Hill, Sun-Sook Kim and Sang-Hoon Han, Echolocation call structure of fourteen bat species in Korea. Animal Systematics, Evolution and Diversity 31 (2015), 160 to 175. Appendix 1 gives every recording. https://accesson.kr/ased/v.31/3/160/56358
- National Institute of Biological Resources, National Species List of Korea (2019), Chiroptera. https://www.nibr.go.kr/aiibook/catImage/21/National%20Species%202.pdf
- Paolo Agnelli and colleagues (editors), Guidelines for bat monitoring. Quaderni di Conservazione della Natura 19 bis, Italian Ministry of the Environment and ISPRA (2004). Heterodyne, frequency division and time expansion. https://www.isprambiente.gov.it/files/pubblicazioni/quaderni/conservazione-natura/files/6732_19bisEngChirotteri_completo.pdf
- Hans-Ulrich Schnitzler and Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. Journal of Comparative Physiology A 197 (2011), 541 to 559. https://pubmed.ncbi.nlm.nih.gov/20857119/
- Thomas R. Neil and colleagues, Thoracic scales of moths as a stealth coating against bat biosonar. Journal of the Royal Society Interface 17 (2020), 20190692. https://pubmed.ncbi.nlm.nih.gov/32093539/
- Thomas R. Neil and colleagues, Moth wings are acoustic metamaterials. PNAS 117 (2020), 31134 to 31141. https://pmc.ncbi.nlm.nih.gov/articles/PMC7733855/
- Bat Conservation Trust, species pages for Natterer's bat, the whiskered bat, the barbastelle, Leisler's bat, Nathusius' pipistrelle, the grey long-eared bat and the Alcathoe bat. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats
- Line A. Kyhn and colleagues, Clicking in a killer whale habitat: narrow-band, high-frequency biosonar clicks of harbour porpoise and Dall's porpoise. PLOS ONE 8 (2013), e63763. https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0063763
- StatPearls (NCBI Bookshelf), Ultrasound Physics and Instrumentation. Clinical frequencies 1 to 20 MHz, 1,540 m/s in soft tissue. https://www.ncbi.nlm.nih.gov/books/NBK570593/
- NOAA National Ocean Service, Basics of Underwater Sound. 1,500 m/s in sea water. https://cdn.oceanservice.noaa.gov/oceanserviceprod/about/environmental-compliance/final-fact-sheets/NOS%20Final%20PEIS_Fact%20Sheet_Basics%20of%20Underwater%20Sound.pdf
- Bosch, Ultrasonic sensor (Gen. 4) for parking aid systems, key data sheet. About 48 kHz, range up to 2.5 to 3 m. https://hexagondownloads.blob.core.windows.net/public/AutonomouStuff/wp-content/uploads/2019/05/Neobotix_Ultrasonic_sensors_whitelabel.pdf
Текст и симуляция: CC BY-NC-SA 4.0, если не указано иное.
Маршрут 3 из 6
Свет и звукДругие экспонаты
Как работает музыкальная шкатулка: гребёнка, валик, пружина
Стальной зубец длиной 30,6 мм звучит на 261,6 Гц, а если укоротить его вдвое, нота поднимется на две октавы.
Как работает рояль: механика молоточка и равномерный строй
Нажмите клавишу на 10 миллиметров: фетровый молоточек взлетит к струне, ударит её и отскочит раньше, чем успеет заглушить звук.
Как виниловая пластинка хранит звук
У внешнего края долгоиграющей пластинки канавка бежит под иглой со скоростью полметра в секунду, а к последней песне замедляется до 21 сантиметра.

Почему секвойя такая большая: рост и вода в лесу гигантов
Встаньте у основания General Sherman Tree высотой 83,8 м и возрастом около 2200 лет, поднимитесь по стволу и узнайте, как сильно натянута вода наверху.
Зрение животных: мир глазами 69 животных
Красный мяч на зелёной траве легко найти вам и неожиданно трудно собаке. Медоносная пчела видит на том же цветке узор, недоступный вам.
Как бежит лошадь: сравните шаг, рысь, кентер и галоп
В 1878 году камеры Muybridge показали, что лошадь на галопе отрывает все четыре ноги от земли, собрав их под телом. Некоторые быстрые животные вообще не отрываются от земли.