図 86感覚館
コウモリはなぜ暗闇で飛べる?エコーロケーションのしくみ
1 m 先のガから返るエコーは、千分の 6 秒足らずでコウモリに戻ります。この遅れで、コウモリは距離を知ります。
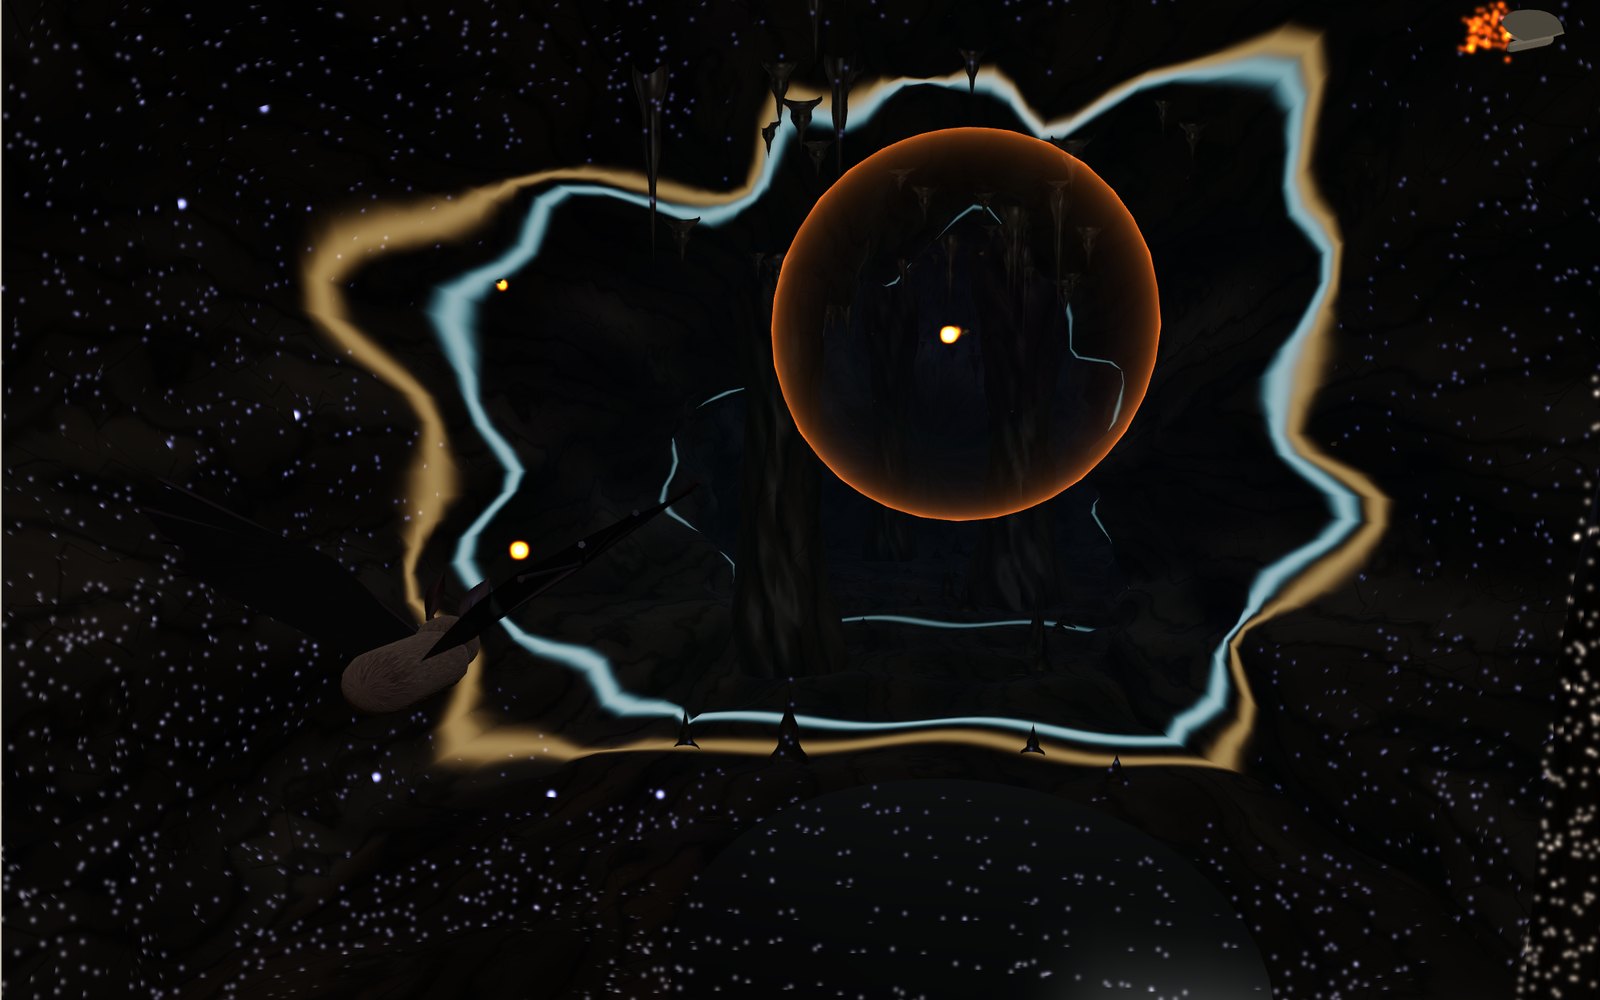
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 10 光のない洞窟この洞窟に光はありません。コウモリは一回鳴きました。明るい殻は 343 m/s で広がっていく音です。「鳴く」を押してもう一度鳴かせるか、この手順に沿って進めてください。
ドラッグで回転、ホイールか二本指で拡大します。
暗い廊下で手をたたく
目を閉じて、長くて何もない廊下の真ん中で一度手をたたいてみましょう。たたいた音のあと、少し遅れてかすかな音が返ってきて、奥の壁までのおおよその距離がわかります。コウモリは、人間には高すぎて聞こえない音で、これを一分間に何百回も行います。しかも、真っ暗な中で飛んでいるガを捕まえられるほど正確にです。
これがエコーロケーション(反響定位)です。音を出し、戻ってくる音を聞いて、ものがどこにあり、どんな性質かを割り出します。この展示では、光がまったくない石灰岩の洞窟に立ちます。オオクビワコウモリが鳴くと、その声が洞窟に広がり、壁、石柱、しずく、虫にはね返って戻ってくる様子が見えます。エコーがコウモリに届くと、光る点になります。数秒たつと点が集まって洞窟の絵になり、その絵がコウモリの持つ唯一の「景色」です。
舞台の使い方
「鳴く」を押すと、コウモリが一回鳴きます。明るい殻は音の先端で、コウモリが向いている方向ほど明るく描かれます。殻が固いものに触れると、そこから琥珀色の殻が戻り始め、エコーがコウモリに着くとエコー地図に点が現れます。暖色の点は近く、青い点は遠く、オレンジの点はガです。点は「エコーの記憶」スライダーで決めた時間がたつと薄れます。
舞台の下のボタンで、スロー再生の倍率を決めます。空気中の音は一秒に 343 m 進むので、そのままでは声もエコーも一瞬で終わってしまいます。100 倍遅くすると、声は秒速約 3.4 m で進みます。「ガを追う」を押すと、コウモリは一番近いガを実際の飛ぶ速さで追い始めます(表示は 10 倍遅い)。近づくにつれ、鳴く回数は自然に増えます。
「操作」ペインでは、コウモリの種類を変え、追跡の段階を手で決め、自動で鳴くのを止め、音を出し、ガのエコーのドップラー効果を表示し、ガにソナーを妨害させ、ランプをつけ、ソナービームを表示できます。操作の下にあるエコー計算機は、この解説の計算を、どんな距離、気温、周波数でも行います。舞台の下には、エコーでものを見つける動物や機械が 34 件並んでいます。
遅れから距離を知る
エコーロケーションの中心にある決まりは短いものです。音の速さはわかっています。声を出してから時間 t たってエコーが着いたなら、音は対象まで行って戻ってきたので、対象までの距離は
距離 = 音速 × t ÷ 2
です。乾いた空気中の音速は気温で決まります。1.4 × 287.05 × T の平方根で、T は絶対温度 (K) です。20 °C では 343.2 m/s、0 °C では 331.3 m/s、30 °C の夏の夜では 349.0 m/s になります。寒い洞窟のコウモリと暖かい草原のコウモリは、約 5% ずれた物差しで暮らしています。
343.2 m/s として、エコーの遅れは次のようになります。
| 距離 | エコーの遅れ |
|---|---|
| 10 cm | 0.58 ms |
| 1 m | 5.83 ms |
| 3 m | 17.48 ms |
| 5 m | 29.14 ms |
| 10 m | 58.27 ms |
| 20 m | 116.54 ms |
つまり、コウモリの 10 m 先の石柱は約千分の 58 秒で返事をし、3 m 先のガは約千分の 17 秒で返事をします。遅れが 1 マイクロ秒違っても、距離では 0.17 mm の差にすぎません。コウモリがそこまで細かい時間を使えるわけではありませんが、1970 年代のジェームズ・シモンズの実験では、訓練されたオオクビワコウモリが、エコーの遅れだけで二つの標的のどちらが近いかを答えました。
舞台の時間は本物です。どの点も、エコーが着くはずの瞬間に、スロー再生の倍率をかけて描かれます。声がトンネルの奥に届くのを見ていると、遠い点が最後に光ります。
なぜ声はこんなに高いのか
コウモリの声の多くは超音波で、人間の聴力の限界の約 20 kHz を超えています。舞台のオオクビワコウモリは、数ミリ秒で約 50 kHz から 25 kHz まで下がる声を出します。コモンアブラコウモリは 45 kHz 付近がもっとも強く、キクガシラコウモリは 82 kHz 付近の一定の音を保ちます。
理由は波の大きさにあります。波長は音速を周波数で割ったものです。10 kHz では 34 mm、35 kHz では約 10 mm、82 kHz では約 4 mm になります。波長よりずっと小さな対象は波をほとんど乱さず、ほんの少ししか返しません。小さな球からのエコーは、大きさと波長の比のおよそ 4 乗で弱くなります。蚊の体長は数 mm です。蚊から強いエコーを得るには、数 mm の波長が必要です。
高い周波数には代償もあります。空気は音を吸収し、高い周波数ほどよく吸収します。空気中の吸収の標準的な式 (ISO 9613-1) を、20 °C、湿度 50% で使うと、損失は 10 kHz で 1 m あたり約 0.16 dB、20 kHz で 0.52 dB、35 kHz で 1.13 dB、82 kHz で 2.67 dB、100 kHz で 3.28 dB です。エコーはこの代償を、行きと帰りの二度払います。100 kHz では、5 m 先の対象で空気だけで 33 dB を失います。
「コウモリ」スライダーをオオクビワコウモリからキクガシラコウモリに回して、エコー地図を見てください。高い一定音は、鋭いけれど届く範囲の短い地図を描きます。9〜12 kHz で鳴くマダラコウモリに回すと、地図はトンネルの奥まで届きますが、点はどれもぼんやりします。
どれだけ大きな声で、どこまで届くか
コウモリは大声です。アンネマリー・スルリッケとエリザベス・カルコがパナマで録音した野外データでは、開けた場所で狩りをするコウモリの音源レベルは、口の前 10 cm で 122〜134 dB SPL でした。水面で狩りをする二種は平均約 137 dB で、140 dB を超えるものもありました。私たちに聞こえないのは、高すぎるからにすぎません。
それだけの音量が必要なのです。四方に広がる音は、距離が二倍になるたびに 6 dB 弱くなります。エコーも帰り道でもう一度広がるので、往復では距離が二倍になるごとに 12 dB 弱くなります。ガは、当たった音のごく一部しか返しません。舞台のモデルは次のソナー方程式を使います。
エコーのレベル = 音源レベル − 40 log₁₀(r ÷ 0.1 m) − 2 × 吸収 × r + 標的強度
10 cm で 120 dB の声、ガの標的強度 −30 dB、聴こえるしきい値 20 dB を置くと、モデルのコウモリがガを聞き取れるのは、35 kHz で約 3.5 m、50 kHz で 3.1 m、82 kHz で 2.6 m までです。岩壁ははるかに強く返すので、35 kHz で約 8 m まで聞こえます。これはモデルの数字ですが、野外の様子と合っています。獲物は数 m で見つかり、壁や木はその何倍も遠くで見つかります。スルリッケとカルコは、いちばん大声のコウモリが最も高い周波数を使っていることにも気づきました。それで、ほかのコウモリとの探知距離の差が小さくなるようです。
舞台の表示の「ガが聞こえる距離」は、選んだコウモリについてのこのモデル上の距離です。ガがエコー地図でオレンジになるのは、この範囲の中に入ったときだけです。
探索、接近、ターミナルバズ
1960 年ごろ、ドナルド・グリフィンたちは、虫を狩るコウモリを録音して、声が決まった順序で変わることを見つけました。探索中のオオクビワコウモリは毎秒約 10 回、数ミリ秒の声を出します。この段階では、多くのコウモリが羽ばたき一回につき一回鳴くので、羽ばたきと呼吸と鳴くリズムが同じになります。虫を見つけると接近の段階に入り、声は短く、回数は多くなります。最後の数百ミリ秒がターミナルバズで、鳴く回数は毎秒 160 回を超え、声は一ミリ秒よりずっと短くなります。
理由の一部は単純なタイミングです。コウモリはふつう、気にしているエコーが戻るのを待ってから次の声を出し、声とエコーが重ならないようにします。5 m 先ならエコーは 29 ms かかるので、毎秒せいぜい約 34 回です。1 m なら 5.8 ms で、172 回まで可能です。50 cm なら 343 回です。獲物が近いほど速く鳴けて、ガがどこへ動いたかをそれだけ頻繁に知ることができます。
それだけではありません。2011 年にコーエン・エレマンスたちは、コウモリの喉に、哺乳類で最速級の超高速筋があり、鳴く回数の上限は、エコーの重なりだけでなく、この筋肉がどれだけ速く動けるかで決まることを見つけました。「追跡の段階」スライダーを「ターミナルバズ」にすると、殻が入れ子になるほど速く湧き出します。
どの方向か: 二つの耳
距離は時間から決まり、方向は二つの耳の比べ合わせから決まります。右からのエコーは、右耳に左耳より少し早く、少し大きく届きます。頭が遠い方の耳をさえぎるからです。モデルの耳の間隔は約 1.6 cm で、真横からのエコーの時間差は最大で約 47 マイクロ秒です。正面から 10 度ずれたエコーでは約 8 マイクロ秒です。表示には、ガについてのこの差が出ます。
上下はもっと難しくなります。二つの耳が同じ高さにあるからです。ここでは外耳の形が助けになります。耳の穴の前の小さな突起、耳珠が、耳の中に自分の小さなエコーを加え、その細かいエコーのタイミングが、音が上から来たか下から来たかで変わります。コウモリは声と声のあいだに頭や耳を動かし、声のたびに少しずつ違う角度から景色を聞きます。舞台のコウモリも声のあいだに頭を少し回し、それで地図が埋まっていきます。
ドップラー効果: ガは近づいているか
コウモリが壁に向かって飛ぶと、声の波の山は、前の山より少し近い位置から出ていくので、壁は少し高い周波数で受け取ります。壁はその音を、まだ近づいている最中のコウモリに返すので、周波数はもう一度上がります。静止した対象に速さ v で飛んでいくコウモリが受け取るエコーは、
f × (c + v) ÷ (c − v)
になります。4 m/s では、82 kHz の声が約 83.9 kHz で戻り、2 kHz 近く高くなります。対象も動いているなら、その速さも同じように加わります。「ドップラー効果」をつけると、表示にガのエコーの周波数と、声からどれだけずれているかが出ます。
キクガシラコウモリはこれをとことん使います。声は長くてほぼ一定の音で、聴覚には、エコーの周波数付近に、音響的な中心窩とも呼ばれる、非常に鋭く調整された狭い帯域があります。前へ飛ぶとき、ドップラーでずれたエコーがその帯域にちょうど入るよう、声を少し下げます。4 m/s なら約 80.1 kHz で鳴き、エコーが 82 kHz 付近で戻ります。この安定した音を背景にすると、虫の羽ばたきがエコーの高さや大きさのちらつきとして現れ、動かない葉の中で羽ばたくガを見分けられます。「コウモリ」スライダーでキクガシラコウモリを選ぶと、数字が見えます。
エコーが語る表面の性質
ざらざらした岩は音をあらゆる方向に散らします。ビームが当たった場所からは必ず一部がまっすぐ戻るので、洞窟の壁は点で埋まります。なめらかな面は、反対に鏡のようにふるまいます。声は入ってきたのと同じ角度ではね返って遠ざかり、コウモリの真下にある水面の部分だけがエコーを返します。
舞台の水たまりが、エコー地図で暗いままなのはこのためです。2010 年にシュテファン・グライフとビョルン・ジーマースは、コウモリが音響的になめらかで大きな面を水だとみなすことを示しました。15 種の野生のコウモリが、金属、木、プラスチックのなめらかな板から水を飲もうとし、板がはっきり見える状態でも同じでした。水を見たことのない若いコウモリも同じ行動をしたので、この決まりは生まれつきと考えられます。舞台では、水たまりは地図の穴として現れ、コウモリの真下にだけ明るい点が一つ出ます。
ガも反撃する
ガは数千万年のあいだコウモリに狩られてきたので、多くの対抗策を持っています。ガの大部分は、コウモリの声を聞く耳を持っています。声が大きくなると、急降下し、宙返りし、地面に落ちます。コウモリの側も、ガの耳に聞こえにくい周波数で鳴いたり、とても小さな声で鳴いたりするものがいます。イギリスでは、チャイロミミナガコウモリが「ささやきコウモリ」と呼ばれています。
ヒトリガの中には、やり返すものがいます。2009 年にアーロン・コーコラン、ジェシー・バーバー、ウィリアム・コナーは、暗闇でオオクビワコウモリがヒトリガの一種 Bertholdia trigona を襲う様子を撮影しました。コウモリがターミナルバズに入ると、ガは超音波のクリックを密に連ねて出し、コウモリは外しました。クリックは、ガまでの距離についてコウモリを混乱させるようです。「ガがソナーを妨害」をつけて追跡を始めると、ガのエコーはまちがった距離の赤い点としてにじみ、このモデルではコウモリはたいてい行き過ぎます。
オナガミズアオは別の手を使います。長い後翅の尾が飛ぶとき回転し、自分のエコーを返します。バーバーたちの実験では、コウモリは攻撃の半分以上で尾を狙い、尾のあるガは尾のないガより約 47% 多く生き残りました。コウモリ同士も妨害します。メキシコオヒキコウモリは同じ虫を追うとき、特別な声を出して相手を外させます。
ほかのエコーロケーションをする動物
コウモリはいちばん有名ですが、唯一ではありません。イルカやネズミイルカを含むハクジラ類は、水中でエコーロケーションをします。水中の音は空気中の約 4.4 倍の速さです。クリックは短く、とても大きな音です。ベルテル・モールたちが記録したマッコウクジラの正面のクリックは 236 dB re 1 µPa に達し、動物が出した音で最大です。ピーター・マドセンとアンネマリー・スルリッケは、コウモリとハクジラのソナーが、別々に進化したのにどれだけ似通っているかを示しました。
鳥にも二種類の仲間がいます。南米のアブラヨタカは夜に果実を食べ、洞窟の奥に巣を作ります。インド太平洋のアナツバメも暗い洞窟に巣を作ります。どちらも人間に聞こえるくらい低いクリックを使い、遠くまで届きますが、細かいことはわかりにくくなります。トガリネズミは、ものが散らかった場所を探るときによくさえずり、録音からは、その声が近い距離で使えるエコーになることがうかがえます。エコーロケーションをしないと長く考えられていた一部のオオコウモリも、翼で出したクリックで暗闇を進みます。
エコーロケーションをする人間
視覚障害者の中には、口のクリックでエコーロケーションをする人がいます。2011 年にロア・ターラー、スティーブン・アーノット、メルヴィン・グッデイルは、視覚障害の達人二人が、自分のクリックとエコーの録音を聞いているときの脳を調べました。エコーは、聴覚の追加の部分ではなく、ふだん視覚を担当する脳の部分を活性化しました。2021 年にダラム大学で行われた訓練研究では、21〜79 歳の視覚障害者と晴眼者が、十週間に 20 回の練習でクリックのエコーロケーションを身につけました。どちらのグループも大きく上達し、年齢も視覚障害も、上達の速さを制限しませんでした。
人間のクリックは数 kHz なので、波長は約 10 cm です。壁、戸口、停まっている車は感じ取れますが、ガは感じ取れません。
同じことをする機械
船はソナーを使います。決まりはコウモリと同じで、音速が水中の約 1,500 m/s になるだけです。10 m 下の海底からのエコーは約 13 ms で戻ります。医療用超音波は、メガヘルツ帯の音を体内に送り、ミリメートルの波長で臓器や心臓の輪郭を映します。車のバンパーの駐車センサーは超音波を使ってエコーの時間を測り、約 15 cm から 5 m の障害物を見つけます。
小さな歴史
1790 年代、ラッツァーロ・スパランツァーニは、目をふさいだコウモリでも物にぶつからずに飛ぶことを見つけ、ルイ・ジュリーヌは、耳をふさぐと飛べなくなることを示しました。コウモリは無音に見えたので、だれも仕組みを説明できませんでした。答えは、超音波を拾えるマイクの登場を待つ必要がありました。1938 年、当時ハーバード大学の学生だったドナルド・グリフィンは、超音波検出器をつくった物理学者ジョージ・ピアースのところへコウモリを連れて行きました。グリフィンはロバート・ガランボスと、コウモリが超音波のパルスを出し、そのエコーで障害物をよけることを示し、1944 年にこの能力をエコーロケーションと名づけました。
モデルが単純にしている点
舞台のコウモリは、追跡のあいだ以外は同じ場所にいるので、まわりから眺められます。本物のコウモリは探索飛行中、止まりません。洞窟はなめらかな数学的な形でできていて、エコーは同じ形の中を通る数百本の光線を追って求めています。本物の音は波で、光線の束ではありません。縁で回り込み、エコーは重なって干渉します。エコーの強さは、岩に固定した標的強度を持つ簡単なソナー方程式から出していて、聴こえるしきい値は一つの数字です。
ガは点として扱っています。本物のガのエコーは羽ばたきのたびに変わり、これがコウモリが虫を見分ける手がかりの一部です。妨害のモデルは、Bertholdia trigona について報告された結果、つまりガのエコーがまちがった距離に現れる、という絵にすぎません。聞こえる音は、声を絵と同じ倍率で遅くしたものなので、100 倍遅い 40 kHz の声は 400 Hz で聞こえます。野外用のバットディテクターも同じ方法を使い、これをタイムエクスパンションと呼びます。
一ミリ秒のエコーを読む
空気が静止していて、音速を 343 m/s に丸めるとします。エコーの遅れが 1 ms なら、音の通った道の全長は 343 × 0.001 = 0.343 m です。その半分が行きの道なので、反射したものまでは 0.1715 m、約 17 cm です。帰りの道を忘れると、距離が二倍になります。この例は、エコーが対象から直接戻ってくると仮定しています。別の壁で反射してから戻る反射は道が長く、同じ直線距離としては読めません。
この距離の式に周波数は入りません。同じ気温なら、40 kHz の声も 82 kHz の声も、同じ対象までの往復時間はほぼ同じです。違うのは波長です。丸めた音速で 343 ÷ 40,000 = 0.008575 m、約 8.6 mm です。この数字は波の山の間隔であって、コウモリが検出できる虫の最小の長さではありません。もっと小さな虫でもエコーは返ります。コウモリに聞こえるかどうかは、向き、反射する面、距離、背景の雑音で決まります。攻撃のあいだは虫の翅も動きます。固定した球を対象にする計算は便利な目安であって、虫の見分け方のルールではありません。
エコー計算機で、気温を 20 °C、声の周波数を 40 kHz、対象までの距離を 1 m にしてください。表示される音速は上の丸めた 343 m/s ではなく気温の式から出すので、約 5.83 ms と 8.6 mm が出ます。距離を二倍にすると遅れは二倍になり、波長は変わりません。周波数を上げると、波長と吸収は変わりますが、遅れは二倍になりません。これらは別々の効果で、明るいエコーの絵一枚では見分けにくくなります。
最後のバズは速い探索の声ではない
ラトクリフたちの総説「How the bat got its buzz」は、攻撃中の音の数だけでなく、もっと多くを論じています。コウモリの中には、バズの後半で基本周波数を下げるものがいます。口の開きが同じなら、周波数が低いと出ていくビームは広がります。近い距離では、虫が少し横に動くだけで狭いビームから外れてしまうので、音の視野が広いと、逃げる獲物を追い続けやすくなります。これは、小さな対象には短い波長が有利という普通の利点とのトレードオフであって、それを否定するものではありません。
毎秒 200 回という例なら、1 ÷ 200 = 0.005 s、つまり声の始まりから次の始まりまで 5 ms です。343 m/s の音は、その間に約 0.86 m の距離を往復できます。これは理想的なタイミングの計算であって、狩りの射程を保証するものではありません。声の長さが間隔の一部を占め、周囲からのエコーも届き続け、喉の筋肉は緩んでまた縮まなければなりません。総説は、一部の種で毎秒約 220 回までの記録を報告しており、200 回がすべての種の上限というわけではありません。
舞台のターミナルバズは、目安として毎秒 170 回を使い、対象の遅れによる上限もつけています。そのため、ガが遠いと表示の回数は少なくなります。また、この段階ではビームを狭く描いていますが、研究が述べているのは特定の実在の種のバズでのビームの広がりです。殻は声の間隔を比べるために使い、すべてのコウモリが捕らえる前にビームを狭めると読み取らないでください。動く洞窟の絵は、種ごとの声の細かな変化を再現していません。
画面で条件をそろえて比べる
まず追跡せずに始めます。「エコー地図を消す」を押し、「鳴く」を押して、古い点が積もる前に戻ってくる最初の殻を目で追います。ランプをつけて、本物の洞窟の形と、不完全なエコー地図を比べます。点がないことは、岩がないことを意味しません。ビームが当たらなかったか、戻りが弱すぎたのかもしれません。これは、固いものを場面から動かすのとは別の話です。
二つ目の比べ方では、種類は変えず、エコー計算機で「対象までの距離」だけを変えます。「エコーの遅れ」と「重ならない最大の回数」を一緒に読んでください。距離が大きいほど遅れは長く、理想的な繰り返しの回数は少なくなります。計算機はガの実際の位置とは無関係で、距離を動かしてもガは動きません。計算機の数字を舞台の表示と比べるときは、この違いが大切です。
最後に、キクガシラコウモリを選び、またオオクビワコウモリに戻します。前者の設定は長い一定周波数の声、後者は短く下がる FM の声を表します。本物のキクガシラコウモリは、聴覚が狭く調整されていて、葉のまわりで羽ばたきによる変化を見つけやすく、広い帯域の FM の声は、近くの反射体についての時間の情報を与えます。強調点の違いであって、どちらかしか使えないわけではありません。本物のキクガシラコウモリの声にも、周波数が変わる部分があります。モデルが「一定の音」とするのは、その細部をわざと省いているからです。
韓国の 14 種とその声
舞台の下の図鑑は、Dai Fukui、David Hill、Sun-Sook Kim、Sang-Hoon Han が 2011〜2012 年に韓国で録音した 14 種から始まります。93 の発声列に含まれる 1129 パルスを解析し、各録音の最高・最低周波数、エネルギーが最も強い周波数、声の長さ、発声間隔の平均を公表しました。図鑑は録音ごとの平均を種別に平均し、最も強い周波数の録音間の範囲も示します。同種でもどの程度違うかがわかります。
声の形は 3 つです。キクガシラコウモリは長い一定音の両端に短い周波数変化をつけます。Myotis、Murina、Plecotus の 9 種は、1〜6 ms の短く急な下降音を出します。Eptesicus serotinus、Hypsugo alaschanicus、ユビナガコウモリ、アブラコウモリの 4 種は、急に下降してからほぼ一定になります。5 つの測定値で 76.4% を正しい種に分類できました。一定音と下降後に平らになる声は区別しやすい一方、Myotis 属の急下降音は大きく重なりました。
特徴的な結果が 2 つあります。ノレンコウモリのある録音では約 135 から 22 kHz へ、最大の 113 kHz 幅を下降しました。また、英国で約 82 kHz のキクガシラコウモリは韓国では 66〜72 kHz で、済州島は本土より高めでした。同種でも地域で約 12 kHz 違います。種の値は定数ではなく地域平均なのです。韓国名は国家生物種目録(2019)に従います。研究の Myotis formosus と Murina leucogaster は、同目録では Myotis rufoniger と Murina hilgendorfi です。
人がコウモリを聞く 3 つの方法
探知器は超音波を人に聞こえる音へ変えます。どの情報が残るかは方式次第です。Agnelli らのイタリアの調査指針(2004)は 3 方式を説明しています。
ヘテロダインは手で調整した音と声を混ぜ、差を再生します。設定から約 5 kHz 以内だけが聞こえるので、ダイヤルを回して声を探します。表示値は最も強い周波数に近くなります。安価でリアルタイムですが、元の長さや形は残りません。舞台で「ヘテロダイン」を選び、キクガシラコウモリの一定音付近に合わせてください。低い一定音が聞こえ、急下降音は範囲を短く通過します。
周波数分周は到着した音の周波数を一定比、ここでは 10 で割ります。すべてのコウモリを同時に聞き、時間関係を保てますが、最も強い部分だけが一定音量になり、倍音は失われます。時間伸長は高いサンプリング周波数で録音し、遅く再生します。指針では 40 kHz、5 ms の声を 10 倍に伸ばし、4 kHz、50 ms にする例を挙げています。形が残るため種の識別に使われますが、再生中は聞けません。2 秒の録音には 20 秒の聞けない時間が伴います。各方式で「再生」を押すと、同じ狩りの探索、接近、バズを聞き比べられます。
キクガシラコウモリが声を低くする理由
内耳には、静止時の声より少し高い狭い帯域に対応する、大きく発達した領域があります。Hans-Ulrich Schnitzler と Annette Denzinger は、網膜中心のよく見える部分になぞらえて聴覚中心窩と呼びます。飛ぶと前方からのエコーがドップラー効果で高くなり、そのままでは帯域を外れます。声を下げ、エコーを基準周波数へ戻します。
速度 v で静止した壁へ飛ぶと、エコーは f × (c + v) ÷ (c − v) になります。そのため声は f_ref × (c − v) ÷ (c + v) にします。5 m/s、韓国の基準 69.9 kHz なら約 67.89 kHz、約 2.9% 低下です。「ドップラー補償」で速度を決め、エコーが基準から 0.2 kHz 以内になるまで周波数を動かしてください。「コウモリに任せる」で正確な値が出ます。エコーを一定にすることで、虫の羽ばたきが加える周期的な変化を捉えられます。
小さな標的と波長
物体が波長を π で割った大きさ以上なら、音をよく散乱します。それ以下では弱い散乱となり、エコーは大きさと波長の比の 4 乗に従って弱まります。空気中の波長は 343 m/s を周波数で割った値で、20 kHz で 17 mm、50 kHz で 7 mm、110 kHz で 3 mm です。
虫を食べるコウモリが高い声を出す理由のひとつです。2 mm の小さな羽虫から十分なエコーを得るには、c ÷ (π × 2 mm)、約 54.6 kHz より高い周波数が必要です。低い声は遠くまで届きますが、小さな獲物を捉えにくくなります。標的を小さくして損失の増加を見た後、サイズ比が 1 になるまで周波数を上げてください。表示距離は、このページのソナー方程式で標的を面積に応じて換算したモデル値です。
音を吸い込む鱗粉
耳のないガも多く、受動的な防御に頼ります。Thomas Neil らは胸部の厚い鱗粉がある体と除いた体を測定しました。鱗粉は入射超音波の 32〜85% を吸収し、体のエコーを中央値で 5.6 dB 弱めました。別の研究では、薄い翼の鱗粉が音響メタマテリアルとして働くことを示しました。78 kHz で音の強さを最大 72% 吸収し、厚さは吸収する最長波長の 111 分の 1 です。
耳があるガは能動的にも防御します。近くのコウモリを聞くと急降下や宙返りをし、一部のヒトリガは超音波クリックで距離測定を妨害します。難易度はこの 3 段階を使います。「易しい」にはどの防御もありません。「普通」ではエコーが 5.6 dB 弱まり、1.2 m 以内で不規則な方向へ急降下します。「難しい」は同じ鱗粉と急降下にクリックを加え、Aaron Corcoran らの実験同様、攻撃の多くが失敗します。難易度別の最速捕獲と最少発声回数は端末に保存されます。
人が作ったエコー装置
規則は共通です。距離は音速 × 遅延 ÷ 2 です。違うのは媒質と周波数です。車の駐車センサーは空気中で約 48 kHz、アブラコウモリは 47.5 kHz で、どちらも波長は約 7 mm です。センサーの届く 2.5〜3 m は、バンパーには十分です。
水中の音速は約 1500 m/s です。1 m からのエコーは空気中の 5.83 ms でなく 1.33 ms で戻ります。ネズミイルカは約 130 kHz のクリックを出し、海水中の波長は約 11.5 mm です。医療用超音波は 1〜20 MHz を使い、軟組織の音速を 1540 m/s とします。5 MHz なら約 0.31 mm なので体内の細かな構造が見えますが、深くまで届くわけではありません。下の表でこの 4 つを比べられます。
手でできた翼
「翼の骨」で皮膚の下の骨格を見られます。上腕、長い前腕、爪のある短い親指、長い 4 本の指からできた手です。指の間、第 5 指と脚の間、腕の前、脚と尾の間に皮膚が張ります。足首の軟骨の突起が尾膜の縁を支えます。モデルの手は打ち上げ時に畳み、打ち下ろすと開きます。骨の長さは、翼開長約 32 cm のオオクビワコウモリに合わせたモデル値です。
よくある質問
人間にコウモリの声は聞こえますか
コウモリの声の多くは 20 kHz を超え、人間の聴力の外にあります。もっと低く鳴く種もいて、マダラコウモリは 9〜12 kHz で鳴き、多くの人に聞こえます。コウモリは低い社会的な声も出します。バットディテクターを使えば、残りも聞けます。
コウモリは目が見えないのですか
いいえ。コウモリの目は働いていて、特にオオコウモリはよく見えます。エコーロケーションは、完全な暗闇でも働き、近距離で正確な、もう一つの感覚です。
コウモリはエコーで、どれくらい遠くまで聞こえますか
対象の大きさと周波数で変わります。このページのモデルでは、ガは 35 kHz で約 3.5 m、岩壁は約 8 m まで探知できます。大きなものや低い周波数ほど、遠くまで届きます。
コウモリは自分のエコーと、ほかのコウモリの声をまちがえませんか
近くのコウモリから声の周波数を少しずらしたり、予想した遅れのエコーを待ったりすることが多いです。混み合った洞窟ではそれでも難しく、同じ虫を追うときにわざと相手を妨害するコウモリもいます。
エコーは、なぜ声よりずっと小さいのですか
声は対象に向かう途中で広がり、エコーも帰り道でもう一度広がるので、距離が二倍になるたびに 12 dB 弱くなります。さらに空気が吸収し、小さな虫は、届いた音のごく一部しか返しません。
すべてのコウモリがエコーロケーションをしますか
虫を食べるコウモリは、ほぼすべてがします。旧世界のオオコウモリの大部分はしないと長く考えられていましたが、エジプトルーセットオオコウモリは舌を鳴らし、2014 年には、さらに二種のオオコウモリが、翼で出したクリックで暗闇の物を感じ取ることがわかりました。
ターミナルバズとは何ですか
攻撃の最後の部分で、鳴く回数が毎秒 160 回を超え、一回の声が 1 ミリ秒より短くなります。コウモリは、数ミリ秒ごとに虫の最新の位置を知ります。
水たまりは、なぜエコー地図の穴に見えるのですか
なめらかな水面は声を鏡のようにそらし、エコーはほとんど戻りません。コウモリはこれを水のしるしとし、なめらかな板があれば飲もうとします。
このページの音は本物のコウモリの声ですか
いいえ。種ごとの声の形から合成し、スロー再生の倍率で遅くしてあるので、音の高さも同じ倍率で下がっています。タイムエクスパンション式のバットディテクターが声を聞こえるようにするのと同じ方法です。
イルカとコウモリは同じやり方でエコーロケーションをしますか
原理は同じで、二つのグループが別々に進化させました。イルカは水中で働き、そこでは音が約 4.4 倍速いので、同じ距離からエコーが早く戻ります。クリックは、ほとんどのコウモリの声よりずっと短いものです。
韓国と英国で同じコウモリの声の高さが違うのはなぜですか?
集団によって周波数が変わります。キクガシラコウモリは英国で約 82 kHz、韓国で 66〜72 kHz で、済州島は本土より高めでした。研究は原因を確定していないため、図鑑の値は地域平均として読むのが適切です。
コウモリ探知器は何をするのですか?
超音波を聞こえる音にします。ヘテロダインは調整した音との差、周波数分周はリアルタイムの一定比の分周、時間伸長は録音を何倍も遅く再生する方式です。実験では同じ狩りで 3 方式を聞けます。
ガはコウモリから隠れられますか?
ある程度は可能です。体と翼の鱗粉が超音波を吸収してエコーを数デシベル弱め、探知距離を短くします。耳のあるガは急降下し、一部のヒトリガはクリック音でソナーを妨害します。
用語
エコーロケーション: 音を出し、そのエコーを分析してものを見つけること。
エコーの遅れ: 声とそのエコーのあいだの時間。距離 = 音速 × 遅れ ÷ 2。
超音波: 約 20 kHz を超える、人間には聞こえない音。
FM の声: 高い周波数から低い周波数へ素早く下がる声。距離を測るのに向いています。
CF の声: 周波数がほぼ一定の声。羽ばたきやドップラーのずれを見つけるのに向いています。
ターミナルバズ: 攻撃の最後に出す、非常に速い連続した声。
ドップラー効果: 音源や反射するものが動くと、周波数が変わること。
標的強度: 対象が音をどれだけ返すか。デシベルで表します。
耳珠: コウモリの耳の穴の前にある小さな突起。
時間伸長:超音波を録音して遅く再生し、すべての周波数を同じ比率で下げる方法です。
ヘテロダイン:声と調整した音を混ぜ、その差を可聴域にする方法です。
ドップラー補償:飛行中に声を下げ、エコーを基準周波数へ戻すことです。
音響的なカモフラージュ:鱗粉や毛が音を吸収し、獲物のエコーを弱めることです。
参考資料
すべてのアドレスは 2026 年 10 月 17 日に確認しました。PubMed のページは curl で HTTP 203 とページ全体を返します。
- Annemarie Surlykke and Elisabeth K. V. Kalko, Echolocating bats cry out loud to detect their prey. PLoS ONE 3 (2008), e2036. Source levels 122 to 134 dB SPL, above 140 dB for Noctilio. https://pmc.ncbi.nlm.nih.gov/articles/PMC2323577/
- Coen P. H. Elemans, Andrew F. Mead, Lasse Jakobsen and John M. Ratcliffe, Superfast muscles set maximum call rate in echolocating bats. Science 333 (2011), 1885 to 1888. https://pubmed.ncbi.nlm.nih.gov/21960635/
- John M. Ratcliffe, Coen P. H. Elemans, Lasse Jakobsen and Annemarie Surlykke, How the bat got its buzz. Biology Letters 9 (2013). https://pmc.ncbi.nlm.nih.gov/articles/PMC3639754/
- Lasse Jakobsen, John M. Ratcliffe and Annemarie Surlykke, Convergent acoustic field of view in echolocating bats. Nature 493 (2013), 93 to 96. https://www.nature.com/articles/nature11664
- James A. Simmons, The resolution of target range by echolocating bats. Journal of the Acoustical Society of America 54 (1973), 157 to 173. https://pubmed.ncbi.nlm.nih.gov/4738624/
- Brian D. Lawrence and James A. Simmons, Measurements of atmospheric attenuation at ultrasonic frequencies and the significance for echolocation by bats. J. Acoust. Soc. Am. 71 (1982), 585 to 590. https://pubmed.ncbi.nlm.nih.gov/7085967/
- Stefan Greif and Björn M. Siemers, Innate recognition of water bodies in echolocating bats. Nature Communications 1 (2010), 107. https://pmc.ncbi.nlm.nih.gov/articles/PMC3060641/
- Aaron J. Corcoran, Jesse R. Barber and William E. Conner, Tiger moth jams bat sonar. Science 325 (2009), 325 to 327. https://pubmed.ncbi.nlm.nih.gov/19608920/
- Aaron J. Corcoran and William E. Conner, Bats jamming bats: food competition through sonar interference. Science 346 (2014), 745 to 747. https://pubmed.ncbi.nlm.nih.gov/25378624/
- Jesse R. Barber and others, Moth tails divert bat attack: evolution of acoustic deflection. PNAS 112 (2015), 2812 to 2816. https://pmc.ncbi.nlm.nih.gov/articles/PMC4352808/
- Hannah M. ter Hofstede and John M. Ratcliffe, Evolutionary escalation: the bat-moth arms race. Journal of Experimental Biology 219 (2016), 1589 to 1602. https://pubmed.ncbi.nlm.nih.gov/27252453/
- Alan D. Grinnell, Early milestones in the understanding of echolocation in bats. Journal of Comparative Physiology A 204 (2018), 519 to 536. https://pubmed.ncbi.nlm.nih.gov/29687162/
- Peter T. Madsen and Annemarie Surlykke, Functional convergence in bat and toothed whale biosonars. Physiology 28 (2013), 276 to 283. https://pubmed.ncbi.nlm.nih.gov/23997187/
- Bertel Møhl and others, The monopulsed nature of sperm whale clicks. J. Acoust. Soc. Am. 114 (2003), 1143 to 1154. https://pubmed.ncbi.nlm.nih.gov/12942991/
- Signe Brinkløv, M. Brock Fenton and John M. Ratcliffe, Echolocation in oilbirds and swiftlets. Frontiers in Physiology 4 (2013), 123. https://pmc.ncbi.nlm.nih.gov/articles/PMC3664765/
- Björn M. Siemers and others, Why do shrews twitter? Communication or simple echo-based orientation. Biology Letters 5 (2009), 593 to 596. https://pmc.ncbi.nlm.nih.gov/articles/PMC2781971/
- Lore Thaler, Stephen R. Arnott and Melvyn A. Goodale, Neural correlates of natural human echolocation in early and late blind echolocation experts. PLoS ONE 6 (2011), e20162. https://pmc.ncbi.nlm.nih.gov/articles/PMC3102086/
- Liam J. Norman, Caitlin Dodsworth, Denise Foresteire and Lore Thaler, Human click-based echolocation: effects of blindness and age, and real-life implications in a 10-week training program. PLoS ONE 16 (2021), e0252330. https://pmc.ncbi.nlm.nih.gov/articles/PMC8171922/
- Yossi Yovel, Michal Geva-Sagiv and Nachum Ulanovsky, Click-based echolocation in bats: not so primitive after all. J. Comp. Physiol. A 197 (2011), 515 to 530. https://pubmed.ncbi.nlm.nih.gov/21465138/
- Animal Diversity Web (University of Michigan), Eptesicus fuscus: FM calls of 1 to 5 ms from 50 to 25 kHz. https://animaldiversity.org/accounts/Eptesicus_fuscus/
- Animal Diversity Web, Euderma maculatum: calls of 9 to 12 kHz. https://animaldiversity.org/accounts/Euderma_maculatum/
- Bat Conservation Trust, Greater horseshoe bat: almost constant frequency call of about 82 kHz. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/greater-horseshoe
- Bat Conservation Trust, Brown long-eared bat (the whispering bat). https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/brown-long-eared-bat
- Hans-Ulrich Schnitzler and Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. J. Comp. Physiol. A 197 (2011), 541 to 559. https://www.ebi.ac.uk/europepmc/webservices/rest/search?query=EXT_ID:20857119&format=json&resultType=core
- Arjan Boonman, Sara Bumrungsri and Yossi Yovel, Nonecholocating fruit bats produce biosonar clicks with their wings. Current Biology 24 (2014), 2962 to 2967. https://pubmed.ncbi.nlm.nih.gov/25484290/
- NASA Glenn Research Center, Speed of Sound. https://www.grc.nasa.gov/www/k-12/airplane/sound.html
- NOAA Ocean Service, What is sonar? https://oceanservice.noaa.gov/facts/sonar.html
- National Institute of Biomedical Imaging and Bioengineering, Ultrasound. https://www.nibib.nih.gov/science-education/science-topics/ultrasound
- Bosch Mobility, Ultrasonic sensor: detection range 15 cm to 5 m. https://www.bosch-mobility.com/en/solutions/sensors/ultrasonic-sensor/
- 空気中の音の吸収: ISO 9613-1:1993, Acoustics, attenuation of sound during propagation outdoors, part 1 (モデルで使った式)。
- 舞台の下の一覧にある動物や機械の出典は、それぞれのカードからリンクしています。
- Dai Fukui, David A. Hill, Sun-Sook Kim and Sang-Hoon Han, Echolocation call structure of fourteen bat species in Korea. Animal Systematics, Evolution and Diversity 31 (2015), 160 to 175. Appendix 1 gives every recording. https://accesson.kr/ased/v.31/3/160/56358
- National Institute of Biological Resources, National Species List of Korea (2019), Chiroptera. https://www.nibr.go.kr/aiibook/catImage/21/National%20Species%202.pdf
- Paolo Agnelli and colleagues (editors), Guidelines for bat monitoring. Quaderni di Conservazione della Natura 19 bis, Italian Ministry of the Environment and ISPRA (2004). Heterodyne, frequency division and time expansion. https://www.isprambiente.gov.it/files/pubblicazioni/quaderni/conservazione-natura/files/6732_19bisEngChirotteri_completo.pdf
- Hans-Ulrich Schnitzler and Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. Journal of Comparative Physiology A 197 (2011), 541 to 559. https://pubmed.ncbi.nlm.nih.gov/20857119/
- Thomas R. Neil and colleagues, Thoracic scales of moths as a stealth coating against bat biosonar. Journal of the Royal Society Interface 17 (2020), 20190692. https://pubmed.ncbi.nlm.nih.gov/32093539/
- Thomas R. Neil and colleagues, Moth wings are acoustic metamaterials. PNAS 117 (2020), 31134 to 31141. https://pmc.ncbi.nlm.nih.gov/articles/PMC7733855/
- Bat Conservation Trust, species pages for Natterer's bat, the whiskered bat, the barbastelle, Leisler's bat, Nathusius' pipistrelle, the grey long-eared bat and the Alcathoe bat. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats
- Line A. Kyhn and colleagues, Clicking in a killer whale habitat: narrow-band, high-frequency biosonar clicks of harbour porpoise and Dall's porpoise. PLOS ONE 8 (2013), e63763. https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0063763
- StatPearls (NCBI Bookshelf), Ultrasound Physics and Instrumentation. Clinical frequencies 1 to 20 MHz, 1,540 m/s in soft tissue. https://www.ncbi.nlm.nih.gov/books/NBK570593/
- NOAA National Ocean Service, Basics of Underwater Sound. 1,500 m/s in sea water. https://cdn.oceanservice.noaa.gov/oceanserviceprod/about/environmental-compliance/final-fact-sheets/NOS%20Final%20PEIS_Fact%20Sheet_Basics%20of%20Underwater%20Sound.pdf
- Bosch, Ultrasonic sensor (Gen. 4) for parking aid systems, key data sheet. About 48 kHz, range up to 2.5 to 3 m. https://hexagondownloads.blob.core.windows.net/public/AutonomouStuff/wp-content/uploads/2019/05/Neobotix_Ultrasonic_sensors_whitelabel.pdf
解説とシミュレーションは CC BY-NC-SA 4.0(特記のあるものを除く)。
コース 4 / 8
光と音ほかの展示
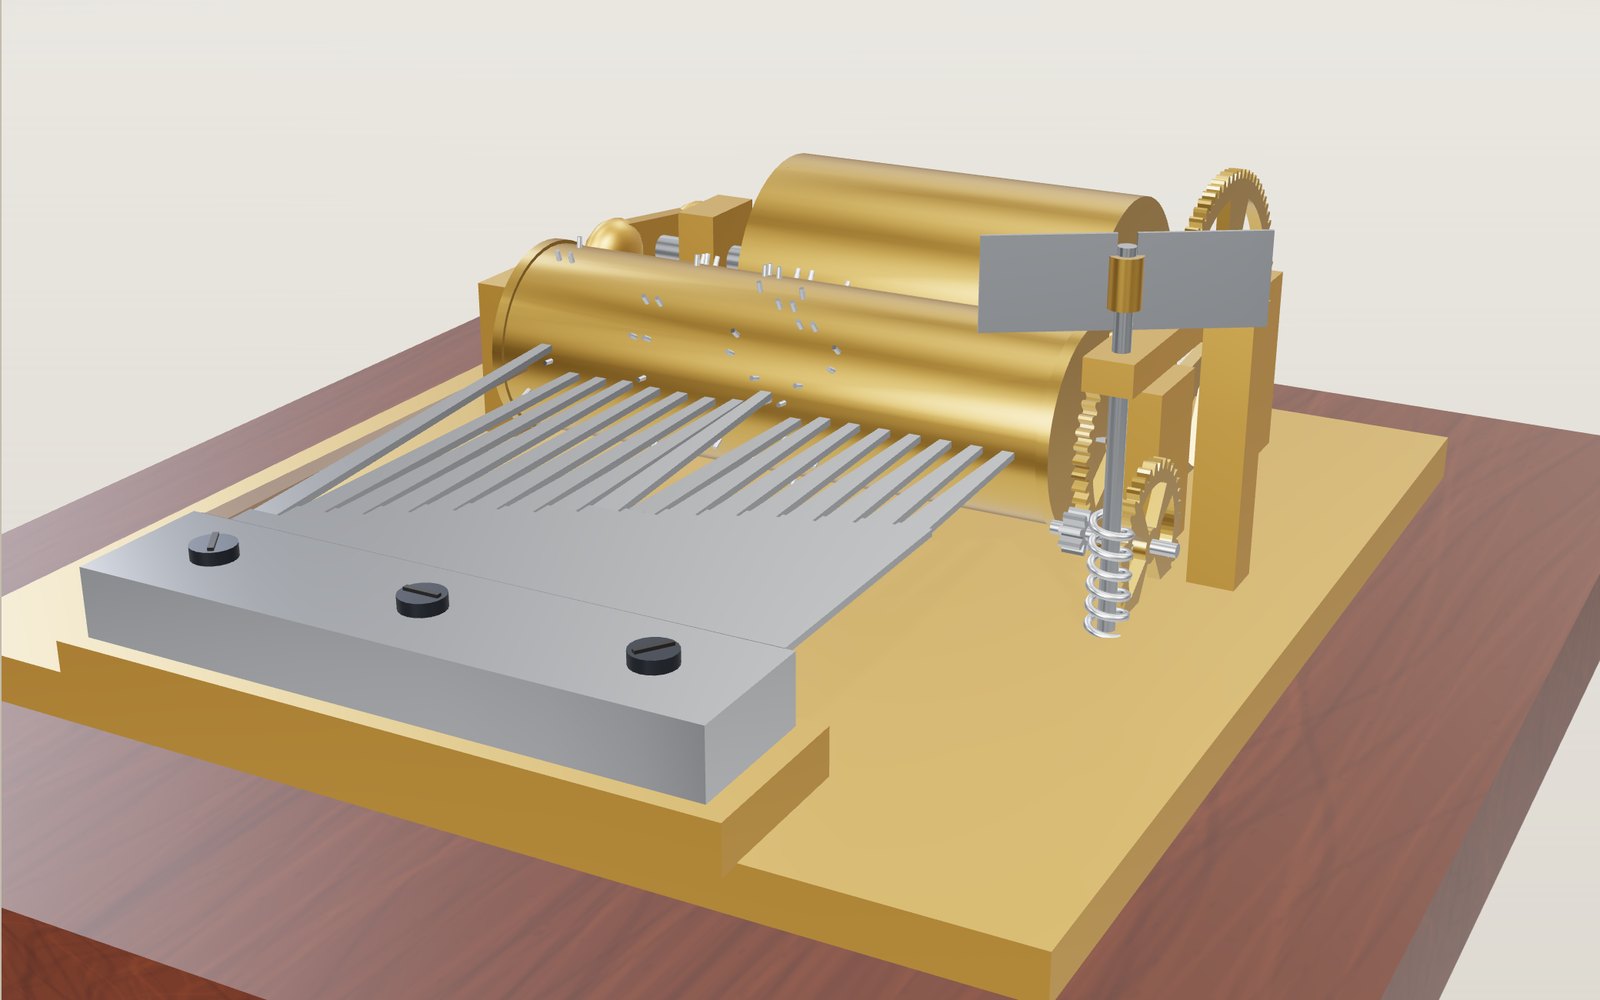
オルゴールのしくみ:ピンと櫛歯が音になるまで
長さ 30.6 mm の鋼の櫛歯は 261.6 Hz で鳴り、長さを半分にすると音は 2 オクターブ上がります。
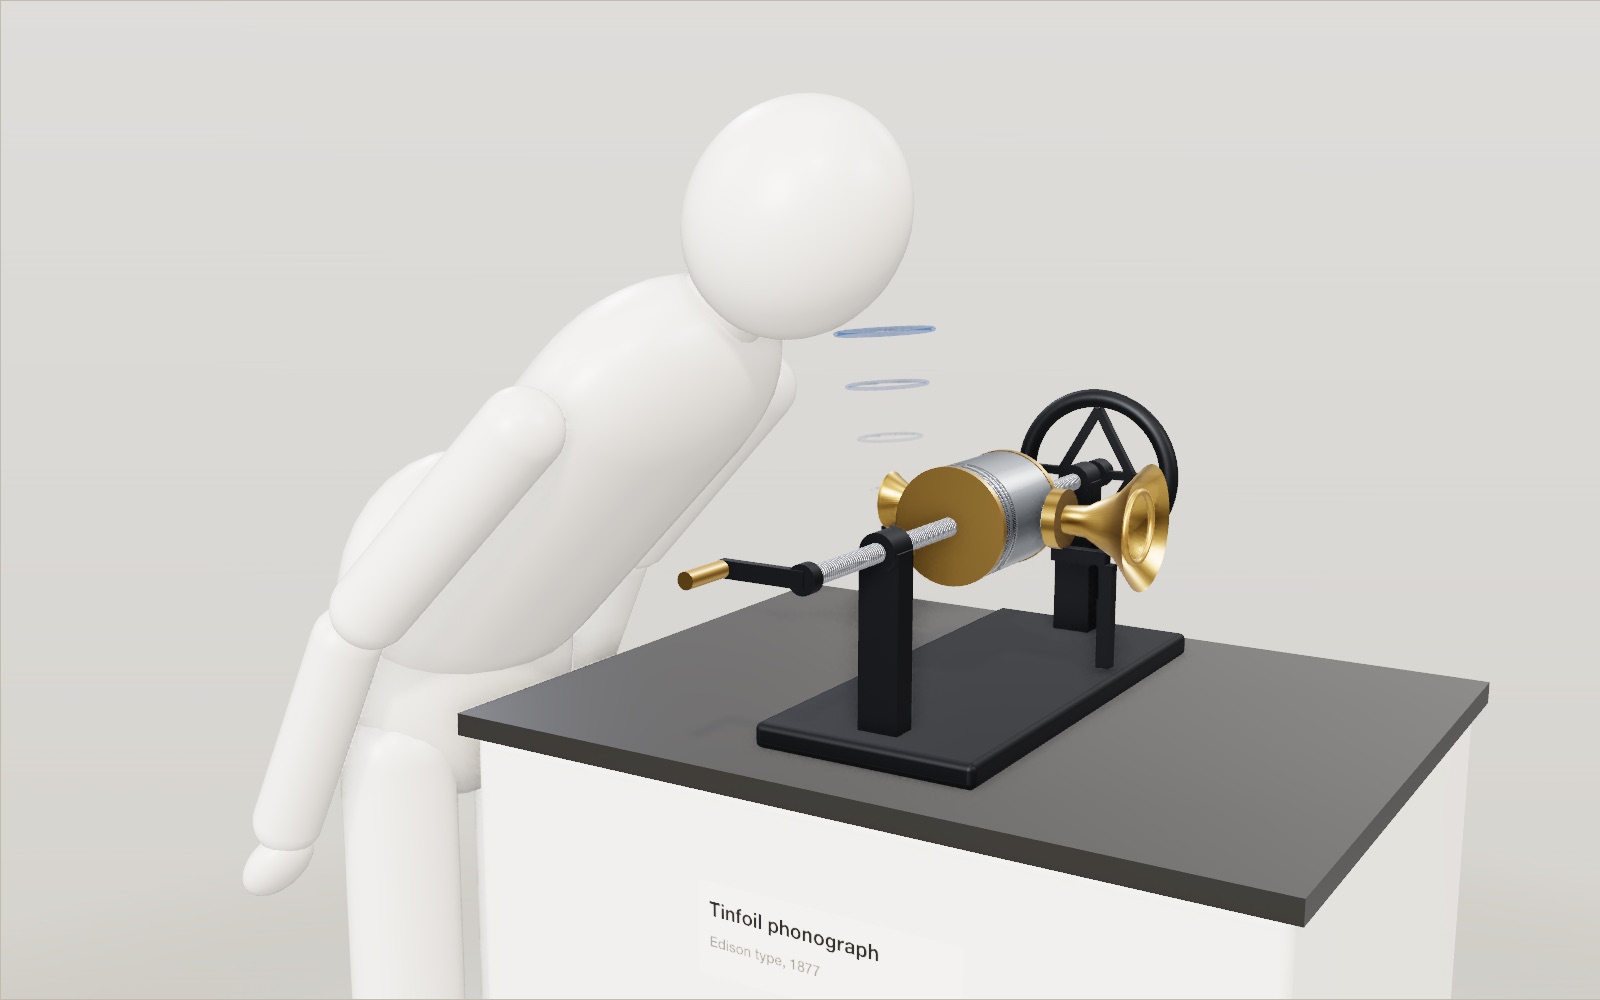
蓄音機の仕組み:声を録音して溝を拡大するシミュレーター
1877 年、エジソンの最初のフォノグラフは声をスズ箔に刻み、同じ針が間隔 2.54 mm の溝から再生しました。
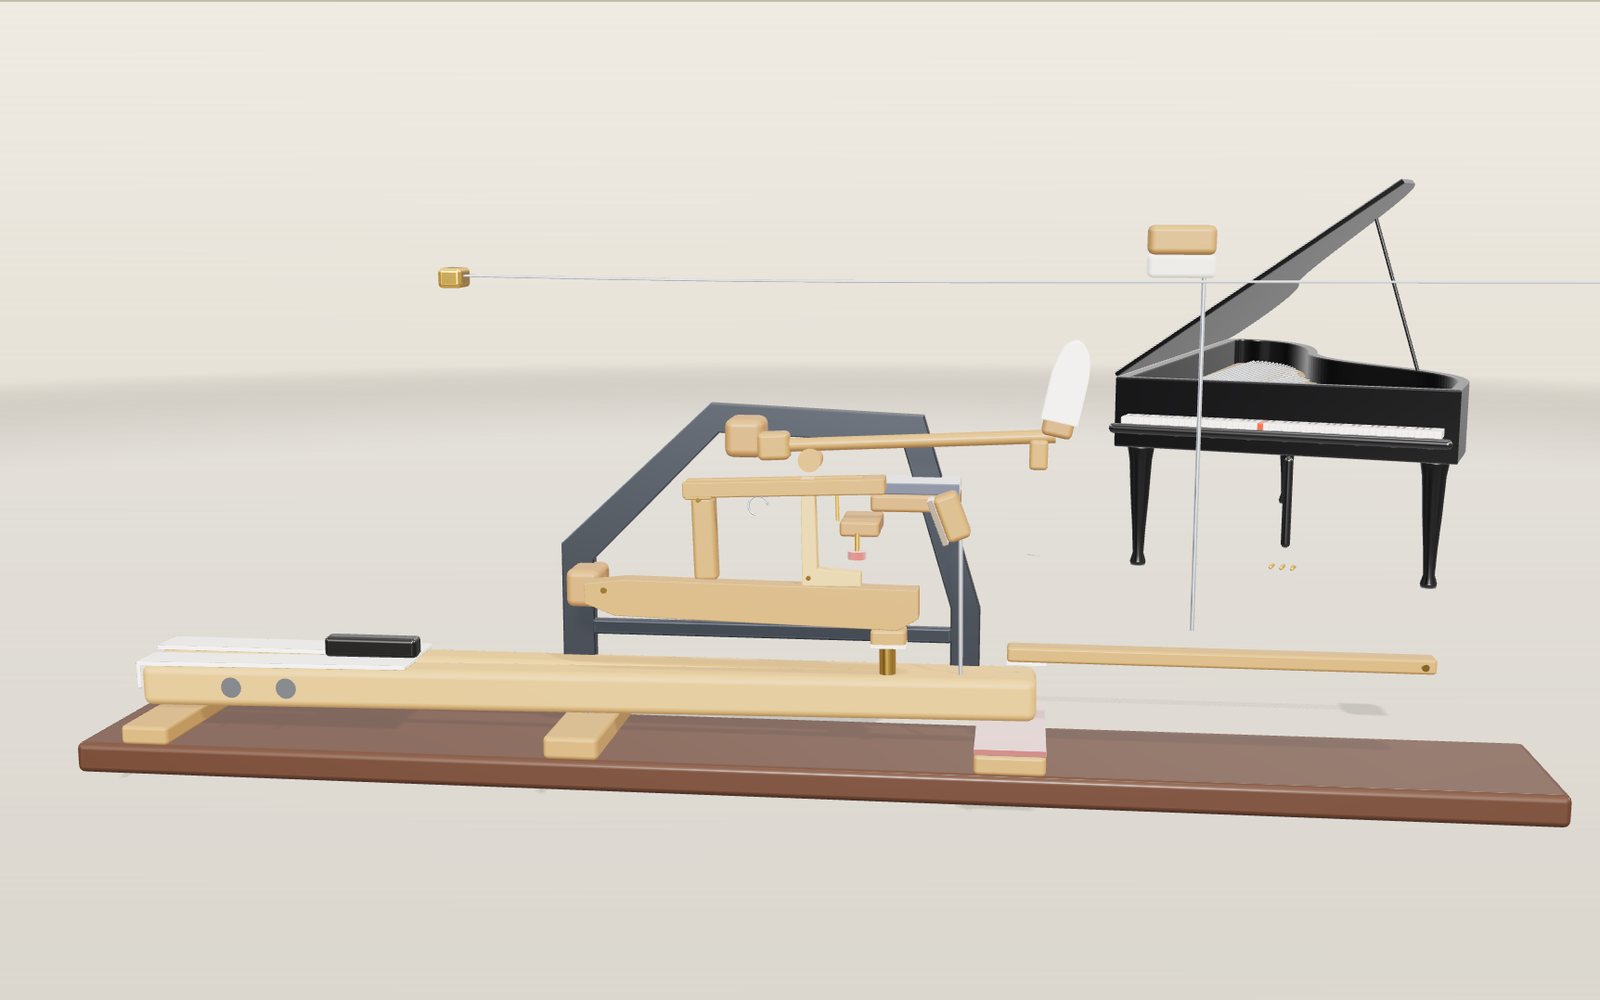
ピアノの仕組み:グランドピアノのアクションと平均律
鍵を 10 mm 押すと、フェルトのハンマーが弦まで飛んで弦を打ち、音を止めてしまう前に離れていきます。
音波のしくみ:周波数とデシベルを見て確かめる
440 Hz の音は空気を 78 センチメートル間隔の密な層にしますが、94 dB でも空気の各部分は一ミリメートルの千分の一未満しか動きません。
レコードはどうやって音を記録するのか
LP の外周では溝が秒速 0.5 m で針の下を滑っていきますが、最後の曲では秒速 21 cm まで遅くなります。
雷の仕組み:稲妻と雷鳴の時間差を測るシミュレーター
放電路は空気を太陽表面の約 5 倍の温度に熱し、雷鳴があなたまで届くには 1 km ごとに約 3 秒かかります。