图 86感官馆
蝙蝠回声定位:在黑暗洞穴里用声音看世界
1 m 外飞蛾的回声在不到 6 ms 内返回蝙蝠,而蝙蝠就是凭这段时延知道距离。
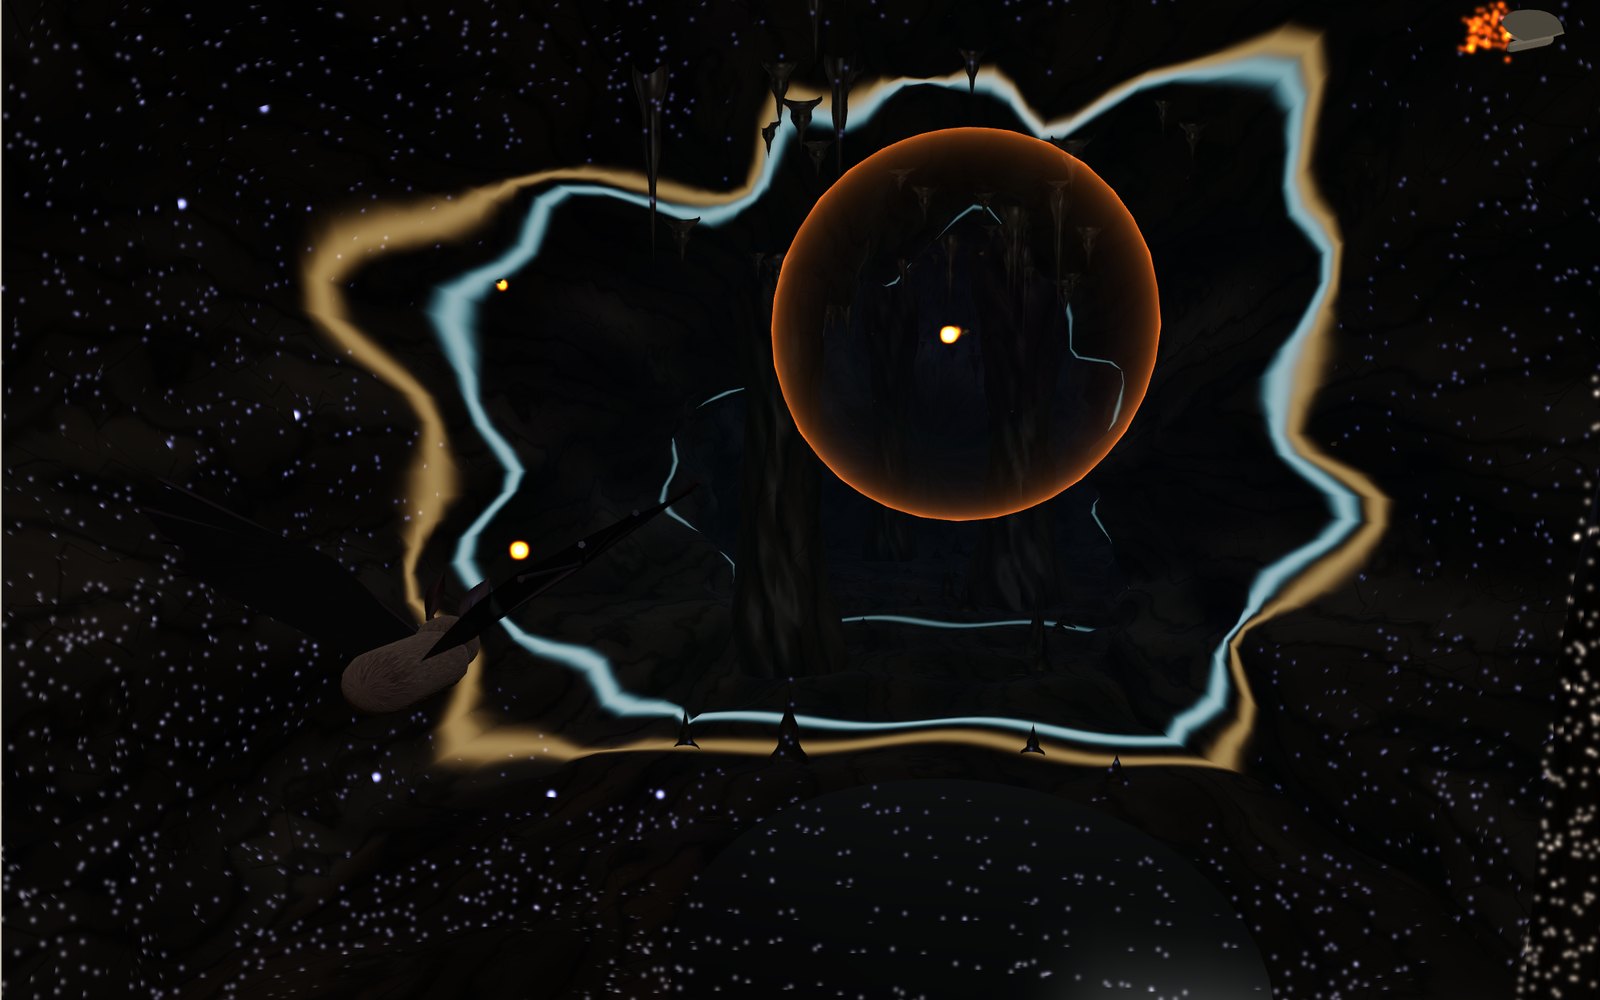
这台设备无法显示 3D 模型。下面的讲解步骤可以直接阅读文字。
1 / 10 没有光的洞穴这个洞穴中没有光。蝙蝠已经发声一次;明亮壳层是以 343 m/s 扩散的声音。点按「发声」可再次发声,也可以按这些步骤观看。
拖动可旋转,滚轮或双指缩放。
黑暗走廊里的一次拍手
站在一条空荡荡的长走廊里,闭上眼睛拍一下手。你先听到拍手声,片刻后又听到微弱的重复声,于是大致知道远端的墙有多远。蝙蝠每分钟都要这样做数百次,只是声音高得人耳听不到,而且它们能做得足够精确,在完全黑暗中捕捉飞蛾。
这就叫回声定位:发出声音,听取返回的声音,再根据回声判断物体的位置和特征。这件展品把你放进一个没有丝毫光线的石灰岩洞穴。一只棕蝠发声,你可以看到每次叫声穿过洞穴,在岩壁、石柱、钟乳石、石笋和昆虫上反射,然后返回。回声抵达蝙蝠时,就变成一个发光点。几秒钟后,这些点逐渐组成洞穴的图像,而这也是蝙蝠所拥有的唯一图像。
怎样操作场景
按「发声」,蝙蝠就会叫一次。明亮的壳层表示声音的波前,在蝙蝠朝向的方向画得更亮。壳层碰到固体后,那里可能会出现一个返回的琥珀色壳层;回声抵达蝙蝠时,回声地图上就出现一个点。暖色点表示近处,蓝色点表示远处,橙色点表示飞蛾。经过「回声记忆」滑块设定的时间后,点会逐渐消退。
场景下方的按钮用于设置慢动作。声音在空气中每秒传播 343 米,因此还没等你看清,整次叫声及其全部回声就已经结束了。放慢 100 倍后,叫声以每秒约 3.4 米的速度缓缓前进。「追捕飞蛾」让蝙蝠以真实的飞行速度追逐最近的飞蛾(画面放慢 10 倍),接近时发声频率会自动增加。
在「操作」面板中,你可以更换蝙蝠种类,手动设置捕猎阶段,停止自动发声,开启声音,显示飞蛾回声的多普勒频移,让飞蛾干扰声纳,打开灯,以及显示声纳波束。操作项下方的回声计算器可按任意距离、温度和频率,完成本页介绍的计算。场景下方还列出了 34 种利用回声寻找物体的动物和机器。
根据时延求距离
回声定位的基本规则很简短。声音以已知速度传播。若回声在叫声发出 t 时间后抵达,说明声音已经往返目标一次,因此目标距离为
距离 = 声速 × t ÷ 2
干燥空气中的声速取决于温度。它等于 1.4 × 287.05 × T 的平方根,其中 T 是以开尔文为单位的温度。20 °C 时,结果为 343.2 m/s。0 °C 时为 331.3 m/s,30 °C 的夏夜则为 349.0 m/s。寒冷洞穴中的蝙蝠与温暖草地上方的蝙蝠,使用的「尺子」略有不同,相差约 5%。
采用 343.2 m/s 时,回声时延如下:
| 距离 | 回声时延 |
|---|---|
| 10 cm | 0.58 ms |
| 1 m | 5.83 ms |
| 3 m | 17.48 ms |
| 5 m | 29.14 ms |
| 10 m | 58.27 ms |
| 20 m | 116.54 ms |
因此,蝙蝠前方 10 米处的石柱约在 58 ms 后回应,而 3 米外的飞蛾约在 17 ms 后回应。时延相差一微秒,距离只相差 0.17 mm。蝙蝠无法利用如此精细的计时,但 James Simmons 在 1970 年代的实验表明,经过训练的棕蝠只凭回声时延,就能判断两个目标中哪一个更近。
场景中的时间遵循真实的传播过程:每个点都在回声本应抵达的时刻画出,只是按慢动作比例缩放。观察叫声到达通道远端,就会看到远处的点最后才亮起。
为什么叫声这么高
蝙蝠的大多数叫声都是超声波,高于人耳约 20 kHz 的听觉上限。场景中的棕蝠在几毫秒内从约 50 kHz 向下扫频至 25 kHz。普通伏翼的叫声在接近 45 kHz 处最响,马铁菊头蝠则保持接近 82 kHz 的音调。
原因在于声波的尺寸。波长等于声速除以频率。10 kHz 时为 34 mm,35 kHz 时约为 10 mm,82 kHz 时约为 4 mm。远小于波长的目标几乎不会扰动声波,返回的声音也极少;小球体的回声大致按尺寸与波长之比的四次方减弱。蚊子只有几毫米长。要从它身上获得强回声,蝙蝠也需要几毫米的波长。
高频有代价。空气会吸收声音,而且对高频声音的吸收强得多。采用空气声吸收标准公式(ISO 9613-1),在 20 °C、50% 湿度下,10 kHz 的损失约为每米 0.16 dB,20 kHz 为 0.52 dB,35 kHz 为 1.13 dB,82 kHz 为 2.67 dB,100 kHz 为 3.28 dB。回声在去程与回程都要付出这份代价。100 kHz 时,5 米外目标的回声仅因空气吸收就损失 33 dB。
把「蝙蝠」滑块从棕蝠调到马铁菊头蝠,观察回声地图:高音绘出的地图更清晰,但范围更小。调到发声频率为 9 至 12 kHz 的斑点蝠,地图就会延伸到通道深处,但每个点都更模糊。
多响,能传多远
蝙蝠的叫声很响。Annemarie Surlykke 和 Elisabeth Kalko 在巴拿马的野外录音发现,在蝙蝠前方 10 cm 处测得,空旷地带捕猎的蝙蝠声源级为 122 至 134 dB SPL。两种在水面上捕猎的蝙蝠平均约为 137 dB,最高超过 140 dB。我们完全听不到,只是因为音调太高。
它们必须这样响。向各方向扩散的声音,距离每增加一倍就损失 6 dB。回声在返回途中再次扩散,因此往返传播的损失是距离每增加一倍就增加 12 dB。飞蛾只会反射入射声音的极小一部分。场景模型采用声纳方程:
回声级 = 声源级 − 40 log₁₀(r ÷ 0.1 m) − 2 × 吸收系数 × r + 目标强度
假设叫声在 10 cm 处为 120 dB,飞蛾的目标强度为 −30 dB,听阈为 20 dB,模型中的蝙蝠在 35 kHz 时能听到约 3.5 m 外的飞蛾,50 kHz 时为 3.1 m,82 kHz 时为 2.6 m。岩壁返回的声音多得多,因此 35 kHz 时约 8 m 外也能听到。这些是模型数值,但与野外情况相符:猎物在几米内被发现,墙壁和树木的探测距离则为其数倍。Surlykke 和 Kalko 还注意到,声音最响的蝙蝠使用最高的频率,这似乎让它们的探测距离重新接近其他蝙蝠。
场景读数中的「可听见飞蛾的距离」显示你所选蝙蝠的这一模型距离。只有飞蛾进入这个范围,它在回声地图中才会变为橙色。
搜索、接近与终末嗡鸣
1960 年前后,Donald Griffin 及其同事录下蝙蝠捕虫的声音,发现叫声会有规律地变化。搜索时,棕蝠每秒发声约 10 次,每次持续几毫秒。许多蝙蝠在这个阶段每拍翅一次发声一次,因此拍翅、呼吸和发声共用同一节奏。发现昆虫后,就进入接近阶段:叫声变短,间隔缩短。在最后几百毫秒出现终末嗡鸣,发声频率升到每秒超过 160 次,每次叫声缩短到远低于一毫秒。
部分原因只是时间安排。蝙蝠通常等到它关心的回声返回后才再次发声,以免回声与叫声重叠。5 米外的回声需要 29 ms,因此每秒最多允许约 34 次叫声。1 米外需要 5.8 ms,允许 172 次。50 cm 外则允许 343 次。猎物越近,蝙蝠允许发声的速度就越快,也就越频繁地获知飞蛾移动后的位置。
但这不是全部原因。2011 年,Coen Elemans 及其同事发现,蝙蝠喉部有超快肌,属于已知哺乳动物中速度最快的肌肉之列;最高发声频率由这些肌肉能多快地工作决定,而不只是回声重叠的限制。把「捕猎阶段」滑块设为「终末嗡鸣」,声波壳层会快得彼此嵌套,从蝙蝠身上涌出。
用双耳判断方向
距离来自时间,方向来自双耳的比较。右侧回声略早到达右耳,也略响一些,因为头部遮挡了远侧耳朵。模型中的双耳相距约 1.6 cm,因此正侧方回声产生的最大时差约为 47 微秒。偏离正前方 10 度的回声产生约 8 微秒的时差。读数会显示飞蛾回声的这一差值。
上下方向较难判断,因为两耳位于同一高度。这时外耳的形状会起作用。耳孔前方的小瓣叫耳屏,它会在耳内添加自身的回声,这个微小附加回声的时序取决于声音来自上方还是下方。蝙蝠还会在两次叫声之间转动头部和耳朵,每次都从略有不同的角度聆听场景。场景中的蝙蝠在两次叫声之间稍微转头,地图就是这样逐渐填满的。
多普勒效应:飞蛾正在靠近吗?
蝙蝠飞向墙壁时,叫声的每个波峰都比前一个从更近的位置发出,因此墙壁接收到的频率稍高。墙壁把声音反射给仍在接近的蝙蝠,频率又会升高。对于以速度 v 飞向静止目标的蝙蝠,返回回声的频率为
f × (c + v) ÷ (c − v)
速度为 4 m/s 时,82 kHz 的叫声以约 83.9 kHz 返回,升高接近 2 kHz。如果目标也在移动,它自身的速度也会以相同方式产生叠加影响。开启「多普勒频移」,读数就会显示飞蛾回声的频率,以及它与叫声频率相差多少。
菊头蝠充分利用了这一点。它们的叫声是较长、近乎恒定的音调,听觉在回声频率附近有一条调谐极其敏锐的窄频带,有时称为声学中央凹。菊头蝠向前飞行时,会恰好降低叫声频率,使经过多普勒频移的回声落入这条频带。4 m/s 时,它以约 80.1 kHz 发声,让回声在接近 82 kHz 处返回。在这稳定的音调背景下,昆虫拍翅使回声的音高和响度闪动,蝙蝠便能从静止树叶中辨认出扑翼的飞蛾。在「蝙蝠」滑块中选择马铁菊头蝠,就能看到这些数值。
回声怎样描述表面
粗糙岩石把声音散射到各个方向。无论波束落在哪里,总有部分声音直接返回,因此洞壁会布满光点。光滑表面则像镜子。叫声以与入射角相同的角度反射并离开,只有蝙蝠正下方的水面会把回声送回。
因此,场景中的水池在回声地图上保持黑暗。Stefan Greif 和 Björn Siemers 在 2010 年证明,蝙蝠会把任何较大、声学上光滑的表面当成水。15 种野生蝙蝠都试图从光滑的金属、木材和塑料板上饮水,即使这些板清晰可见。从未见过水的幼蝠也会这样做,这提示这种判断规则可能是先天的。在场景中,水池表现为地图上的空洞,蝙蝠正下方只有一个亮点。
飞蛾的反击
蝙蝠捕食飞蛾已有数千万年,许多飞蛾都有应对办法。很大一部分飞蛾长有能听见蝙蝠叫声的耳朵。叫声变响时,它们会俯冲、盘旋或落向地面。一些蝙蝠则使用这些耳朵不敏感的频率,或发出极轻的叫声。褐大耳蝠在英国有「低语蝙蝠」之称。
一些灯蛾会回应。2009 年,Aaron Corcoran、Jesse Barber 和 William Conner 拍下棕蝠在黑暗中攻击灯蛾 Bertholdia trigona 的过程。蝙蝠进入终末嗡鸣阶段时,飞蛾发出密集的超声咔嗒声,蝙蝠便扑空了。咔嗒声似乎使蝙蝠误判飞蛾有多远。开启「飞蛾干扰声纳」并开始追捕:飞蛾回声散成位于错误距离的红点,在这个模型中,蝙蝠通常会冲过头。
月形天蚕蛾采用另一种办法。它们长长的后翅尾突在飞行时旋转,产生自己的回声。Barber 及其同事的实验中,蝙蝠超过一半的攻击都瞄准尾突,有尾突的蛾比没有尾突的蛾存活率高约 47%。蝙蝠也会相互干扰:追逐同一只昆虫的墨西哥犬吻蝠会发出特殊叫声,使对手扑空。
其他会回声定位的动物
蝙蝠最为人熟知,但并非唯一。包括海豚和鼠海豚在内的齿鲸在水下回声定位,那里的声速约为空气中的 4.4 倍。它们的咔嗒声短而响亮。Bertel Møhl 及其同事记录到,抹香鲸轴线方向的咔嗒声达到 236 dB re 1 µPa,是已知动物发出的最响声音。Peter Madsen 和 Annemarie Surlykke 展示了蝙蝠与齿鲸的声纳有多么相似,尽管这两类动物是分别演化出这一能力的。
两类鸟也会回声定位。南美洲的油鸱夜间吃果实,在洞穴深处筑巢,印度洋至太平洋地区的洞栖金丝燕也在黑暗洞穴中筑巢。两者都使用人耳能听到的低频咔嗒声,传得远,但呈现的细节较少。鼩鼱探索杂乱环境时会发出更多啁啾声,录音提示它们的叫声能在近处提供有用的回声。甚至一些长期被认为不会回声定位的果蝠,也用翅膀发出的咔嗒声在黑暗中辨路。
会回声定位的人
一些盲人用口腔咔嗒声回声定位。2011 年,Lore Thaler、Stephen Arnott 和 Melvyn Goodale 扫描了两位盲人专家的大脑,当时他们正在听自己发出的咔嗒声及其回声的录音。回声激活的是通常处理视觉的大脑区域,而不是额外的听觉区域。杜伦大学在 2021 年开展的训练研究,让 21 至 79 岁的盲人与健视成人在十周内参加 20 次训练,学习咔嗒声回声定位。两组都有很大进步,年龄和失明都没有限制学习速度。
人发出的咔嗒声为几千赫兹,因此波长约为 10 cm。这足以感知墙壁、门口或停着的汽车,但不足以感知飞蛾。
原理相同的机器
船舶使用声纳,规则与蝙蝠相同,只是采用水中约 1,500 m/s 的声速。10 m 深处海底的回声约在 13 ms 后返回。医学超声把兆赫兹范围的声音送入人体,毫米尺度的波长可以显示器官和心脏的轮廓。汽车保险杠中的泊车传感器用超声波测量回声时间,寻找约 15 cm 至 5 m 范围内的障碍物。
简史
1790 年代,Lazzaro Spallanzani 发现被弄瞎的蝙蝠仍能飞行而不撞物,Louis Jurine 则证明堵住耳朵的蝙蝠做不到。没人能解释原因,因为蝙蝠似乎没有发声。答案要等到能听到超声波的麦克风出现。1938 年,当时还是哈佛学生的 Donald Griffin 把蝙蝠带给物理学家 George Pierce,后者制造了超声波探测器。随后 Griffin 与 Robert Galambos 证明,蝙蝠发出超声脉冲,并利用回声躲避障碍;1944 年,他把这种能力命名为回声定位。
模型简化了什么
场景中的蝙蝠在两次追捕之间停留原处,方便你从四周观察。真正搜索飞行中的蝙蝠从不停下。洞穴由光滑的数学形状构成,回声则通过追踪穿过同一形状的几百条射线求出。真实声音是波,而非一束射线:它会绕过边缘,回声也会重叠、干涉。回声强度来自简单的声纳方程,岩石使用固定的目标强度,听阈也只是一个数值。
飞蛾被当作点。真实飞蛾的回声随每次拍翅而变,这是蝙蝠识别昆虫的部分依据。干扰模型只是把 Bertholdia trigona 实验报告的结果画出来:飞蛾回声出现在错误距离。你听到的叫声与画面按相同比例放慢,因此 40 kHz 的叫声放慢 100 倍后变为 400 Hz。野外工作用的商用蝙蝠探测器采用同样的方法,称为时间扩展。
读懂毫秒级回声
假设空气静止,声速取整为 343 m/s。1 ms 的回声时延意味着声音走过的总路程为 343 × 0.001 = 0.343 m。其中一半是去程,因此反射体距离为 0.1715 m,约 17 cm。忘记回程会把它放到两倍远的位置。这个例子假定回声从目标沿直接路径返回。先从另一面墙反射再返回的声音,路径更长,不能解释为同样的直线距离。
频率不进入这个距离方程。在相同气温下,40 kHz 与 82 kHz 叫声到达同一目标的传播时间基本相同。它们的波长不同。用取整声速计算,343 ÷ 40,000 = 0.008575 m,约为 8.6 mm。这个数值描述相邻波峰的间距,而不是蝙蝠能探测到的昆虫的最短体长。更小的昆虫仍能返回回声;蝙蝠能否听到,取决于昆虫的朝向、反射表面、距离和背景噪声。昆虫的翅膀在攻击过程中也会运动。固定球形目标是有用的计算工具,而不是昆虫识别规则。
在「回声计算器」中,把「气温」设为 20 °C、「叫声频率」设为 40 kHz、「目标距离」设为 1 m。显示的声速使用温度公式,而不是上文假定的取整值 343 m/s,因此预期结果约为 5.83 ms 和 8.6 mm。距离加倍会让时延加倍,但不改变波长。提高频率会改变波长和吸收,却不会让时延加倍。这些是不同的影响,单看一幅明亮回声图像容易把它们掩盖。
为什么最后的嗡鸣不只是加快的搜索叫声
Ratcliffe 及其同事的综述 How the bat got its buzz 讨论的不只是一次攻击中的发声次数。一些蝙蝠会在嗡鸣的第二部分降低基频。在嘴部开口相同的情况下,较低频率会使发出的波束变宽。近距离时,昆虫只需横向移动很短距离,就能离开狭窄波束,因此更宽的声学视野能帮助蝙蝠继续追踪躲避中的猎物。这是在权衡短波长对小目标通常具有的优势,而不是与之矛盾。
以每秒 200 次叫声为例,1 ÷ 200 = 0.005 s,即两次叫声开始之间相隔 5 ms。声速为 343 m/s 时,声音能在这段时间内往返约 0.86 m 远的目标。这是理想的时间计算,不是有保证的捕猎距离。叫声持续时间占用了一部分间隔,周围环境的回声继续抵达,喉部也必须先放松再收缩。综述报告一些物种每秒最多约发声 220 次;200 并不是普遍上限。
场景采用的「终末嗡鸣」标称频率为每秒 170 次,并根据目标时延进一步限制。因此,飞蛾较远时,显示的频率可能较低。场景在这一阶段还会画出更窄的波束,而研究描述的是某些真实物种嗡鸣阶段的波束变宽。可以用声波壳层比较发声间隔,但不能据此推断每只蝙蝠在捕获前都会缩窄声纳波束。动画洞穴并未复现各物种叫声结构的全部变化。
在屏幕上做受控比较
先不要追捕。使用「清除回声地图」,再按「发声」,在旧光点积累之前追踪最先返回的壳层。打开灯,比较洞穴的实际形状与不完整的回声地图。缺少光点不一定意味着没有岩石:波束可能尚未扫到那里,或返回的声音太弱。这与把实体物体移出场景不同。
第二项比较保持物种不变,在「回声计算器」中只改变「目标距离」。同时阅读「回声时延」与「无重叠最大发声率」。距离越远,时延越长,理想重复频率越低。计算器独立于飞蛾的实际位置;拖动它的距离输入项不会移动飞蛾。把它的数值与场景读数比较时,区分这一点很重要。
最后先选择马铁菊头蝠,再回到棕蝠。前者预设表示较长的恒频叫声,后者表示短促的向下 FM 扫频。真实菊头蝠狭窄的听觉调谐有助于它从树叶背景中检测扑翼造成的变化;宽带 FM 叫声则提供近处反射体的有用时间信息。这是不同的侧重点,不是相互排斥的感觉。真实菊头蝠叫声也包含调频部分。模型的「恒定音调」标签刻意略去了这些细节。
韩国十四种蝙蝠及其叫声
场景下方的目录首先列出 Dai Fukui、David Hill、Sun-Sook Kim 和 Sang-Hoon Han 在 2011 至 2012 年间于韩国记录的 14 个物种。他们分析了 93 段叫声序列中的 1,129 个脉冲,公布了每份录音的平均值:最高频率、最低频率、能量最多的频率、叫声长度,以及叫声之间的间隔。目录显示每个物种这些录音平均值的平均数,以及各录音中最响频率的范围,让你看到同一物种的差异有多大。
脉冲分为三种形状。马铁菊头蝠发出较长的恒定音调,两端各有短扫频。鼠耳蝠属 Myotis、管鼻蝠属 Murina 和大耳蝠属 Plecotus 的九个物种发出陡峭的向下扫频,仅持续 1 至 6 ms。四个物种(大棕蝠、阿拉善伏翼、东亚长翼蝠和东亚伏翼)先陡峭扫频,再逐渐展平为近乎恒定的尾音。凭借五项测量,作者能把 76.4% 的叫声归入正确物种。恒定音调与先扫频后平展的叫声容易区分;鼠耳蝠属的陡峭扫频则大量重叠。
两个细节格外明显。远东鼠耳蝠扫过最宽的频带,其中一份录音跨越 113 kHz,从约 135 kHz 降到 22 kHz。马铁菊头蝠在英国接近 82 kHz 发声,同一物种在韩国却为 66 至 72 kHz,而且济州岛个体高于大陆个体。同一物种、两个地区,相差约 12 kHz,提醒我们物种的单一数值是地区平均值,而非固定常数。韩文名称依照 National Species List of Korea(2019);研究中称为 Myotis formosus 和 Murina leucogaster 的两种蝙蝠,在该名录中分别列为 Myotis rufoniger 和 Murina hilgendorfi。
人们聆听蝙蝠的三种方法
蝙蝠探测器把超声波变成我们能听到的声音,采用的方法决定保留哪些信息。意大利监测指南(Agnelli 及其同事,2004)描述了三种方法。
外差探测器将叫声与手动调谐的音调混合,播放差频。只能听到与调谐频率相距约 5 kHz 以内的叫声部分,因此要转动旋钮寻找蝙蝠,此时显示值接近叫声最响的频率。它价格低、能实时工作,但输出声音不再保留叫声的长度或形状。在场景中选择「外差」,调到菊头蝠稳定音调附近:这个音调会变成低而稳定的声音,而陡峭扫频穿过窗口时只形成短促的声响。
分频在声音抵达时,按设定比例将所有频率相除,这里为 10。它能同时听到所有蝙蝠,保留真实时序,但只保留信号最强的部分,响度单一,谐波也会丢失。时间扩展以高采样率录下叫声,再慢速播放。指南举例说,持续 5 ms 的 40 kHz 叫声经过 10 倍扩展后,会变为持续 50 ms 的 4 kHz 声音。完整形状得以保留,因此物种鉴定录音采用这种方式;但回放时探测器无法聆听:录音 2 秒意味着失聪 20 秒。在每种模式下按「播放」,聆听同一轮捕猎中的搜索叫声、接近叫声和嗡鸣。
为什么菊头蝠降低叫声频率
菊头蝠内耳有一个显著扩大的区域,调谐于略高于静息叫声频率的一条窄频带。Hans-Ulrich Schnitzler 和 Annette Denzinger 将其比作人类视网膜清晰的中心,称为听觉中央凹。飞行时,前方任何物体的回声都会因多普勒效应升高。如果不作改变,回声就会移出中央凹的频带。蝙蝠却会降低叫声频率,让回声重新落回参考频率。
对于以速度 v 飞向静止墙壁的蝙蝠,回声频率为 f × (c + v) ÷ (c − v),因此叫声必须为 f_ref × (c − v) ÷ (c + v)。当速度为 5 m/s,参考频率为韩国数值 69.9 kHz 时,结果约为 67.89 kHz,降低约 2.9%。在「多普勒补偿」实验中,设定速度并调整叫声频率,直到回声与参考值相差不超过 0.2 kHz;「让蝙蝠自动调整」会显示精确答案。回声保持稳定,蝙蝠就能专注察觉昆虫拍翅给回声增加的节律性闪动。
小目标与波长
当物体至少与波长除以 π 一样大时,就能有效散射声音。低于这个尺寸便进入弱散射区,回声按尺寸与波长之比的四次方减弱。空气中的波长等于 343 m/s 除以频率:20 kHz 时为 17 mm,50 kHz 时为 7 mm,110 kHz 时为 3 mm。
这是食虫蝙蝠使用高频叫声的一个原因。2 mm 的小飞虫只有在频率高于 c ÷ (π × 2 mm),即约 54.6 kHz 时,才产生充分回声。低频叫声在空气中传得更远,却容易掠过小型猎物。尺寸实验显示这项权衡:缩小目标,观察回声损失增加,再提高频率,直到尺寸因子达到 1。显示的探测距离是本页声纳方程给出的模型值,并按目标面积进行缩放。
吸收声音的鳞片
许多飞蛾完全没有耳朵,依靠被动防御。Thomas Neil 及其同事测量了蛾体保留和去除胸部厚鳞片层时的情况。鳞片吸收了入射超声波的 32% 至 85%,使蛾体回声强度降低的中位数为 5.6 dB。第二项研究表明,翅膀上薄薄的鳞片层具有声学超材料的作用:在 78 kHz 时能吸收高达 72% 的声强,而厚度仅为它所吸收的最长波长的 1/111。
有耳朵的飞蛾还会主动防御。听到附近有蝙蝠时,它们会俯冲或盘旋,一些灯蛾还用超声咔嗒声回应攻击,干扰蝙蝠测距。捕猎难度采用这三个层次。「简单」中的飞蛾没有这些防御。「普通」加入弱 5.6 dB 的回声,并让飞蛾在蝙蝠接近至 1.2 m 内时朝随机方向俯冲。「困难」是一只灯蛾,具有同样的鳞片和俯冲能力,再加上干扰咔嗒声,蝙蝠大多数攻击都会失败,就像 Aaron Corcoran 及其同事的实验中那样。每个难度的最快捕获时间和最少叫声次数会保存在你的设备上。
人造回声定位器
每种回声定位器的规则都相同:距离等于声速乘以时延再除以二。变化的是介质与频率。汽车泊车传感器在空气中以接近 48 kHz 工作,与东亚伏翼的 47.5 kHz 几乎相同,两者的波长都约为 7 mm。泊车传感器探测范围为 2.5 至 3 m,足够保险杠使用。
水中声速约为 1,500 m/s,因此 1 m 外的回声在 1.33 ms 后返回,而非空气中的 5.83 ms。港湾鼠海豚在接近 130 kHz 处发出咔嗒声,海水中的波长约为 11.5 mm。医学超声使用 1 至 20 MHz,扫描仪假设软组织中声速为 1,540 m/s;5 MHz 时波长约为 0.31 mm,因此能显示体内精细结构,却不能探查很深。实验下方的比较表将这四种定位器并列展示。
由手构成的翅膀
按场景中的「翼骨」,就能看到皮肤下的骨架。蝙蝠的翅膀就是一只手:上臂、长前臂、带爪的短拇指,以及四根极长的手指。皮肤张在手指之间,从第五指向后连到腿部,还分布在臂前、双腿与尾部之间;踝部的一根软骨突撑住边缘。模型中的手在上拍时收拢,下拍时展开。模型骨长是按翼展约 32 cm 的棕蝠缩放的模型数值。
常见问题
人能听到蝙蝠吗?
蝙蝠的大多数叫声高于 20 kHz,超出人耳听觉范围。一些物种叫声较低:斑点蝠在 9 至 12 kHz 发声,很多人能听到。蝙蝠还会发出较低的社交叫声。其余叫声可以用蝙蝠探测器听到。
蝙蝠是瞎子吗?
不是。蝙蝠的眼睛能正常工作,尤其果蝠视力很好。回声定位增加了一种在完全黑暗中也能工作、近距离十分精确的感觉。
蝙蝠凭回声能听多远?
取决于目标尺寸和频率。本页模型中,35 kHz 时能探测到约 3.5 m 外的飞蛾和约 8 m 外的岩壁。较大物体和较低频率能达到更远距离。
蝙蝠为什么不会把自己的回声与别的蝙蝠叫声混淆?
它们常把叫声频率略微移离邻近蝙蝠的频率,并在预期时延处聆听回声。在拥挤洞穴中这仍然很难,一些蝙蝠追逐同一只昆虫时还会故意干扰对手。
为什么回声比叫声轻那么多?
叫声在前往目标途中扩散,回声返回时再次扩散,距离每增加一倍就损失 12 dB。此外空气还会吸收声音,小昆虫也只反射到达它身上的极小一部分声音。
所有蝙蝠都会回声定位吗?
几乎所有食虫蝙蝠都会。大多数旧大陆果蝠长期被认为不会,但埃及果蝠会用舌头发出咔嗒声,2014 年又发现另外两种果蝠能用翅膀发出的咔嗒声,在黑暗中感知物体。
什么是终末嗡鸣?
攻击的最后部分,发声频率升至每秒超过 160 次,每次叫声持续不到一毫秒。蝙蝠每隔几毫秒就能更新一次昆虫的位置。
为什么水池在回声地图上像个洞?
光滑水面像镜子一样把叫声反射到别处,几乎没有回声返回。蝙蝠把这当成水的标志,会试图从任何光滑板面饮水。
本页的声音来自真实蝙蝠吗?
不是。声音按各物种的叫声形状合成,并按慢动作倍数放慢,音高也按相同比例降低。时间扩展式蝙蝠探测器就是这样让叫声变得可听的。
海豚与蝙蝠的回声定位方式相同吗?
原理相同,两类动物分别演化出了这一能力。海豚生活在水中,声速约为空气中的 4.4 倍,因此相同距离的回声返回更快。它们的咔嗒声比大多数蝙蝠叫声短得多。
为什么同一种蝙蝠在韩国与英国的叫声音高不同?
种群之间的叫声频率存在差异。马铁菊头蝠在英国接近 82 kHz 发声,在韩国为 66 至 72 kHz,韩国济州岛的个体又高于大陆个体。该研究没有确定原因,因此目录数值最好理解为地区平均值。
蝙蝠探测器究竟做什么?
它使超声波变得可听。外差探测器播放叫声与手动调谐音调之间的差频,分频实时把所有频率除以固定数值,时间扩展则录下叫声并慢放数倍。叫声实验让你在同一轮捕猎中聆听三种方式。
飞蛾能躲过蝙蝠吗?
部分可以。身体和翅膀上的鳞片吸收超声波,使回声减弱几分贝,缩短蝙蝠发现飞蛾的距离。有耳朵的飞蛾还会俯冲逃离,一些灯蛾用咔嗒声干扰蝙蝠声纳。
术语
- 回声定位:发出声音并分析回声,以寻找物体。
- 回声时延:叫声与其回声之间的时间。距离 = 声速 × 时延 ÷ 2。
- 超声波:频率高于约 20 kHz、超出人耳听觉范围的声音。
- FM 叫声:从高频迅速扫向低频的叫声,适于测量距离。
- CF 叫声:频率近乎恒定的叫声,适于探测扑翼和多普勒频移。
- 终末嗡鸣:攻击结束时极快的发声。
- 多普勒频移:声源或反射体运动时产生的频率变化。
- 目标强度:目标反射声音的程度,以分贝表示。
- 耳屏:蝙蝠耳孔前方的小瓣。
- 时间扩展:录下超声波并慢速回放,使所有频率按同一比例降低。
- 外差:把叫声与调谐音调混合,使差频落入可听范围。
- 多普勒频移补偿:飞行时降低叫声频率,使回声以蝙蝠的参考频率返回。
- 声学伪装:吸收声音、削弱猎物回声的鳞片或毛发。
参考资料
所有地址均于 2026 年 10 月 17 日核对。PubMed 页面向 curl 返回 HTTP 203 及完整页面。
- Annemarie Surlykke 和 Elisabeth K. V. Kalko, Echolocating bats cry out loud to detect their prey. PLoS ONE 3 (2008), e2036. 声源级为 122 至 134 dB SPL,Noctilio 超过 140 dB。 https://pmc.ncbi.nlm.nih.gov/articles/PMC2323577/
- Coen P. H. Elemans, Andrew F. Mead, Lasse Jakobsen 和 John M. Ratcliffe, Superfast muscles set maximum call rate in echolocating bats. Science 333 (2011), 1885 至 1888. https://pubmed.ncbi.nlm.nih.gov/21960635/
- John M. Ratcliffe, Coen P. H. Elemans, Lasse Jakobsen 和 Annemarie Surlykke, How the bat got its buzz. Biology Letters 9 (2013). https://pmc.ncbi.nlm.nih.gov/articles/PMC3639754/
- Lasse Jakobsen, John M. Ratcliffe 和 Annemarie Surlykke, Convergent acoustic field of view in echolocating bats. Nature 493 (2013), 93 至 96. https://www.nature.com/articles/nature11664
- James A. Simmons, The resolution of target range by echolocating bats. Journal of the Acoustical Society of America 54 (1973), 157 至 173. https://pubmed.ncbi.nlm.nih.gov/4738624/
- Brian D. Lawrence 和 James A. Simmons, Measurements of atmospheric attenuation at ultrasonic frequencies and the significance for echolocation by bats. J. Acoust. Soc. Am. 71 (1982), 585 至 590. https://pubmed.ncbi.nlm.nih.gov/7085967/
- Stefan Greif 和 Björn M. Siemers, Innate recognition of water bodies in echolocating bats. Nature Communications 1 (2010), 107. https://pmc.ncbi.nlm.nih.gov/articles/PMC3060641/
- Aaron J. Corcoran, Jesse R. Barber 和 William E. Conner, Tiger moth jams bat sonar. Science 325 (2009), 325 至 327. https://pubmed.ncbi.nlm.nih.gov/19608920/
- Aaron J. Corcoran 和 William E. Conner, Bats jamming bats: food competition through sonar interference. Science 346 (2014), 745 至 747. https://pubmed.ncbi.nlm.nih.gov/25378624/
- Jesse R. Barber 等, Moth tails divert bat attack: evolution of acoustic deflection. PNAS 112 (2015), 2812 至 2816. https://pmc.ncbi.nlm.nih.gov/articles/PMC4352808/
- Hannah M. ter Hofstede 和 John M. Ratcliffe, Evolutionary escalation: the bat-moth arms race. Journal of Experimental Biology 219 (2016), 1589 至 1602. https://pubmed.ncbi.nlm.nih.gov/27252453/
- Alan D. Grinnell, Early milestones in the understanding of echolocation in bats. Journal of Comparative Physiology A 204 (2018), 519 至 536. https://pubmed.ncbi.nlm.nih.gov/29687162/
- Peter T. Madsen 和 Annemarie Surlykke, Functional convergence in bat and toothed whale biosonars. Physiology 28 (2013), 276 至 283. https://pubmed.ncbi.nlm.nih.gov/23997187/
- Bertel Møhl 等, The monopulsed nature of sperm whale clicks. J. Acoust. Soc. Am. 114 (2003), 1143 至 1154. https://pubmed.ncbi.nlm.nih.gov/12942991/
- Signe Brinkløv, M. Brock Fenton 和 John M. Ratcliffe, Echolocation in oilbirds and swiftlets. Frontiers in Physiology 4 (2013), 123. https://pmc.ncbi.nlm.nih.gov/articles/PMC3664765/
- Björn M. Siemers 等, Why do shrews twitter? Communication or simple echo-based orientation. Biology Letters 5 (2009), 593 至 596. https://pmc.ncbi.nlm.nih.gov/articles/PMC2781971/
- Lore Thaler, Stephen R. Arnott 和 Melvyn A. Goodale, Neural correlates of natural human echolocation in early and late blind echolocation experts. PLoS ONE 6 (2011), e20162. https://pmc.ncbi.nlm.nih.gov/articles/PMC3102086/
- Liam J. Norman, Caitlin Dodsworth, Denise Foresteire 和 Lore Thaler, Human click-based echolocation: effects of blindness and age, and real-life implications in a 10-week training program. PLoS ONE 16 (2021), e0252330. https://pmc.ncbi.nlm.nih.gov/articles/PMC8171922/
- Yossi Yovel, Michal Geva-Sagiv 和 Nachum Ulanovsky, Click-based echolocation in bats: not so primitive after all. J. Comp. Physiol. A 197 (2011), 515 至 530. https://pubmed.ncbi.nlm.nih.gov/21465138/
- Animal Diversity Web (University of Michigan), Eptesicus fuscus: FM 叫声持续 1 至 5 ms,从 50 降至 25 kHz。 https://animaldiversity.org/accounts/Eptesicus_fuscus/
- Animal Diversity Web, Euderma maculatum: 叫声为 9 至 12 kHz。 https://animaldiversity.org/accounts/Euderma_maculatum/
- Bat Conservation Trust, Greater horseshoe bat: 近乎恒频的叫声,约 82 kHz。 https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/greater-horseshoe
- Bat Conservation Trust, Brown long-eared bat (低语蝙蝠). https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/brown-long-eared-bat
- Hans-Ulrich Schnitzler 和 Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. J. Comp. Physiol. A 197 (2011), 541 至 559. https://www.ebi.ac.uk/europepmc/webservices/rest/search?query=EXT_ID:20857119&format=json&resultType=core
- Arjan Boonman, Sara Bumrungsri 和 Yossi Yovel, Nonecholocating fruit bats produce biosonar clicks with their wings. Current Biology 24 (2014), 2962 至 2967. https://pubmed.ncbi.nlm.nih.gov/25484290/
- NASA Glenn Research Center, Speed of Sound. https://www.grc.nasa.gov/www/k-12/airplane/sound.html
- NOAA Ocean Service, What is sonar? https://oceanservice.noaa.gov/facts/sonar.html
- National Institute of Biomedical Imaging and Bioengineering, Ultrasound. https://www.nibib.nih.gov/science-education/science-topics/ultrasound
- Bosch Mobility, Ultrasonic sensor: 探测范围为 15 cm 至 5 m。 https://www.bosch-mobility.com/en/solutions/sensors/ultrasonic-sensor/
- 空气中的声吸收: ISO 9613-1:1993, Acoustics, attenuation of sound during propagation outdoors, part 1 (模型采用的公式)。
- 场景下方列表中每种动物和机器的资料来源,都通过相应卡片链接。
- Dai Fukui, David A. Hill, Sun-Sook Kim 和 Sang-Hoon Han, Echolocation call structure of fourteen bat species in Korea. Animal Systematics, Evolution and Diversity 31 (2015), 160 至 175. 附录 1 列出每份录音。 https://accesson.kr/ased/v.31/3/160/56358
- National Institute of Biological Resources, National Species List of Korea (2019), Chiroptera. https://www.nibr.go.kr/aiibook/catImage/21/National%20Species%202.pdf
- Paolo Agnelli 及其同事(编), Guidelines for bat monitoring. Quaderni di Conservazione della Natura 19 bis, Italian Ministry of the Environment 和 ISPRA (2004). 外差、分频和时间扩展。 https://www.isprambiente.gov.it/files/pubblicazioni/quaderni/conservazione-natura/files/6732_19bisEngChirotteri_completo.pdf
- Hans-Ulrich Schnitzler 和 Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. Journal of Comparative Physiology A 197 (2011), 541 至 559. https://pubmed.ncbi.nlm.nih.gov/20857119/
- Thomas R. Neil 及其同事, Thoracic scales of moths as a stealth coating against bat biosonar. Journal of the Royal Society Interface 17 (2020), 20190692. https://pubmed.ncbi.nlm.nih.gov/32093539/
- Thomas R. Neil 及其同事, Moth wings are acoustic metamaterials. PNAS 117 (2020), 31134 至 31141. https://pmc.ncbi.nlm.nih.gov/articles/PMC7733855/
- Bat Conservation Trust, 有关纳氏鼠耳蝠、须鼠耳蝠、宽耳蝠、莱氏山蝠、纳氏伏翼、灰大耳蝠和阿氏鼠耳蝠的物种页面。 https://www.bats.org.uk/about-bats/what-are-bats/uk-bats
- Line A. Kyhn 及其同事, Clicking in a killer whale habitat: narrow-band, high-frequency biosonar clicks of harbour porpoise and Dall's porpoise. PLOS ONE 8 (2013), e63763. https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0063763
- StatPearls (NCBI Bookshelf), Ultrasound Physics and Instrumentation. 临床频率为 1 至 20 MHz,软组织中声速为 1,540 m/s。 https://www.ncbi.nlm.nih.gov/books/NBK570593/
- NOAA National Ocean Service, Basics of Underwater Sound. 海水中声速为 1,500 m/s。 https://cdn.oceanservice.noaa.gov/oceanserviceprod/about/environmental-compliance/final-fact-sheets/NOS%20Final%20PEIS_Fact%20Sheet_Basics%20of%20Underwater%20Sound.pdf
- Bosch, Ultrasonic sensor (Gen. 4) for parking aid systems, 主要数据表。约 48 kHz,最大范围 2.5 至 3 m。 https://hexagondownloads.blob.core.windows.net/public/AutonomouStuff/wp-content/uploads/2019/05/Neobotix_Ultrasonic_sensors_whitelabel.pdf
解说文章与模拟采用 CC BY-NC-SA 4.0 许可,另有说明的除外。
路线 4 / 8
光与声音更多展品
八音盒:演奏原理与插针体验
长 30.6 mm 的钢制梳齿以 261.6 Hz 振动,若把长度减半,音高就会升高两个八度。
留声机工作原理:从锡箔到盒式磁带与 CD
1877 年,爱迪生第一台留声机把人声刻进锡箔,再由同一根针从间距 2.54 mm 的声槽中重放。
钢琴是怎么发声的:三角钢琴击弦机与十二平均律
把琴键按下 10 毫米,毡槌就飞向琴弦,敲弦,并在来得及让音停下之前弹开。
声波原理:看懂频率、分贝与声音传播
440 Hz 的纯音把空气压成相距 78 厘米的密层,但即使达到 94 dB,每一小团空气的位移仍不到千分之一毫米。
黑胶唱片怎样记录声音
在 LP 唱片的最外圈,音槽以每秒半米的速度从唱针下滑过;到最后一首歌时,已经慢到每秒 21 厘米。
闪电与雷声:观察形成过程与传播原理
闪电通道将空气加热到太阳表面温度的约五倍,而雷声每传播一千米到你这里,约需 3 秒。