FIG. 86Sentidos
¿Cómo ven los murciélagos con el sonido? La ecolocalización
El eco de una polilla a 1 m vuelve al murciélago en menos de 6 milésimas de segundo, y ese retardo le dice a qué distancia está.
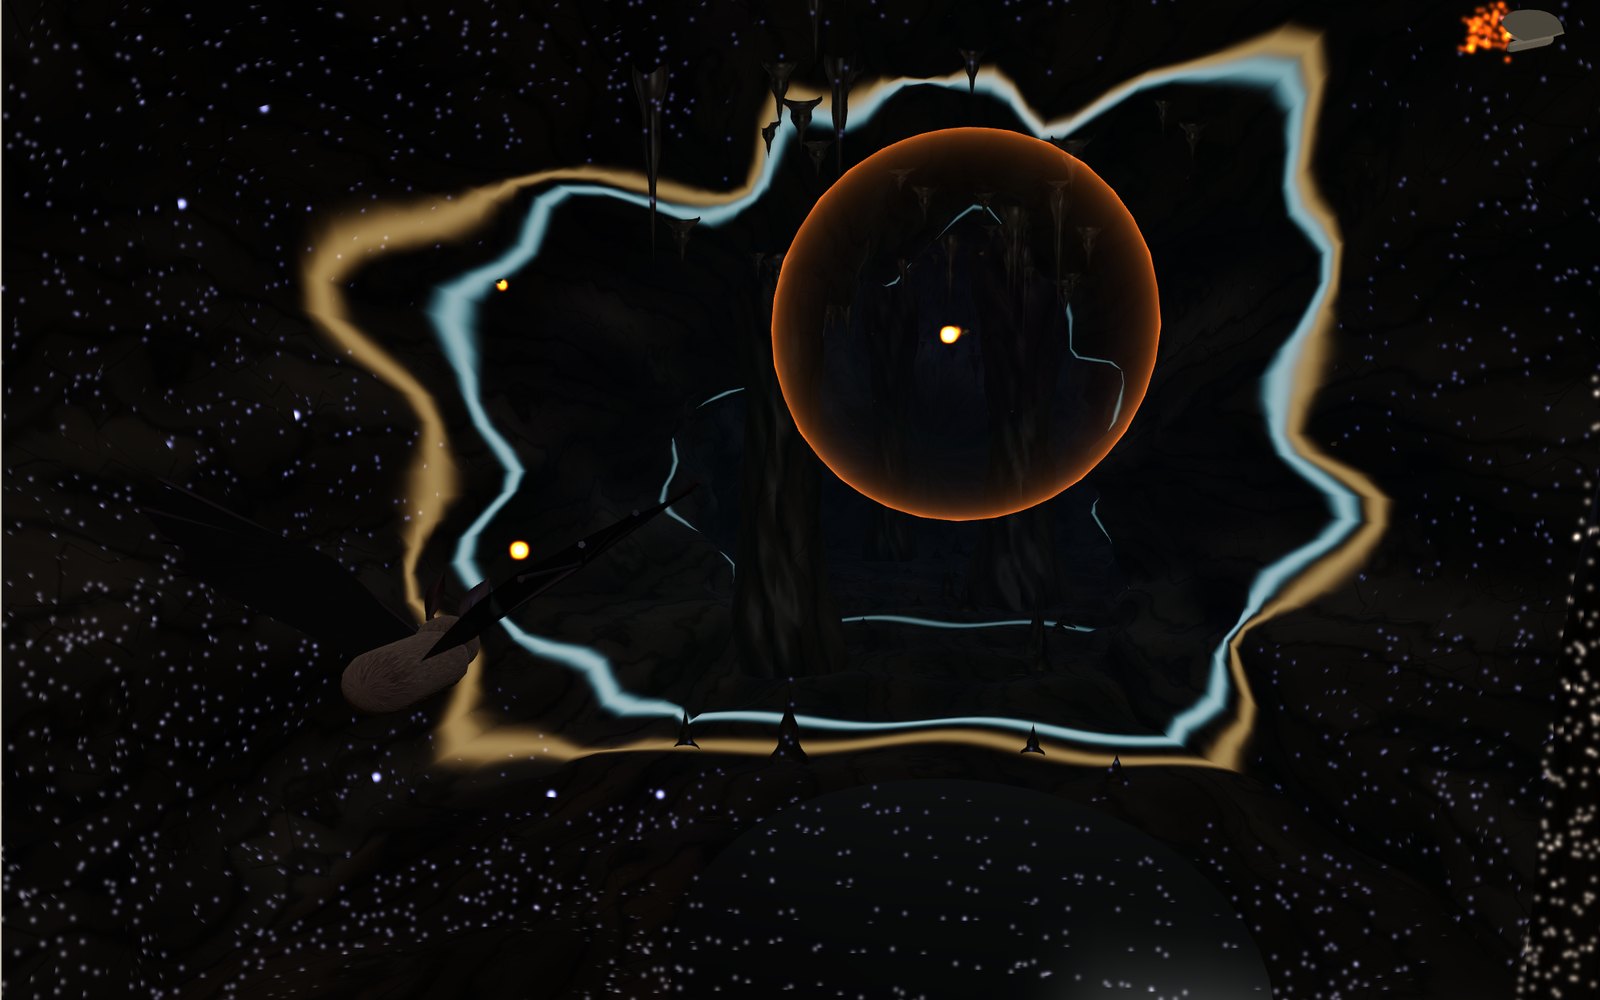
Este dispositivo no puede mostrar el modelo 3D. Abajo puedes leer los pasos de la guía como texto.
1 / 10 Una cueva sin luzEn esta cueva no hay luz. El murciélago ha enviado una llamada; la capa brillante es el sonido que se propaga a 343 m/s. Toca «Chillar» para llamar otra vez, o sigue estos pasos.
Arrastra para girar. Usa la rueda o pellizca para ampliar.
Una palmada en un pasillo oscuro
Ponte en un pasillo largo y vacío con los ojos cerrados y da una palmada. Oyes la palmada y, un instante después, una copia débil, y te haces una idea aproximada de lo lejos que está la pared del fondo. Un murciélago hace lo mismo cientos de veces por minuto, con sonidos demasiado agudos para nosotros, y lo hace tan bien que atrapa una polilla en pleno vuelo en total oscuridad.
Esto se llama ecolocalización: emitir un sonido, escuchar lo que vuelve y deducir del eco dónde están las cosas y cómo son. Esta exposición te pone en una cueva de caliza sin nada de luz. Un murciélago pardo grande llama, y puedes ver cada llamada propagarse por la cueva, rebotar en paredes, columnas, gotas e insectos, y volver. Cuando un eco llega a casa se convierte en un punto luminoso. Pasados unos segundos, esos puntos forman una imagen de la cueva, y esa imagen es la única que tiene el murciélago.
Cómo usar el escenario
Pulsa «Chillar» para que el murciélago llame una vez. La capa brillante es el frente del sonido y se dibuja más brillante hacia donde apunta el murciélago. Cuando la capa llega a algo sólido, puede salir de ahí una capa ámbar de vuelta, y cuando el eco llega al murciélago aparece un punto en el mapa de ecos. Los puntos cálidos están cerca, los azules lejos y los naranjas son polillas. Los puntos se apagan pasado el tiempo que fija el control «Memoria del eco».
Los botones bajo el escenario fijan la cámara lenta. El sonido en el aire recorre 343 metros en un segundo, y una llamada entera con todos sus ecos habría terminado antes de que pudieras ver nada. A 100 veces más lento, la llamada avanza a unos 3,4 metros por segundo. «Cazar la polilla» lanza al murciélago tras la polilla más cercana a velocidad de vuelo real (mostrada 10 veces más lenta), y el ritmo de llamadas sube solo a medida que se acerca.
En el panel «Controles» puedes cambiar la especie de murciélago, fijar a mano la fase de caza, detener las llamadas automáticas, activar el sonido, mostrar el desplazamiento Doppler del eco de la polilla, dejar que la polilla bloquee el sonar, encender una lámpara y mostrar el haz del sonar. Bajo los controles, una calculadora de eco hace la aritmética de esta página para cualquier distancia, temperatura y frecuencia. Bajo el escenario hay una lista de 34 animales y máquinas que encuentran cosas por el eco.
La distancia a partir de un retardo
La regla en el centro de la ecolocalización es corta. El sonido viaja a una velocidad conocida. Si un eco llega un tiempo t después de salir la llamada, el sonido ha ido hasta el objetivo y ha vuelto, así que el objetivo está a
distancia = velocidad del sonido × t ÷ 2
En aire seco, la velocidad del sonido depende de la temperatura. Es la raíz cuadrada de 1,4 × 287,05 × T, donde T es la temperatura en kelvin. A 20 °C da 343,2 m/s. A 0 °C son 331,3 m/s, y en una noche de verano a 30 °C son 349,0 m/s. Un murciélago en una cueva fría y otro sobre un prado cálido viven con reglas ligeramente distintas, separadas un 5 por ciento aproximadamente.
Con 343,2 m/s, los retardos del eco salen así:
| Distancia | Retardo del eco |
|---|---|
| 10 cm | 0,58 ms |
| 1 m | 5,83 ms |
| 3 m | 17,48 ms |
| 5 m | 29,14 ms |
| 10 m | 58,27 ms |
| 20 m | 116,54 ms |
Así, la columna a 10 metros delante del murciélago responde a las 58 milésimas de segundo aproximadamente, y la polilla a 3 metros a las 17. Una diferencia de un microsegundo en el retardo equivale a solo 0,17 mm de distancia. Los murciélagos no pueden usar tiempos tan finos, pero los experimentos de James Simmons en la década de 1970 mostraron que murciélagos pardos grandes entrenados podían decir cuál de dos objetivos estaba más cerca solo por el retardo del eco.
En el escenario el tiempo es real: cada punto se dibuja en el momento en que llegaría su eco, escalado por la cámara lenta. Mira cómo una llamada llega al final del túnel y verás que los puntos lejanos se encienden los últimos.
Por qué las llamadas son tan agudas
La mayoría de las llamadas de murciélago son ultrasónicas, por encima del límite del oído humano, de unos 20 kHz. El murciélago pardo grande del escenario barre de unos 50 kHz a 25 kHz en pocos milisegundos. El pipistrelo común es más fuerte cerca de 45 kHz y el murciélago grande de herradura mantiene un tono cerca de 82 kHz.
La razón es el tamaño de la onda. La longitud de onda es la velocidad del sonido dividida por la frecuencia. A 10 kHz es de 34 mm, a 35 kHz de unos 10 mm y a 82 kHz de unos 4 mm. Un objetivo mucho menor que la longitud de onda apenas perturba la onda y devuelve muy poco; el eco de una esfera pequeña cae aproximadamente con la cuarta potencia de la relación entre tamaño y longitud de onda. Un mosquito mide unos pocos milímetros. Para obtener de él un eco fuerte, el murciélago necesita también una longitud de onda de pocos milímetros.
Las frecuencias altas tienen un coste. El aire absorbe el sonido, y absorbe mucho más las frecuencias altas. Con la fórmula estándar de absorción en el aire (ISO 9613-1) a 20 °C y 50 por ciento de humedad, la pérdida es de unos 0,16 dB por metro a 10 kHz, 0,52 dB a 20 kHz, 1,13 dB a 35 kHz, 2,67 dB a 82 kHz y 3,28 dB a 100 kHz. El eco paga ese precio dos veces, a la ida y a la vuelta. A 100 kHz, un objetivo a 5 metros pierde 33 dB solo por el aire.
Mueve el control «Murciélago» del murciélago pardo grande al murciélago grande de herradura y mira el mapa de ecos: el tono agudo dibuja un mapa más nítido pero más corto. Pásalo al murciélago manchado, que llama a 9 a 12 kHz, y el mapa llega hondo en el túnel, pero cada punto es más borroso.
Qué tan fuerte y qué tan lejos
Los murciélagos son ruidosos. Las grabaciones de campo de Annemarie Surlykke y Elisabeth Kalko en Panamá hallaron niveles de emisión de 122 a 134 dB SPL, medidos a 10 cm delante del murciélago, en los que cazan al aire libre. Dos especies que cazan sobre el agua promediaron unos 137 dB y superaron los 140 dB. No oímos nada de eso solo porque es demasiado agudo.
Lo necesitan. Un sonido que se propaga en todas direcciones pierde 6 dB cada vez que se duplica la distancia. El eco se vuelve a propagar a la vuelta, así que el viaje de ida y vuelta pierde 12 dB por cada duplicación de la distancia. Una polilla refleja solo una parte minúscula de lo que le llega. El modelo del escenario usa la ecuación del sonar:
nivel del eco = nivel de emisión − 40 log₁₀(r ÷ 0,1 m) − 2 × absorción × r + fuerza del objetivo
Con una llamada de 120 dB a 10 cm, una fuerza del objetivo de la polilla de −30 dB y un umbral de audición de 20 dB, el murciélago del modelo oye una polilla hasta unos 3,5 m a 35 kHz, 3,1 m a 50 kHz y 2,6 m a 82 kHz. Una pared de roca devuelve mucho más y se oye hasta unos 8 m a 35 kHz. Son números del modelo, pero concuerdan con la imagen del campo: las presas se encuentran a pocos metros, y las paredes y los árboles a varias veces esa distancia. Surlykke y Kalko también notaron que los murciélagos más ruidosos usaban las frecuencias más altas, lo que parece devolver sus distancias de detección al nivel de los demás.
La línea «Polilla oída hasta» del panel del escenario muestra esta distancia del modelo para el murciélago elegido. La polilla solo se vuelve naranja en el mapa de ecos cuando está dentro de ese alcance.
Búsqueda, aproximación y zumbido final
Hacia 1960, Donald Griffin y sus colegas grabaron murciélagos cazando insectos y vieron que las llamadas cambian de forma regular. En la búsqueda, un murciélago pardo grande llama unas 10 veces por segundo, y cada llamada dura varios milisegundos. Muchos murciélagos llaman una vez por aleteo en esta fase, así que aletear, respirar y llamar comparten un ritmo. Al detectar un insecto entra en la fase de aproximación: las llamadas se acortan y llegan más rápido. En los últimos cientos de milisegundos llega el zumbido final, cuando el ritmo sube por encima de 160 llamadas por segundo y las llamadas se reducen a bastante menos de un milisegundo.
Parte de la razón es una simple cuestión de tiempos. Un murciélago suele esperar el eco que le interesa antes de volver a llamar, para que eco y llamada no se solapen. Desde 5 metros el eco tarda 29 ms, lo que permite como mucho unas 34 llamadas por segundo. Desde 1 metro tarda 5,8 ms, lo que permite 172. Desde 50 cm permite 343. Cuanto más cerca está la presa, más rápido puede llamar el murciélago y más a menudo sabe adónde se ha movido la polilla.
No es toda la historia. En 2011 Coen Elemans y sus colegas descubrieron que los murciélagos tienen músculos superrápidos en la laringe, entre los más rápidos que se conocen en mamíferos, y que el ritmo máximo de llamadas lo fija la rapidez con que trabajan esos músculos, no solo el solapamiento de ecos. Pon el control «Fase de caza» en «Zumbido final» y las capas salen del murciélago tan rápido que se anidan unas dentro de otras.
Qué dirección: dos oídos
La distancia sale del tiempo. La dirección sale de comparar los dos oídos. Un eco que viene de la derecha llega al oído derecho un poco antes que al izquierdo, y además es un poco más fuerte, porque la cabeza hace sombra al oído lejano. En el modelo los oídos están separados unos 1,6 cm, así que la mayor diferencia de tiempo, para un eco justo de lado, es de unos 47 microsegundos. Un eco a 10 grados del centro da unos 8 microsegundos. El panel muestra esta diferencia para la polilla.
Arriba y abajo es más difícil, porque ambos oídos están a la misma altura. Aquí ayuda la forma de la oreja. El pequeño pliegue delante de la abertura del oído, el trago, añade su propio eco dentro del oído, y el momento de ese diminuto eco extra depende de si el sonido vino de arriba o de abajo. Además, los murciélagos mueven la cabeza y las orejas entre llamadas, y con cada llamada oyen la escena desde un ángulo algo distinto. El murciélago del escenario gira un poco la cabeza entre llamadas, y así se va llenando su mapa.
Doppler: ¿se acerca la polilla?
Cuando el murciélago vuela hacia una pared, cada cresta de onda de su llamada sale de un punto algo más cercano que la anterior, así que la pared recibe una frecuencia ligeramente más alta. La pared devuelve ese sonido a un murciélago que sigue acercándose, y la frecuencia sube otra vez. Para un murciélago que vuela a velocidad v hacia un objetivo quieto, el eco vuelve a
f × (c + v) ÷ (c − v)
A 4 m/s, una llamada de 82 kHz vuelve a unos 83,9 kHz, casi 2 kHz más alta. Si el objetivo también se mueve, su velocidad se suma de la misma manera. Activa «Desplazamiento Doppler» y el panel muestra la frecuencia del eco de la polilla y cuánto se aparta de la llamada.
Los murciélagos de herradura lo aprovechan al máximo. Su llamada es un tono largo, casi constante, y su oído tiene una banda estrecha de sintonía muy fina cerca de la frecuencia de su eco, que a veces se llama fóvea acústica. Al volar hacia delante, el murciélago de herradura baja su llamada justo lo necesario para que el eco desplazado por el Doppler caiga en esa banda. A 4 m/s llama a unos 80,1 kHz para que el eco vuelva cerca de 82 kHz. Frente a ese tono constante, las alas batientes de un insecto hacen que el eco parpadee en tono e intensidad, y el murciélago puede distinguir una polilla que aletea entre hojas quietas. Elige el murciélago grande de herradura en el control «Murciélago» para ver los números.
Qué dicen los ecos de las superficies
La roca rugosa dispersa el sonido en todas direcciones. Donde cae el haz, una parte vuelve directa, y por eso las paredes de la cueva se llenan de puntos. Una superficie lisa actúa, en cambio, como un espejo. La llamada rebota con el mismo ángulo con el que llegó y se aleja, y solo la parte del agua justo debajo del murciélago devuelve eco.
Por eso el estanque del escenario queda oscuro en el mapa de ecos. Stefan Greif y Björn Siemers mostraron en 2010 que los murciélagos tratan como agua cualquier superficie grande y acústicamente lisa. Murciélagos salvajes de 15 especies intentaron beber de placas lisas de metal, madera y plástico, incluso cuando las placas estaban a plena vista. Las crías que nunca habían visto agua hicieron lo mismo, lo que sugiere que la regla es innata. En el escenario, el estanque aparece como un hueco en el mapa con un único punto brillante bajo el murciélago.
Las polillas se defienden
Las polillas llevan decenas de millones de años siendo cazadas por murciélagos, y muchas tienen respuestas. Una gran parte de las polillas tiene oídos que oyen las llamadas de los murciélagos. Cuando una llamada se vuelve fuerte, se lanzan en picado, dan giros o se dejan caer al suelo. Algunos murciélagos, a su vez, llaman con frecuencias que esos oídos oyen mal, o muy bajito. El orejudo dorado se conoce en Gran Bretaña como el murciélago susurrador.
Algunas polillas tigre responden. En 2009 Aaron Corcoran, Jesse Barber y William Conner filmaron en la oscuridad a murciélagos pardos grandes atacando a la polilla tigre Bertholdia trigona. Cuando el murciélago entraba en su zumbido final, la polilla producía ráfagas densas de chasquidos ultrasónicos, y los murciélagos fallaban. Los chasquidos parecen confundir al murciélago sobre lo lejos que está la polilla. Activa «La polilla bloquea el sonar» y empieza una caza: el eco de la polilla se corre en puntos rojos a distancias equivocadas, y en este modelo el murciélago suele pasarse de largo.
Las polillas luna usan otro truco. Sus largas colas de las alas traseras giran al volar y devuelven ecos propios. En experimentos de Barber y sus colegas, los murciélagos apuntaron a las colas en más de la mitad de sus ataques, y las polillas con cola sobrevivieron un 47 por ciento más a menudo que las que no la tenían. Los murciélagos también se bloquean entre sí: los murciélagos de cola libre mexicanos que persiguen el mismo insecto emiten una llamada especial que hace fallar al rival.
Otros animales que se ecolocalizan
Los murciélagos son los más conocidos, pero no los únicos. Los cetáceos con dientes, incluidos delfines y marsopas, se ecolocalizan bajo el agua, donde el sonido viaja unas 4,4 veces más rápido que en el aire. Sus chasquidos son cortos y muy fuertes. Los chasquidos de cachalote en el eje, registrados por Bertel Møhl y sus colegas, llegaron a 236 dB re 1 µPa, los sonidos más fuertes que se conocen de cualquier animal. Peter Madsen y Annemarie Surlykke han mostrado cuánto se parecen los sonares de los murciélagos y de los cetáceos con dientes, aunque los dos grupos los desarrollaron por separado.
También dos tipos de aves se ecolocalizan. El guácharo de Sudamérica come fruta de noche y anida muy dentro de cuevas, y las salanganas de cueva del Indo-Pacífico también anidan en cuevas oscuras. Ambos usan chasquidos lo bastante graves para que las personas los oigan, que se propagan bien pero muestran menos detalle. Las musarañas gorjean más cuando exploran lugares con obstáculos, y las grabaciones sugieren que sus llamadas dan ecos útiles a corta distancia. Incluso algunos murciélagos frugívoros que se creía que no se ecolocalizaban se orientan en la oscuridad con chasquidos hechos con las alas.
Personas que se ecolocalizan
Algunas personas ciegas se ecolocalizan con chasquidos de la boca. En 2011 Lore Thaler, Stephen Arnott y Melvyn Goodale escanearon el cerebro de dos expertos ciegos mientras escuchaban grabaciones de sus propios chasquidos y ecos. Los ecos activaron la parte del cerebro que normalmente se ocupa de la visión, no áreas auditivas adicionales. Un estudio de entrenamiento de 2021 en la Universidad de Durham enseñó a adultos ciegos y videntes de 21 a 79 años a ecolocalizarse con chasquidos en 20 sesiones a lo largo de diez semanas. Los dos grupos mejoraron mucho, y ni la edad ni la ceguera limitaron la rapidez con que aprendieron.
Los chasquidos humanos son de unos pocos kilohercios, así que sus longitudes de onda rondan los 10 cm. Eso basta para percibir una pared, una puerta o un coche aparcado, pero no una polilla.
Máquinas que hacen lo mismo
Los barcos usan sonar, que funciona con la misma regla que el murciélago con la velocidad del sonido en el agua, de unos 1500 m/s. Un eco del fondo marino a 10 m de profundidad vuelve a los 13 ms aproximadamente. La ecografía médica envía al cuerpo sonido de megahercios, donde sus longitudes de onda de escala milimétrica pueden mostrar el contorno de órganos y del corazón. Los sensores de aparcamiento del parachoques de un coche usan ultrasonido para medir el tiempo de los ecos y encontrar obstáculos desde unos 15 cm hasta 5 m.
Una breve historia
En la década de 1790 Lazzaro Spallanzani descubrió que los murciélagos cegados seguían volando sin chocar con nada, y Louis Jurine demostró que los murciélagos con los oídos tapados no podían. Nadie sabía explicar cómo, pues los murciélagos parecían silenciosos. La respuesta tuvo que esperar a un micrófono que oyera ultrasonidos. En 1938 Donald Griffin, entonces estudiante de Harvard, llevó murciélagos al físico George Pierce, que había construido un detector de ultrasonidos. Con Robert Galambos, Griffin mostró después que los murciélagos emiten pulsos ultrasónicos y usan sus ecos para evitar obstáculos, y en 1944 dio a esa capacidad el nombre de ecolocalización.
Qué simplifica el modelo
El murciélago del escenario se queda en su sitio entre cacerías, para que puedas mirar a su alrededor. Un murciélago real en vuelo de búsqueda nunca se detiene. La cueva está hecha de una forma matemática lisa, y los ecos se obtienen siguiendo unos cientos de rayos por esa misma forma. El sonido real es una onda, no un haz de rayos: se curva alrededor de los bordes y los ecos se solapan e interfieren. La intensidad del eco sale de una ecuación de sonar sencilla con una fuerza del objetivo fija para la roca, y el umbral de audición es un solo número.
Las polillas se tratan como puntos. El eco real de una polilla cambia con cada aleteo, y eso es parte de cómo los murciélagos reconocen a los insectos. El modelo de bloqueo es solo una imagen del resultado descrito para Bertholdia trigona: el eco de la polilla aparece a una distancia equivocada. El sonido que oyes es la llamada ralentizada por el mismo factor que la imagen, así que una llamada de 40 kHz a 100 veces más lento sale a 400 Hz. Los detectores de murciélagos que se venden para el trabajo de campo usan el mismo método, llamado expansión del tiempo.
Leer un eco de un milisegundo
Supón que el aire está quieto y la velocidad del sonido se redondea a 343 m/s. Un retardo del eco de 1 ms significa un recorrido total del sonido de 343 × 0,001 = 0,343 m. La mitad es el camino de ida, así que el reflector está a 0,1715 m, unos 17 cm. Olvidar el camino de vuelta lo pondría al doble de distancia. Este ejemplo supone que el eco vuelve por un camino directo desde el objetivo. Un reflejo que rebota en otra pared antes de volver tiene un camino más largo y no puede interpretarse como la misma distancia en línea recta.
La frecuencia no entra en esa ecuación de la distancia. A la misma temperatura del aire, una llamada de 40 kHz y una de 82 kHz tardan esencialmente lo mismo en llegar al mismo objetivo. Sus longitudes de onda son distintas. Con la velocidad del sonido redondeada, 343 ÷ 40 000 = 0,008575 m, unos 8,6 mm. Ese número describe la separación entre crestas sucesivas, no la longitud mínima del insecto que el murciélago puede detectar. Un insecto más pequeño aún puede devolver un eco; que el murciélago lo oiga depende de su orientación y de sus superficies reflectantes, de la distancia y del ruido de fondo. Las alas de un insecto también se mueven durante un ataque. Un objetivo esférico fijo es un cálculo útil, no una regla para identificar insectos.
En la calculadora de eco, pon «Temperatura del aire» en 20 °C, «Frecuencia de la llamada» en 40 kHz y «Distancia al objetivo» en 1 m. La velocidad mostrada usa la fórmula de la temperatura y no los 343 m/s redondeados que se suponían arriba, así que espera unos 5,83 ms y 8,6 mm. Duplicar la distancia duplica el retardo sin cambiar la longitud de onda. Subir la frecuencia cambia la longitud de onda y la absorción sin duplicar el retardo. Son efectos separados que una sola imagen de un eco brillante puede ocultar.
Por qué el último zumbido no es una llamada de búsqueda más rápida
La revisión de Ratcliffe y sus colegas, How the bat got its buzz, trata más que el número de sonidos de un ataque. Algunos murciélagos bajan la frecuencia fundamental en una segunda parte del zumbido. Con la misma abertura de la boca, una frecuencia más baja ensancha el haz emitido. De cerca, un insecto solo necesita moverse una distancia corta hacia un lado para salir de un haz estrecho, así que un campo de visión acústico más amplio puede ayudar al murciélago a seguir presas que esquivan. Es un compromiso con la ventaja habitual de las longitudes de onda cortas para objetivos pequeños, no una contradicción.
Un ejemplo de 200 llamadas por segundo da 1 ÷ 200 = 0,005 s, es decir, 5 ms entre inicios de llamada. En ese intervalo, el sonido a 343 m/s puede ir y volver desde unos 0,86 m. Es un cálculo ideal de tiempos, no un alcance de caza garantizado. La duración de la llamada ocupa parte del intervalo, los ecos del entorno siguen llegando y la laringe debe relajarse y contraerse de nuevo. La revisión informa de ritmos de hasta unas 220 llamadas por segundo en algunas especies; 200 no es un techo universal.
El escenario usa en cambio un ritmo nominal de zumbido final de 170 llamadas por segundo, con más límites según el retardo del objetivo. Por eso su ritmo mostrado puede ser menor cuando la polilla está lejos. También dibuja un haz más estrecho en esa fase, mientras que el estudio describe un ensanchamiento del haz en el zumbido de especies reales concretas. Usa las capas para comparar intervalos entre llamadas, no para deducir que todos los murciélagos estrechan su haz de sonar antes de la captura. La cueva animada no reproduce todos los cambios del diseño de la llamada propios de cada especie.
Una comparación controlada en pantalla
Empieza sin cazar. Usa «Borrar el mapa de ecos», luego «Chillar», y sigue las primeras capas de regreso antes de que se acumulen los puntos viejos. Enciende la lámpara para comparar la forma real de la cueva con el mapa de ecos incompleto. Un punto que falta no tiene por qué significar roca que falta: puede que el haz no la haya muestreado, o que el retorno sea demasiado débil. Es distinto de quitar un objeto sólido de la escena.
Para una segunda comparación, deja la especie sin cambiar y usa la calculadora de eco para variar solo «Distancia al objetivo». Lee «Retardo del eco» y «Ritmo máximo sin solapamiento» a la vez. Una distancia mayor da un retardo más largo y un ritmo de repetición ideal más bajo. La calculadora es independiente de la posición real de la polilla; mover su distancia no mueve la polilla. Esto importa cuando compares sus números con el panel del escenario.
Por último, elige el murciélago grande de herradura y vuelve después al murciélago pardo grande. El primer preajuste representa una llamada larga de frecuencia constante, y el segundo, un barrido FM corto descendente. La sintonía auditiva estrecha del murciélago de herradura real le ayuda a detectar cambios por aleteo contra el follaje; una llamada FM de banda ancha da información útil de tiempos sobre reflectores cercanos. Son énfasis distintos, no sentidos que se excluyen. Las llamadas reales de los murciélagos de herradura también incluyen partes moduladas en frecuencia. La etiqueta de «tono constante» del modelo deja esos detalles fuera a propósito.
Catorce murciélagos coreanos y sus llamadas
El catálogo comienza con 14 especies grabadas en Corea entre 2011 y 2012 por Dai Fukui, David Hill, Sun-Sook Kim y Sang-Hoon Han. Analizaron 1129 pulsos de 93 secuencias y publicaron las medias de cada grabación: frecuencias máxima y mínima, frecuencia con más energía, duración e intervalo entre llamadas. El catálogo promedia esas medias por especie y da el rango del máximo de energía entre grabaciones, mostrando su variación.
Hay tres formas. El murciélago grande de herradura emite un tono largo constante con un barrido breve en cada extremo. Nueve especies de Myotis, Murina y Plecotus hacen barridos descendentes pronunciados de 1 a 6 ms. Cuatro (Eptesicus serotinus, Hypsugo alaschanicus, Miniopterus fuliginosus y Pipistrellus abramus) comienzan con barrido y terminan casi constantes. Con cinco medidas pudieron asignar correctamente el 76,4% de las llamadas. Tonos constantes y barridos con final plano se distinguían bien; los barridos Myotis se solapaban mucho.
Destacan dos detalles. Myotis bombinus recorrió la banda más amplia: 113 kHz en una grabación, de unos 135 a 22 kHz. El murciélago grande de herradura, que llama cerca de 82 kHz en Gran Bretaña, lo hizo de 66 a 72 kHz en Corea, más alto en Jeju que en el continente. Misma especie, regiones separadas unos 12 kHz: el número es media regional, no constante. Los nombres coreanos siguen la National Species List of Korea (2019). Los llamados Myotis formosus y Murina leucogaster en el estudio figuran allí como Myotis rufoniger y Murina hilgendorfi.
Tres maneras de oír murciélagos
Un detector convierte ultrasonido en sonido audible. El método determina qué conserva. Las directrices italianas de seguimiento de Agnelli y colegas (2004) describen tres.
El detector heterodino mezcla la llamada con un tono ajustable y reproduce la diferencia. Solo se oye lo que cae a unos 5 kHz de la sintonía. Giras el dial hasta encontrar al murciélago y la lectura queda cerca de su frecuencia más intensa. Es económico y funciona en tiempo real, pero no mantiene duración ni forma. Elige Heterodino cerca del tono constante de un murciélago de herradura: se oye una nota grave constante; un barrido pronunciado cruza como un sonido breve.
La división de frecuencia divide cada frecuencia por una razón fija, aquí 10, en tiempo real. Oye a todos a la vez y conserva tiempos, pero solo la parte más intensa a un volumen y pierde armónicos. La expansión temporal graba con alta tasa de muestreo y reproduce lentamente. Las directrices dan 40 kHz y 5 ms: a 10 veces se vuelve 4 kHz y 50 ms. Conserva toda la forma, útil para identificar, pero al reproducir no escucha: 2 segundos grabados significan 20 segundos de sordera. Pulsa Reproducir en cada modo para la misma caza con búsqueda, aproximación y zumbido.
Por qué un murciélago de herradura baja su llamada
Su oído interno tiene una región muy ampliada para una banda estrecha justo sobre el tono de reposo. Hans-Ulrich Schnitzler y Annette Denzinger la llaman fóvea auditiva, por analogía con el centro nítido de la retina. En vuelo el eco de delante vuelve más agudo por Doppler y, sin ajuste, saldría de la fóvea. El murciélago baja la llamada hasta devolverlo a la referencia.
Al volar a velocidad v hacia una pared quieta, el eco vuelve a f × (c + v) ÷ (c − v); la llamada debe ser f_ref × (c − v) ÷ (c + v). A 5 m/s y referencia coreana de 69,9 kHz da unos 67,89 kHz, cerca del 2,9% menos. En Compensación Doppler, fija velocidad y ajusta hasta dejar el eco a menos de 0,2 kHz de la referencia. Dejar que lo ajuste muestra la solución exacta. Mantenerlo estable permite notar el parpadeo rítmico de las alas del insecto.
Blancos pequeños y longitud de onda
Un objeto dispersa bien cuando mide al menos longitud de onda dividida entre π. Por debajo entra en dispersión débil: el eco cae con la cuarta potencia de tamaño entre longitud. En aire es 343 m/s entre frecuencia: 17 mm a 20 kHz, 7 mm a 50 kHz y 3 mm a 110 kHz.
Por eso los insectívoros llaman agudo. Un mosquito de 2 mm da eco completo solo sobre c ÷ (π × 2 mm), unos 54,6 kHz. Una llamada grave viaja más pero pasa sobre presas pequeñas. Reduce el blanco y observa la pérdida; sube la frecuencia hasta factor 1. La distancia es valor del modelo de la ecuación de sonar de esta página, escalando el blanco por área.
Escamas que absorben sonido
Muchas polillas no tienen oídos y dependen de defensa pasiva. Thomas Neil y colegas midieron cuerpos con y sin gruesa capa de escamas torácicas. Absorbían del 32% al 85% del ultrasonido y reducían el eco corporal una mediana de 5,6 dB. Otro estudio mostró las escamas alares como metamaterial acústico: absorben hasta 72% de intensidad a 78 kHz siendo 111 veces más delgadas que la onda más larga absorbida.
Las que tienen oídos se lanzan en picado o hacen bucles ante un murciélago cercano. Algunas polillas tigre responden con clics ultrasónicos que interfieren con la medición. Los niveles representan esos pasos. Fácil no tiene defensas. Normal añade eco 5,6 dB menor y picado aleatorio a menos de 1,2 m. Difícil añade clics; el murciélago falla la mayoría, como en los experimentos de Aaron Corcoran y colegas. La captura más rápida y menos llamadas quedan por nivel en tu dispositivo.
Ecolocalizadores hechos por personas
La regla es distancia igual a velocidad del sonido por retardo dividido entre dos. Cambian medio y frecuencia. Un sensor de estacionamiento usa unos 48 kHz en aire, casi como Pipistrellus abramus a 47,5 kHz. Ambos tienen unos 7 mm de onda. El sensor alcanza de 2,5 a 3 m, suficiente para el parachoques.
Bajo el agua viaja a unos 1500 m/s: el eco de 1 m tarda 1,33 ms, no 5,83 ms del aire. Las marsopas comunes emiten cerca de 130 kHz, onda de unos 11,5 mm en agua marina. La ecografía usa de 1 a 20 MHz y supone 1540 m/s en tejido blando; a 5 MHz son unos 0,31 mm. Distingue estructura fina, pero no penetra indefinidamente. La tabla compara los cuatro.
Un ala hecha de mano
Pulsa Huesos del ala para ver el esqueleto. Es una mano: brazo, antebrazo largo, pulgar corto con garra y cuatro dedos muy largos. La piel une dedos, quinto dedo y pata, parte delantera del brazo, y patas con cola. Un espolón cartilaginoso del tobillo sostiene el borde. En el modelo, la mano se pliega al subir y se abre al bajar. Las longitudes son valores del modelo para Eptesicus fuscus con unos 32 cm de envergadura.
Preguntas
¿Pueden oír las personas a los murciélagos?
La mayoría de las llamadas de murciélago están por encima de 20 kHz, fuera del oído humano. Algunas especies llaman más grave: el murciélago manchado llama a 9 a 12 kHz, y muchas personas lo oyen. Los murciélagos también hacen llamadas sociales más graves. Con un detector de murciélagos puedes oír el resto.
¿Son ciegos los murciélagos?
No. Los murciélagos tienen ojos que funcionan, y los frugívoros en particular ven bien. La ecolocalización añade un sentido que funciona en oscuridad total y es preciso a corta distancia.
¿Hasta qué distancia oye un murciélago con los ecos?
Depende del tamaño del objetivo y de la frecuencia. En el modelo de esta página una polilla es detectable hasta unos 3,5 m a 35 kHz y una pared de roca hasta unos 8 m. Los objetos más grandes y las frecuencias más graves llegan más lejos.
¿Por qué los murciélagos no confunden sus propios ecos con las llamadas de otros murciélagos?
A menudo desplazan un poco la frecuencia de su llamada respecto a la de sus vecinos y escuchan los ecos con el retardo que esperan. En cuevas llenas sigue siendo difícil, y algunos murciélagos bloquean a propósito a sus rivales cuando persiguen el mismo insecto.
¿Por qué los ecos son mucho más débiles que la llamada?
La llamada se propaga por el camino hacia el objetivo y el eco se vuelve a propagar a la vuelta, perdiendo 12 dB cada vez que se duplica la distancia. El aire absorbe además otra parte, y un insecto pequeño refleja solo una parte diminuta del sonido que le llega.
¿Se ecolocalizan todos los murciélagos?
Casi todos los insectívoros lo hacen. Durante mucho tiempo se creyó que la mayoría de los murciélagos frugívoros del Viejo Mundo no lo hacían, pero el murciélago frugívoro egipcio chasquea con la lengua, y en 2014 se descubrió que otras dos especies perciben objetos en la oscuridad con chasquidos hechos con las alas.
¿Qué es el zumbido final?
La última parte de un ataque, cuando el ritmo de llamadas sube por encima de 160 por segundo y cada llamada dura menos de un milisegundo. El murciélago recibe una actualización nueva de la posición del insecto cada pocos milisegundos.
¿Por qué el estanque parece un hueco en el mapa de ecos?
El agua lisa refleja la llamada lejos como un espejo, así que casi no vuelve eco. Los murciélagos lo toman como señal de agua e intentan beber de cualquier placa lisa.
¿Vienen de murciélagos reales los sonidos de esta página?
No. Se sintetizan a partir de la forma de la llamada de cada especie y se ralentizan por el factor de la cámara lenta, lo que baja el tono en el mismo factor. Así hacen audibles las llamadas los detectores de murciélagos de expansión del tiempo.
¿Se ecolocalizan igual los delfines y los murciélagos?
El principio es el mismo, y los dos grupos lo desarrollaron por separado. Los delfines trabajan en el agua, donde el sonido es unas 4,4 veces más rápido, así que sus ecos vuelven antes desde la misma distancia. Sus chasquidos son mucho más cortos que la mayoría de las llamadas de murciélago.
¿Por qué el mismo murciélago llama a distinta altura en Corea y Gran Bretaña?
La frecuencia cambia entre poblaciones. El grande de herradura llama cerca de 82 kHz en Gran Bretaña y de 66 a 72 kHz en Corea, más agudo en Jeju que en el continente. El estudio no resuelve la causa: los valores son medias regionales.
¿Qué hace un detector de murciélagos?
Hace audible el ultrasonido. El heterodino reproduce la diferencia con un tono ajustado; la división divide frecuencias por un número fijo en tiempo real; la expansión temporal graba y reproduce varias veces más lento. Puedes oír los tres con la misma caza.
¿Pueden las polillas esconderse?
En parte. Las escamas corporales y alares absorben ultrasonido y debilitan el eco varios decibelios, reduciendo el alcance. Las que tienen oídos también se zambullen; algunas polillas tigre interfieren con clics.
Términos
Ecolocalización: encontrar objetos emitiendo un sonido y analizando los ecos.
Retardo del eco: el tiempo entre una llamada y su eco. Distancia = velocidad del sonido × retardo ÷ 2.
Ultrasonido: sonido por encima de unos 20 kHz, fuera del oído humano.
Llamada FM: una llamada que barre rápidamente de frecuencia alta a baja, buena para medir distancias.
Llamada CF: una llamada de frecuencia casi constante, buena para detectar alas que aletean y desplazamientos Doppler.
Zumbido final: las llamadas muy rápidas al final de un ataque.
Desplazamiento Doppler: el cambio de frecuencia cuando se mueve la fuente o el reflector.
Fuerza del objetivo: cuánto sonido refleja un objetivo, en decibelios.
Trago: el pequeño pliegue delante de la abertura del oído de un murciélago.
Expansión temporal: grabar ultrasonido y reproducirlo más lento, bajando todas las frecuencias por el mismo factor.
Heterodino: mezclar una llamada con un tono ajustado para hacer audible la diferencia.
Compensación Doppler: bajar la llamada en vuelo para devolver el eco a la frecuencia de referencia.
Camuflaje acústico: escamas o pelo que absorben sonido y debilitan el eco de la presa.
Fuentes
Todas las direcciones se comprobaron el 17 de octubre de 2026. Las páginas de PubMed responden a curl con HTTP 203 y la página completa.
- Annemarie Surlykke and Elisabeth K. V. Kalko, Echolocating bats cry out loud to detect their prey. PLoS ONE 3 (2008), e2036. Source levels 122 to 134 dB SPL, above 140 dB for Noctilio. https://pmc.ncbi.nlm.nih.gov/articles/PMC2323577/
- Coen P. H. Elemans, Andrew F. Mead, Lasse Jakobsen and John M. Ratcliffe, Superfast muscles set maximum call rate in echolocating bats. Science 333 (2011), 1885 to 1888. https://pubmed.ncbi.nlm.nih.gov/21960635/
- John M. Ratcliffe, Coen P. H. Elemans, Lasse Jakobsen and Annemarie Surlykke, How the bat got its buzz. Biology Letters 9 (2013). https://pmc.ncbi.nlm.nih.gov/articles/PMC3639754/
- Lasse Jakobsen, John M. Ratcliffe and Annemarie Surlykke, Convergent acoustic field of view in echolocating bats. Nature 493 (2013), 93 to 96. https://www.nature.com/articles/nature11664
- James A. Simmons, The resolution of target range by echolocating bats. Journal of the Acoustical Society of America 54 (1973), 157 to 173. https://pubmed.ncbi.nlm.nih.gov/4738624/
- Brian D. Lawrence and James A. Simmons, Measurements of atmospheric attenuation at ultrasonic frequencies and the significance for echolocation by bats. J. Acoust. Soc. Am. 71 (1982), 585 to 590. https://pubmed.ncbi.nlm.nih.gov/7085967/
- Stefan Greif and Björn M. Siemers, Innate recognition of water bodies in echolocating bats. Nature Communications 1 (2010), 107. https://pmc.ncbi.nlm.nih.gov/articles/PMC3060641/
- Aaron J. Corcoran, Jesse R. Barber and William E. Conner, Tiger moth jams bat sonar. Science 325 (2009), 325 to 327. https://pubmed.ncbi.nlm.nih.gov/19608920/
- Aaron J. Corcoran and William E. Conner, Bats jamming bats: food competition through sonar interference. Science 346 (2014), 745 to 747. https://pubmed.ncbi.nlm.nih.gov/25378624/
- Jesse R. Barber and others, Moth tails divert bat attack: evolution of acoustic deflection. PNAS 112 (2015), 2812 to 2816. https://pmc.ncbi.nlm.nih.gov/articles/PMC4352808/
- Hannah M. ter Hofstede and John M. Ratcliffe, Evolutionary escalation: the bat-moth arms race. Journal of Experimental Biology 219 (2016), 1589 to 1602. https://pubmed.ncbi.nlm.nih.gov/27252453/
- Alan D. Grinnell, Early milestones in the understanding of echolocation in bats. Journal of Comparative Physiology A 204 (2018), 519 to 536. https://pubmed.ncbi.nlm.nih.gov/29687162/
- Peter T. Madsen and Annemarie Surlykke, Functional convergence in bat and toothed whale biosonars. Physiology 28 (2013), 276 to 283. https://pubmed.ncbi.nlm.nih.gov/23997187/
- Bertel Møhl and others, The monopulsed nature of sperm whale clicks. J. Acoust. Soc. Am. 114 (2003), 1143 to 1154. https://pubmed.ncbi.nlm.nih.gov/12942991/
- Signe Brinkløv, M. Brock Fenton and John M. Ratcliffe, Echolocation in oilbirds and swiftlets. Frontiers in Physiology 4 (2013), 123. https://pmc.ncbi.nlm.nih.gov/articles/PMC3664765/
- Björn M. Siemers and others, Why do shrews twitter? Communication or simple echo-based orientation. Biology Letters 5 (2009), 593 to 596. https://pmc.ncbi.nlm.nih.gov/articles/PMC2781971/
- Lore Thaler, Stephen R. Arnott and Melvyn A. Goodale, Neural correlates of natural human echolocation in early and late blind echolocation experts. PLoS ONE 6 (2011), e20162. https://pmc.ncbi.nlm.nih.gov/articles/PMC3102086/
- Liam J. Norman, Caitlin Dodsworth, Denise Foresteire and Lore Thaler, Human click-based echolocation: effects of blindness and age, and real-life implications in a 10-week training program. PLoS ONE 16 (2021), e0252330. https://pmc.ncbi.nlm.nih.gov/articles/PMC8171922/
- Yossi Yovel, Michal Geva-Sagiv and Nachum Ulanovsky, Click-based echolocation in bats: not so primitive after all. J. Comp. Physiol. A 197 (2011), 515 to 530. https://pubmed.ncbi.nlm.nih.gov/21465138/
- Animal Diversity Web (University of Michigan), Eptesicus fuscus: FM calls of 1 to 5 ms from 50 to 25 kHz. https://animaldiversity.org/accounts/Eptesicus_fuscus/
- Animal Diversity Web, Euderma maculatum: calls of 9 to 12 kHz. https://animaldiversity.org/accounts/Euderma_maculatum/
- Bat Conservation Trust, Greater horseshoe bat: almost constant frequency call of about 82 kHz. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/greater-horseshoe
- Bat Conservation Trust, Brown long-eared bat (the whispering bat). https://www.bats.org.uk/about-bats/what-are-bats/uk-bats/brown-long-eared-bat
- Hans-Ulrich Schnitzler and Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. J. Comp. Physiol. A 197 (2011), 541 to 559. https://www.ebi.ac.uk/europepmc/webservices/rest/search?query=EXT_ID:20857119&format=json&resultType=core
- Arjan Boonman, Sara Bumrungsri and Yossi Yovel, Nonecholocating fruit bats produce biosonar clicks with their wings. Current Biology 24 (2014), 2962 to 2967. https://pubmed.ncbi.nlm.nih.gov/25484290/
- NASA Glenn Research Center, Speed of Sound. https://www.grc.nasa.gov/www/k-12/airplane/sound.html
- NOAA Ocean Service, What is sonar? https://oceanservice.noaa.gov/facts/sonar.html
- National Institute of Biomedical Imaging and Bioengineering, Ultrasound. https://www.nibib.nih.gov/science-education/science-topics/ultrasound
- Bosch Mobility, Ultrasonic sensor: detection range 15 cm to 5 m. https://www.bosch-mobility.com/en/solutions/sensors/ultrasonic-sensor/
- Absorción del sonido en el aire: ISO 9613-1:1993, Acoustics, attenuation of sound during propagation outdoors, part 1 (fórmula usada en el modelo).
- Las fuentes de cada animal y máquina de la lista bajo el escenario están enlazadas desde su tarjeta.
- Dai Fukui, David A. Hill, Sun-Sook Kim and Sang-Hoon Han, Echolocation call structure of fourteen bat species in Korea. Animal Systematics, Evolution and Diversity 31 (2015), 160 to 175. Appendix 1 gives every recording. https://accesson.kr/ased/v.31/3/160/56358
- National Institute of Biological Resources, National Species List of Korea (2019), Chiroptera. https://www.nibr.go.kr/aiibook/catImage/21/National%20Species%202.pdf
- Paolo Agnelli and colleagues (editors), Guidelines for bat monitoring. Quaderni di Conservazione della Natura 19 bis, Italian Ministry of the Environment and ISPRA (2004). Heterodyne, frequency division and time expansion. https://www.isprambiente.gov.it/files/pubblicazioni/quaderni/conservazione-natura/files/6732_19bisEngChirotteri_completo.pdf
- Hans-Ulrich Schnitzler and Annette Denzinger, Auditory fovea and Doppler shift compensation: adaptations for flutter detection in echolocating bats using CF-FM signals. Journal of Comparative Physiology A 197 (2011), 541 to 559. https://pubmed.ncbi.nlm.nih.gov/20857119/
- Thomas R. Neil and colleagues, Thoracic scales of moths as a stealth coating against bat biosonar. Journal of the Royal Society Interface 17 (2020), 20190692. https://pubmed.ncbi.nlm.nih.gov/32093539/
- Thomas R. Neil and colleagues, Moth wings are acoustic metamaterials. PNAS 117 (2020), 31134 to 31141. https://pmc.ncbi.nlm.nih.gov/articles/PMC7733855/
- Bat Conservation Trust, species pages for Natterer's bat, the whiskered bat, the barbastelle, Leisler's bat, Nathusius' pipistrelle, the grey long-eared bat and the Alcathoe bat. https://www.bats.org.uk/about-bats/what-are-bats/uk-bats
- Line A. Kyhn and colleagues, Clicking in a killer whale habitat: narrow-band, high-frequency biosonar clicks of harbour porpoise and Dall's porpoise. PLOS ONE 8 (2013), e63763. https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0063763
- StatPearls (NCBI Bookshelf), Ultrasound Physics and Instrumentation. Clinical frequencies 1 to 20 MHz, 1,540 m/s in soft tissue. https://www.ncbi.nlm.nih.gov/books/NBK570593/
- NOAA National Ocean Service, Basics of Underwater Sound. 1,500 m/s in sea water. https://cdn.oceanservice.noaa.gov/oceanserviceprod/about/environmental-compliance/final-fact-sheets/NOS%20Final%20PEIS_Fact%20Sheet_Basics%20of%20Underwater%20Sound.pdf
- Bosch, Ultrasonic sensor (Gen. 4) for parking aid systems, key data sheet. About 48 kHz, range up to 2.5 to 3 m. https://hexagondownloads.blob.core.windows.net/public/AutonomouStuff/wp-content/uploads/2019/05/Neobotix_Ultrasonic_sensors_whitelabel.pdf
Texto y simulación: CC BY-NC-SA 4.0, salvo que se indique lo contrario.
Itinerario 4 de 8
Luz y sonidoMás exposiciones
Cómo funciona una caja de música: peine, cilindro y muelle
Un diente de acero de 30,6 mm suena a 261,6 Hz, y cortarlo a la mitad de longitud subiría la nota dos octavas.
Fonógrafo: cómo funciona, del estaño al casete y al CD
El primer fonógrafo de Edison grabó una voz en estaño en 1877 y la misma aguja la reprodujo desde un surco separado 2,54 mm.
Cómo funciona un piano: mecanismo del martillo y afinación
Pulsa una tecla 10 milímetros y un martillo de fieltro vuela hasta la cuerda, la golpea y se aparta antes de poder apagar la nota.
Ondas sonoras: ver la frecuencia y los decibelios
Un tono de 440 Hz agrupa el aire en capas densas separadas 78 centímetros, pero incluso a 94 dB cada porción de aire se mueve menos de una milésima de milímetro.
Cómo guarda el sonido un disco de vinilo
En el borde exterior de un LP, el surco pasa bajo la aguja a medio metro por segundo; en la última canción ya va a 21 centímetros.
Rayos y truenos: cómo funcionan
El canal de un rayo calienta el aire a unas cinco veces la temperatura de la superficie del Sol, y su trueno necesita unos 3 segundos por kilómetro para llegar a ti.