FIG. 66Comment ça marche
Propagation de l’influx nerveux : testez un neurone
Une cellule nerveuse reste vers −70 mV. Si un stimulus la porte vers −55 mV, elle produit une décharge toujours de même amplitude.
Cet appareil ne peut pas afficher le modèle 3D. Les étapes de la visite ci-dessous se lisent sous forme de texte.
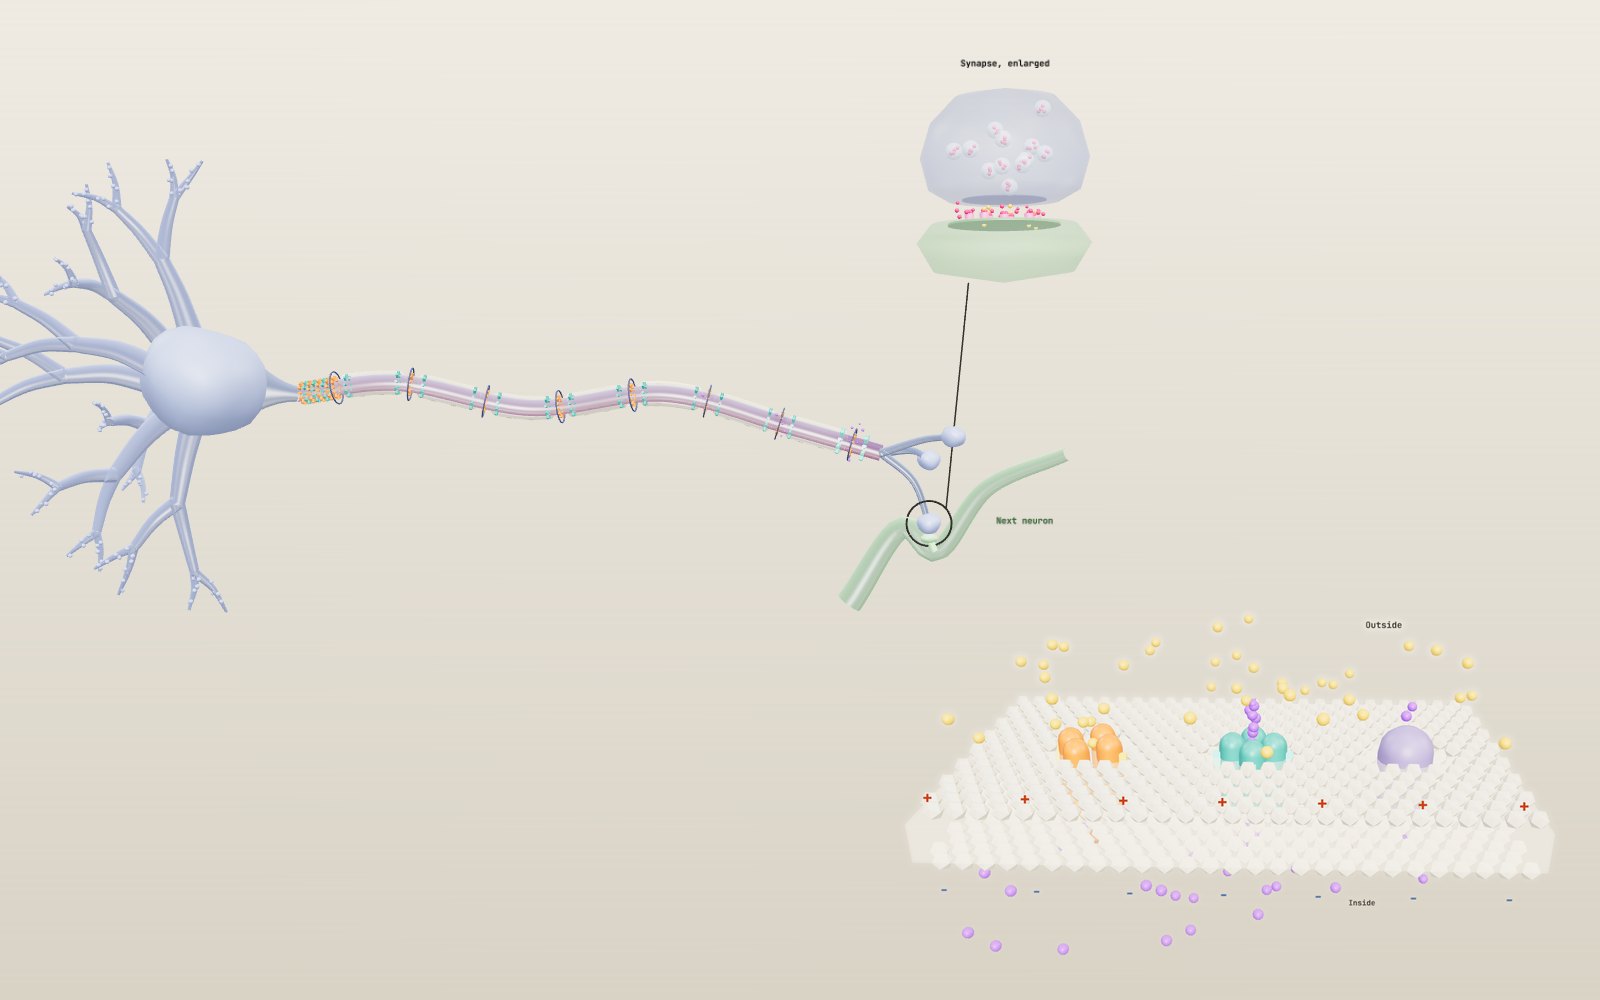
1 / 28 Un neurone de bout en boutLes signaux entrent par les dendrites à gauche et sortent aux terminaisons à droite. L’axone est raccourci et bien trop épais. Le graphique trace le potentiel du cône axonique. La barre ouvre sept autres scènes.
Faites glisser pour tourner. Molette ou pincement pour zoomer.
Que se passe-t-il quand on se cogne l’orteil ?
Quand on se cogne l’orteil, on sent d’abord le choc, puis la douleur un instant plus tard. Les deux messages remontent la même jambe, le long de fibres nerveuses, jusqu’à la moelle épinière et au cerveau. Ils n’arrivent pas en même temps parce que les fibres qui les portent sont construites différemment. Les pages Neuroscience for Kids d’Eric Chudler, à l’université de Washington, donnent aux lentes fibres de la douleur environ 2,2 milles à l’heure, moins vite qu’un marcheur, tandis que les grosses fibres du toucher approchent la vitesse d’un avion.
Sous cette différence se cache un mécanisme que toutes les cellules nerveuses utilisent. Un neurone garde son intérieur négatif sur le plan électrique ; quand une entrée assez forte arrive, il inverse cette charge pendant environ deux millisecondes et transmet l’inversion le long de son axone. À l’autre bout, le signal électrique devient un signal chimique qui franchit l’espace jusqu’à la cellule suivante.
L’exposition s’ouvre sur un neurone unique en 3D. Vous pouvez changer la force de l’entrée, retirer la myéline de l’axone, modifier son épaisseur et observer une synapse de près. La barre sous le modèle donne accès à sept autres scènes. L’une zoome sur les canaux ioniques et maintient la membrane à un potentiel fixe, comme dans les expériences des années 1940. Une autre fait courir une fibre myélinisée contre une fibre nue sur un mètre. D’autres montrent cinq neurotransmetteurs à l’œuvre, chronomètrent un réflexe rotulien du coup de marteau au coup de pied, additionnent des entrées excitatrices et inhibitrices et alignent huit types de neurones côte à côte. La dernière présente un axone géant de calmar dans une boîte, où les équations publiées par Alan Hodgkin et Andrew Huxley en 1952 tournent en direct quand vous changez le courant, la température et la dose de deux toxines. Sous les commandes se trouvent huit tâches à essayer et 51 courts cas tirés de l’histoire du sujet.
Une pile faite d’eau salée
Un neurone est un sac d’eau salée plongé dans un bain d’eau salée différente. À l’intérieur, il y a beaucoup de potassium et peu de sodium ; à l’extérieur, c’est l’inverse. OpenStax Biology donne des valeurs typiques de 145 mM de sodium à l’extérieur et 12 mM à l’intérieur, et de 4 mM de potassium à l’extérieur contre 155 mM à l’intérieur. La pompe sodium-potassium maintient cet état : pour chaque molécule d’ATP dépensée, elle expulse trois ions sodium et fait entrer deux ions potassium.
La membrane elle-même ne laisse pas passer les ions. Ils la traversent seulement par des protéines canal, et au repos les canaux ouverts sont surtout des canaux potassiques. Le potassium s’échappe selon son gradient de concentration, chaque ion emportant une charge positive, jusqu’à ce que la charge négative laissée derrière retienne les autres. Le résultat, mesuré avec une électrode à l’intérieur de la cellule et une à l’extérieur, est le potentiel de repos de la membrane : environ −70 mV. OpenStax précise que la valeur exacte varie selon le type de neurone et selon l’espèce, mais −70 mV est le chiffre employé dans la plupart des manuels et dans ce modèle.
Dans l’exposition, une membrane bleue est une membrane au repos. Le graphique dans le coin montre le potentiel au cône axonique, et avec le curseur Stimulus à zéro il reste à plat sur la ligne des −70.
À l’intérieur des canaux
Les ions traversent la membrane par des protéines, et la scène Canaux d’ions zoome sur trois d’entre elles, placées dans un carré de bicouche lipidique. Les billes blanches sont les têtes des lipides, deux feuillets séparés par une couche huileuse qu’aucun ion ne peut franchir seul.
La protéine orange est un canal sodique voltage-dépendant. C’est une longue chaîne repliée en quatre domaines semblables autour d’un pore central, une architecture que l’équipe de Shosaku Numa, à Kyoto, a déduite en 1984 en lisant le gène du canal sodique de l’anguille électrique. Chaque domaine porte un détecteur de tension, dessiné comme une cheville jaune, qui se déplace vers l’extérieur quand l’intérieur de la cellule devient moins négatif. Du côté intérieur pend une boucle, dessinée comme une boule rouge au bout d’une chaîne. Environ une milliseconde après l’ouverture du canal, cette boucle bascule dans le pore et le bouche. Le canal ne peut pas se rouvrir tant que la membrane n’est pas revenue près du repos et que la boucle n’est pas ressortie.
La protéine turquoise est un canal potassique voltage-dépendant, formé de quatre sous-unités distinctes autour d’un pore. Ses détecteurs bougent plus lentement, il s’ouvre donc plus tard que le canal sodique, et il n’a pas de bouchon rapide. En 1998, l’équipe de Roderick MacKinnon a résolu la structure d’un canal potassique bactérien et montré comment un filtre étroit, tapissé d’atomes d’oxygène, laisse passer le potassium tout en repoussant le sodium, pourtant plus petit. Ces travaux ont partagé le prix Nobel de chimie 2003.
La protéine violette, à droite, est la pompe sodium-potassium. Jens Skou l’a découverte en 1957 comme une enzyme de nerf de crabe qui ne scindait l’ATP qu’en présence de sodium et de potassium, et il a partagé le prix Nobel de chimie 1997 pour cela. Pour chaque ATP, elle expulse trois ions sodium et fait entrer deux ions potassium. La pompe est lente à côté des canaux, et elle ne produit pas le potentiel d’action. Son rôle est de maintenir les différences de concentration pendant des minutes et des heures.
Maintenir le potentiel
La scène fait fonctionner un potentiel imposé (voltage clamp), la méthode qu’ont utilisée Hodgkin et Huxley. Un amplificateur mesure le potentiel de membrane et injecte le courant nécessaire pour le maintenir à une valeur choisie. Le courant à fournir est égal et opposé au courant qui traverse les canaux : le dispositif transforme un événement rapide, qui s’auto-entretient, en quelque chose que l’on peut mesurer morceau par morceau.
La boucle maintient la membrane à −65 mV pendant 3 ms, l’élève à la valeur du Potentiel imposé pendant 12 ms, puis la ramène. Avec l’échelon par défaut à −10 mV, le graphique montre deux courants. Le courant sodique (orange, dessiné vers le bas parce que des charges positives entrent) culmine à environ 1430 µA/cm² après 0,7 ms, puis s’éteint, alors que la tension reste où elle est. Le courant potassique (turquoise, vers le haut) monte plus lentement et passe encore à environ 1430 µA/cm² à la fin de l’échelon. Les pourcentages de l’affichage donnent la fraction ouverte de chaque type de canal dans le modèle, m³h pour le sodium et n⁴ pour le potassium.
Passez à +50 mV et le courant sodique disparaît, car +50 mV est le potentiel d’équilibre du sodium dans le modèle du calmar : les canaux s’ouvrent, mais aucun flux net de sodium ne se produit. Passez à +60 mV et le courant s’inverse et sort de la cellule. Hodgkin et Huxley ont utilisé exactement ce type d’inversion pour prouver quel ion portait quel courant. Les curseurs TTX et TEA bloquent une fraction de chaque type de canal et modifient séparément les deux tracés.
Les entrées s’additionnent au cône axonique
Les dendrites sont l’extrémité réceptrice. Quand le transmetteur d’un autre neurone ouvre des canaux sur une dendrite, un peu de charge positive entre et la membrane y devient moins négative. Ces potentiels gradués sont petits et s’estompent en se propageant, mais beaucoup peuvent arriver ensemble et s’additionner. OpenStax appelle cela la sommation ; elle se produit au cône axonique, le cône où l’axone quitte le corps cellulaire, avec le premier tronçon de l’axone appelé segment initial. Ce tronçon est bourré de canaux sodiques voltage-dépendants, d’où son nom de zone gâchette.
Réglez le curseur Stimulus sur +10 mV et regardez les billes jaunes descendre le long des dendrites. Chaque salve d’entrées élève le cône à −60 mV, puis il retombe. Rien ne se propage dans l’axone.
Addition dans l’espace et dans le temps
Un vrai neurone ne reçoit pas une seule entrée à la fois. Une cellule pyramidale du cortex porte des milliers de synapses sur ses dendrites, et certaines excitent tandis que d’autres inhibent. La scène Sommation comporte six synapses excitatrices (vertes) sur les dendrites et une synapse inhibitrice (rouge) sur le corps cellulaire, près de la zone gâchette, le premier tronçon de l’axone où naît la décharge.
Dans le modèle, chaque entrée excitatrice ajoute 4 mV à son maximum, monte en environ 1 ms et s’estompe avec une constante de temps de 15 ms. Le seuil se situe 15 mV au-dessus du potentiel de repos de −70 mV, comme dans la scène du neurone. Trois entrées ensemble atteignent −58 mV et échouent. Quatre ensemble atteignent −54 mV et la zone gâchette décharge. C’est la sommation spatiale : des entrées en des lieux différents s’additionnent parce qu’elles arrivent ensemble.
Étalez-les maintenant. L’Intervalle des entrées fixe le délai entre une entrée et la suivante. Avec quatre entrées espacées de 2 ms, la première a déjà commencé à s’estomper quand la dernière arrive, et le maximum reste à −55,7 mV, juste en dessous. Huit entrées peuvent être espacées jusqu’à 4,5 ms et faire quand même décharger la cellule. C’est la sommation temporelle, et c’est pourquoi le moment des entrées compte autant que leur nombre.
L’inhibition change la somme. Cinq entrées simultanées atteindraient −50 mV, mais une entrée inhibitrice de 6 mV ou plus au même instant garde la cellule sous le seuil. Dans le cerveau, la plupart des inhibitions rapides viennent du GABA, qui ouvre des canaux chlorure, et les synapses inhibitrices ont tendance à se placer sur le corps cellulaire ou près de lui, où elles annulent les entrées de tout l’arbre dendritique. John Eccles a enregistré ces potentiels inhibiteurs dans des motoneurones de la moelle épinière et partagé le prix Nobel 1963 avec Hodgkin et Huxley.
Les 4 mV par entrée sont une valeur du modèle, choisie pour qu’une poignée d’entrées suffise. Une seule synapse sur un neurone cortical déplace en général le corps cellulaire de bien moins de 1 mV, si bien qu’une vraie cellule a besoin de dizaines d’entrées rapprochées dans le temps.
Le seuil et la loi du tout ou rien
Les canaux sodiques voltage-dépendants s’ouvrent quand la membrane atteint environ −55 mV. C’est le seuil. Dès que quelques-uns s’ouvrent, le sodium s’engouffre, la membrane devient encore moins négative et d’autres canaux s’ouvrent. La boucle s’emballe et le potentiel monte en flèche au-delà de zéro, jusqu’à environ +30 mV.
Deux choses le ramènent ensuite. Chaque canal sodique possède une seconde porte qui se ferme d’elle-même en une fraction de milliseconde, et l’entrée s’arrête. En même temps, les canaux potassiques voltage-dépendants, plus lents à réagir, s’ouvrent et laissent sortir le potassium. La membrane redescend, passe un instant sous −70 mV parce que les canaux potassiques tardent à se fermer, puis se stabilise. OpenStax situe l’ensemble de l’événement à environ 2 ms.
Sous le seuil, rien de tout cela ne se produit ; au seuil ou au-dessus, tout se produit, à la même hauteur à chaque fois. Déplacez le curseur entre +15 et +30 mV : la pointe sur le graphique démarre plus tôt, mais son sommet ne bouge jamais. C’est la loi du tout ou rien. Un stimulus plus fort ne fabrique pas un potentiel d’action plus grand. Dans les vrais neurones, il les fait venir plus souvent, et le modèle décharge lui aussi un peu plus souvent quand vous poussez le curseur.
L’axone de calmar et les équations de 1952
En 1936, le zoologiste J. Z. Young a montré que des tubes parcourant le manteau d’un calmar, pris jusque-là pour des vaisseaux sanguins, étaient des fibres nerveuses isolées pouvant atteindre environ un millimètre de large. Elles commandent la fuite par jet du calmar, et elles sont assez larges pour qu’on y glisse un fil. En 1939, Hodgkin et Huxley l’ont fait au laboratoire de Plymouth et ont enregistré pour la première fois le potentiel à l’intérieur d’un axone. La pointe ne s’arrêtait pas à zéro, contrairement à ce que prédisait la théorie de la membrane de Julius Bernstein. Elle dépassait zéro de plusieurs dizaines de millivolts.
Après la guerre, ils ont employé un potentiel imposé avec un fil d’argent enfilé le long de l’axone, de sorte que toute la longueur se comportait comme une seule plaque de membrane. Ils ont mesuré comment les courants sodique et potassique s’activaient et s’éteignaient à chaque potentiel, et en 1952 ils les ont décrits par un ensemble d’équations. Trois portes, appelées m, h et n, s’ouvrent et se ferment à des vitesses qui dépendent du potentiel. La conductance sodique est de 120 mS/cm² fois m³h, la conductance potassique de 36 mS/cm² fois n⁴, et une petite fuite de 0,3 mS/cm² complète le circuit. Les vitesses ont été mesurées à 6,3 °C, et l’article les multiplie par trois pour chaque tranche de 10 °C.
La scène Labo du calmar fait tourner ces équations sous vos yeux. Le tracé gris de l’affichage est le potentiel enregistré par le fil sur 40 ms. L’axone dans la boîte change de couleur quand le potentiel d’action le parcourt, à la vitesse que prédisent les mêmes équations.
Ce que donnent les équations
À 6,3 °C, le modèle est au repos à −65 mV, avec les portes à m = 0,053, h = 0,596 et n = 0,318. Une impulsion de 1 ms demande 6,9 µA/cm² pour déclencher une décharge. En dessous, le potentiel monte un peu et retombe. À 7 µA/cm², la pointe arrive tard, environ 5 ms après le début de l’impulsion, et culmine près de +35 mV. À 20 µA/cm², elle arrive après 1,3 ms et culmine près de +41 mV, et doubler encore le courant ajoute moins de 1 mV. Bien au-dessus du seuil, la hauteur ne change presque plus. Juste au seuil, les équations donnent une pointe un peu plus petite, un détail que la loi du tout ou rien des manuels gomme. Après la pointe, la membrane descend à environ −76 mV, près du potentiel d’équilibre du potassium de −77 mV, parce que les portes potassiques sont encore ouvertes.
Seconde impulsion après règle une deuxième impulsion. Avec deux impulsions de 20 µA/cm², la seconde échoue si elle suit la première de moins de 10,6 ms. En doublant le courant à 40 µA/cm², un écart de 7,8 ms suffit. C’est la période réfractaire relative : pendant la récupération, un stimulus plus fort peut faire décharger la membrane plus tôt. Dans les premières millisecondes, aucune impulsion n’est assez forte, c’est la période réfractaire absolue.
Courant continu remplace l’impulsion par un échelon de 150 ms. À partir d’environ 6,3 µA/cm², l’axone décharge sans cesse. À 10 µA/cm², il décharge à 69 Hz, à 20 µA/cm² à 87 Hz et à 50 µA/cm² à 118 Hz. C’est ainsi qu’une cellule nerveuse traduit l’intensité en fréquence, le code qu’Edgar Adrian a entendu dans des fibres sensorielles en 1926.
La température accélère ensemble les trois portes. À 18,5 °C, elles vont 3,8 fois plus vite, la pointe est plus étroite et plus basse, culminant près de +33 mV, et le seuil pour une impulsion de 1 ms monte à 8,9 µA/cm². À 25 °C, le maximum n’est plus que d’environ +19 mV, et à partir d’environ 28 °C une impulsion de 20 µA/cm² ne déclenche plus rien. L’inactivation du sodium et l’activation du potassium rattrapent alors l’activation du sodium avant que la pointe puisse se former.
À quelle vitesse elle voyage
La cinquième partie de l’article de 1952 faisait quelque chose de plus ambitieux. À partir du rayon mesuré de la fibre, 238 µm, et de la résistance de l’axoplasme, 35,4 Ω cm, Hodgkin et Huxley ont calculé un potentiel d’action qui se propage le long de l’axone et trouvé une vitesse de 18,8 m/s à 18,5 °C. Le même axone avait été mesuré à 21,2 m/s. Huxley a fait le calcul sur une machine à calculer mécanique à manivelle.
Le même calcul a été refait autrement, en découpant un axone de 6 cm en petits tronçons et en faisant avancer tout le câble dans le temps. Avec des tronçons de 0,5 mm, on obtient 18,7 m/s, et avec des tronçons de 0,25 mm la réponse se fixe à 18,73 m/s, à moins d’un demi pour cent de l’article. À 6,3 °C, le même câble conduit à 12,3 m/s. Le labo utilise cette vitesse calculée pour colorer l’axone.
Deux toxines
La tétrodotoxine (TTX), le poison du poisson-globe, se fixe à l’entrée extérieure des canaux sodiques voltage-dépendants et les bouche. Toshio Narahashi et ses collègues ont montré en 1964, sur des axones géants de homard, qu’elle supprime le courant sodique et laisse le courant potassique intact. Dans le modèle, une impulsion de 20 µA/cm² déclenche encore une décharge avec 71 % des canaux sodiques bloqués, et échoue au-delà. À 100 %, l’impulsion élève la membrane puis la laisse retomber, et l’onde le long de l’axone disparaît.
Le tétraéthylammonium (TEA) bloque les canaux potassiques. Dans le modèle, bloquez-en la moitié et une impulsion déclenche une courte salve de trois pointes, parce que rien ne ramène fermement la membrane vers le bas. Bloquez-en 90 % et le potentiel de repos dérive vers le haut jusqu’à ce que les canaux sodiques restent inactivés et que plus rien ne décharge. Les deux toxines sont présentées ici comme des outils de physiologistes. Ce sont des substances dangereuses, et l’exposition ne dit rien d’elles comme médicaments ou traitements.
Pourquoi le signal ne va que dans un sens
Une pointe au cône axonique pousse une charge positive le long de l’intérieur de l’axone. Cette charge amène le tronçon de membrane suivant au seuil, ses canaux sodiques s’ouvrent, et à son tour il décharge. Le tronçon situé derrière ne peut pas décharger à nouveau tout de suite, car ses canaux sodiques sont encore inactivés. C’est la période réfractaire absolue, et c’est pourquoi le potentiel d’action va vers les terminaisons et jamais vers le corps cellulaire.
Sur un axone nu, chaque tronçon doit faire cela à tour de rôle. Le résultat est une onde continue, et elle est lente. Désactivez Myéline dans les commandes et regardez la bande ambrée ramper le long de l’axone.
La myéline et les nœuds de Ranvier
La plupart des axones rapides des vertébrés sont enveloppés de myéline, couche sur couche de membrane de cellules gliales. Dans les nerfs situés hors du cerveau et de la moelle épinière, chaque enveloppe vient d’une cellule de Schwann ; dans le cerveau et la moelle épinière, ce sont les oligodendrocytes qui la fabriquent, une cellule envoyant des prolongements vers plusieurs axones. La gaine isole l’axone, si bien que le courant se propage à l’intérieur au lieu de s’échapper par la membrane.
La gaine n’est pas continue. Entre les enveloppes se trouvent des interruptions d’environ un micromètre de long, les nœuds de Ranvier, et c’est là que se trouvent les canaux sodiques voltage-dépendants. Une pointe à un nœud fait passer du courant dans le tronçon isolé assez vite pour amener le nœud suivant au seuil, et le potentiel d’action s’y reconstitue. Il semble sauter de nœud en nœud, ce qui lui a valu le nom de conduction saltatoire, du latin pour « sauter ». Dans le modèle, les nœuds s’allument l’un après l’autre tandis que les tronçons qui les séparent ne brillent que faiblement.
Le gain est considérable. Dans le Neuroscience de Purves et de ses collègues, les axones non myélinisés conduisent à environ 0,5 à 10 m/s, tandis que les axones myélinisés peuvent atteindre 150 m/s. L’épaisseur compte aussi. Un axone plus large a une résistance interne plus faible, si bien que la propagation de la charge porte plus loin. Changez le Diamètre de l’axone et la vitesse affichée dans le coin change avec lui, plus rapide pour les fibres épaisses et plus lente pour les fibres fines.
Deux façons d’aller vite
La scène Course myéline place deux axones côte à côte sur un mètre. Les deux partent à 10 µm. Le myélinisé arrive en 17,5 ms et le nu en 316 ms, soit 18 fois plus longtemps. La lueur sur la fibre du haut saute de nœud en nœud ; douze gaines seulement sont dessinées, alors qu’une fibre de 10 µm en aurait environ un millier sur un mètre, chacune d’environ 1 mm et franchie en environ 18 µs.
Les animaux ont trouvé deux réponses au problème de la vitesse. Les vertébrés enveloppent leurs axones rapides de myéline. Le calmar, comme beaucoup d’autres invertébrés, élargit plutôt l’axone, car un cœur plus large a une résistance plus faible et la propagation du courant porte plus loin. Réglez le Diamètre de l’axone nu sur 476 µm, la taille de l’axone de Hodgkin et Huxley, et la fibre nue atteint 21,8 m/s selon la règle de la racine carrée du modèle, près des 21,2 m/s qu’ils ont mesurés. Elle est 50 fois plus large que la fibre myélinisée à côté d’elle et reste presque trois fois plus lente. Une fibre myélinisée n’a besoin que d’environ 4 µm pour atteindre 21 m/s, une section plus de dix mille fois plus petite, ce qui est l’une des raisons pour lesquelles un nerf humain peut porter des milliers de fibres rapides.
Les fibres les plus rapides connues sont des fibres d’invertébrés dotées de leur propre myéline. Ke Xu et Susumu Terakawa ont passé en revue les fibres géantes des crevettes Penaeus, qui conduisent à plus de 200 m/s. Leur myéline laisse un large espace entre elle et l’axone, et au lieu de nœuds ordinaires elle présente de petites fenêtres.
Myéline lésée retire la gaine sur un tronçon au milieu de la fibre. Le modèle traite ce tronçon comme un axone nu : le signal y ralentit et arrive plus tard. Dans les vrais nerfs, le courant peut s’échapper par la membrane exposée, qui a peu de canaux sodiques, et le signal peut s’éteindre complètement. Les maladies où le système immunitaire attaque la myéline, comme la sclérose en plaques dans le cerveau et la moelle épinière ou le syndrome de Guillain-Barré dans les nerfs périphériques, ralentissent ou bloquent ainsi la conduction. La scène illustre seulement l’idée. Le NINDS, qui fait partie des National Institutes of Health américains, tient des informations pour les patients sur les deux.
Vérifier les chiffres
Le potentiel de repos est proche du potentiel d’équilibre du potassium, et l’équation de Nernst donne cette valeur à partir des deux concentrations :
E = (RT / zF) × ln(extérieur / intérieur)
À la température du corps, 37 °C, RT/F vaut 26,73 mV, ce qui fait 61,54 mV pour chaque rapport de concentration de dix. Pour le potassium, 61,54 × log₁₀(4/155) donne −97,7 mV. Pour le sodium, 61,54 × log₁₀(145/12) donne +66,6 mV. Pour le chlorure, de charge négative, les mêmes nombres donnent −90,9 mV.
La valeur de repos de −70 mV se situe entre ces deux-là parce que la membrane au repos laisse aussi entrer un peu de sodium. L’équation de Goldman pondère chaque ion selon sa facilité à traverser. Si le sodium traverse au vingtième de la vitesse du potassium (chlorure laissé de côté), la formule donne −70,2 mV. Avec un rapport d’un centième, elle tombe à −89,5 mV ; avec un dixième, elle monte à −57,0 mV. Le maximum de +30 mV reste bien en deçà des +66,6 mV du sodium, parce que les canaux sodiques s’inactivent et que les canaux potassiques s’ouvrent avant qu’il puisse y arriver.
Pour la vitesse de conduction, le modèle emploie deux règles. Une fibre myélinisée conduit à environ 5,7 m/s par micromètre de diamètre, une règle empirique du Washington University Neuromuscular Disease Center. Un axone nu reçoit 1 m/s à 1 µm, ce qui correspond aux fibres fines de la douleur, et la vitesse croît comme la racine carrée du diamètre. À 10 µm, cela fait 57 m/s avec myéline et 3,16 m/s sans, un facteur 18. Sur un mètre d’axone, le signal met 17,5 ms dans le premier cas et 316 ms dans le second. À 20 µm, la fibre myélinisée atteint 114 m/s, et sur toute l’étendue du curseur les valeurs restent dans les fourchettes des manuels.
La même source donne une longueur d’internœud d’environ 100 fois le diamètre de l’axone, soit environ 1 mm pour une fibre de 10 µm. À 57 m/s, cela fait 17,5 µs d’un nœud à l’autre, du même ordre que les 25 µs qu’elle indique. Le seuil du modèle est atteint quand l’entrée ajoute 15 mV : +20 mV le franchit après 0,42 ms, +30 mV après 0,23 ms. Tous ces chiffres ont aussi été recalculés numériquement.
De l’électricité à la chimie à la synapse
À l’extrémité de l’axone, le signal doit franchir un espace pour atteindre la cellule suivante. Quand le potentiel d’action arrive à un bouton, le renflement au bout de chaque branche terminale, des canaux calciques voltage-dépendants s’ouvrent et le calcium entre. Le calcium fait fusionner avec la membrane les vésicules synaptiques arrimées à elle, qui déversent leur neurotransmetteur dans la fente synaptique. Le transmetteur diffuse à travers et se lie à des protéines réceptrices du neurone suivant. Beaucoup de ces récepteurs sont eux-mêmes des canaux ioniques : la liaison les ouvre et des ions positifs entrent, poussant cette cellule vers son propre seuil. Ensuite le transmetteur est dégradé, s’éloigne ou est repompé, et la synapse est de nouveau prête.
OpenStax indique environ une milliseconde entre l’arrivée du potentiel d’action et l’ouverture des canaux de l’autre côté. Le gros plan du modèle montre le calcium en vert, le transmetteur en rose et les récepteurs qui brillent tant que le transmetteur y est fixé.
Cinq transmetteurs
La scène Synapse agrandit une synapse jusqu’à ce que les vésicules, la fente et les récepteurs remplissent la scène. Transmetteur permet de passer entre cinq des neurotransmetteurs les mieux connus, et chacun change les récepteurs, la réponse et la façon dont la fente est vidée.
- Le glutamate est le principal transmetteur excitateur rapide du cerveau. La plupart de ses récepteurs sont des canaux ioniques (récepteurs AMPA et NMDA) qui laissent entrer des ions positifs en une milliseconde, produisant un potentiel postsynaptique excitateur (PPSE, EPSP en anglais) rapide. Des transporteurs, souvent situés sur les astrocytes, le retirent de la fente.
- Le GABA est le principal transmetteur inhibiteur. Les récepteurs GABA-A sont des canaux chlorure, et la réponse est un potentiel postsynaptique inhibiteur (PPSI, IPSP en anglais) qui éloigne la cellule du seuil. Le GABA est fabriqué à partir du glutamate et éliminé par ses propres transporteurs.
- L’acétylcholine transmet le signal des motoneurones au muscle squelettique par des récepteurs nicotiniques, qui sont des canaux ioniques. Elle n’est pas recaptée telle quelle. L’enzyme acétylcholinestérase, dans la fente, la scinde, et la choline est recyclée. L’expérience d’Otto Loewi avec deux cœurs de grenouille, en 1921, a montré pour la première fois qu’un nerf libère une substance chimique, qui s’est révélée être l’acétylcholine.
- La dopamine n’agit que par des récepteurs couplés aux protéines G (D1 à D5). La réponse démarre plus tard, est plus petite et dure plus longtemps, et son effet principal est de modifier la façon dont la cellule cible répond à ses autres entrées. Des neurones du mésencéphale l’envoient vers le striatum et le cortex, et le transporteur de la dopamine l’élimine.
- La sérotonine est fabriquée à partir du tryptophane par les neurones des noyaux du raphé, qui atteignent la plus grande partie du cerveau. Presque tous ses récepteurs sont couplés aux protéines G ; le récepteur 5-HT3 fait exception, c’est un canal ionique. Le transporteur de la sérotonine l’élimine.
La recapture désactive les transporteurs. Les molécules restent alors plus longtemps dans la fente et la réponse se prolonge. Certains médicaments agissent sur cette étape en ralentissant un transporteur. La scène n’en montre que le principe.
La fente fait environ 20 nm de large, si bien que la diffusion à travers elle prend des microsecondes. L’essentiel du délai synaptique d’environ 1 ms est consacré à l’entrée du calcium et à la fusion des vésicules. Bernard Katz et José del Castillo ont montré en 1954, à la jonction nerf-muscle de la grenouille, que le transmetteur sort par paquets de taille fixe, rapprochés plus tard de vésicules isolées. Katz a partagé le prix Nobel 1970 avec Ulf von Euler, qui a identifié la noradrénaline comme transmetteur, et Julius Axelrod, qui a montré qu’elle est reprise dans la terminaison nerveuse après sa libération.
Le réflexe rotulien, chronométré
Un coup de marteau du médecin sous la rotule étire un instant le muscle de la cuisse. Les récepteurs d’étirement situés dans le muscle, les fuseaux neuromusculaires, déchargent, et le signal remonte les grosses fibres sensitives (appelées fibres Ia) par la racine dorsale jusqu’à la moelle épinière. Là, chaque fibre établit une synapse directement sur les motoneurones du même muscle, dont les axones ramènent aussitôt l’ordre vers le bas. Le muscle se contracte et la jambe se détend. Une seule synapse se trouve sur le trajet, ce qui explique la rapidité du réflexe. En même temps, une branche de la fibre sensitive excite un interneurone inhibiteur qui relâche les ischio-jambiers, à l’arrière de la cuisse. Charles Sherrington a élucidé cette disposition, l’inhibition réciproque, et inventé le mot synapse ; il a partagé le prix Nobel 1932 avec Adrian.
La scène Réflexe rotulien chronomètre le trajet. Le modèle prend le trajet aller du muscle à la moelle épinière comme une part de la taille : 0,29 de la taille pour le genou, dont les motoneurones se trouvent aux segments L3 et L4 de la moelle, et 0,52 pour le mollet, desservi par S1. Il envoie le signal à l’aller à 65 m/s et au retour à 55 m/s, des valeurs dans la fourchette des grosses fibres myélinisées, et ajoute trois délais fixes de 1 ms pour le fuseau, la synapse centrale et la jonction nerf-muscle. Pour une personne de 175 cm, cela fait 0,51 m dans chaque sens, 7,8 ms à l’aller et 9,2 ms au retour, 20,0 ms en tout.
Les mesures concordent. Helen Vickery et Paul Smith, à l’université de Nottingham, ont enregistré le réflexe rotulien avec des électrodes de surface sur la cuisse de 28 jeunes adultes et trouvé 17 ms chez les femmes et 21 ms chez les hommes. C. J. Frijns et ses collègues, à Amsterdam, ont mesuré les réflexes du genou et de la cheville chez 102 personnes en bonne santé et constaté que la latence augmente avec la taille, avec une corrélation de 0,70 pour le genou et de 0,72 pour la cheville. La latence de chaque personne variait à peine d’une percussion à l’autre.
Réglez Zone percutée sur Cheville. Le trajet depuis le mollet est presque deux fois plus long, et le modèle donne 33,5 ms à 175 cm. Le Washington University Neuromuscular Disease Center indique environ 30 ms pour le réflexe H du soléaire, une version électrique du réflexe achilléen qui déclenche le signal dans le nerf et non dans le fuseau. Faites passer la Taille de 140 cm à 200 cm et le réflexe rotulien passe de 16,6 ms à 22,5 ms.
Le cerveau n’intervient pas du tout, c’est pourquoi un réflexe rotulien est plus rapide que n’importe quelle réaction que l’on peut faire volontairement. Une réaction choisie prend quelques centaines de millisecondes, et l’exposition sur le temps de réaction mesure la vôtre.
De nombreuses formes de neurones
Santiago Ramón y Cajal a passé des décennies à dessiner des neurones colorés par la méthode à l’argent de Camillo Golgi et montré que ce sont des cellules séparées, aux formes reconnaissables. La scène Types neuronaux en aligne huit, toutes dessinées à la même hauteur pour que l’on puisse comparer leurs ramifications. L’affichage donne la taille réelle de chacune.
- Les cellules pyramidales sont les principaux neurones excitateurs du cortex cérébral. Une longue dendrite apicale monte vers la surface et se termine par un bouquet, tandis que les dendrites basales s’étalent autour de la base. Elles libèrent du glutamate.
- Les cellules de Purkinje du cervelet étalent leurs dendrites en un éventail plat. Des fibres parallèles croisent l’éventail à angle droit ; Richard Napper et Robert Harvey ont compté environ 175 000 synapses de fibres parallèles sur une seule cellule de Purkinje chez le rat. Ces cellules sont inhibitrices et envoient leurs axones aux noyaux cérébelleux profonds.
- Les motoneurones de la moelle épinière ont de gros corps cellulaires, de longues dendrites et un axone épais et myélinisé qui peut atteindre un muscle situé à un mètre.
- Les cellules bipolaires de la rétine ont un prolongement vers les cônes ou les bâtonnets et un vers les cellules ganglionnaires. La plupart des types transmettent des potentiels gradués plutôt que des pointes, et la rétine en compte plus de dix types.
- Les cellules granulaires du cervelet comptent parmi les plus petits neurones, avec quatre courtes dendrites en griffes et un axone qui monte et se divise en deux fibres parallèles. Frederico Azevedo et ses collègues ont compté environ 86 milliards de neurones dans le cerveau humain, dont environ quatre sur cinq dans le cervelet, surtout des cellules granulaires.
- Les neurones sensitifs des ganglions rachidiens sont pseudo-unipolaires : un seul prolongement quitte le corps cellulaire et se divise, une branche allant vers la peau ou le muscle et l’autre vers la moelle épinière. Le signal peut passer la jonction sans traverser le corps cellulaire.
- Les cellules en chandelier sont des interneurones inhibiteurs du cortex. Leurs boutons se dressent en courtes rangées verticales comme des bougies, et Péter Somogyi a montré en 1977 que chaque rangée se termine sur le segment initial de l’axone d’une cellule pyramidale, là où naissent les pointes.
- Les neurones épineux moyens forment la majeure partie du striatum. Ils sont inhibiteurs, densément couverts d’épines et reçoivent à la fois le glutamate du cortex et la dopamine du mésencéphale.
Les formes de la scène sont des dessins simplifiés. NeuroMorpho.Org, une archive lancée par l’équipe de Giorgio Ascoli à la George Mason University, rassemble des reconstructions de vrais neurones tracées à partir d’images au microscope par de nombreux laboratoires, et c’est l’endroit où comparer leurs formes en détail.
Ce que le modèle laisse de côté
Rien dans le dessin n’est à l’échelle. L’axone est bien plus court et plus épais que n’importe quel vrai axone, et la synapse est agrandie en un gros plan à part. Le temps est ralenti, de sorte qu’une milliseconde dure une demi-seconde à l’écran. La pointe à l’écran ne se déplace pas non plus aux vraies vitesses relatives. Un axone myélinisé est 18 fois plus rapide que le même axone nu, et le modèle réduit cet écart pour que vous n’attendiez pas une demi-minute, mais l’affichage donne toujours les chiffres réels.
Dans la scène du neurone, la forme du potentiel d’action est une courbe dessinée passant par les valeurs de manuel de −70, −55 et +30 mV, et non une simulation de la cinétique des canaux. Le labo du calmar est l’endroit où la vraie cinétique tourne, et ses chiffres appartiennent à l’axone de calmar à sa propre température, avec un repos à −65 mV et un maximum près de +40 mV. Les neurones de mammifères ont davantage de types de canaux, et leurs pointes sont plus brèves.
Les autres scènes simplifient aussi. Les canaux ioniques ont la forme de leur structure connue mais sont dessinés en blocs lisses, et la pompe tourne bien plus lentement qu’une vraie. La course emploie deux règles empiriques pour la vitesse et dessine douze internœuds. Les réponses synaptiques de la scène Synapse sont des formes de modèle. Le modèle du réflexe prend la longueur du trajet comme une part fixe de la taille et laisse de côté le temps dont un muscle a besoin pour commencer à bouger après son signal électrique. Dans la scène de sommation, chaque entrée est bien plus forte qu’une vraie. Les types de neurones sont dessinés à une seule taille.
Cette exposition explique comment fonctionnent les cellules nerveuses en général. Elle ne constitue pas un avis médical.
Qui a élucidé tout cela
Luigi Galvani faisait tressaillir des pattes de grenouille avec des arcs métalliques dans les années 1780 et défendait l’idée d’une électricité animale. En 1850, Hermann von Helmholtz a chronométré un nerf de grenouille à environ 27 m/s, assez lentement pour montrer que les signaux nerveux ne sont pas de l’électricité dans un fil. Julius Bernstein a proposé en 1902 que la membrane au repos soit perméable au potassium.
Cajal et Golgi ont partagé le prix Nobel 1906 pour la structure du système nerveux. Sherrington et Adrian ont partagé celui de 1932, Sherrington pour les réflexes et les synapses, Adrian pour la pointe du tout ou rien et le codage par la fréquence. Henry Dale et Otto Loewi ont partagé celui de 1936 pour la transmission chimique. Joseph Erlanger et Herbert Gasser l’ont reçu en 1944 pour avoir montré que les fibres plus épaisses conduisent plus vite. Ichiji Tasaki en 1939, et Andrew Huxley avec Robert Stämpfli en 1949, ont montré que l’excitation des fibres myélinisées saute d’un nœud à l’autre.
Alan Hodgkin et Andrew Huxley ont mesuré les courants sodique et potassique dans l’axone géant du calmar et les ont décrits par des équations en 1952. Ils ont partagé le prix Nobel de physiologie ou médecine 1963 avec John Eccles, qui avait étudié les synapses du système nerveux central. Le prix a été décerné pour les mécanismes ioniques de l’excitation et de l’inhibition dans la membrane de la cellule nerveuse.
Des travaux ultérieurs ont trouvé les molécules derrière les équations. Erwin Neher et Bert Sakmann ont scellé une fine pipette de verre sur une cellule musculaire en 1976 et enregistré le courant à travers des canaux isolés, et partagé le prix de 1991. Les gènes, puis les structures des canaux ont suivi dans les années 1980 et 1990. Arvid Carlsson, Paul Greengard et Eric Kandel ont partagé le prix 2000 pour la signalisation entre les cellules nerveuses, dont les travaux de Carlsson sur la dopamine.
Questions
Qu’est-ce qu’un potentiel d’action ?
Une brève inversion de la tension aux bornes de la membrane d’un neurone, d’environ −70 mV à environ +30 mV et retour, qui dure environ 2 ms. Elle naît au cône axonique et parcourt l’axone jusqu’aux terminaisons.
Pourquoi l’intérieur d’un neurone est-il négatif au repos ?
Au repos, la membrane laisse passer le potassium bien plus facilement que le sodium. Le potassium s’échappe selon son gradient de concentration et laisse l’intérieur négatif, et la pompe sodium-potassium empêche les concentrations de s’épuiser.
Si chaque pointe a la même taille, comment un neurone signale-t-il un stimulus fort ?
En déchargeant plus souvent. Une entrée plus forte atteint le seuil plus tôt et déclenche la pointe suivante plus tôt, de sorte que la fréquence des potentiels d’action porte l’intensité alors que chacun garde la même hauteur.
À quelle vitesse les signaux nerveux voyagent-ils ?
Cela dépend de la myéline et de l’épaisseur. Les axones non myélinisés conduisent à environ 0,5 à 10 m/s et les axones myélinisés jusqu’à environ 150 m/s, selon Purves et ses collègues. Les fibres de la douleur les plus fines atteignent environ 1 m/s.
À quoi sert la myéline ?
Elle isole l’axone, de sorte que le potentiel d’action n’a à être reconstitué qu’aux nœuds de Ranvier. La conduction est ainsi bien plus rapide et plus économe en énergie, puisque les canaux et les pompes sont concentrés aux nœuds. Dans les maladies démyélinisantes comme la sclérose en plaques, le courant s’échappe et la conduction ralentit.
Pourquoi le signal ne revient-il pas en arrière ?
Derrière la pointe, les canaux sodiques sont inactivés pendant un court moment et ne peuvent pas se rouvrir. Cette période réfractaire empêche le potentiel d’action de faire demi-tour, et il court donc du corps cellulaire vers les terminaisons.
Combien de temps faut-il pour franchir une synapse ?
Environ une milliseconde à une synapse chimique, pour l’entrée du calcium, la fusion des vésicules, la diffusion à travers la fente et l’ouverture des récepteurs. Les synapses électriques, où les cellules sont reliées par des canaux, sont presque instantanées.
Le potentiel de repos est-il toujours de −70 mV ?
Non. Il varie selon le type de neurone et l’espèce, et les manuels prennent −70 mV comme valeur typique. Le seuil d’environ −55 mV et le maximum de +30 à +40 mV sont eux aussi des valeurs typiques.
Qu’ont réellement découvert Hodgkin et Huxley ?
Que le potentiel d’action est porté par deux courants distincts : le sodium qui entre d’abord, puis le potassium qui sort. Ils ont mesuré comment chacun s’activait et s’éteignait selon le potentiel et le temps, et écrit des équations qui reproduisaient la forme de la pointe, le seuil, la période réfractaire et la vitesse de conduction dans l’axone de calmar.
Qu’est-ce qu’un potentiel imposé (voltage clamp) ?
Un amplificateur qui maintient le potentiel de membrane à une valeur choisie en injectant le courant nécessaire. Le courant injecté est égal au courant qui traverse les canaux, on peut donc le mesurer. La scène Canaux d’ions fait tourner une boucle de potentiel imposé.
Pourquoi le calmar a-t-il un axone aussi épais ?
Les axones géants commandent le jet de fuite du calmar, et un axone plus large conduit plus vite parce que son cœur a une résistance plus faible. Un axone de 0,5 mm atteint environ 21 m/s sans myéline, vitesse que les vertébrés obtiennent avec une fibre myélinisée d’environ 4 µm de large.
Pourquoi le réflexe rotulien est-il si rapide ?
Une seule synapse se trouve entre la fibre sensitive et le motoneurone, et les deux fibres sont épaisses et myélinisées. Le cerveau n’intervient pas. Le trajet complet prend environ 17 à 21 ms chez les jeunes adultes, plus chez les personnes plus grandes.
Quelle différence y a-t-il entre synapses excitatrices et inhibitrices ?
Une synapse excitatrice pousse la cellule suivante vers le seuil, en général en laissant entrer des ions positifs. Une synapse inhibitrice l’en éloigne, en général en laissant entrer du chlorure. La zone gâchette ne décharge que si la somme de toutes les entrées atteint le seuil.
Que font des toxines comme la TTX aux nerfs ?
La tétrodotoxine bloque les canaux sodiques voltage-dépendants, de sorte que les potentiels d’action ne peuvent être ni produits ni conduits. Cette exposition montre l’effet dans un modèle pour expliquer le fonctionnement des canaux. Ce ne sont pas des informations sur un empoisonnement ou son traitement.
Vocabulaire
- Potentiel membranaire : la tension aux bornes de la membrane cellulaire, intérieur mesuré par rapport à l’extérieur.
- Potentiel de repos : le potentiel de membrane stable d’un neurone qui ne transmet pas de signal, environ −70 mV.
- Seuil : le potentiel, environ −55 mV, auquel les canaux sodiques voltage-dépendants s’ouvrent et un potentiel d’action démarre.
- Dépolarisation : un changement qui rend l’intérieur moins négatif.
- Repolarisation : le retour vers le potentiel de repos après une pointe.
- Hyperpolarisation : un creux sous le potentiel de repos, comme après un potentiel d’action.
- Période réfractaire : le temps après une pointe où la membrane ne peut plus décharger, ou seulement avec un stimulus plus fort.
- Cône axonique et segment initial : la zone gâchette où l’axone quitte le corps cellulaire.
- Myéline : enveloppes isolantes de membrane gliale autour d’un axone.
- Nœud de Ranvier : une courte interruption entre les enveloppes de myéline où le potentiel d’action est reconstitué.
- Conduction saltatoire : conduction qui saute de nœud en nœud le long d’un axone myélinisé.
- Vésicule synaptique : un petit sac membranaire rempli de neurotransmetteur.
- Équation de Nernst : la formule de la tension à laquelle un type d’ion est en équilibre de part et d’autre d’une membrane.
- Potentiel imposé (voltage clamp) : une méthode qui maintient la membrane à une tension donnée et mesure le courant qui traverse ses canaux.
- Variables de porte (m, h, n) : les fractions ouvertes des portes d’activation du sodium, d’inactivation du sodium et du potassium dans le modèle de Hodgkin-Huxley.
- Sommation spatiale : des entrées en des lieux différents qui s’additionnent parce qu’elles arrivent ensemble.
- Sommation temporelle : des entrées en un même lieu qui s’additionnent parce qu’elles arrivent à des instants proches.
- PPSE et PPSI : potentiels postsynaptiques excitateurs et inhibiteurs, petits changements qui rapprochent une cellule du seuil ou l’en éloignent.
- Récepteur ionotrope : un récepteur qui est lui-même un canal ionique.
- Récepteur métabotrope : un récepteur qui agit par une protéine G à l’intérieur de la cellule.
- Recapture : retrait du transmetteur de la fente par des protéines transporteuses.
- Fuseau neuromusculaire : un récepteur d’étirement situé dans un muscle.
- Arc réflexe : le trajet du récepteur à la moelle épinière puis au muscle qui produit un réflexe.
- Inhibition réciproque : relâchement du muscle opposé pendant un réflexe, par un interneurone inhibiteur.
Sources
- OpenStax, Anatomy and Physiology 2e, 12.4 The Action Potential (−70 mV au repos, seuil de −55 mV, pic de +30 mV, environ 2 ms, porte d’inactivation du sodium, période réfractaire, conduction saltatoire). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-4-the-action-potential (consulté le 16 octobre 2026)
- OpenStax, Biology 2e, 35.2 How Neurons Communicate (concentrations ioniques au tableau 35.1, −70 mV varie selon le neurone et l’espèce, pic d’environ +40 mV, nœuds d’environ 1 µm, la pompe expulse 3 Na⁺ et fait entrer 2 K⁺, délai synaptique d’environ 1 ms, sclérose en plaques). https://openstax.org/books/biology-2e/pages/35-2-how-neurons-communicate (consulté le 16 octobre 2026)
- OpenStax, Anatomy and Physiology 2e, 12.2 Nervous Tissue (cône axonique, segment initial et zone de déclenchement, boutons synaptiques, cellules de Schwann et oligodendrocytes). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-2-nervous-tissue (consulté le 16 octobre 2026)
- OpenStax, Anatomy and Physiology 2e, 12.5 Communication Between Neurons (calcium et fusion des vésicules, fente synaptique, sommation au cône axonique). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-5-communication-between-neurons (consulté le 16 octobre 2026)
- Purves D et al., Neuroscience, 2nd edition, Increased Conduction Velocity as a Result of Myelination, NCBI Bookshelf (sans myéline de 0,5 à 10 m/s, avec myéline jusqu’à 150 m/s, conduction saltatoire). https://www.ncbi.nlm.nih.gov/books/NBK10921/ (consulté le 16 octobre 2026)
- Chudler EH, Neuroscience for Kids, Conduction Velocity, University of Washington (groupes de fibres, fibres C à environ 2,2 miles par heure). https://faculty.washington.edu/chudler/cv.html (consulté le 16 octobre 2026)
- Washington University Neuromuscular Disease Center, Peripheral axons: characteristics (vitesse d’environ 5,7 × diamètre, rapport g de 0,6 à 0,7, internœud d’environ 100 × diamètre, environ 25 µs entre les nœuds). https://neuromuscular.wustl.edu/nother/axon.htm (consulté le 16 octobre 2026)
- Hodgkin AL, Huxley AF. A quantitative description of membrane current and its application to conduction and excitation in nerve. Journal of Physiology 117, 500 (1952). https://pmc.ncbi.nlm.nih.gov/articles/PMC1392413/ (consulté le 16 octobre 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1963, summary (Eccles, Hodgkin, Huxley). https://www.nobelprize.org/prizes/medicine/1963/summary/ (consulté le 16 octobre 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1936, summary (Dale, Loewi, transmission chimique). https://www.nobelprize.org/prizes/medicine/1936/summary/ (consulté le 16 octobre 2026)
- Hodgkin AL, Huxley AF. Action potentials recorded from inside a nerve fibre. Nature 144, 710 (1939). doi:10.1038/144710a0 (consulté le 18 octobre 2026)
- Young JZ. Structure of nerve fibres and synapses in some invertebrates. Cold Spring Harbor Symposia on Quantitative Biology 4, 1 (1936). doi:10.1101/SQB.1936.004.01.001 (consulté le 18 octobre 2026)
- Narahashi T, Moore JW, Scott WR. Tetrodotoxin blockage of sodium conductance increase in lobster giant axons. Journal of General Physiology 47, 965 (1964). doi:10.1085/jgp.47.5.965 (consulté le 18 octobre 2026)
- Noda M et al. Primary structure of Electrophorus electricus sodium channel deduced from cDNA sequence. Nature 312, 121 (1984). doi:10.1038/312121a0 (consulté le 18 octobre 2026)
- Doyle DA et al. The structure of the potassium channel: molecular basis of K⁺ conduction and selectivity. Science 280, 69 (1998). doi:10.1126/science.280.5360.69 (consulté le 18 octobre 2026)
- Skou JC. The influence of some cations on an adenosine triphosphatase from peripheral nerves. Biochimica et Biophysica Acta 23, 394 (1957). doi:10.1016/0006-3002(57)90343-8 (consulté le 18 octobre 2026)
- Neher E, Sakmann B. Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature 260, 799 (1976). doi:10.1038/260799a0 (consulté le 18 octobre 2026)
- del Castillo J, Katz B. Quantal components of the end-plate potential. Journal of Physiology 124, 560 (1954). doi:10.1113/jphysiol.1954.sp005129 (consulté le 18 octobre 2026)
- Adrian ED, Zotterman Y. The impulses produced by sensory nerve-endings, part 2. Journal of Physiology 61, 151 (1926). doi:10.1113/jphysiol.1926.sp002281 (consulté le 18 octobre 2026)
- Tasaki I. The electro-saltatory transmission of the nerve impulse and the effect of narcosis upon the nerve fiber. American Journal of Physiology 127, 211 (1939). doi:10.1152/ajplegacy.1939.127.2.211 (consulté le 18 octobre 2026)
- Huxley AF, Stämpfli R. Evidence for saltatory conduction in peripheral myelinated nerve fibres. Journal of Physiology 108, 315 (1949). doi:10.1113/jphysiol.1949.sp004335 (consulté le 18 octobre 2026)
- Hursh JB. Conduction velocity and diameter of nerve fibers. American Journal of Physiology 127, 131 (1939). doi:10.1152/ajplegacy.1939.127.1.131 (consulté le 18 octobre 2026)
- Xu K, Terakawa S. Fenestration nodes and the wide submyelinic space form the basis for the unusually fast impulse conduction of shrimp myelinated axons. Journal of Experimental Biology 202, 1979 (1999). doi:10.1242/jeb.202.15.1979 (consulté le 18 octobre 2026)
- Vickery HSF, Smith PA. Surface electromyography reveals males have a slower patellar reflex than females. Journal of Electromyography and Kinesiology 22, 990 (2012). doi:10.1016/j.jelekin.2012.06.001 (consulté le 18 octobre 2026)
- Frijns CJM, Laman DM, van Duijn MAJ, van Duijn H. Normal values of patellar and ankle tendon reflex latencies. Clinical Neurology and Neurosurgery 99, 31 (1997). doi:10.1016/s0303-8467(96)00593-8 (consulté le 18 octobre 2026)
- Washington University Neuromuscular Disease Center, Tendon reflexes (latence du réflexe H d’environ 30 ms, augmente avec la taille). https://neuromuscular.wustl.edu/mother/reflex.html (consulté le 18 octobre 2026)
- Napper RMA, Harvey RJ. Number of parallel fiber synapses on an individual Purkinje cell in the cerebellum of the rat. Journal of Comparative Neurology 274, 168 (1988). doi:10.1002/cne.902740204 (consulté le 18 octobre 2026)
- Azevedo FAC et al. Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513, 532 (2009). doi:10.1002/cne.21974 (consulté le 18 octobre 2026)
- Spruston N. Pyramidal neurons: dendritic structure and synaptic integration. Nature Reviews Neuroscience 9, 206 (2008). doi:10.1038/nrn2286 (consulté le 18 octobre 2026)
- Euler T et al. Retinal bipolar cells: elementary building blocks of vision. Nature Reviews Neuroscience 15, 507 (2014). doi:10.1038/nrn3783 (consulté le 18 octobre 2026)
- Somogyi P. A specific axo-axonal interneuron in the visual cortex of the rat. Brain Research 136, 345 (1977). doi:10.1016/0006-8993(77)90808-3 (consulté le 18 octobre 2026)
- Gerfen CR, Surmeier DJ. Modulation of striatal projection systems by dopamine. Annual Review of Neuroscience 34, 441 (2011). doi:10.1146/annurev-neuro-061010-113641 (consulté le 18 octobre 2026)
- Ascoli GA, Donohue DE, Halavi M. NeuroMorpho.Org: a central resource for neuronal morphologies. Journal of Neuroscience 27, 9247 (2007). doi:10.1523/JNEUROSCI.2055-07.2007 (consulté le 18 octobre 2026)
- Korn H, Faber DS. The Mauthner cell half a century later. Neuron 47, 13 (2005). doi:10.1016/j.neuron.2005.05.019 (consulté le 18 octobre 2026)
- Piccolino M. Animal electricity and the birth of electrophysiology: the legacy of Luigi Galvani. Brain Research Bulletin 46, 381 (1998). doi:10.1016/S0361-9230(98)00026-4 (consulté le 18 octobre 2026)
- Schmidgen H. Of frogs and men: the origins of psychophysiological time experiments, 1850 to 1865. Endeavour 26, 142 (2002). doi:10.1016/S0160-9327(02)01466-7 (consulté le 18 octobre 2026)
- Seyfarth EA. Julius Bernstein (1839 to 1917): pioneer neurobiologist and biophysicist. Biological Cybernetics 94, 2 (2006). doi:10.1007/s00422-005-0031-y (consulté le 18 octobre 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1906, 1932, 1944, 1970, 1991 and 2000, and in Chemistry 1997 and 2003, summaries. https://www.nobelprize.org/prizes/medicine/1991/summary/ (consulté le 18 octobre 2026)
- National Institute of Neurological Disorders and Stroke (NINDS), Multiple sclerosis; Guillain-Barré syndrome; Myasthenia gravis; Parkinson's disease; Amyotrophic lateral sclerosis. https://www.ninds.nih.gov/health-information/disorders/multiple-sclerosis (consulté le 18 octobre 2026)
Textes et simulations : CC BY-NC-SA 4.0, sauf mention contraire.
D'autres expositions
Battement du cœur interactif : signal électrique, ECG
Votre cœur éjecte environ 70 mL de sang à chaque battement et, au rythme de repos, il le fait environ 108 000 fois par jour.

CRISPR-Cas9 interactif : coupe et réparation de l’ADN
Un ARN guide ne lit que 20 lettres d’ADN, et cela suffit en général pour repérer un seul endroit parmi les 3 milliards de paires de bases d’un génome humain.

ATP synthase : explorez le fonctionnement de son rotor
Dans les mitochondries, le rotor de l’ATP synthase tourne environ 100 fois par seconde. Chaque tour libère trois molécules d’ATP.
Promenade dans une cellule : animale, végétale et bactérie
Agrandie un million de fois, une mitochondrie a à peu près la taille d’un canapé, une bactérie E. coli entière mesure 2 m et la kinésine qui remorque une vésicule à côté de vous marche à 0,8 mètre par seconde.
RCP, DAE, étouffement, extincteur : les bons gestes
100 à 120 compressions par minute, environ 5 cm de profondeur : avec un témoin qui le faisait, la survie en Corée en 2024 était 2,36 fois plus élevée.
Temps de réaction : testez vos réflexes en millisecondes
La lumière de l’écran atteint presque aussitôt l’œil, mais le doigt bouge un cinquième de seconde plus tard. L’essentiel se passe dans la tête.