FIG. 66Como funciona
Impulso nervoso e sinapse: teste como o sinal se propaga
Uma célula nervosa fica perto de −70 mV. Ao atingir cerca de −55 mV com um estímulo, dispara um potencial sempre da mesma amplitude.
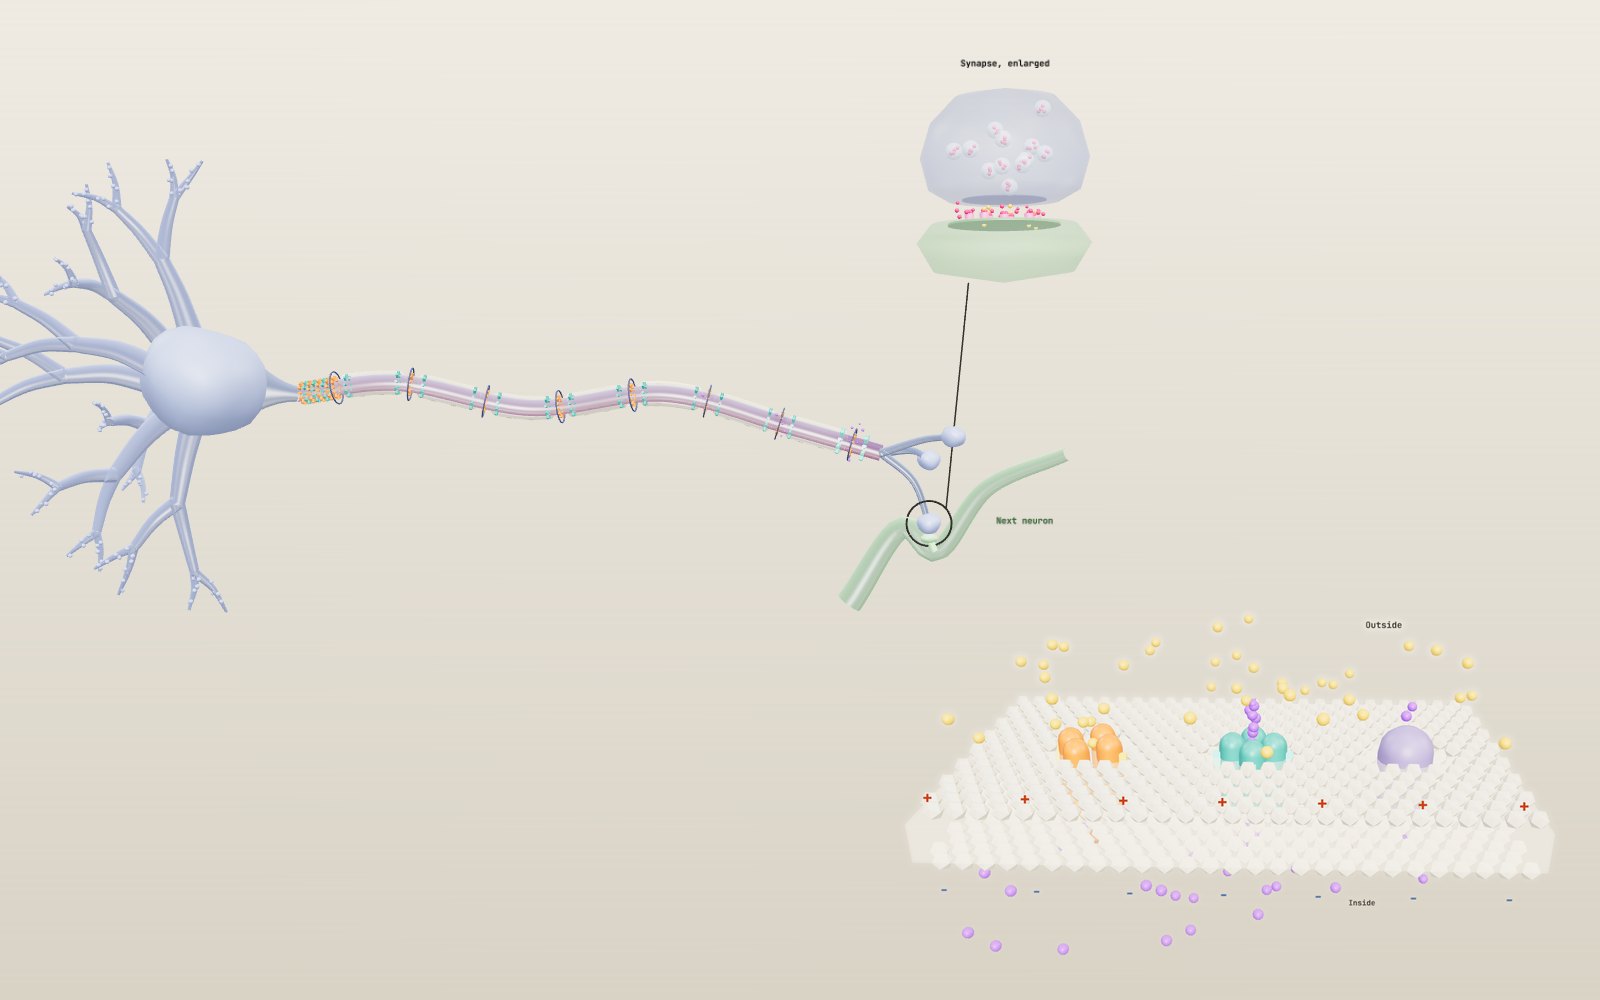
Este dispositivo não consegue mostrar o modelo 3D. Abaixo, você pode ler as etapas do guia em texto.
1 / 28 Um neurônio de ponta a pontaSinais entram pelos dendritos à esquerda e saem pelas terminações à direita. Axônio encurtado e muito engrossado. O gráfico mostra o potencial do cone axonal. A barra abre outras sete cenas.
Arraste para girar. Use a rolagem ou o gesto de pinça para ampliar.
O que acontece quando você bate o dedo do pé?
Ao bater o dedo do pé, você sente primeiro a pancada e, um instante depois, a dor. As duas mensagens sobem pela mesma perna, ao longo de fibras nervosas, até a medula espinal e o cérebro. Elas chegam em momentos diferentes porque as fibras que as levam são construídas de modo diferente. As páginas Neuroscience for Kids, de Eric Chudler, na University of Washington, situam as fibras lentas da dor em cerca de 2,2 milhas por hora, mais devagar do que você anda, enquanto as fibras grossas do tato chegam perto da velocidade de um avião.
Por baixo dessa diferença há um único mecanismo, usado por toda célula nervosa. O neurônio mantém o interior eletricamente negativo e, quando chega uma entrada forte o bastante, inverte essa carga por cerca de dois milissegundos e passa a inversão adiante pelo axônio. Na outra ponta, o sinal elétrico se torna um sinal químico que atravessa até a célula seguinte.
A exposição abre com um único neurônio em 3D. Você pode mudar a intensidade da entrada, tirar a mielina do axônio, mudar sua espessura e observar uma sinapse de perto. A barra sob o modelo troca para mais sete cenas. Uma amplia os canais iônicos e mantém a membrana numa voltagem fixa, como faziam os experimentos dos anos 1940. Outra põe uma fibra com mielina para correr contra uma fibra nua ao longo de um metro. Outras mostram cinco neurotransmissores em ação, cronometram um reflexo patelar da batida ao chute, somam entradas excitatórias e inibitórias e alinham oito tipos de neurônio lado a lado. A última é um axônio gigante de lula numa cuba, onde as equações que Alan Hodgkin e Andrew Huxley publicaram em 1952 rodam ao vivo enquanto você muda a corrente, a temperatura e a dose de duas toxinas. Sob os controles há oito tarefas para tentar e 51 casos curtos da história do assunto.
Uma bateria de água salgada
Um neurônio é uma bolsa de água salgada dentro de um banho de outra água salgada. Dentro há muito potássio e pouco sódio; fora, é o contrário. O OpenStax Biology dá valores típicos de 145 mM de sódio fora e 12 mM dentro, e de 4 mM de potássio fora contra 155 mM dentro. A bomba de sódio-potássio mantém essa situação, empurrando três íons de sódio para fora e trazendo dois íons de potássio para dentro a cada molécula de ATP que gasta.
A membrana em si não deixa os íons passarem. Eles cruzam apenas por proteínas de canal e, em repouso, os canais abertos são em sua maioria de potássio. O potássio vaza para fora a favor do seu gradiente de concentração, cada íon levando consigo uma carga positiva, até que a carga negativa que ele deixa para trás segure os demais. O resultado, medido com um eletrodo dentro da célula e outro fora, é o potencial de membrana em repouso: cerca de −70 mV. O OpenStax observa que o valor exato varia entre os tipos de neurônio e entre as espécies, mas −70 mV é o número usado na maioria dos livros didáticos e neste modelo.
Na exposição, uma membrana azul é uma membrana em repouso. O gráfico no canto mostra o potencial no cone axonal e, com o controle "Estímulo" em zero, ele fica plano sobre a linha de −70.
Dentro dos canais
Os íons cruzam a membrana por proteínas, e a cena chamada "Canais iônicos" amplia três delas, situadas num quadrado de bicamada lipídica. As contas brancas são as cabeças dos lipídios, duas camadas com uma camada oleosa entre elas que nenhum íon consegue atravessar sozinho.
A proteína laranja é um canal de sódio dependente de voltagem. É uma longa cadeia dobrada em quatro domínios semelhantes em torno de um poro central, um arranjo que o grupo de Shosaku Numa, em Kyoto, descobriu em 1984 ao ler o gene do canal de sódio da enguia elétrica. Cada domínio traz um sensor de voltagem, desenhado como uma haste amarela, que se move para fora quando o interior da célula fica menos negativo. Pelo lado de dentro pende uma alça desenhada como uma bola vermelha numa corrente. Cerca de um milissegundo depois que o canal abre, essa alça balança para dentro do poro e o tampa. O canal não pode abrir de novo até que a membrana tenha voltado para perto do repouso e a alça tenha balançado para fora outra vez.
A proteína verde-azulada é um canal de potássio dependente de voltagem, com quatro subunidades separadas em torno de um poro. Seus sensores se movem mais devagar, de modo que ele abre mais tarde que o canal de sódio, e não tem um tampão rápido. Em 1998, o grupo de Roderick MacKinnon resolveu a estrutura de um canal de potássio bacteriano e mostrou como um filtro estreito, revestido de átomos de oxigênio, deixa o potássio passar enquanto recusa o sódio, que é menor. Esse trabalho dividiu o Prêmio Nobel de Química de 2003.
A proteína roxa à direita é a bomba de sódio-potássio. Jens Skou a descobriu em 1957 como uma enzima de nervo de caranguejo que só quebrava o ATP quando sódio e potássio estavam presentes, e dividiu por isso o Prêmio Nobel de Química de 1997. A cada ATP ela move três íons de sódio para fora e dois de potássio para dentro. A bomba é lenta perto dos canais e não produz o potencial de ação. Sua função é manter no lugar as diferenças de concentração ao longo de minutos e horas.
Manter a voltagem fixa
A cena executa uma fixação de voltagem, o método que Hodgkin e Huxley usaram. Um amplificador mede o potencial de membrana e injeta a corrente que for preciso para mantê-lo num valor escolhido. A corrente que ele tem de fornecer é igual e oposta à corrente que passa pelos canais, de modo que a fixação transforma um evento rápido, que se autoalimenta, em algo que pode ser medido uma parte de cada vez.
O ciclo mantém a membrana em −65 mV por 3 ms, leva-a ao valor de "Voltagem fixada" por 12 ms e depois a devolve. Com o salto padrão para −10 mV, o gráfico mostra duas correntes. A corrente de sódio (laranja, desenhada para baixo porque a carga positiva entra) atinge o pico de cerca de 1430 µA/cm² após 0,7 ms e depois se extingue, embora a voltagem continue onde está. A corrente de potássio (verde-azulada, para cima) sobe mais devagar e ainda flui a cerca de 1430 µA/cm² quando o salto termina. As porcentagens no painel dão a fração aberta de cada tipo de canal no modelo, m³h para o sódio e n⁴ para o potássio.
Dê o salto para +50 mV e a corrente de sódio desaparece, porque +50 mV é o potencial de equilíbrio do sódio no modelo da lula: os canais abrem, mas nenhum sódio se move no total. Dê o salto para +60 mV e a corrente se inverte e passa a sair. Hodgkin e Huxley usaram exatamente esse tipo de inversão para provar qual íon carregava qual corrente. Os controles TTX e TEA bloqueiam uma fração de cada tipo de canal e mudam as duas curvas separadamente.
Entradas se somam no cone axonal
Os dendritos são a ponta receptora. Quando o transmissor de outro neurônio abre canais num dendrito, entra um pouco de carga positiva e a membrana ali fica menos negativa. Esses potenciais graduados são pequenos e se atenuam ao se espalhar, mas muitos deles podem chegar juntos e se somar. O OpenStax chama isso de somação, e ela acontece no cone axonal, o cone onde o axônio sai do corpo celular, junto com o primeiro trecho do axônio, chamado segmento inicial. Esse trecho é cheio de canais de sódio dependentes de voltagem, e por isso é chamado de zona de disparo.
Coloque o controle "Estímulo" em +10 mV e observe as contas amarelas descerem pelos dendritos. Cada rajada de entrada eleva o cone a −60 mV e depois ele volta a baixar. Nada viaja pelo axônio.
Somar no espaço e no tempo
Um neurônio real não recebe uma entrada de cada vez. Uma célula piramidal do córtex tem milhares de sinapses nos dendritos, e algumas excitam enquanto outras inibem. A cena "Somação" tem seis sinapses excitatórias (verdes) nos dendritos e uma sinapse inibitória (vermelha) no corpo celular, ao lado da zona de disparo, o primeiro trecho do axônio, onde o impulso nasce.
No modelo, cada entrada excitatória soma 4 mV no pico, sobe em cerca de 1 ms e decai com uma constante de tempo de 15 ms. O limiar fica 15 mV acima do repouso de −70 mV, o mesmo da cena do neurônio. Três entradas juntas chegam a −58 mV e falham. Quatro juntas chegam a −54 mV e a zona de disparo dispara. Isso é somação espacial: entradas em lugares diferentes se somando porque chegam juntas.
Agora espalhe-as. O controle "Intervalo das entradas" define o atraso entre uma entrada e a seguinte. Com quatro entradas a 2 ms de distância, a primeira já começou a decair quando a última chega, e o pico fica em −55,7 mV, por pouco abaixo do limiar. Oito entradas podem ser espaçadas em até 4,5 ms e ainda assim disparar a célula. Isso é somação temporal, e é por isso que o momento das entradas importa tanto quanto o número delas.
A inibição muda a soma. Cinco entradas simultâneas chegariam a −50 mV, mas uma entrada inibitória de 6 mV ou mais no mesmo instante mantém a célula abaixo do limiar. No cérebro, a maior parte da inibição rápida vem do GABA abrindo canais de cloreto, e as sinapses inibitórias tendem a ficar sobre o corpo celular ou perto dele, onde cancelam a entrada de toda a árvore dendrítica. John Eccles registrou esses potenciais inibitórios em neurônios motores da medula espinal e dividiu o Prêmio Nobel de 1963 com Hodgkin e Huxley.
Os 4 mV por entrada são um valor do modelo, escolhido para que bastem poucas entradas. Uma única sinapse num neurônio cortical costuma mover o corpo celular em bem menos de 1 mV, de modo que uma célula real precisa de dezenas de entradas chegando bem juntas.
Limiar e regra do tudo ou nada
Os canais de sódio dependentes de voltagem abrem quando a membrana chega a cerca de −55 mV. Esse é o limiar. Assim que alguns abrem, o sódio entra em disparada, a membrana fica ainda menos negativa e mais canais abrem. O ciclo se descontrola e o potencial dispara para além de zero, até cerca de +30 mV.
Duas coisas então o trazem de volta. Cada canal de sódio tem uma segunda comporta que se fecha sozinha em uma fração de milissegundo, e a entrada cessa. Ao mesmo tempo, os canais de potássio dependentes de voltagem, que respondem mais devagar, abrem e deixam o potássio sair. A membrana volta a cair, ultrapassa por um instante para menos de −70 mV porque os canais de potássio demoram a fechar, e então se estabiliza. O OpenStax estima o evento inteiro em cerca de 2 ms.
Abaixo do limiar nada disso acontece; no limiar ou acima dele, acontece tudo, sempre com a mesma altura. Mova o controle entre +15 e +30 mV e o impulso no gráfico começa mais cedo, mas seu topo nunca se move. Essa é a regra do tudo ou nada. Um estímulo mais forte não produz um potencial de ação maior. Nos neurônios reais ele faz os potenciais virem com mais frequência, e o modelo também dispara um pouco mais vezes à medida que você sobe o controle.
O axônio de lula e as equações de 1952
Em 1936, o zoólogo J. Z. Young mostrou que tubos que atravessam o manto de uma lula, tomados até então por vasos sanguíneos, eram fibras nervosas únicas, com até cerca de um milímetro de largura. Elas comandam o jato de fuga da lula e são largas o bastante para que se possa enfiar um fio dentro. Em 1939, Hodgkin e Huxley fizeram exatamente isso no laboratório de Plymouth e registraram pela primeira vez o potencial de dentro de um axônio. O impulso não parava em zero, como previa a teoria da membrana de Julius Bernstein. Ele passava de zero por dezenas de milivolts.
Depois da guerra, usaram uma fixação de voltagem com um fio de prata passado ao longo do axônio, de modo que o comprimento inteiro se comportasse como um único trecho de membrana. Mediram como as correntes de sódio e de potássio ligavam e desligavam a cada voltagem e, em 1952, as descreveram com um conjunto de equações. Três comportas, chamadas m, h e n, abrem e fecham em taxas que dependem da voltagem. A condutância do sódio é 120 mS/cm² vezes m³h, a do potássio é 36 mS/cm² vezes n⁴, e um pequeno vazamento de 0,3 mS/cm² completa o circuito. As taxas foram medidas a 6,3 °C, e o artigo as escala por um fator de três a cada 10 °C.
A cena "Axônio de lula" executa essas equações diante de seus olhos. A curva cinza no painel é o potencial registrado pelo fio ao longo de 40 ms. O axônio na cuba muda de cor à medida que o potencial de ação o percorre, na velocidade que as mesmas equações preveem.
O que as equações produzem
A 6,3 °C, o modelo repousa em −65 mV com as comportas em m = 0,053, h = 0,596 e n = 0,318. Um pulso de 1 ms precisa de 6,9 µA/cm² para disparar. Abaixo disso, o potencial sobe um pouco e volta a baixar. Com 7 µA/cm², o impulso vem tarde, cerca de 5 ms depois do início do pulso, e atinge o pico perto de +35 mV. Com 20 µA/cm², ele vem após 1,3 ms e atinge o pico perto de +41 mV, e dobrar a corrente de novo acrescenta menos de 1 mV. Muito acima do limiar, a altura quase não muda. Bem no limiar, as equações dão um impulso um pouco menor, um detalhe que a regra do tudo ou nada dos livros didáticos alisa. Depois do impulso, a membrana mergulha até cerca de −76 mV, perto do potencial de equilíbrio do potássio, de −77 mV, porque as comportas do potássio ainda estão abertas.
O controle "Segundo pulso após" define um segundo pulso. Com dois pulsos de 20 µA/cm², o segundo falha se vier menos de 10,6 ms depois do primeiro. Dobre a corrente para 40 µA/cm² e um intervalo de 7,8 ms basta. Esse é o período refratário relativo: durante a recuperação, um estímulo mais forte consegue disparar a membrana mais cedo. Nos primeiros milissegundos, nenhum pulso é forte o bastante, e esse é o período refratário absoluto.
"Corrente contínua" troca o pulso por um degrau de 150 ms. A partir de cerca de 6,3 µA/cm², o axônio dispara repetidamente. Com 10 µA/cm² ele dispara a 69 Hz, com 20 µA/cm² a 87 Hz e com 50 µA/cm² a 118 Hz. É assim que uma célula nervosa transforma intensidade em frequência, o código que Edgar Adrian ouviu em fibras sensoriais em 1926.
A temperatura acelera as três comportas ao mesmo tempo. A 18,5 °C elas se movem 3,8 vezes mais depressa, o impulso fica mais estreito e mais baixo, com pico perto de +33 mV, e o limiar para um pulso de 1 ms sobe para 8,9 µA/cm². A 25 °C o pico é de apenas cerca de +19 mV e, a partir de cerca de 28 °C, um pulso de 20 µA/cm² deixa de disparar. A inativação do sódio e a ativação do potássio alcançam então a ativação do sódio antes que o impulso possa se formar.
A velocidade de propagação
A quinta parte do artigo de 1952 fez algo mais ambicioso. Usando o raio medido da fibra, de 238 µm, e a resistência do axoplasma, de 35,4 Ω cm, Hodgkin e Huxley resolveram o problema de um potencial de ação que viaja ao longo do axônio e encontraram uma velocidade de 18,8 m/s a 18,5 °C. O mesmo axônio tinha sido medido em 21,2 m/s. Huxley fez as contas numa calculadora mecânica de manivela.
O mesmo cálculo foi repetido de outro modo, dividindo um axônio de 6 cm em pedaços curtos e avançando o cabo inteiro no tempo. Com pedaços de 0,5 mm, o resultado é 18,7 m/s, e com pedaços de 0,25 mm a resposta se estabiliza em 18,73 m/s, a meio por cento do valor do artigo. A 6,3 °C, o mesmo cabo conduz a 12,3 m/s. O laboratório usa essa velocidade calculada para colorir o axônio.
Duas toxinas
A tetrodotoxina (TTX), o veneno do baiacu, gruda na boca externa dos canais de sódio dependentes de voltagem e os tampa. Toshio Narahashi e colegas mostraram em 1964, em axônios gigantes de lagosta, que ela elimina a corrente de sódio e deixa a corrente de potássio em paz. No modelo, um pulso de 20 µA/cm² ainda dispara com 71% dos canais de sódio bloqueados e falha além disso. Com 100%, o pulso empurra a membrana para cima e a deixa cair de novo, e a onda ao longo do axônio desaparece.
O tetraetilamônio (TEA) bloqueia canais de potássio. No modelo, bloqueie metade deles e um pulso desencadeia uma breve salva de três impulsos, porque nada puxa a membrana para baixo com firmeza. Bloqueie 90% e o potencial de repouso deriva para cima até que os canais de sódio fiquem inativados e nada dispare. As duas toxinas são mostradas aqui como ferramentas que os fisiologistas usam. São substâncias perigosas, e a exposição não diz nada sobre elas como remédios ou tratamentos.
Por que o sinal só segue em um sentido
Um impulso no cone axonal empurra carga positiva ao longo do interior do axônio. Essa carga leva o trecho seguinte da membrana ao limiar, seus canais de sódio abrem e esse trecho dispara por sua vez. O trecho de trás não consegue disparar de novo logo em seguida porque seus canais de sódio ainda estão inativados. Esse é o período refratário absoluto, e é por isso que o potencial de ação corre para as terminações e nunca de volta para o corpo celular.
Num axônio nu, cada trecho precisa fazer isso na sua vez. O resultado é uma onda contínua, e ela é lenta. Desligue "Mielina" em Controles e veja a faixa âmbar se arrastar ao longo do axônio.
Mielina e nós de Ranvier
A maioria dos axônios rápidos dos vertebrados é envolvida por mielina, camada sobre camada de membrana de células gliais. Nos nervos fora do cérebro e da medula espinal, cada volta vem de uma célula de Schwann; dentro do cérebro e da medula espinal, quem a produz são os oligodendrócitos, e uma só célula estende braços para vários axônios. A bainha isola o axônio, de modo que a corrente se espalha por dentro em vez de vazar pela membrana.
A bainha não é contínua. Entre as voltas há vãos de cerca de um micrômetro de comprimento, os nós de Ranvier, e é ali que ficam os canais de sódio dependentes de voltagem. Um impulso num nó impulsiona corrente pelo trecho isolado com rapidez suficiente para levar o nó seguinte ao limiar, e o potencial de ação é reconstruído ali. Parece pular de nó em nó, o que lhe deu o nome de condução saltatória, do latim para saltar. No modelo, os nós se acendem um depois do outro, enquanto os trechos entre eles brilham só de leve.
O ganho é grande. No Neuroscience de Purves e colegas, os axônios sem mielina conduzem a cerca de 0,5 a 10 m/s, enquanto os axônios com mielina podem chegar a 150 m/s. A espessura também importa. Um axônio mais largo tem menos resistência interna, de modo que a propagação da carga chega mais longe. Mude "Diâmetro do axônio" e a velocidade no canto muda junto, mais rápida nas fibras grossas e mais lenta nas finas.
Duas formas de ir rápido
A cena "Corrida" põe dois axônios lado a lado ao longo de um metro. Ambos começam com 10 µm. O que tem mielina termina em 17,5 ms e o nu em 316 ms, 18 vezes mais. O brilho na fibra de cima salta de nó em nó; só doze bainhas são desenhadas, embora uma fibra de 10 µm tivesse cerca de mil em um metro, cada uma com cerca de 1 mm e atravessada em cerca de 18 µs.
Os animais encontraram duas respostas para o problema da velocidade. Os vertebrados envolvem seus axônios rápidos em mielina. A lula, e muitos outros invertebrados, alargam o axônio, porque um núcleo mais largo tem menos resistência e a propagação da corrente chega mais longe. Ajuste "Espessura do axônio nu" para 476 µm, o tamanho do axônio de Hodgkin e Huxley, e a fibra nua alcança 21,8 m/s pela regra da raiz quadrada do modelo, perto dos 21,2 m/s que eles mediram. Ela é 50 vezes mais larga do que a fibra com mielina ao lado e ainda é quase três vezes mais lenta. Uma fibra com mielina precisa de apenas cerca de 4 µm para chegar a 21 m/s, uma seção transversal mais de dez mil vezes menor, o que é uma das razões pelas quais um nervo humano pode carregar milhares de fibras rápidas.
As fibras mais rápidas já registradas são de invertebrados, com uma mielina própria. Ke Xu e Susumu Terakawa analisaram as fibras gigantes de camarões Penaeus, que conduzem a mais de 200 m/s. A mielina deles deixa um espaço largo entre ela e o axônio e, em vez de nós comuns, tem pequenas janelas.
"Mielina danificada" retira a bainha de um trecho no meio da fibra. O modelo trata esse trecho como um axônio nu, de modo que o sinal desacelera ali e termina mais tarde. Nos nervos reais, a corrente pode escapar pela membrana exposta, que tem poucos canais de sódio, e o sinal pode falhar por completo. Doenças em que o sistema imunológico ataca a mielina, como a esclerose múltipla no cérebro e na medula espinal ou a síndrome de Guillain-Barré nos nervos periféricos, retardam ou bloqueiam a condução dessa maneira. A cena ilustra apenas a ideia. O NINDS, parte dos Institutos Nacionais de Saúde dos EUA, mantém informações para pacientes sobre ambas.
Conferir os números
O potencial de repouso fica perto do potencial de equilíbrio do potássio, e a equação de Nernst dá esse valor a partir das duas concentrações:
E = (RT / zF) × ln(fora / dentro)
À temperatura do corpo, 37 °C, RT/F vale 26,73 mV, o que dá 61,54 mV para cada diferença de dez vezes na concentração. Para o potássio, 61,54 × log₁₀(4/155) dá −97,7 mV. Para o sódio, 61,54 × log₁₀(145/12) dá +66,6 mV. Para o cloreto, com sua carga negativa, os mesmos números dão −90,9 mV.
O valor de repouso de −70 mV fica entre eles porque a membrana em repouso deixa entrar também um pouco de sódio. A equação de Goldman pondera cada íon pela facilidade com que ele atravessa. Se o sódio atravessa a um vigésimo da taxa do potássio (deixando o cloreto de fora), a fórmula dá −70,2 mV. Com a razão de um centésimo, ela cai para −89,5 mV; com um décimo, sobe para −57,0 mV. O pico de +30 mV fica bem aquém dos +66,6 mV do sódio, porque os canais de sódio se inativam e os de potássio abrem antes que ele possa chegar lá.
Para a velocidade de condução, o modelo usa duas regras. Uma fibra com mielina conduz a cerca de 5,7 m/s por micrômetro de diâmetro, uma regra prática do Washington University Neuromuscular Disease Center. A um axônio nu se dá 1 m/s a 1 µm, o que corresponde às finas fibras da dor, crescendo com a raiz quadrada do diâmetro. A 10 µm isso dá 57 m/s com mielina e 3,16 m/s sem, um fator de 18. Em um metro de axônio, o sinal leva 17,5 ms no primeiro caso e 316 ms no segundo. A 20 µm, a fibra com mielina chega a 114 m/s e, ao longo de todo o controle, os valores ficam dentro das faixas dos livros didáticos.
A mesma fonte dá um comprimento de internó de cerca de 100 vezes o diâmetro do axônio, ou seja, cerca de 1 mm para uma fibra de 10 µm. A 57 m/s, isso são 17,5 µs de nó a nó, da mesma ordem dos 25 µs que ela cita. O limiar no modelo é alcançado quando a entrada soma 15 mV: +20 mV o cruzam após 0,42 ms, +30 mV após 0,23 ms. Todos esses números também foram calculados numericamente.
De eletricidade a química na sinapse
No fim do axônio, o sinal precisa atravessar um vão até a célula seguinte. Quando o potencial de ação chega a um botão, o inchaço na ponta de cada ramo terminal, canais de cálcio dependentes de voltagem abrem e o cálcio entra. O cálcio faz as vesículas sinápticas que estão ancoradas na membrana se fundirem com ela e despejarem seu neurotransmissor na fenda sináptica. O transmissor se difunde pela fenda e se liga a proteínas receptoras no neurônio seguinte. Muitos desses receptores são eles mesmos canais iônicos, de modo que a ligação os abre e íons positivos entram, empurrando aquela célula em direção ao seu próprio limiar. Depois, o transmissor é degradado, se afasta ou é bombeado de volta, e a sinapse fica pronta de novo.
O OpenStax dá cerca de um milissegundo entre a chegada do potencial de ação e a abertura dos canais do outro lado. A ampliação no modelo mostra o cálcio em verde, o transmissor em rosa e os receptores que brilham enquanto o transmissor está ligado a eles.
Cinco transmissores
A cena "Sinapse" amplia uma sinapse até que as vesículas, a fenda e os receptores preencham o palco. O controle "Transmissor" alterna entre cinco dos neurotransmissores mais conhecidos, e cada um muda os receptores, a resposta e a maneira como a fenda é limpa.
- O glutamato é o principal transmissor excitatório rápido do cérebro. A maioria de seus receptores são canais iônicos (os receptores AMPA e NMDA) que deixam entrar íons positivos em um milissegundo, produzindo um potencial pós-sináptico excitatório (PPSE) rápido. Transportadores, muitos deles em astrócitos, o retiram da fenda.
- O GABA é o principal transmissor inibitório. Os receptores GABA-A são canais de cloreto, e a resposta é um potencial pós-sináptico inibitório (PPSI) que mantém a célula longe do limiar. O GABA é feito a partir do glutamato e removido por transportadores próprios.
- A acetilcolina leva o sinal dos neurônios motores ao músculo esquelético por meio de receptores nicotínicos, que são canais iônicos. Ela não é recaptada inteira. A enzima acetilcolinesterase, na fenda, a quebra, e a colina é reciclada. O experimento de Otto Loewi com dois corações de rã, em 1921, mostrou pela primeira vez um nervo liberando uma substância química, que se revelou ser a acetilcolina.
- A dopamina age apenas por receptores acoplados a proteínas G (D1 a D5). A resposta começa mais tarde, é menor e dura mais, e seu principal efeito é mudar como a célula-alvo responde às suas outras entradas. Neurônios do mesencéfalo a enviam ao estriado e ao córtex, e o transportador de dopamina a remove.
- A serotonina é feita a partir do triptofano por neurônios dos núcleos da rafe, que alcançam a maior parte do cérebro. Quase todos os seus receptores são acoplados a proteínas G; o receptor 5-HT3 é a exceção, um canal iônico. O transportador de serotonina a remove.
A "Recaptação" desliga os transportadores. As moléculas então ficam mais tempo na fenda e a resposta se prolonga. Alguns medicamentos agem nessa etapa, retardando um transportador. A cena mostra apenas o princípio.
A fenda tem cerca de 20 nm de largura, de modo que a difusão através dela leva microssegundos. A maior parte do atraso sináptico de cerca de 1 ms vai para a entrada de cálcio e a fusão das vesículas. Bernard Katz e José del Castillo mostraram em 1954, na junção entre nervo e músculo da rã, que o transmissor sai em pacotes de tamanho fixo, mais tarde associados a vesículas individuais. Katz dividiu o Prêmio Nobel de 1970 com Ulf von Euler, que identificou a noradrenalina como transmissor, e Julius Axelrod, que mostrou que ela é recaptada para a terminação nervosa depois de liberada.
Cronometrar o reflexo patelar
Uma batida do médico abaixo da patela estica o músculo da coxa por um instante. Receptores de estiramento dentro do músculo, os fusos musculares, disparam, e o sinal sobe por fibras sensoriais grossas (chamadas fibras Ia), pela raiz dorsal, até a medula espinal. Ali cada fibra faz uma sinapse diretamente nos neurônios motores do mesmo músculo, e os axônios deles levam o comando de volta para baixo. O músculo se contrai e a perna chuta. Só há uma sinapse no caminho, e é por isso que o reflexo é tão rápido. Ao mesmo tempo, um ramo da fibra sensorial excita um interneurônio inibitório que relaxa os isquiotibiais, na parte de trás da coxa. Charles Sherrington descobriu esse arranjo, a inibição recíproca, e criou a palavra sinapse; ele dividiu o Prêmio Nobel de 1932 com Adrian.
A cena "Ref. patelar" cronometra a viagem. O modelo toma o caminho de ida do músculo até a medula espinal como uma fração da altura: 0,29 da altura para o joelho, cujos neurônios motores ficam nos segmentos L3 e L4 da medula, e 0,52 para a panturrilha, servida por S1. Ele envia o sinal para dentro a 65 m/s e para fora a 55 m/s, valores dentro da faixa das fibras grandes com mielina, e soma três atrasos fixos de 1 ms para o fuso, a sinapse central e a junção entre nervo e músculo. Para uma pessoa de 175 cm de altura, são 0,51 m em cada sentido, 7,8 ms para dentro e 9,2 ms para fora, 20,0 ms no total.
As medições concordam. Helen Vickery e Paul Smith, na University of Nottingham, registraram o reflexo patelar com eletrodos de superfície na coxa de 28 adultos jovens e encontraram 17 ms nas mulheres e 21 ms nos homens. C. J. Frijns e colegas, em Amsterdã, mediram reflexos do joelho e do tornozelo em 102 pessoas saudáveis e descobriram que a latência aumenta com a altura, com uma correlação de 0,70 para o joelho e de 0,72 para o tornozelo. A latência de cada pessoa quase não mudava de uma batida para outra.
Ajuste "Toque em" para Tornozelo. O caminho a partir da panturrilha é quase duas vezes mais longo, e o modelo dá 33,5 ms para 175 cm. O Washington University Neuromuscular Disease Center dá cerca de 30 ms para o reflexo H do sóleo, uma versão elétrica do reflexo do tornozelo que inicia o sinal no nervo em vez de no fuso. Mude "Altura" de 140 cm para 200 cm e o reflexo patelar vai de 16,6 ms para 22,5 ms.
Nada disso envolve o cérebro, e é por isso que um reflexo patelar é mais rápido do que qualquer reação que você possa fazer de propósito. Uma reação que você decide fazer leva algumas centenas de milissegundos, e a exposição do tempo de reação mede a sua.
As formas dos neurônios
Santiago Ramón y Cajal passou décadas desenhando neurônios corados pelo método da prata de Camillo Golgi e mostrou que eles são células separadas, com formas reconhecíveis. A cena "Tipos" alinha oito deles, todos desenhados na mesma altura para que a ramificação possa ser comparada. O painel dá o tamanho real de cada um.
- As células piramidais são os principais neurônios excitatórios do córtex cerebral. Um longo dendrito apical sobe em direção à superfície e termina num tufo, enquanto dendritos basais se espalham em torno da base. Elas liberam glutamato.
- As células de Purkinje do cerebelo espalham seus dendritos num leque plano. Fibras paralelas cruzam o leque em ângulo reto; Richard Napper e Robert Harvey contaram cerca de 175.000 sinapses de fibras paralelas numa única célula de Purkinje no rato. As células são inibitórias e enviam seus axônios aos núcleos cerebelares profundos.
- Os neurônios motores da medula espinal têm corpos celulares grandes, dendritos longos e um axônio grosso com mielina que pode alcançar um músculo a um metro de distância.
- As células bipolares da retina têm um prolongamento para cima, até os cones ou bastonetes, e outro para baixo, até as células ganglionares. A maioria dos tipos transmite potenciais graduados em vez de impulsos, e a retina tem mais de dez tipos.
- As células granulares do cerebelo estão entre os menores neurônios, com quatro dendritos curtos em forma de garra e um axônio que sobe e se divide em duas fibras paralelas. Frederico Azevedo e colegas contaram cerca de 86 bilhões de neurônios no cérebro humano, e cerca de quatro em cada cinco deles estão no cerebelo, em sua maioria células granulares.
- Os neurônios sensoriais dos gânglios da raiz dorsal são pseudounipolares: um único prolongamento sai do corpo celular e se divide, um ramo indo para a pele ou o músculo e o outro para a medula espinal. O sinal pode passar pela junção sem atravessar o corpo celular.
- As células em candelabro são interneurônios inibitórios do córtex. Seus botões ficam em fileiras verticais curtas, como velas, e Péter Somogyi mostrou em 1977 que cada fileira termina no segmento inicial do axônio de uma célula piramidal, o lugar onde os impulsos começam.
- Os neurônios espinhosos médios compõem a maior parte do estriado. São inibitórios, densamente cobertos de espinhas e recebem tanto glutamato do córtex quanto dopamina do mesencéfalo.
As formas na cena são desenhos simplificados. O NeuroMorpho.Org, um arquivo iniciado pelo grupo de Giorgio Ascoli na George Mason University, reúne reconstruções de neurônios reais traçadas a partir de imagens de microscópio por muitos laboratórios, e é o lugar para comparar suas formas em detalhe.
O que o modelo omite
Nada no desenho está em escala. O axônio é bem mais curto e mais grosso do que qualquer axônio real, e a sinapse é ampliada numa cena à parte. O tempo é desacelerado de modo que um milissegundo dura meio segundo na tela. O impulso na tela também não se move nas verdadeiras velocidades relativas. Um axônio com mielina é 18 vezes mais rápido do que o mesmo axônio nu, e o modelo reduz essa diferença para que você não espere meio minuto, mas o painel sempre dá os números reais.
Na cena do neurônio, a forma do potencial de ação é uma curva desenhada através dos valores dos livros didáticos de −70, −55 e +30 mV, e não uma simulação da cinética dos canais. O laboratório da lula é o lugar onde a cinética real é executada, e seus números pertencem ao axônio de lula na sua própria temperatura, com repouso em −65 mV e pico perto de +40 mV. Os neurônios de mamíferos têm mais tipos de canal, e seus impulsos são mais curtos.
As outras cenas também simplificam. Os canais iônicos têm a forma de sua estrutura conhecida, mas são desenhados como blocos lisos, e a bomba gira bem mais devagar do que uma real. A corrida usa duas regras práticas de velocidade e desenha doze internós. As respostas sinápticas na cena da sinapse são formas do modelo. O modelo do reflexo toma o comprimento do caminho como uma fração fixa da altura e deixa de fora o tempo que um músculo leva para começar a se mover depois do seu sinal elétrico. Na cena da somação, cada entrada é bem mais forte do que uma real. Os tipos de neurônio são desenhados num único tamanho.
Esta exposição explica como as células nervosas funcionam em geral. Não é aconselhamento médico.
Quem descobriu
Luigi Galvani fez pernas de rã se contraírem com arcos de metal na década de 1780 e defendeu a existência de uma eletricidade animal. Em 1850, Hermann von Helmholtz cronometrou um nervo de rã em cerca de 27 m/s, lento o bastante para mostrar que os sinais nervosos não são eletricidade num fio. Julius Bernstein propôs em 1902 que a membrana em repouso é permeável ao potássio.
Cajal e Golgi dividiram o Prêmio Nobel de 1906 pela estrutura do sistema nervoso. Sherrington e Adrian dividiram o prêmio de 1932, Sherrington pelos reflexos e sinapses, Adrian pelo impulso do tudo ou nada e pela codificação por frequência. Henry Dale e Otto Loewi dividiram o prêmio de 1936 pela transmissão química. Joseph Erlanger e Herbert Gasser ganharam em 1944 por mostrar que as fibras mais grossas conduzem mais depressa. Ichiji Tasaki, em 1939, e Andrew Huxley com Robert Stämpfli, em 1949, mostraram que a excitação nas fibras com mielina salta entre os nós.
Alan Hodgkin e Andrew Huxley mediram as correntes de sódio e de potássio no axônio gigante da lula e as descreveram com equações em 1952. Dividiram o Prêmio Nobel de Fisiologia ou Medicina de 1963 com John Eccles, que estudou as sinapses do sistema nervoso central. O prêmio foi concedido pelos mecanismos iônicos de excitação e inibição na membrana da célula nervosa.
Trabalhos posteriores encontraram as moléculas por trás das equações. Erwin Neher e Bert Sakmann selaram uma fina pipeta de vidro numa célula muscular em 1976 e registraram a corrente através de canais individuais, e dividiram o prêmio de 1991. Os genes e depois as estruturas dos canais vieram nas décadas de 1980 e 1990. Arvid Carlsson, Paul Greengard e Eric Kandel dividiram o prêmio de 2000 pela sinalização entre células nervosas, incluindo o trabalho de Carlsson sobre a dopamina.
Perguntas
O que é um potencial de ação?
Uma breve inversão da voltagem através da membrana de um neurônio, de cerca de −70 mV para cerca de +30 mV e de volta, com duração de cerca de 2 ms. Começa no cone axonal e viaja pelo axônio até as terminações.
Por que o interior fica negativo em repouso?
Em repouso, a membrana deixa o potássio passar com muito mais facilidade do que o sódio. O potássio vaza para fora a favor do seu gradiente de concentração e deixa o interior negativo, e a bomba de sódio-potássio impede que as concentrações se esgotem.
Se cada disparo é igual, como sinaliza um estímulo forte?
Disparando com mais frequência. Uma entrada mais forte alcança o limiar mais cedo e inicia o impulso seguinte mais cedo, de modo que a frequência dos potenciais de ação carrega a intensidade, enquanto cada um continua com a mesma altura.
Qual é a velocidade dos sinais nervosos?
Depende da mielina e da espessura. Axônios sem mielina conduzem a cerca de 0,5 a 10 m/s e os com mielina a até cerca de 150 m/s, segundo Purves e colegas. As fibras mais finas da dor chegam a cerca de 1 m/s.
O que faz a mielina?
Isola o axônio, de modo que o potencial de ação só precisa ser reconstruído nos nós de Ranvier. Isso torna a condução muito mais rápida e economiza energia, já que os canais e as bombas ficam concentrados nos nós. Em doenças desmielinizantes como a esclerose múltipla, a corrente vaza e a condução desacelera.
Por que o sinal não volta?
Atrás do impulso, os canais de sódio ficam inativados por um curto tempo e não conseguem abrir de novo. Esse período refratário impede que o potencial de ação dê meia-volta, de modo que ele corre do corpo celular em direção às terminações.
Quanto demora cruzar uma sinapse?
Cerca de um milissegundo numa sinapse química, para a entrada de cálcio, a fusão das vesículas, a difusão pela fenda e a abertura dos receptores. As sinapses elétricas, em que as células são unidas por canais, são quase instantâneas.
O repouso é sempre −70 mV?
Não. Varia com o tipo de neurônio e a espécie, e os livros didáticos usam −70 mV como valor típico. O limiar de cerca de −55 mV e o pico de +30 a +40 mV também são valores típicos.
O que Hodgkin e Huxley descobriram?
Que o potencial de ação é carregado por duas correntes separadas: o sódio entrando primeiro, depois o potássio saindo. Eles mediram como cada uma ligava e desligava com a voltagem e o tempo, e escreveram equações que reproduziam a forma do impulso, o limiar, o período refratário e a velocidade de condução no axônio de lula.
O que é fixação de voltagem?
Um amplificador que mantém o potencial de membrana num valor escolhido injetando a corrente que for necessária. A corrente injetada é igual à corrente através dos canais, de modo que pode ser medida. A cena "Canais iônicos" executa um ciclo de fixação.
Por que a lula tem um axônio tão grosso?
Os axônios gigantes comandam o jato de fuga da lula, e um axônio mais largo conduz mais depressa porque seu núcleo tem menos resistência. Um axônio de 0,5 mm chega a cerca de 21 m/s sem mielina, o que os vertebrados obtêm com uma fibra com mielina de cerca de 4 µm de largura.
Por que o reflexo patelar é rápido?
Há apenas uma sinapse entre a fibra sensorial e o neurônio motor, e as duas fibras são grossas e com mielina. O cérebro não participa. A viagem inteira leva cerca de 17 a 21 ms em adultos jovens, mais em pessoas mais altas.
Qual a diferença entre sinapses excitatórias e inibitórias?
Uma sinapse excitatória empurra a célula seguinte em direção ao limiar, em geral deixando entrar íons positivos. Uma sinapse inibitória a mantém afastada, em geral deixando entrar cloreto. A zona de disparo só dispara se a soma de todas as entradas alcançar o limiar.
O que toxinas como TTX fazem aos nervos?
A tetrodotoxina bloqueia os canais de sódio dependentes de voltagem, de modo que potenciais de ação não podem ser gerados nem conduzidos. Esta exposição mostra o efeito num modelo para explicar como os canais funcionam. Não é informação sobre envenenamento ou tratamento.
Termos
- Potencial de membrana: a voltagem através da membrana celular, com o interior medido em relação ao exterior.
- Potencial de repouso: o potencial de membrana estável de um neurônio que não está sinalizando, cerca de −70 mV.
- Limiar: o potencial, cerca de −55 mV, em que os canais de sódio dependentes de voltagem abrem e um potencial de ação começa.
- Despolarização: uma mudança que torna o interior menos negativo.
- Repolarização: o retorno ao potencial de repouso depois de um impulso.
- Hiperpolarização: uma queda abaixo do potencial de repouso, como após um potencial de ação.
- Período refratário: o tempo depois de um impulso em que a membrana não consegue disparar de novo, ou só com um estímulo mais forte.
- Cone axonal e segmento inicial: a zona de disparo onde o axônio sai do corpo celular.
- Mielina: envoltórios isolantes de membrana glial em torno de um axônio.
- Nó de Ranvier: um pequeno vão entre as voltas de mielina onde o potencial de ação é reconstruído.
- Condução saltatória: condução que salta de nó em nó ao longo de um axônio com mielina.
- Vesícula sináptica: um pequeno saco de membrana cheio de neurotransmissor.
- Equação de Nernst: a fórmula da voltagem em que um tipo de íon está em equilíbrio através de uma membrana.
- Fixação de voltagem: um método que mantém a membrana numa voltagem definida e mede a corrente através de seus canais.
- Variáveis de comporta (m, h, n): as frações abertas das comportas de ativação do sódio, de inativação do sódio e do potássio no modelo de Hodgkin-Huxley.
- Somação espacial: entradas em lugares diferentes se somando porque chegam juntas.
- Somação temporal: entradas num mesmo lugar se somando porque chegam próximas no tempo.
- PPSE e PPSI: potenciais pós-sinápticos excitatórios e inibitórios, pequenas mudanças que empurram uma célula em direção ao limiar ou para longe dele.
- Receptor ionotrópico: um receptor que é ele mesmo um canal iônico.
- Receptor metabotrópico: um receptor que age por meio de uma proteína G dentro da célula.
- Recaptação: remoção do transmissor da fenda por proteínas transportadoras.
- Fuso muscular: um receptor de estiramento dentro de um músculo.
- Arco reflexo: o caminho do receptor à medula espinal e ao músculo que produz um reflexo.
- Inibição recíproca: relaxamento do músculo oposto durante um reflexo, por meio de um interneurônio inibitório.
Fontes
- OpenStax, Anatomy and Physiology 2e, 12.4 The Action Potential (−70 mV em repouso, limiar de −55 mV, pico de +30 mV, cerca de 2 ms, comporta de inativação do sódio, período refratário, condução saltatória). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-4-the-action-potential (consultado em 16 de outubro de 2026)
- OpenStax, Biology 2e, 35.2 How Neurons Communicate (concentrações iônicas na tabela 35.1, −70 mV varia conforme o neurônio e a espécie, pico de cerca de +40 mV, nódulos de cerca de 1 µm, a bomba expulsa 3 Na⁺ e faz entrar 2 K⁺, atraso sináptico de cerca de 1 ms, esclerose múltipla). https://openstax.org/books/biology-2e/pages/35-2-how-neurons-communicate (consultado em 16 de outubro de 2026)
- OpenStax, Anatomy and Physiology 2e, 12.2 Nervous Tissue (cone axonal, segmento inicial e zona de disparo, botões sinápticos, células de Schwann e oligodendrócitos). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-2-nervous-tissue (consultado em 16 de outubro de 2026)
- OpenStax, Anatomy and Physiology 2e, 12.5 Communication Between Neurons (cálcio e fusão de vesículas, fenda sináptica, somação no cone axonal). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-5-communication-between-neurons (consultado em 16 de outubro de 2026)
- Purves D et al., Neuroscience, 2nd edition, Increased Conduction Velocity as a Result of Myelination, NCBI Bookshelf (sem mielina de 0,5 a 10 m/s, com mielina até 150 m/s, condução saltatória). https://www.ncbi.nlm.nih.gov/books/NBK10921/ (consultado em 16 de outubro de 2026)
- Chudler EH, Neuroscience for Kids, Conduction Velocity, University of Washington (grupos de fibras, fibras C a cerca de 2,2 milhas por hora). https://faculty.washington.edu/chudler/cv.html (consultado em 16 de outubro de 2026)
- Washington University Neuromuscular Disease Center, Peripheral axons: characteristics (velocidade de cerca de 5,7 × diâmetro, razão g de 0,6 a 0,7, internódio de cerca de 100 × diâmetro, cerca de 25 µs entre os nódulos). https://neuromuscular.wustl.edu/nother/axon.htm (consultado em 16 de outubro de 2026)
- Hodgkin AL, Huxley AF. A quantitative description of membrane current and its application to conduction and excitation in nerve. Journal of Physiology 117, 500 (1952). https://pmc.ncbi.nlm.nih.gov/articles/PMC1392413/ (consultado em 16 de outubro de 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1963, summary (Eccles, Hodgkin, Huxley). https://www.nobelprize.org/prizes/medicine/1963/summary/ (consultado em 16 de outubro de 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1936, summary (Dale, Loewi, transmissão química). https://www.nobelprize.org/prizes/medicine/1936/summary/ (consultado em 16 de outubro de 2026)
- Hodgkin AL, Huxley AF. Action potentials recorded from inside a nerve fibre. Nature 144, 710 (1939). doi:10.1038/144710a0 (consultado em 18 de outubro de 2026)
- Young JZ. Structure of nerve fibres and synapses in some invertebrates. Cold Spring Harbor Symposia on Quantitative Biology 4, 1 (1936). doi:10.1101/SQB.1936.004.01.001 (consultado em 18 de outubro de 2026)
- Narahashi T, Moore JW, Scott WR. Tetrodotoxin blockage of sodium conductance increase in lobster giant axons. Journal of General Physiology 47, 965 (1964). doi:10.1085/jgp.47.5.965 (consultado em 18 de outubro de 2026)
- Noda M et al. Primary structure of Electrophorus electricus sodium channel deduced from cDNA sequence. Nature 312, 121 (1984). doi:10.1038/312121a0 (consultado em 18 de outubro de 2026)
- Doyle DA et al. The structure of the potassium channel: molecular basis of K⁺ conduction and selectivity. Science 280, 69 (1998). doi:10.1126/science.280.5360.69 (consultado em 18 de outubro de 2026)
- Skou JC. The influence of some cations on an adenosine triphosphatase from peripheral nerves. Biochimica et Biophysica Acta 23, 394 (1957). doi:10.1016/0006-3002(57)90343-8 (consultado em 18 de outubro de 2026)
- Neher E, Sakmann B. Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature 260, 799 (1976). doi:10.1038/260799a0 (consultado em 18 de outubro de 2026)
- del Castillo J, Katz B. Quantal components of the end-plate potential. Journal of Physiology 124, 560 (1954). doi:10.1113/jphysiol.1954.sp005129 (consultado em 18 de outubro de 2026)
- Adrian ED, Zotterman Y. The impulses produced by sensory nerve-endings, part 2. Journal of Physiology 61, 151 (1926). doi:10.1113/jphysiol.1926.sp002281 (consultado em 18 de outubro de 2026)
- Tasaki I. The electro-saltatory transmission of the nerve impulse and the effect of narcosis upon the nerve fiber. American Journal of Physiology 127, 211 (1939). doi:10.1152/ajplegacy.1939.127.2.211 (consultado em 18 de outubro de 2026)
- Huxley AF, Stämpfli R. Evidence for saltatory conduction in peripheral myelinated nerve fibres. Journal of Physiology 108, 315 (1949). doi:10.1113/jphysiol.1949.sp004335 (consultado em 18 de outubro de 2026)
- Hursh JB. Conduction velocity and diameter of nerve fibers. American Journal of Physiology 127, 131 (1939). doi:10.1152/ajplegacy.1939.127.1.131 (consultado em 18 de outubro de 2026)
- Xu K, Terakawa S. Fenestration nodes and the wide submyelinic space form the basis for the unusually fast impulse conduction of shrimp myelinated axons. Journal of Experimental Biology 202, 1979 (1999). doi:10.1242/jeb.202.15.1979 (consultado em 18 de outubro de 2026)
- Vickery HSF, Smith PA. Surface electromyography reveals males have a slower patellar reflex than females. Journal of Electromyography and Kinesiology 22, 990 (2012). doi:10.1016/j.jelekin.2012.06.001 (consultado em 18 de outubro de 2026)
- Frijns CJM, Laman DM, van Duijn MAJ, van Duijn H. Normal values of patellar and ankle tendon reflex latencies. Clinical Neurology and Neurosurgery 99, 31 (1997). doi:10.1016/s0303-8467(96)00593-8 (consultado em 18 de outubro de 2026)
- Washington University Neuromuscular Disease Center, Tendon reflexes (latência do reflexo H de cerca de 30 ms, aumenta com a altura). https://neuromuscular.wustl.edu/mother/reflex.html (consultado em 18 de outubro de 2026)
- Napper RMA, Harvey RJ. Number of parallel fiber synapses on an individual Purkinje cell in the cerebellum of the rat. Journal of Comparative Neurology 274, 168 (1988). doi:10.1002/cne.902740204 (consultado em 18 de outubro de 2026)
- Azevedo FAC et al. Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513, 532 (2009). doi:10.1002/cne.21974 (consultado em 18 de outubro de 2026)
- Spruston N. Pyramidal neurons: dendritic structure and synaptic integration. Nature Reviews Neuroscience 9, 206 (2008). doi:10.1038/nrn2286 (consultado em 18 de outubro de 2026)
- Euler T et al. Retinal bipolar cells: elementary building blocks of vision. Nature Reviews Neuroscience 15, 507 (2014). doi:10.1038/nrn3783 (consultado em 18 de outubro de 2026)
- Somogyi P. A specific axo-axonal interneuron in the visual cortex of the rat. Brain Research 136, 345 (1977). doi:10.1016/0006-8993(77)90808-3 (consultado em 18 de outubro de 2026)
- Gerfen CR, Surmeier DJ. Modulation of striatal projection systems by dopamine. Annual Review of Neuroscience 34, 441 (2011). doi:10.1146/annurev-neuro-061010-113641 (consultado em 18 de outubro de 2026)
- Ascoli GA, Donohue DE, Halavi M. NeuroMorpho.Org: a central resource for neuronal morphologies. Journal of Neuroscience 27, 9247 (2007). doi:10.1523/JNEUROSCI.2055-07.2007 (consultado em 18 de outubro de 2026)
- Korn H, Faber DS. The Mauthner cell half a century later. Neuron 47, 13 (2005). doi:10.1016/j.neuron.2005.05.019 (consultado em 18 de outubro de 2026)
- Piccolino M. Animal electricity and the birth of electrophysiology: the legacy of Luigi Galvani. Brain Research Bulletin 46, 381 (1998). doi:10.1016/S0361-9230(98)00026-4 (consultado em 18 de outubro de 2026)
- Schmidgen H. Of frogs and men: the origins of psychophysiological time experiments, 1850 to 1865. Endeavour 26, 142 (2002). doi:10.1016/S0160-9327(02)01466-7 (consultado em 18 de outubro de 2026)
- Seyfarth EA. Julius Bernstein (1839 to 1917): pioneer neurobiologist and biophysicist. Biological Cybernetics 94, 2 (2006). doi:10.1007/s00422-005-0031-y (consultado em 18 de outubro de 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1906, 1932, 1944, 1970, 1991 and 2000, and in Chemistry 1997 and 2003, summaries. https://www.nobelprize.org/prizes/medicine/1991/summary/ (consultado em 18 de outubro de 2026)
- National Institute of Neurological Disorders and Stroke (NINDS), Multiple sclerosis; Guillain-Barré syndrome; Myasthenia gravis; Parkinson's disease; Amyotrophic lateral sclerosis. https://www.ninds.nih.gov/health-information/disorders/multiple-sclerosis (consultado em 18 de outubro de 2026)
Texto e simulação: CC BY-NC-SA 4.0, salvo indicação em contrário.
Mais exposições
Batidas do coração: modelo interativo passo a passo
Seu coração ejeta cerca de 70 mL de sangue a cada batimento e, no ritmo de repouso, faz isso cerca de 108.000 vezes por dia.

CRISPR-Cas9: simulador interativo de edição genética
Um RNA guia lê só 20 letras de DNA, e isso costuma bastar para escolher um único ponto entre os 3 bilhões de pares de bases de um genoma humano.

ATP sintase: explore como funciona seu rotor molecular
Nas mitocôndrias, o rotor da ATP sintase gira cerca de 100 vezes por segundo. Cada volta completa libera três moléculas de ATP.
Passeio dentro de uma célula: animal, vegetal e bactéria
Ampliada um milhão de vezes, uma mitocôndria fica mais ou menos do tamanho de um sofá, uma E. coli inteira mede 2 m e a cinesina que reboca uma vesícula ao seu lado anda a 0,8 metro por segundo.
RCP, DEA, engasgo e extintor: como fazer
Comprima entre 100 e 120 vezes por minuto, com cerca de 5 cm de profundidade: com alguém por perto fazendo isso, a sobrevivência na Coreia em 2024 foi 2,36 vezes maior.
Tempo de reação: teste seus reflexos em milissegundos
A luz da tela chega quase de imediato ao olho, mas o dedo se move um quinto de segundo depois. Quase todo o tempo passa na cabeça.