图 66原理馆
神经信号如何传播
神经细胞保持在约 −70 mV,刺激将其抬升至约 −55 mV 时,就会发出大小始终相同的尖峰。
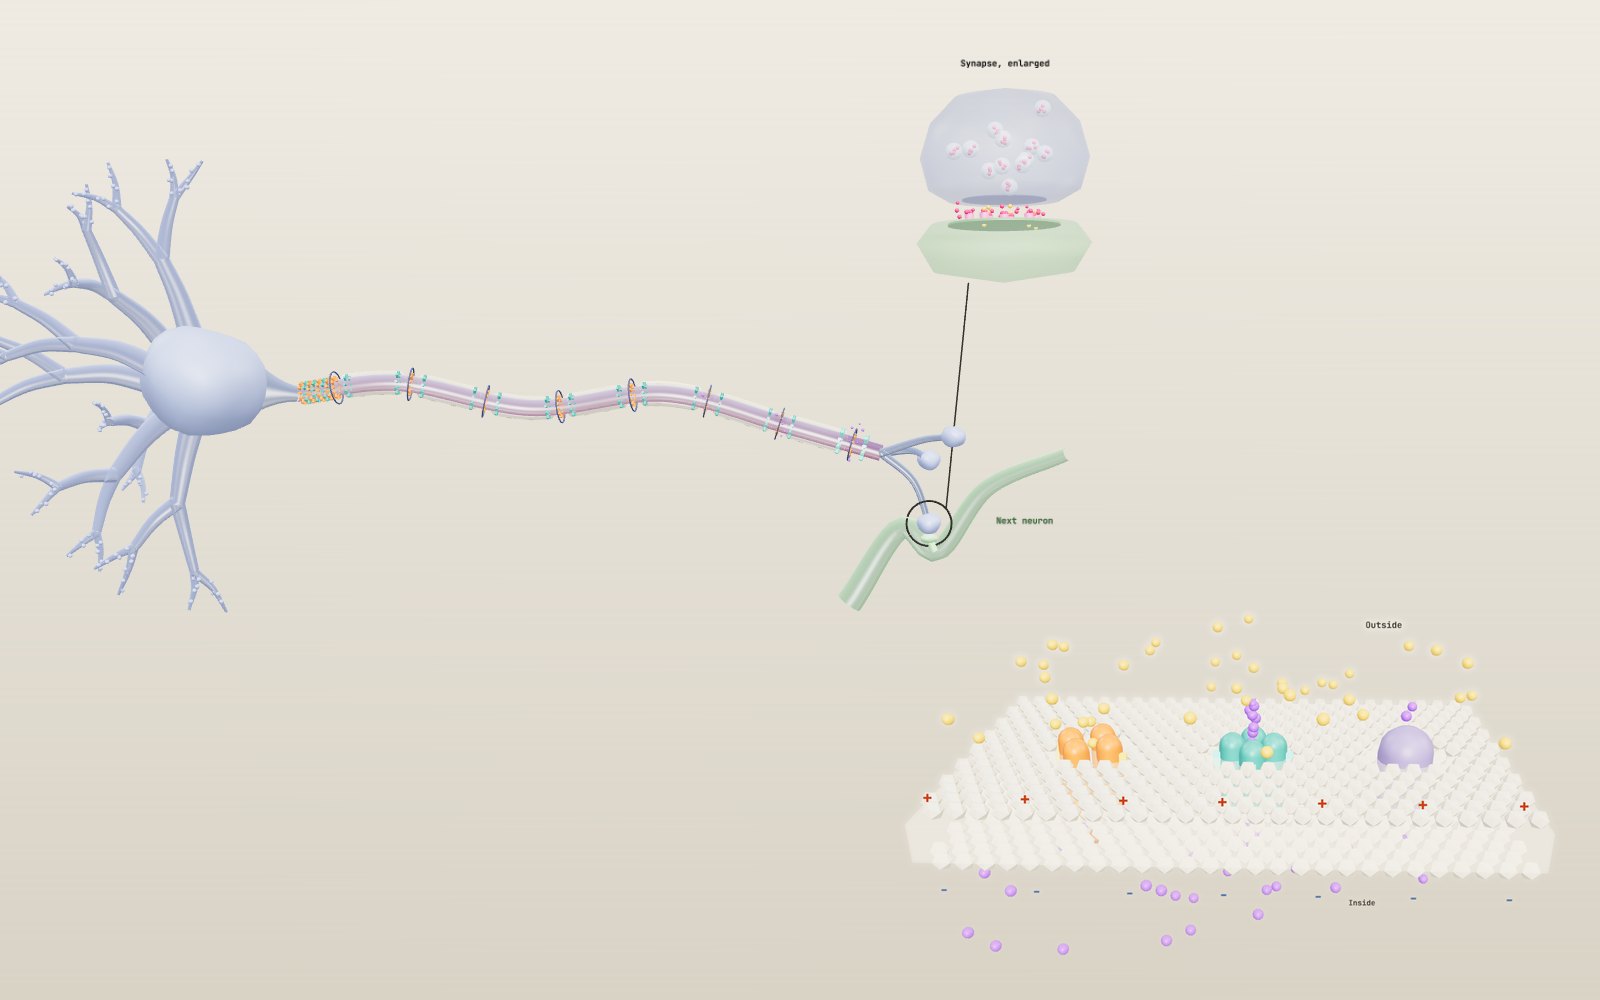
这台设备无法显示 3D 模型。下面的讲解步骤可以直接阅读文字。
1 / 28 神经元从一端到另一端信号从左侧树突进入,从右侧轴突末梢离开。这里的轴突被缩短,并画得远比真实情况粗。角落面板绘出轴丘的膜电位。模型下方的栏可打开另外七个场景。
拖动可旋转,滚轮或双指缩放。
脚趾撞到东西时会发生什么?
脚趾撞到东西时,你先感觉到撞击,片刻后才感到疼痛。这两种信息都沿着同一条腿中的神经纤维,传向脊髓和大脑。它们到达的时间不同,是因为传递它们的纤维结构不同。华盛顿大学 Eric Chudler 的 Neuroscience for Kids 网页指出,缓慢传递痛觉的纤维速度约为每小时 2.2 英里,比你走路还慢,而粗大的触觉纤维则接近飞机的速度。
这种差异背后,是每个神经细胞都使用的一种机制。神经元使内部保持电负性,当足够强的输入到来时,它会使电荷状态翻转约两毫秒,并沿轴突传递这次翻转。在轴突远端,电信号变成化学信号,跨越到下一个细胞。
展项开始时呈现一个 3D 神经元。你可以改变输入强度,去掉轴突上的髓鞘,改变轴突粗细,并近距离观察一个突触。模型下方的栏可以切换到另外七个场景。一个场景放大离子通道,并像 1940 年代的实验那样,把膜保持在固定电压。另一个让有髓纤维与无髓纤维在一米距离上竞速。其他场景展示五种神经递质的作用,测量膝反射从敲击到踢腿的时间,将兴奋性和抑制性输入相加,并将八类神经元并排展示。最后一个场景是培养皿中的鱿鱼巨轴突,你改变电流、温度和两种毒素的剂量时,霍奇金和赫胥黎于 1952 年发表的方程会实时运行。控件下方有八项可尝试的任务,以及这个领域历史中的 51 个简短案例。
盐水做成的电池
神经元就像一袋盐水,浸在成分不同的盐水中。内部钾多、钠少,外部则相反。OpenStax Biology 给出的典型数值是,钠在细胞外为 145 mM、细胞内为 12 mM,钾在细胞外为 4 mM、细胞内为 155 mM。钠钾泵维持这种状态,每消耗一个 ATP 分子,就将三个钠离子泵出、两个钾离子泵入。
膜本身不让离子通过。离子只能通过通道蛋白穿膜,而静息时开放的主要是钾通道。钾沿浓度梯度向外泄漏,每个离子都带走一个正电荷,直到留下的负电荷阻止其余钾离子继续外流。在细胞内外各放一个电极测得的结果,就是静息膜电位:约 −70 mV。OpenStax 指出,确切数值随神经元类型和物种而变化,但大多数教科书和本模型都使用 −70 mV。
在展项中,蓝色的膜表示处于静息状态。角落里的曲线显示轴丘电位,当「刺激」滑块为零时,曲线保持在 −70 的水平线上。
通道内部
离子通过蛋白质穿过膜,「离子通道」场景放大了一块脂质双层中的三种蛋白。白色小球是脂质的头部基团,两层头部之间夹着油性层,没有离子能独自穿过。
橙色蛋白是电压门控钠通道。它由一条长链折叠而成,四个相似结构域围绕中央孔排列;京都 Shosaku Numa 的团队在 1984 年通过读取电鳗钠通道的基因,确定了这种布局。每个结构域都带有一个画成黄色短柱的电压传感器,当细胞内部的负电性减弱时,它会向外移动。内侧悬挂着一个环,画成链条上的红球。通道开放约一毫秒后,这个环摆入孔中并将其堵住。只有膜恢复到接近静息状态,且这个环摆出之后,通道才能再次开放。
蓝绿色蛋白是电压门控钾通道,由四个独立亚基围绕一个孔组成。它的传感器移动较慢,因此比钠通道开放得晚,而且没有快速堵孔结构。1998 年,麦金农的团队解析了细菌钾通道的结构,揭示了内衬氧原子的狭窄过滤器如何让钾通过,却将更小的钠拒之门外。这项工作分享了 2003 年诺贝尔化学奖。
右侧的紫色蛋白是钠钾泵。斯科于 1957 年在蟹神经中发现了它:这是一种仅在钠和钾同时存在时才分解 ATP 的酶,他因此分享了 1997 年诺贝尔化学奖。每消耗一个 ATP,它将三个钠离子移出、两个钾离子移入。与通道相比,泵的速度很慢,而且它并不产生动作电位。它的任务是在数分钟到数小时的时间尺度上维持浓度差。
将电压固定不动
这个场景运行的是电压钳,也就是霍奇金和赫胥黎使用的方法。放大器测量膜电位,并注入将其保持在选定值所需的电流。所需电流与流过通道的电流大小相等、方向相反,因此电压钳能把快速、自我增强的过程变成可以逐项测量的过程。
循环先将膜保持在 −65 mV,持续 3 ms,再阶跃到「钳制电压」的值,持续 12 ms,然后返回。默认阶跃到 −10 mV 时,曲线显示两种电流。钠电流(橙色,因为正电荷流入而画成向下)在 0.7 ms 后达到约 1,430 µA/cm² 的峰值,随后逐渐消失,尽管电压仍保持不变。钾电流(蓝绿色,向上)上升得较慢,阶跃结束时仍以约 1,430 µA/cm² 流动。读数中的百分比给出模型中每种通道的开放比例,钠为 m³h,钾为 n⁴。
阶跃到 +50 mV 时,钠电流消失,因为 +50 mV 是鱿鱼模型中的钠平衡电位:通道开放了,但没有钠的净移动。阶跃到 +60 mV,电流就反向流出。霍奇金和赫胥黎正是利用这种反转,证明哪种离子携带哪种电流。TTX 和 TEA 滑块分别阻断各类通道的一部分,并分别改变两条曲线。
输入在轴丘相加
树突是接收端。当另一个神经元释放的递质打开树突上的通道时,少量正电荷流入,使该处膜的负电性减弱。这些分级电位很小,传播时会衰减,但许多电位可以同时到达并相加。OpenStax 将其称为总和,它发生在轴丘,也就是轴突离开胞体的锥形部位,以及轴突最前端称为起始段的那一段。该段密布电压门控钠通道,因此被称为触发区。
将「刺激」滑块设为 +10 mV,观察黄色小球沿树突移动。每一阵输入都会将轴丘电位抬高到 −60 mV,随后又回落。没有任何信号沿轴突传播。
空间和时间上的总和
真实的神经元不会每次只接收一个输入。大脑皮层的锥体细胞在树突上有数千个突触,其中一些起兴奋作用,另一些起抑制作用。「总和」场景在树突上设有六个兴奋性突触(绿色),并在靠近触发区的胞体上设有一个抑制性突触(红色);触发区就是产生尖峰的轴突起始段。
模型中,每个兴奋性输入在峰值时增加 4 mV,约用 1 ms 上升,并以 15 ms 的时间常数衰减。阈值比静息时的 −70 mV 高 15 mV,与神经元场景相同。三个输入同时到达时达到 −58 mV,不能触发。四个同时到达时达到 −54 mV,触发区便会放电。这就是空间总和:来自不同位置的输入因同时到达而相加。
现在将它们错开。「输入间隔」设置相邻输入之间的延迟。四个输入相隔 2 ms 时,最后一个到达时,第一个已经开始衰减,峰值停在 −55.7 mV,刚好差一点。八个输入即使相隔达 4.5 ms,仍能使细胞放电。这就是时间总和,也是输入时机与数量同样重要的原因。
抑制会改变总和。五个同时到达的输入本可达到 −50 mV,但同一时刻出现 6 mV 或更强的抑制性输入,就会使细胞保持在阈值以下。大脑中大多数快速抑制来自 GABA 打开氯通道,而抑制性突触往往位于胞体上或附近,在那里抵消整棵树突树的输入。埃克尔斯在脊髓运动神经元中记录了这些抑制性电位,并与霍奇金和赫胥黎分享了 1963 年诺贝尔奖。
每个输入 4 mV 是模型选择的数值,目的是让少数输入就足够。皮层神经元的单个突触引起的胞体电位变化通常远小于 1 mV,因此真实细胞需要数十个输入在相近时间到达。
阈值和全或无定律
膜达到约 −55 mV 时,电压门控钠通道开放。这就是阈值。只要几个通道开放,钠便涌入,膜的负电性进一步减弱,更多通道随之开放。这个循环迅速自我增强,使电位冲过零点,达到约 +30 mV。
随后有两件事使电位回落。每个钠通道都有第二道门,会在不到一毫秒内自行关闭,使内流停止。与此同时,反应较慢的电压门控钾通道开放,让钾流出。膜电位下降,由于钾通道关闭较慢,短暂降到 −70 mV 以下,然后稳定下来。OpenStax 给出的整个过程持续时间约为 2 ms。
低于阈值时,这一切都不会发生;达到或超过阈值时,整个过程都会发生,而且每次高度相同。在 +15 到 +30 mV 之间移动滑块,曲线上的尖峰会更早出现,但顶部位置不会改变。这就是全或无定律。更强的刺激不会产生更大的动作电位。在真实神经元中,它会使动作电位更频繁地出现;模型中随着滑块升高,放电也会稍微频繁一些。
鱿鱼轴突与 1952 年的方程
1936 年,动物学家 J. Z. Young 证明,穿过鱿鱼外套膜、此前被当作血管的管状结构,其实是直径可达约一毫米的单根神经纤维。它们驱动鱿鱼喷射逃生,粗到足以插入一根导线。1939 年,霍奇金和赫胥黎在普利茅斯实验室这样做了,并首次记录到轴突内部的电位。尖峰并没有像伯恩斯坦的膜理论预测的那样停在零点。它超过零点数十毫伏。
战后,他们使用电压钳,将一根银丝沿轴突穿入,使整段轴突表现得像一片膜。他们测量了钠电流和钾电流如何在各个电压下开启和关闭,并在 1952 年用一组方程描述了这些电流。三个称为 m、h 和 n 的门,以取决于电压的速率开合。钠电导为 120 mS/cm² 乘以 m³h,钾电导为 36 mS/cm² 乘以 n⁴,另有 0.3 mS/cm² 的小漏电导使电路完整。速率是在 6.3 °C 下测得的,论文按温度每升高 10 °C 将速率乘以三来调整。
「鱿鱼轴突实验室」场景会在你观察时运行这些方程。读数中的灰色曲线,是导线在 40 ms 内记录的电位。培养皿中的轴突随着动作电位沿其传播而变色,速度由同一组方程预测。
方程的作用
在 6.3 °C 下,模型静息电位为 −65 mV,门的状态为 m = 0.053、h = 0.596、n = 0.318。1 ms 脉冲需要 6.9 µA/cm² 才能使其放电。低于该值,电位会稍微升高后回落。在 7 µA/cm² 下,尖峰出现较晚,约在脉冲开始 5 ms 后,峰值接近 +35 mV。在 20 µA/cm² 下,它在 1.3 ms 后出现,峰值接近 +41 mV,再将电流加倍,峰值增加不到 1 mV。远高于阈值时,高度几乎不变。恰在阈值处,方程给出的尖峰略小,这是教科书中的全或无定律略去的细节。尖峰之后,由于钾通道的门仍然开放,膜电位降至约 −76 mV,更接近 −77 mV 的钾平衡电位。
「第二脉冲延迟」设置第二个脉冲。使用两个 20 µA/cm² 的脉冲时,如果第二个距离第一个不足 10.6 ms,就不能触发放电。将电流加倍到 40 µA/cm²,间隔 7.8 ms 就够了。这就是相对不应期:恢复期间,更强的刺激可以让膜更早放电。最初几毫秒内,任何脉冲都不够强,这就是绝对不应期。
「持续电流」将脉冲替换为持续 150 ms 的阶跃。约从 6.3 µA/cm² 起,轴突会反复放电。在 10 µA/cm² 下,放电频率为 69 Hz,在 20 µA/cm² 下为 87 Hz,在 50 µA/cm² 下为 118 Hz。这就是神经细胞将强度转化为频率的方式,也是阿德里安于 1926 年在感觉纤维中听到的编码。
温度会同时加快三个门的运动。在 18.5 °C 下,它们的速度快 3.8 倍,尖峰更窄、更低,峰值接近 +33 mV,1 ms 脉冲的阈值升至 8.9 µA/cm²。在 25 °C 下,峰值仅约 +19 mV,而约从 28 °C 起,20 µA/cm² 的脉冲完全无法再触发放电。此时,钠通道失活和钾通道激活在尖峰形成之前就赶上了钠通道激活。
传播有多快
1952 年论文的第五部分做了更有雄心的工作。霍奇金和赫胥黎使用测得的 238 µm 纤维半径和 35.4 Ω cm 的轴浆电阻率,求解沿轴突传播的动作电位,得到在 18.5 °C 下速度为 18.8 m/s。同一根轴突的实测速度为 21.2 m/s。赫胥黎用手摇机械计算器完成了运算。
同一计算又以另一种方式重复:将一根 6 cm 的轴突分成短段,让整条电缆随时间逐步推进。每段长 0.5 mm 时,得到 18.7 m/s;每段为 0.25 mm 时,结果稳定在 18.73 m/s,与论文数值相差不到百分之零点五。在 6.3 °C 下,同一条电缆以 12.3 m/s 传导。实验室使用这一计算速度为轴突着色。
两种毒素
河豚毒素(TTX)是河豚的毒素,会附着在电压门控钠通道的外侧入口并堵住它。Toshio Narahashi 及同事于 1964 年在龙虾巨轴突上证明,它消除了钠电流,却不影响钾电流。模型中,即使 71% 的钠通道被阻断,20 µA/cm² 的脉冲仍能触发放电,超过这一比例就会失败。达到 100% 时,脉冲使膜电位升高后回落,沿轴突传播的波消失。
四乙基铵(TEA)阻断钾通道。在模型中,阻断一半钾通道时,一个脉冲就会引发由三个尖峰组成的短串放电,因为没有力量能有力地将膜电位拉低。阻断 90% 时,静息电位逐渐升高,直到钠通道持续失活,不再放电。这里把两种毒素都作为生理学家的研究工具展示。它们是危险物质,展项不讨论它们作为药物或治疗手段的用途。
为什么信号只向一个方向传播
轴丘的尖峰推动正电荷沿轴突内部移动。这些电荷将下一片膜抬升至阈值,其钠通道开放,这片膜便依次放电。后方的膜不能立即再次放电,因为那里的钠通道仍处于失活状态。这就是绝对不应期,也是动作电位向末梢传播、而不返回胞体的原因。
在无髓轴突上,每一片膜都必须依次完成这个过程。结果是连续的波,而且速度很慢。在「控件」中关闭「髓鞘」,观察琥珀色带沿轴突缓慢移动。
髓鞘和郎飞结
脊椎动物的大多数快速轴突包裹着髓鞘,由胶质细胞膜层层构成。在脑和脊髓以外的神经中,每段包裹来自一个施旺细胞;在脑和脊髓内部,由少突胶质细胞制造髓鞘,一个细胞伸出突起包裹多根轴突。髓鞘使轴突绝缘,让电流沿内部传播,而不是穿过膜泄漏。
髓鞘并不连续。各段包裹之间有约一微米长的间隙,即郎飞结,电压门控钠通道就位于这里。一个结上的尖峰推动电流迅速通过绝缘段,足以将下一个结升至阈值,动作电位便在那里重新产生。它看上去像从一个结跳到另一个结,因此得名跳跃式传导,名称源自表示跳跃的拉丁语。在模型中,各个结依次亮起,而结间段只发出微光。
提升幅度很大。在 Purves 及同事的 Neuroscience 中,无髓轴突的传导速度约为 0.5 到 10 m/s,有髓轴突则可达 150 m/s。粗细也很重要。较粗的轴突内部电阻较小,因此电荷能扩散得更远。改变「轴突直径」,角落中的速度会随之改变,粗纤维快,细纤维慢。
两种提速方式
「髓鞘竞速」场景让两根轴突在一米距离上并排竞速。起初两者的直径都是 10 µm。有髓轴突用时 17.5 ms,无髓轴突用时 316 ms,后者是前者的 18 倍。上方纤维的亮光从一个结跳到另一个结;这里只画出十二段髓鞘,虽然一根 10 µm 的纤维在一米内约有一千段,每段约 1 mm 长,约用 18 µs 通过。
动物找到了两种解决速度问题的办法。脊椎动物给快速轴突包裹髓鞘。鱿鱼和许多其他无脊椎动物则将轴突加粗,因为更粗的内部电阻更小,电流可以扩散得更远。将「无髓轴突宽度」设为 476 µm,也就是霍奇金和赫胥黎的轴突尺寸,按照模型的平方根规律,无髓纤维达到 21.8 m/s,接近他们测得的 21.2 m/s。它比旁边的有髓纤维粗 50 倍,却仍慢近三倍。有髓纤维只需约 4 µm 就能达到 21 m/s,横截面积小一万倍以上,这也是一条人类神经能容纳数千根快速纤维的原因之一。
有记录以来最快的纤维,属于具有自身髓鞘的无脊椎动物。Ke Xu 和 Susumu Terakawa 综述了对虾属 Penaeus 虾类的巨纤维,其传导速度超过 200 m/s。它们的髓鞘与轴突之间留有宽阔空间,而且没有普通的结,取而代之的是小窗口。
「髓鞘损伤」移除纤维中段一段髓鞘。模型将这一段视为无髓轴突,因此信号在那里变慢,完成传播的时间也更晚。在真实神经中,电流可能通过暴露的膜泄漏,而那里的钠通道很少,信号可能完全中断。免疫系统攻击髓鞘的疾病,如脑和脊髓的多发性硬化症或周围神经的吉兰-巴雷综合征,会以这种方式减慢或阻断传导。这个场景只说明原理。美国国立卫生研究院下属的 NINDS 提供这两种疾病的患者信息。
核对数值
静息电位接近钾的平衡电位,能斯特方程根据两侧浓度给出这个值:
E = (RT / zF) × ln(outside / inside)
在体温 37 °C 下,RT/F 为 26.73 mV,也就是浓度每相差十倍对应 61.54 mV。对钾而言,61.54 × log₁₀(4/155) 得到 −97.7 mV。对钠而言,61.54 × log₁₀(145/12) 得到 +66.6 mV。氯带负电荷,用相同数值可得 −90.9 mV。
静息值 −70 mV 位于它们之间,是因为静息膜也会让少量钠进入。Goldman 方程按每种离子穿膜的难易程度加权。如果钠的通过速率是钾的二十分之一(不计氯),公式给出 −70.2 mV。将比例变为百分之一,结果降至 −89.5 mV;升至十分之一,结果升至 −57.0 mV。峰值 +30 mV 远未达到钠的 +66.6 mV,是因为尚未到达该值,钠通道就已失活,钾通道也已开放。
模型用两条规律计算传导速度。有髓纤维的直径每增加一微米,传导速度约增加 5.7 m/s,这是 华盛顿大学神经肌肉疾病中心 给出的经验规律。无髓轴突在 1 µm 时设为 1 m/s,与细痛觉纤维相符,随后速度随直径的平方根增长。在 10 µm 时,有髓速度为 57 m/s,无髓为 3.16 m/s,相差 18 倍。沿一米轴突传播,前者用时 17.5 ms,后者为 316 ms。在 20 µm 时,有髓纤维达到 114 m/s,整个滑块范围内的数值都处于教科书范围之内。
同一来源给出的结间段长度约为轴突直径的 100 倍,因此 10 µm 纤维的结间段约为 1 mm。在 57 m/s 下,从一个结到下一个结需 17.5 µs,与该来源给出的 25 µs 属同一数量级。模型中,输入增加 15 mV 就达到阈值:+20 mV 在 0.42 ms 后越过阈值,+30 mV 则在 0.23 ms 后越过。所有这些数值也都经过了数值计算核验。
突触处从电到化学的转变
在轴突末端,信号必须跨过间隙到达下一个细胞。动作电位到达突触小体,也就是各末梢分支尖端的膨大部位时,电压门控钙通道开放,钙流入。钙促使停靠在膜上的突触囊泡与膜融合,将神经递质释放到突触间隙。递质扩散过去,与下一个神经元上的受体蛋白结合。许多受体本身就是离子通道,因此结合会使其开放,正离子流入,推动这个细胞接近自身阈值。随后递质被分解、扩散离开或被泵回,突触便再次准备就绪。
OpenStax 给出的动作电位到达与另一侧通道开放之间的时间约为一毫秒。模型的特写用绿色表示钙、粉色表示递质,受体与递质结合期间会发光。
五种递质
「突触」场景放大一个突触,直到囊泡、间隙和受体占满舞台。「递质」可在五种最知名的神经递质之间切换,每一种都会改变受体、反应以及清除间隙的方式。
- 谷氨酸是大脑主要的快速兴奋性递质。它的大多数受体是离子通道(AMPA 和 NMDA 受体),能在一毫秒内让正离子进入,产生快速兴奋性突触后电位(EPSP)。转运体将它从间隙中移除,其中许多位于星形胶质细胞上。
- GABA 是主要的抑制性递质。GABA-A 受体是氯通道,产生的反应是抑制性突触后电位(IPSP),使细胞远离阈值。GABA 由谷氨酸合成,由自身的转运体清除。
- 乙酰胆碱通过烟碱型受体将信号从运动神经元传向骨骼肌,这些受体是离子通道。它不会被完整地再摄取。间隙中的乙酰胆碱酯酶将它分解,胆碱则被回收。勒维于 1921 年用两颗蛙心进行的实验,首次证明神经会释放一种化学物质,后来确定是乙酰胆碱。
- 多巴胺只通过 G 蛋白偶联受体(D1 到 D5)起作用。反应开始得更晚、幅度更小、持续更久,主要作用是改变靶细胞对其他输入的响应方式。中脑神经元将它送往纹状体和皮层,多巴胺转运体负责清除。
- 血清素由中缝核神经元利用色氨酸合成,这些神经元延伸至大脑的大部分区域。它的受体几乎全部是 G 蛋白偶联受体;例外是 5-HT3 受体,它是离子通道。血清素转运体负责清除。
「再摄取」会关闭转运体。分子随后在间隙中停留更久,反应也会延长。有些药物通过减慢转运体而作用于这一步。场景只展示原理。
间隙宽约 20 nm,因此扩散穿过它只需微秒。约 1 ms 的突触延迟主要花在钙进入和囊泡融合上。卡茨和 José del Castillo 于 1954 年在蛙神经肌肉接头处证明,递质以固定大小的小包释放,后来证实这些小包对应单个囊泡。卡茨与冯·奥伊勒和阿克塞尔罗德分享了 1970 年诺贝尔奖,其中冯·奥伊勒确定去甲肾上腺素是一种递质,阿克塞尔罗德证明它在释放后会被摄回神经末梢。
给膝反射计时
医生敲击髌骨下方,会使大腿肌肉瞬间拉伸。肌肉内部的牵张感受器,即肌梭,开始放电,信号沿粗大的感觉纤维(称为 Ia 纤维)经后根进入脊髓。在那里,每根纤维都直接与同一块肌肉的运动神经元形成突触,后者的轴突随即把指令直接传回。肌肉收缩,小腿踢起。路径上只有一个突触,因此反射非常快。与此同时,感觉纤维的一个分支兴奋一个抑制性中间神经元,使大腿后侧的腘绳肌放松。谢林顿阐明了这种称为交互抑制的布局,并创造了「突触」一词;他与阿德里安分享了 1932 年诺贝尔奖。
「膝反射」场景为这段往返计时。模型把肌肉到脊髓的单程路径设为身高的一定比例:膝部为身高的 0.29,其运动神经元位于脊髓 L3 和 L4 节段;小腿为 0.52,由 S1 支配。信号以 65 m/s 传入、55 m/s 传出,这些值都在大型有髓纤维的范围内,另加肌梭、中枢突触和神经肌肉接头各 1 ms 的三项固定延迟。对身高 175 cm 的人,每程为 0.51 m,传入 7.8 ms,传出 9.2 ms,总计 20.0 ms。
测量结果与此一致。诺丁汉大学的 Helen Vickery 和 Paul Smith 用大腿上的表面电极记录了 28 名年轻成人的髌腱反射,发现女性为 17 ms,男性为 21 ms。阿姆斯特丹的 C. J. Frijns 及同事测量了 102 名健康人的膝反射和踝反射,发现潜伏期随身高增加,膝部相关系数为 0.70,踝部为 0.72。对每个人而言,各次敲击的潜伏期几乎不变。
将「敲击位置」设为「踝部」。从小腿出发的路径几乎长一倍,模型在身高 175 cm 时给出 33.5 ms。华盛顿大学神经肌肉疾病中心 给出的比目鱼肌 H 反射约为 30 ms,这是踝反射的电刺激版本,信号从神经而非肌梭开始。将「身高」从 140 cm 改为 200 cm,膝反射就从 16.6 ms 变为 22.5 ms。
这一切都不涉及大脑,因此膝反射比你任何有意做出的反应都快。自主选择做出的反应需要几百毫秒,「反应时间」展项会测量你的反应时间。
神经元的多种形态
卡哈尔用数十年时间绘制经高尔基银染法染色的神经元,证明它们是形态可辨的独立细胞。「神经元类型」场景并排展示八类,全部画成相同高度,便于比较分支。读数给出各自的真实尺寸。
- 锥体细胞是大脑皮层主要的兴奋性神经元。长长的顶树突伸向表面,并以一簇分支终止,而基树突从基底周围展开。它们释放谷氨酸。
- 小脑的浦肯野细胞将树突展开成平坦的扇形。平行纤维与扇面成直角穿过;Richard Napper 和 Robert Harvey 统计,一只大鼠的单个浦肯野细胞上约有 175,000 个平行纤维突触。这些细胞是抑制性的,其轴突伸向小脑深部核团。
- 脊髓的运动神经元有较大的胞体、长树突和粗大的有髓轴突,后者可到达一米外的肌肉。
- 视网膜双极细胞有一个突起向上连至视杆细胞或视锥细胞,另一个向下连至神经节细胞。大多数类型传递分级电位而非尖峰,视网膜中有十多种类型。
- 小脑颗粒细胞属于最小的神经元,具有四条短而呈爪状的树突,以及一根向上延伸后分为两条平行纤维的轴突。Frederico Azevedo 及同事统计,人脑约有 860 亿个神经元,其中约五分之四位于小脑,主要是颗粒细胞。
- 后根神经节的感觉神经元是假单极的:一根主干离开胞体后分叉,一支通向皮肤或肌肉,另一支进入脊髓。信号可以不经过胞体而穿过分叉处。
- 吊灯细胞是皮层的抑制性中间神经元。它们的突触小体像蜡烛一样排成短短的竖列,Péter Somogyi 于 1977 年证明,每一列都终止于锥体细胞轴突的起始段,也就是尖峰开始的部位。
- 中型棘状神经元构成纹状体的大部分。它们是抑制性的,表面密布树突棘,同时接收皮层谷氨酸和中脑多巴胺。
场景中的形态是简化图。乔治梅森大学 Giorgio Ascoli 团队创办的 NeuroMorpho.Org 档案库,收集了许多实验室根据显微图像描绘的真实神经元重建数据,是详细比较这些形态的地方。
模型省略了什么
图中没有任何部分按比例绘制。轴突远比真实轴突短而粗,突触则被放大为单独的特写。时间被放慢,使一毫秒在屏幕上持续半秒。屏幕上的尖峰也不按真实的相对速度移动。有髓轴突比同一根无髓轴突快 18 倍,模型缩小了这个差距,免得你等待半分钟,但读数始终给出真实数值。
在神经元场景中,动作电位的形状是穿过教科书数值 −70、−55 和 +30 mV 的绘制曲线,而非通道动力学模拟。鱿鱼实验室才是运行真实动力学的地方,其数值属于特定温度下的鱿鱼轴突,静息电位为 −65 mV,峰值接近 +40 mV。哺乳动物神经元有更多种类的通道,尖峰也更短。
其他场景同样有所简化。离子通道依据已知结构塑形,却画成光滑的块体,泵的转动也远慢于真实情况。竞速采用两条速度经验规律,并画出十二个结间段。突触场景的突触反应采用模型化的形状。反射模型将路径长度设为身高的固定比例,并省略肌肉在收到电信号后开始运动所需的时间。总和场景中的每个输入远强于真实输入。各类神经元被画成同样大小。
本展项说明神经细胞的一般工作原理,不提供医疗建议。
谁揭示了这些机制
伽伐尼在 1780 年代用金属弧使蛙腿抽动,并提出动物电的观点。1850 年,亥姆霍兹测得蛙神经速度约为 27 m/s,这种慢速足以说明神经信号并非导线中的电流。伯恩斯坦于 1902 年提出,静息膜可让钾通过。
卡哈尔和高尔基因神经系统结构研究分享了 1906 年诺贝尔奖。谢林顿和阿德里安分享了 1932 年的奖项,前者研究反射和突触,后者研究全或无尖峰与频率编码。戴尔和勒维因化学传递研究分享了 1936 年的奖项。厄兰格和加瑟于 1944 年获奖,因为他们证明较粗的纤维传导更快。Ichiji Tasaki 于 1939 年、赫胥黎与 Robert Stämpfli 于 1949 年证明,有髓纤维中的兴奋会在结之间跳跃。
霍奇金和赫胥黎测量了鱿鱼巨轴突中的钠电流和钾电流,并于 1952 年用方程描述它们。他们与研究中枢神经系统突触的埃克尔斯分享了 1963 年诺贝尔生理学或医学奖。获奖理由是揭示神经细胞膜兴奋与抑制的离子机制。
后来的工作找到了方程背后的分子。内尔和萨克曼于 1976 年将精细玻璃微管密封贴附在肌细胞上,记录了单通道电流,并分享了 1991 年的奖项。1980 年代和 1990 年代,通道的基因、继而结构相继被发现。卡尔森、格林加德和坎德尔因神经细胞间的信号传递研究分享了 2000 年的奖项,其中包括卡尔森对多巴胺的研究。
常见问题
什么是动作电位?
神经元膜两侧电压的短暂反转,从约 −70 mV 升至约 +30 mV 后返回,持续约 2 ms。它从轴丘开始,沿轴突传到末梢。
为什么静息时神经元内部带负电?
静息时,膜让钾通过远比让钠通过容易。钾沿浓度梯度向外泄漏,使内部带负电,钠钾泵则防止浓度差逐渐耗尽。
如果每个尖峰大小相同,神经元怎样表示强刺激?
通过更频繁地放电。更强的输入更早达到阈值,更早启动下一个尖峰,因此动作电位的频率携带强度信息,而每个动作电位的高度保持相同。
神经信号传播有多快?
取决于髓鞘和粗细。据 Purves 及同事所述,无髓轴突传导速度约为 0.5 到 10 m/s,有髓轴突可达约 150 m/s。最细的痛觉纤维约为 1 m/s。
髓鞘有什么作用?
它使轴突绝缘,因此动作电位只需在郎飞结处重新产生。这样既大幅加快传导,也节约能量,因为通道和泵集中在结处。在多发性硬化症等脱髓鞘疾病中,电流向外泄漏,传导变慢。
为什么信号不向后传播?
尖峰后方的钠通道会短暂失活,不能再次开放。这段不应期阻止动作电位掉头,因此它从胞体向末梢传播。
跨越一个突触需要多久?
化学突触约需一毫秒,用于钙进入、囊泡融合、跨间隙扩散和受体开放。细胞通过通道相连的电突触则几乎是瞬时的。
静息电位始终是 −70 mV 吗?
不是。它随神经元类型和物种而变化,教科书将 −70 mV 用作典型值。约 −55 mV 的阈值和 +30 到 +40 mV 的峰值也都是典型值。
霍奇金和赫胥黎究竟发现了什么?
动作电位由两种独立电流承载:先是钠流入,再是钾流出。他们测量了两种电流如何随电压和时间开启、关闭,并写出方程,再现了鱿鱼轴突中尖峰的形状、阈值、不应期和传导速度。
什么是电压钳?
一种通过注入所需电流,把膜电位保持在选定值的放大器。注入电流等于通过通道的电流,因此可以测量。「离子通道」场景运行一个钳制循环。
为什么鱿鱼的轴突这么粗?
巨轴突驱动鱿鱼的逃生喷射,而更粗的轴突内部电阻更小,传导更快。0.5 mm 的无髓轴突可达约 21 m/s,脊椎动物用直径约 4 µm 的有髓纤维就能达到这一速度。
为什么膝反射这么快?
感觉纤维和运动神经元之间只有一个突触,而且两根纤维都粗大且有髓。大脑不参与其中。年轻成人的整个往返约需 17 到 21 ms,身高较高者更久。
兴奋性突触和抑制性突触有什么区别?
兴奋性突触通常让正离子进入,推动下一个细胞接近阈值。抑制性突触通常让氯进入,使细胞远离阈值。只有所有输入的总和达到阈值,触发区才会放电。
TTX 等毒素对神经有什么作用?
河豚毒素阻断电压门控钠通道,使动作电位无法产生或传导。本展项用模型展示这种效应,以解释通道的工作原理。这不是有关中毒或治疗的信息。
术语
- 膜电位:细胞膜两侧的电压,以外侧为参照测量内侧。
- 静息电位:不传递信号的神经元所保持的稳定膜电位,约为 −70 mV。
- 阈值:电压门控钠通道开放、动作电位开始时的电位,约为 −55 mV。
- 去极化:使内部负电性减弱的变化。
- 复极化:尖峰后向静息电位恢复的过程。
- 超极化:电位降至静息电位以下,如动作电位之后的下降。
- 不应期:尖峰之后,膜不能再次放电,或只有更强刺激才能使其放电的时段。
- 轴丘和起始段:轴突离开胞体处的触发区。
- 髓鞘:轴突周围由胶质细胞膜形成的绝缘包裹。
- 郎飞结:髓鞘包裹之间的短间隙,动作电位在这里重新产生。
- 跳跃式传导:沿有髓轴突从一个结跳到另一个结的传导。
- 突触囊泡:装满神经递质的小膜囊。
- 能斯特方程:计算某种离子在膜两侧达到平衡时电压的公式。
- 电压钳:将膜保持在设定电压并测量通道电流的方法。
- 门控变量(m、h、n):霍奇金与赫胥黎模型中钠激活门、钠失活门和钾门的开放比例。
- 空间总和:不同位置的输入因同时到达而相加。
- 时间总和:同一位置的输入因到达时间相近而相加。
- EPSP 和 IPSP:兴奋性和抑制性突触后电位,使细胞接近或远离阈值的小幅变化。
- 离子型受体:本身就是离子通道的受体。
- 代谢型受体:通过细胞内 G 蛋白起作用的受体。
- 再摄取:由转运蛋白将递质从间隙中移除。
- 肌梭:肌肉内部的牵张感受器。
- 反射弧:从感受器到脊髓再到肌肉、产生反射的路径。
- 交互抑制:反射期间通过抑制性中间神经元使拮抗肌放松。
参考资料
- OpenStax, Anatomy and Physiology 2e, 12.4 The Action Potential (静息 −70 mV,阈值 −55 mV,峰值 +30 mV,约 2 ms,钠失活门,不应期,跳跃式传导). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-4-the-action-potential (核查于 2026 年 10 月 16 日)
- OpenStax, Biology 2e, 35.2 How Neurons Communicate (离子浓度见表 35.1,−70 mV 随神经元和物种变化,峰值约 +40 mV,结长约 1 µm,泵出 3 Na⁺、泵入 2 K⁺,突触延迟约 1 ms,多发性硬化症). https://openstax.org/books/biology-2e/pages/35-2-how-neurons-communicate (核查于 2026 年 10 月 16 日)
- OpenStax, Anatomy and Physiology 2e, 12.2 Nervous Tissue (轴丘、起始段和触发区,突触终球,施旺细胞和少突胶质细胞). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-2-nervous-tissue (核查于 2026 年 10 月 16 日)
- OpenStax, Anatomy and Physiology 2e, 12.5 Communication Between Neurons (钙与囊泡融合,突触间隙,轴丘处的总和). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-5-communication-between-neurons (核查于 2026 年 10 月 16 日)
- Purves D et al., Neuroscience, 2nd edition, Increased Conduction Velocity as a Result of Myelination, NCBI Bookshelf (无髓 0.5 到 10 m/s,有髓可达 150 m/s,跳跃式传导). https://www.ncbi.nlm.nih.gov/books/NBK10921/ (核查于 2026 年 10 月 16 日)
- Chudler EH, Neuroscience for Kids, Conduction Velocity, University of Washington (纤维分组,C 纤维约每小时 2.2 英里). https://faculty.washington.edu/chudler/cv.html (核查于 2026 年 10 月 16 日)
- Washington University Neuromuscular Disease Center, Peripheral axons: characteristics (速度约为 5.7 × 直径,g 比为 0.6 到 0.7,结间段约为 100 × 直径,结间约 25 µs). https://neuromuscular.wustl.edu/nother/axon.htm (核查于 2026 年 10 月 16 日)
- Hodgkin AL, Huxley AF. A quantitative description of membrane current and its application to conduction and excitation in nerve. Journal of Physiology 117, 500 (1952). https://pmc.ncbi.nlm.nih.gov/articles/PMC1392413/ (核查于 2026 年 10 月 16 日)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1963, summary (Eccles、Hodgkin、Huxley). https://www.nobelprize.org/prizes/medicine/1963/summary/ (核查于 2026 年 10 月 16 日)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1936, summary (Dale、Loewi,化学传递). https://www.nobelprize.org/prizes/medicine/1936/summary/ (核查于 2026 年 10 月 16 日)
- Hodgkin AL, Huxley AF. Action potentials recorded from inside a nerve fibre. Nature 144, 710 (1939). doi:10.1038/144710a0 (核查于 2026 年 10 月 18 日)
- Young JZ. Structure of nerve fibres and synapses in some invertebrates. Cold Spring Harbor Symposia on Quantitative Biology 4, 1 (1936). doi:10.1101/SQB.1936.004.01.001 (核查于 2026 年 10 月 18 日)
- Narahashi T, Moore JW, Scott WR. Tetrodotoxin blockage of sodium conductance increase in lobster giant axons. Journal of General Physiology 47, 965 (1964). doi:10.1085/jgp.47.5.965 (核查于 2026 年 10 月 18 日)
- Noda M et al. Primary structure of Electrophorus electricus sodium channel deduced from cDNA sequence. Nature 312, 121 (1984). doi:10.1038/312121a0 (核查于 2026 年 10 月 18 日)
- Doyle DA et al. The structure of the potassium channel: molecular basis of K⁺ conduction and selectivity. Science 280, 69 (1998). doi:10.1126/science.280.5360.69 (核查于 2026 年 10 月 18 日)
- Skou JC. The influence of some cations on an adenosine triphosphatase from peripheral nerves. Biochimica et Biophysica Acta 23, 394 (1957). doi:10.1016/0006-3002(57)90343-8 (核查于 2026 年 10 月 18 日)
- Neher E, Sakmann B. Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature 260, 799 (1976). doi:10.1038/260799a0 (核查于 2026 年 10 月 18 日)
- del Castillo J, Katz B. Quantal components of the end-plate potential. Journal of Physiology 124, 560 (1954). doi:10.1113/jphysiol.1954.sp005129 (核查于 2026 年 10 月 18 日)
- Adrian ED, Zotterman Y. The impulses produced by sensory nerve-endings, part 2. Journal of Physiology 61, 151 (1926). doi:10.1113/jphysiol.1926.sp002281 (核查于 2026 年 10 月 18 日)
- Tasaki I. The electro-saltatory transmission of the nerve impulse and the effect of narcosis upon the nerve fiber. American Journal of Physiology 127, 211 (1939). doi:10.1152/ajplegacy.1939.127.2.211 (核查于 2026 年 10 月 18 日)
- Huxley AF, Stämpfli R. Evidence for saltatory conduction in peripheral myelinated nerve fibres. Journal of Physiology 108, 315 (1949). doi:10.1113/jphysiol.1949.sp004335 (核查于 2026 年 10 月 18 日)
- Hursh JB. Conduction velocity and diameter of nerve fibers. American Journal of Physiology 127, 131 (1939). doi:10.1152/ajplegacy.1939.127.1.131 (核查于 2026 年 10 月 18 日)
- Xu K, Terakawa S. Fenestration nodes and the wide submyelinic space form the basis for the unusually fast impulse conduction of shrimp myelinated axons. Journal of Experimental Biology 202, 1979 (1999). doi:10.1242/jeb.202.15.1979 (核查于 2026 年 10 月 18 日)
- Vickery HSF, Smith PA. Surface electromyography reveals males have a slower patellar reflex than females. Journal of Electromyography and Kinesiology 22, 990 (2012). doi:10.1016/j.jelekin.2012.06.001 (核查于 2026 年 10 月 18 日)
- Frijns CJM, Laman DM, van Duijn MAJ, van Duijn H. Normal values of patellar and ankle tendon reflex latencies. Clinical Neurology and Neurosurgery 99, 31 (1997). doi:10.1016/s0303-8467(96)00593-8 (核查于 2026 年 10 月 18 日)
- Washington University Neuromuscular Disease Center, Tendon reflexes (H 反射潜伏期约 30 ms,随身高增加). https://neuromuscular.wustl.edu/mother/reflex.html (核查于 2026 年 10 月 18 日)
- Napper RMA, Harvey RJ. Number of parallel fiber synapses on an individual Purkinje cell in the cerebellum of the rat. Journal of Comparative Neurology 274, 168 (1988). doi:10.1002/cne.902740204 (核查于 2026 年 10 月 18 日)
- Azevedo FAC et al. Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513, 532 (2009). doi:10.1002/cne.21974 (核查于 2026 年 10 月 18 日)
- Spruston N. Pyramidal neurons: dendritic structure and synaptic integration. Nature Reviews Neuroscience 9, 206 (2008). doi:10.1038/nrn2286 (核查于 2026 年 10 月 18 日)
- Euler T et al. Retinal bipolar cells: elementary building blocks of vision. Nature Reviews Neuroscience 15, 507 (2014). doi:10.1038/nrn3783 (核查于 2026 年 10 月 18 日)
- Somogyi P. A specific axo-axonal interneuron in the visual cortex of the rat. Brain Research 136, 345 (1977). doi:10.1016/0006-8993(77)90808-3 (核查于 2026 年 10 月 18 日)
- Gerfen CR, Surmeier DJ. Modulation of striatal projection systems by dopamine. Annual Review of Neuroscience 34, 441 (2011). doi:10.1146/annurev-neuro-061010-113641 (核查于 2026 年 10 月 18 日)
- Ascoli GA, Donohue DE, Halavi M. NeuroMorpho.Org: a central resource for neuronal morphologies. Journal of Neuroscience 27, 9247 (2007). doi:10.1523/JNEUROSCI.2055-07.2007 (核查于 2026 年 10 月 18 日)
- Korn H, Faber DS. The Mauthner cell half a century later. Neuron 47, 13 (2005). doi:10.1016/j.neuron.2005.05.019 (核查于 2026 年 10 月 18 日)
- Piccolino M. Animal electricity and the birth of electrophysiology: the legacy of Luigi Galvani. Brain Research Bulletin 46, 381 (1998). doi:10.1016/S0361-9230(98)00026-4 (核查于 2026 年 10 月 18 日)
- Schmidgen H. Of frogs and men: the origins of psychophysiological time experiments, 1850 to 1865. Endeavour 26, 142 (2002). doi:10.1016/S0160-9327(02)01466-7 (核查于 2026 年 10 月 18 日)
- Seyfarth EA. Julius Bernstein (1839 to 1917): pioneer neurobiologist and biophysicist. Biological Cybernetics 94, 2 (2006). doi:10.1007/s00422-005-0031-y (核查于 2026 年 10 月 18 日)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1906, 1932, 1944, 1970, 1991 and 2000, and in Chemistry 1997 and 2003, summaries. https://www.nobelprize.org/prizes/medicine/1991/summary/ (核查于 2026 年 10 月 18 日)
- National Institute of Neurological Disorders and Stroke (NINDS), Multiple sclerosis; Guillain-Barré syndrome; Myasthenia gravis; Parkinson's disease; Amyotrophic lateral sclerosis. https://www.ninds.nih.gov/health-information/disorders/multiple-sclerosis (核查于 2026 年 10 月 18 日)
解说文章与模拟采用 CC BY-NC-SA 4.0 许可,另有说明的除外。
路线 2 / 8
从心跳到 DNA更多展品
心脏跳动:可交互模型,逐步演示
心脏每跳一次约泵出 70 mL 血液,按静息时的节奏,一天要跳约 108,000 次。

CRISPR-Cas9:基因编辑怎样工作
向导 RNA 只读取 DNA 的 20 个字母,这通常就足以在人类基因组的 30 亿个碱基对中选出一个位置。

ATP 合酶如何工作:可转动的三维模型
在线粒体中,ATP 合酶转子每秒约转 100 圈,每转一整圈就释放三个 ATP 分子。
走进细胞:动物细胞、植物细胞和细菌
放大一百万倍后,一个线粒体差不多有沙发那么大,一整个大肠杆菌长 2 m,拖着囊泡从你身边经过的驱动蛋白每秒走 0.8 米。
心肺复苏与急救:按压、除颤、气道梗阻和灭火跟练
每分钟按压 100 至 120 次,深约 5 cm:韩国 2024 年数据显示,有旁观者这样施救时,存活率是无施救时的 2.36 倍。
反应时间测试:你需要多少毫秒?
屏幕发出的光几乎立刻到达眼睛,手指却大约五分之一秒后才动。大部分时间都在你的头脑中流逝。