図 66しくみ館
神経伝達の仕組み:ニューロンを刺激して電気信号を追う
神経細胞は約 −70 mV で静止していて、刺激で約 −55 mV に達すると、いつも同じ大きさの活動電位を出します。
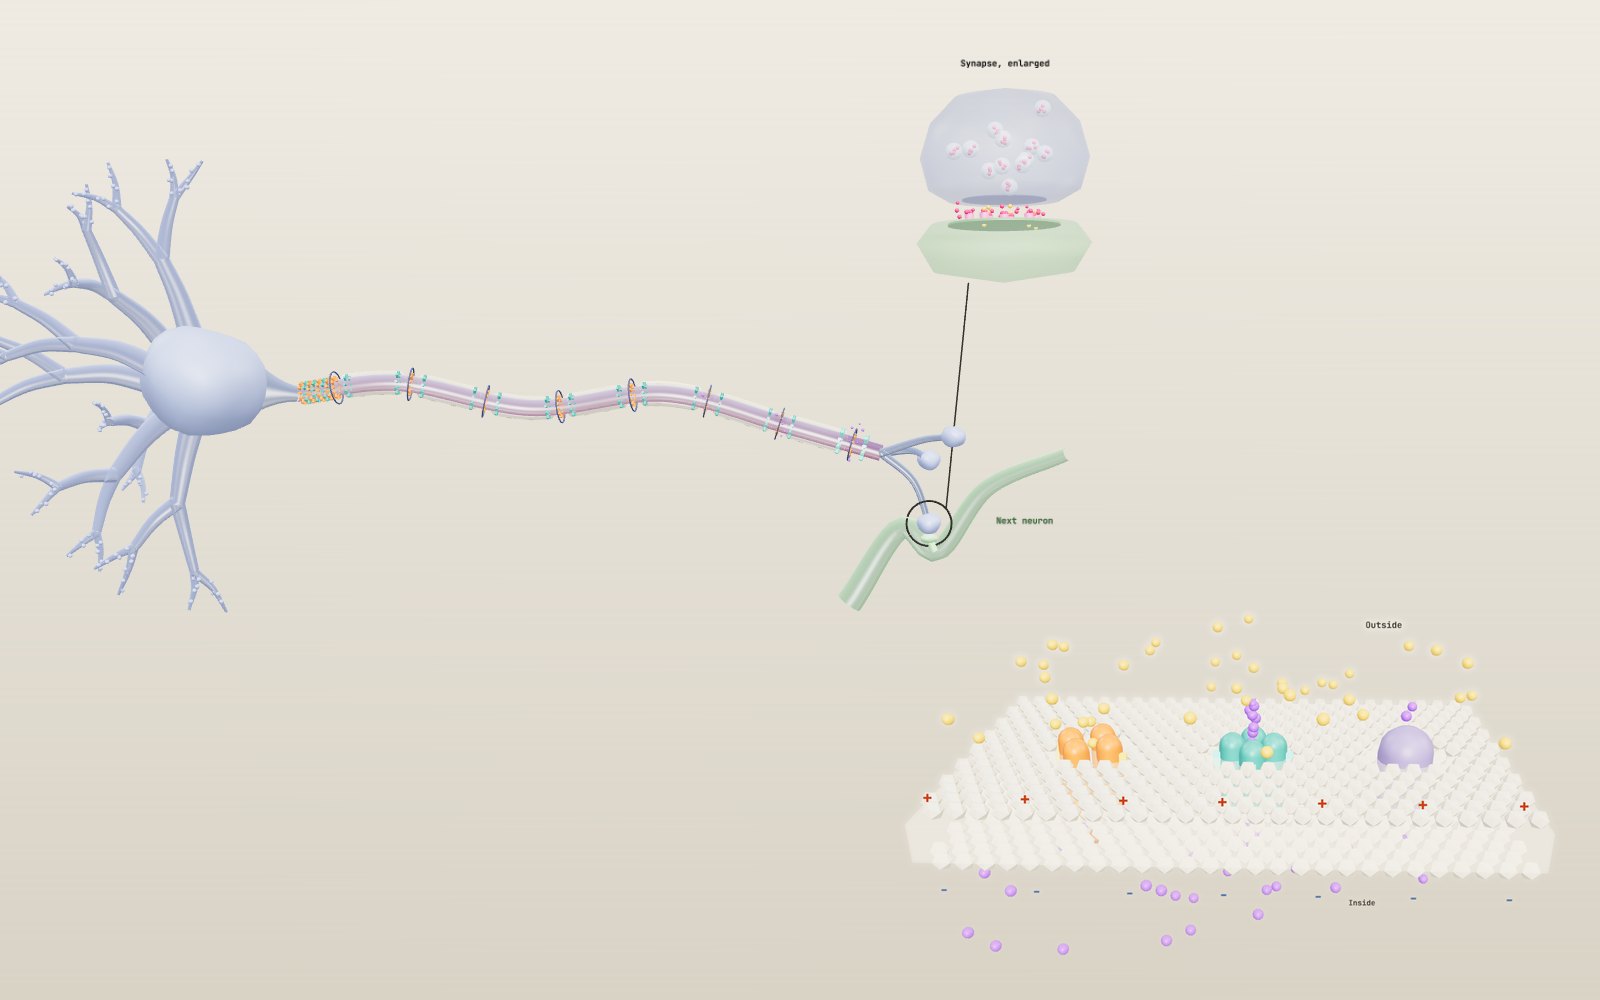
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 28 神経細胞の端から端へ信号は左の樹状突起から入り、右の軸索終末から出ていきます。ここの軸索は短縮してあり、実物よりずっと太く描いています。隅のパネルは軸索小丘の膜電位のグラフです。モデルの下のバーで、ほかの 7 つの場面を開けます。
ドラッグで回転、ホイールか二本指で拡大します。
足の指をぶつけると何が起きるか
足の指をぶつけると、先にぶつけた感覚が来て、少し遅れて痛みが来ます。どちらの信号も同じ脚の神経線維を通って脊髄と脳へ向かいますが、運ぶ線維の造りが違うため、届く時刻がずれます。University of Washington の Eric Chudler による Neuroscience for Kids では、痛みを運ぶ遅い線維の速さは時速約 2.2 マイルで、歩くより遅いとされています。一方、触覚を運ぶ太い線維は飛行機に近い速さです。
この違いの下には、すべての神経細胞に共通する一つのしくみがあります。ニューロンは細胞の内側を電気的に負に保っていて、十分に強い入力が来ると、約 2 ミリ秒だけその電位を逆転させ、逆転を軸索に沿って送ります。軸索の端では電気の信号が化学の信号に変わり、次の細胞へ受け渡されます。
展示は、3D で表した 1 個のニューロンから始まります。入力の強さを変えたり、軸索の髄鞘(ミエリン)を外したり、軸索の太さを変えたり、シナプスを拡大して見たりできます。モデルの下のバーで、ほかの 7 つの場面に切り替えます。イオンチャネルの場面では、1940 年代の実験と同じように、膜の電圧を一定に固定します。別の場面では、髄鞘のある線維とない線維が 1 メートルを競走します。ほかにも、5 種類の神経伝達物質のはたらき、膝蓋腱反射を叩いてから脚が跳ねるまでの時間、興奮性入力と抑制性入力の足し合わせ、8 種類のニューロンの並べ比べがあります。最後はシャーレの中のイカの巨大軸索で、Alan Hodgkin と Andrew Huxley が 1952 年に発表した方程式を、電流、温度、2 種類の毒素の量を変えながらその場で計算します。操作欄の下には、試せる 8 つの課題と、この分野の歴史から選んだ 51 の短い事例があります。
塩水が作る電池
ニューロンは、性質の違う塩水の中に浮かぶ、塩水の入った袋のようなものです。内側にはカリウムが多くナトリウムが少なく、外側はその逆です。OpenStax Biology にある代表的な値は、ナトリウムが外 145 mM、内 12 mM、カリウムが外 4 mM、内 155 mM です。ナトリウム-カリウムポンプは、ATP 1 分子を使うごとにナトリウムイオン 3 個を外へ出し、カリウムイオン 2 個を内へ入れて、この濃度差を保ちます。
膜そのものはイオンを通しません。イオンはチャネルタンパク質だけを通って膜を渡り、静止時に開いているチャネルは大半がカリウムチャネルです。カリウムイオンは濃度の高い内側から低い外側へ漏れ出し、一つずつ正の電荷を持ち去ります。やがて、内側に残った負の電荷が、残りのカリウムイオンが出ていくのを引き止めます。細胞の内と外に電極を 1 本ずつ当てて測ると、このときの電位は約 −70 mV で、これが静止膜電位です。OpenStax は、正確な値がニューロンの種類や動物の種によって異なると注意していますが、−70 mV は多くの教科書とこのモデルで使われている値です。
展示では、青い膜が静止状態の膜です。隅のグラフは軸索小丘の電位を示し、「刺激」のスライダーがゼロなら、−70 の線の上で平らなままです。
チャネルの内部
イオンは膜にあるタンパク質を通って細胞膜を渡ります。「イオンチャネル」の場面では、脂質二重層の一角にある 3 種類のタンパク質を拡大して見られます。白い粒は脂質の頭部で、2 枚の層の間には油性の層があり、イオンは自力ではそこを通れません。
橙色のタンパク質は電位依存性ナトリウムチャネルです。1 本の長い鎖が、中央の孔を囲む 4 つの似たドメインに折りたたまれています。この構造は、Shosaku Numa の京都の研究グループが 1984 年に、デンキウナギのナトリウムチャネルの遺伝子を読んで明らかにしました。各ドメインにある電位センサー(黄色い杭)は、細胞の内側の負電位が弱まると外側へ動きます。内側には、鎖につながった赤い球の形でループが垂れています。チャネルが開いておよそ 1 ミリ秒後に、このループが孔へ振れて栓をします。膜電位が静止近くまで戻り、ループが外へ戻るまで、チャネルは再び開けません。
青緑色のタンパク質は電位依存性カリウムチャネルで、4 個の別々のサブユニットが孔を囲んでいます。センサーの動きが遅いので、ナトリウムチャネルより遅れて開き、速い栓はありません。1998 年に Roderick MacKinnon の研究グループが細菌のカリウムチャネルの構造を解き、酸素原子が並ぶ狭いフィルターが、カリウムイオンを通し、より小さいナトリウムイオンを通さない仕組みを示しました。この業績は 2003 年のノーベル化学賞の対象になりました。
右の紫色のタンパク質は、ナトリウム-カリウムポンプです。Jens Skou は 1957 年に、ナトリウムとカリウムの両方があるときだけ ATP を分解する、カニの神経の酵素として見つけました。この発見で 1997 年のノーベル化学賞を共同で受けています。ATP 1 分子ごとにナトリウムイオン 3 個を外へ、カリウムイオン 2 個を内へ動かします。ポンプはチャネルに比べるとずっと遅く、活動電位を作るのではなく、分から時間の単位で濃度差を保つ役目をします。
電位を固定する
この場面では、Hodgkin と Huxley が使った電位固定法を実行します。増幅器が膜電位を測り、選んだ値に保つのに必要な電流を注入します。注入する電流は、チャネルを流れる電流と大きさが等しく向きが逆です。そのため電位固定を使うと、速く自分で増幅していく現象を、一つずつの要素に分けて測れます。
ループでは、膜を −65 mV に 3 ms 保ち、続いて操作欄の「固定電位」の値まで 12 ms だけ変え、元に戻します。初期値の −10 mV では、グラフに 2 つの電流が現れます。橙色のナトリウム電流は、正の電荷が流れ込むので下向きに描かれ、0.7 ms 後に約 1,430 µA/cm² でピークになり、電位を保っていても減っていきます。青緑色のカリウム電流(上向き)はゆっくり増え、段階が終わるときにも約 1,430 µA/cm² が流れています。読み取り欄のパーセントは、モデル内で開いているチャネルの割合で、ナトリウムチャネルは m³h、カリウムチャネルは n⁴ です。
+50 mV にするとナトリウム電流が消えます。+50 mV はイカのモデルでのナトリウムの平衡電位で、チャネルは開いても、正味のナトリウムの移動がなくなるからです。+60 mV にすると電流の向きが逆転し、外向きに流れます。Hodgkin と Huxley は、このような逆転を使って、どのイオンがどの電流を運ぶのかを突き止めました。TTX と TEA のスライダーは、それぞれのチャネルの一部を塞いで、2 本の曲線を別々に変えます。
軸索小丘で入力が足し合わさる
樹状突起は信号を受け取る側です。ほかのニューロンから出た伝達物質が樹状突起のチャネルを開くと、少量の正の電荷が流れ込み、その部分の膜の負電位が弱まります。こうした段階的電位は小さく、広がるにつれて弱まりますが、多数が同時に届くと足し合わさります。OpenStax はこれを加重と呼びます。足し合わせは、細胞体から軸索が出る円錐状の部分である軸索小丘と、それに続く軸索初節で起こります。初節には電位依存性ナトリウムチャネルが密集していて、そのため発火開始部と呼ばれます。
「刺激」のスライダーを +10 mV にすると、黄色い粒が樹状突起を走ります。入力が来るたびに軸索小丘が −60 mV まで上がり、また下がります。軸索には何も伝わりません。
空間と時間で足し合わせる
実際のニューロンは、入力を一つずつ受け取るわけではありません。大脳皮質の錐体細胞は、樹状突起に数千のシナプスを持ち、興奮性のものも抑制性のものもあります。「入力の加算」の場面には、樹状突起に 6 個の興奮性シナプス(緑)があり、細胞体の発火開始部の隣に 1 個の抑制性シナプス(赤)があります。発火開始部は、活動電位が始まる軸索の最初の部分です。
モデルでは、興奮性入力 1 個がピークで 4 mV を加え、約 1 ms で立ち上がり、時定数 15 ms で減衰します。しきい値は静止電位の −70 mV より 15 mV 高い値で、神経細胞の場面と同じです。入力が 3 個同時に来ると −58 mV までしか上がらず、発火しません。4 個同時なら −54 mV に届き、発火開始部が発火します。これが空間的加重で、別々の場所の入力が、同時に届くことで足し合わさります。
次に、入力の時刻をずらしてみます。「入力の間隔」は、入力と入力の間の遅れを決めます。4 個の入力を 2 ms ずつ空けると、最後の入力が届くころには最初の入力がすでに弱まり始めていて、ピークは −55.7 mV で、わずかに届きません。8 個の入力なら、4.5 ms ずつ空けても発火します。これが時間的加重で、入力の数だけでなく、届くタイミングも同じくらい重要な理由です。
抑制は合計を変えます。5 個の入力が同時に来れば −50 mV に達しますが、同じ瞬間に 6 mV 以上の抑制性入力があると、しきい値には届きません。脳の速い抑制の大部分は、GABA が塩化物イオンのチャネルを開くことで起こります。抑制性シナプスは細胞体の上かその近くにあることが多く、樹状突起全体から来る入力を打ち消します。John Eccles は脊髄の運動ニューロンでこの抑制性の電位を記録し、1963 年に Hodgkin、Huxley とともにノーベル賞を受賞しました。
入力 1 個あたり 4 mV というのは、数個の入力で足りるように選んだモデル上の値です。大脳皮質のニューロンでは、1 個のシナプスが細胞体の電位を動かす量は、たいてい 1 mV をかなり下回ります。実際の細胞が発火するには、時間の近い数十個の入力が必要です。
しきい値と全か無かの法則
電位依存性ナトリウムチャネルは、膜電位が約 −55 mV に達すると開きます。これがしきい値です。いくつかが開くとナトリウムが流れ込み、膜の負電位はさらに弱まって、より多くのチャネルが開きます。この循環が暴走して、電位はゼロを超えて約 +30 mV まで跳ね上がります。
それを元へ戻すのは 2 つの過程です。一つは、各ナトリウムチャネルにある別のゲートで、1 ミリ秒に満たない時間のうちに自分で閉じて、流入が止まります。同時に、反応のゆっくりな電位依存性カリウムチャネルが開いて、カリウムが外へ出ます。膜電位は元へ下がり、カリウムチャネルが閉じるのが遅いため、一瞬 −70 mV より下まで行き過ぎてから、静止電位に落ち着きます。OpenStax は、この一連の出来事全体を約 2 ms としています。
しきい値に届かなければ、何も起こりません。届けば、毎回同じ高さまで、すべてが起こります。スライダーを +15 から +30 mV の間で動かすと、グラフのスパイクは早く始まりますが、頂点の高さは変わりません。これが全か無かの法則です。刺激を強くしても、活動電位が大きくなるわけではありません。実際のニューロンでは、活動電位の頻度が増えます。このモデルでも、スライダーを上げると、発火の頻度が少し増えます。
イカの軸索と 1952 年の方程式
1936 年に、動物学者の J. Z. Young は、イカの外套膜を走る管を調べました。それまで血管と思われていた管が、太さ約 1 ミリメートルまでの 1 本の神経線維だと示したのです。この線維はイカが噴射で逃げる動作を司り、中へ導線を差し込めるほど太いものでした。1939 年に、Hodgkin と Huxley は Plymouth の研究所で実際に導線を差し込み、軸索の内側から電位を初めて記録しました。スパイクは、Julius Bernstein の膜説が予測したようにゼロで止まらず、ゼロを数十ミリボルト超えました。
戦後、2 人は軸索に沿って銀線を通した電位固定法を使い、軸索の全長を一つの膜片のようにふるまわせました。電圧ごとにナトリウム電流とカリウム電流がどのように入り切りするかを測り、1952 年に一組の方程式で表しました。m、h、n と呼ばれる 3 つのゲートが、電圧に依存する速度で開閉します。ナトリウムのコンダクタンスは 120 mS/cm² × m³h、カリウムは 36 mS/cm² × n⁴ で、0.3 mS/cm² の小さな漏れ電流が回路を完成させます。速度は 6.3 °C で測られており、論文は 10 °C ごとに 3 倍する補正をしています。
「イカの軸索」の場面では、これらの方程式がその場で実行されます。読み取り欄の灰色の線は、導線で記録した電位を 40 ms 分表示したものです。シャーレの中の軸索は、活動電位が伝わる様子に合わせて色が変わります。伝わる速さは、同じ方程式が予測する値です。
方程式のふるまい
6.3 °C では、モデルは −65 mV で静止し、ゲートは m = 0.053、h = 0.596、n = 0.318 です。1 ms のパルスで発火させるには 6.9 µA/cm² が必要です。それ未満では、電位は少し上がってから元へ戻ります。7 µA/cm² ではスパイクが遅れ、パルスの開始から約 5 ms 後に出て、頂点は +35 mV 付近です。20 µA/cm² では 1.3 ms 後に出て、頂点は +41 mV 付近で、電流をさらに倍にしても高さの増加は 1 mV 未満です。しきい値をはるかに超えると、高さはほとんど変わりません。しきい値ぎりぎりでは、方程式はわずかに小さいスパイクを与えます。これは、教科書の全か無かの法則がならしてしまう細かな違いです。スパイクの後、カリウムのゲートがまだ開いているため、膜電位は約 −76 mV まで下がり、カリウムの平衡電位 −77 mV に近づきます。
「第 2 パルスまで」は、2 つ目のパルスを加えます。20 µA/cm² のパルスを 2 回与えると、2 回目は、1 回目から 10.6 ms 未満では発火しません。電流を 40 µA/cm² に倍にすると、7.8 ms の間隔で十分です。これが相対不応期で、回復の途中では、より強い刺激なら早く膜を発火させられます。最初の数ミリ秒の間は、どんなに強いパルスでも発火できません。これが絶対不応期です。
「持続電流」は、パルスを 150 ms 続く段階状の電流に置き換えます。約 6.3 µA/cm² から、軸索は繰り返し発火します。10 µA/cm² では 69 Hz、20 µA/cm² では 87 Hz、50 µA/cm² では 118 Hz で発火します。神経細胞が刺激の強さを発火頻度に変える仕組みで、Edgar Adrian が 1926 年に感覚線維で聞き取った符号です。
温度は 3 つのゲートをまとめて速めます。18.5 °C ではゲートが 3.8 倍速く動き、スパイクは幅が狭く低くなって、頂点は +33 mV 付近になり、1 ms のパルスのしきい値は 8.9 µA/cm² に上がります。25 °C では頂点が約 +19 mV にとどまり、約 28 °C からは、20 µA/cm² のパルスでも発火しなくなります。スパイクが育つ前に、ナトリウムチャネルの不活性化とカリウムチャネルの活性化が、ナトリウムチャネルの活性化に追いつくためです。
伝わる速さ
1952 年の論文の第 5 部では、もっと野心的な計算をしています。測定した線維の半径 238 µm と軸索質の抵抗率 35.4 Ω cm を使い、軸索に沿って伝わる活動電位を解いたところ、18.5 °C で 18.8 m/s という速さが得られました。同じ軸索の実測値は 21.2 m/s でした。Huxley はこの計算を、手回し式の機械計算機で行いました。
同じ計算を別の方法でもやり直しています。6 cm の軸索を短い区間に分け、ケーブル全体を時間とともに進める方法です。区間を 0.5 mm にすると 18.7 m/s、0.25 mm にすると答えは 18.73 m/s に落ち着き、論文の値との差は半パーセント以内です。同じケーブルは 6.3 °C では 12.3 m/s で伝導します。この計算した速さを、展示は軸索の色づけに使っています。
2 種の毒素
フグの毒であるテトロドトキシン(TTX)は、電位依存性ナトリウムチャネルの外側の入口に結合して、チャネルを塞ぎます。Toshio Narahashi らは 1964 年に、ロブスターの巨大軸索で、TTX がナトリウム電流だけを消し、カリウム電流には影響しないことを示しました。モデルでは、ナトリウムチャネルの 71% を遮断しても 20 µA/cm² のパルスは発火し、それを超えると発火に失敗します。100% を遮断すると、パルスは膜電位を持ち上げるだけで、また下がり、軸索を伝わる波が消えます。
テトラエチルアンモニウム(TEA)は、カリウムチャネルを塞ぎます。モデルでは、半分を遮断すると、膜電位をしっかり引き下げるものがなくなるため、1 回のパルスが 3 回の短い連続発火を引き起こします。90% を遮断すると、静止電位が上昇して、ナトリウムチャネルが不活性化したままになり、何も発火しなくなります。2 種類の毒素は、生理学者が使う実験の道具として示しています。危険な物質であり、この展示は、医薬品や治療としての話はしません。
信号が一方向にしか進まない理由
軸索小丘でのスパイクは、軸索の内側に沿って正の電荷を押し出します。この電荷が次の膜の部分をしきい値まで持ち上げ、そこのナトリウムチャネルが開いて、その部分が順に発火します。後ろの部分は、ナトリウムチャネルがまだ不活性化したままなので、すぐには再び発火できません。これが絶対不応期で、活動電位が終末へ向かって進み、細胞体へは戻らない理由です。
髄鞘のない軸索では、すべての部分が順番にこれを行わなければなりません。その結果、連続した波になり、速度は遅くなります。操作欄の「髄鞘」を切ると、琥珀色の帯が軸索をゆっくり進む様子が見えます。
髄鞘とランビエ絞輪
脊椎動物の速い軸索の大半は、髄鞘(ミエリン)に包まれています。髄鞘は、グリア細胞の膜が何重にも巻き付いたものです。脳と脊髄の外の神経では、一つ一つの巻きはシュワン細胞が作ります。脳と脊髄の中では、オリゴデンドロサイトが作り、1 個の細胞が複数の軸索へ腕を伸ばします。髄鞘は軸索を絶縁するので、電流は膜から漏れずに、内側に沿って広がります。
髄鞘は連続していません。巻きと巻きの間には長さ約 1 マイクロメートルの隙間があり、これがランビエ絞輪で、電位依存性ナトリウムチャネルはここに集まっています。ある絞輪でスパイクが起こると、絶縁された区間を電流が速く流れて、次の絞輪をしきい値まで持ち上げ、そこで活動電位が作り直されます。活動電位が絞輪から絞輪へ跳んでいるように見えるため、「跳ぶ」を意味するラテン語にちなんで、跳躍伝導と呼ばれます。モデルでは絞輪が次々に光り、その間の区間はかすかに光るだけです。
その効果は大きなものです。Purves らの Neuroscience では、髄鞘のない軸索は約 0.5 から 10 m/s で伝導し、髄鞘のある軸索は 150 m/s に達することもあります。太さも関係します。太い軸索は内部の抵抗が小さいので、電荷の広がりがより遠くまで届きます。「軸索の直径」を変えると、隅に表示される速さも変わり、太い線維では速く、細い線維では遅くなります。
速く伝えるための 2 つの方法
「髄鞘の比較」の場面では、2 本の軸索が 1 メートルの距離を並んで進みます。どちらも最初は 10 µm です。髄鞘のあるほうは 17.5 ms で着き、髄鞘のないほうは 316 ms かかり、その差は 18 倍です。上の線維の光は絞輪から絞輪へ跳びます。描かれている髄鞘は 12 個だけですが、10 µm の線維なら 1 メートルに約 1,000 個あり、それぞれ長さ約 1 mm で、約 18 µs で渡られます。
動物は、速さの問題に 2 つの答えを見つけました。脊椎動物は、速い軸索を髄鞘で包みます。イカや多くの無脊椎動物は、代わりに軸索を太くします。太い芯は抵抗が小さく、電流の広がりがより遠くまで届くからです。「無髄軸索の太さ」を、Hodgkin と Huxley の軸索の太さである 476 µm にすると、髄鞘のない線維は、モデルの平方根則で 21.8 m/s に達し、二人が測った 21.2 m/s に近い値になります。隣の髄鞘のある線維の 50 倍の太さでも、速さは約 3 分の 1 にしかなりません。髄鞘のある線維なら、21 m/s に達するのに約 4 µm で足り、断面積は 1 万分の 1 より小さくなります。これが、ヒトの神経が何千本もの速い線維を通せる理由の一つです。
記録された中で最も速い線維は、独自の髄鞘を持つ無脊椎動物のものです。Ke Xu と Susumu Terakawa は、Penaeus 属のエビの巨大線維について総説を書き、200 m/s を超える速さで伝導することを紹介しています。この髄鞘は、軸索との間に広い空間を残し、通常の絞輪の代わりに小さな窓を持っています。
「髄鞘の損傷」では、線維の中ほどの一区間から髄鞘を取り除きます。モデルはその区間を髄鞘のない軸索として扱うので、そこで信号が遅れ、到着が遅くなります。実際の神経では、むき出しになった膜から電流が漏れ出します。この膜にはナトリウムチャネルが少ないため、信号が完全に途絶えることもあります。免疫系が髄鞘を攻撃する病気、たとえば脳と脊髄の多発性硬化症や、末梢神経のギラン・バレー症候群は、このようにして伝導を遅らせたり止めたりします。この場面は考え方を示すだけです。どちらの病気についても、米国国立衛生研究所(NIH)の一部である NINDS が、患者向けの情報を提供しています。
数値を確かめる
静止電位は、カリウムの平衡電位に近い値です。この値は、2 つの濃度から、ネルンストの式で求められます。
E = (RT / zF) × ln(外 / 内)
体温の 37 °C では RT/F が 26.73 mV で、濃度が 10 倍違うごとに 61.54 mV になります。カリウムは 61.54 × log₁₀(4/155) で −97.7 mV、ナトリウムは 61.54 × log₁₀(145/12) で +66.6 mV です。塩化物イオンは負の電荷を持つので、同じ数字から −90.9 mV になります。
静止電位の −70 mV がこの間にあるのは、静止時の膜が少量のナトリウムも通すからです。ゴールドマンの式は、各イオンを通りやすさで重みづけします。ナトリウムの通りやすさがカリウムの 20 分の 1 だとすると(塩化物イオンは除きます)、式は −70.2 mV を与えます。比を 100 分の 1 にすると −89.5 mV まで下がり、10 分の 1 に上げると −57.0 mV まで上がります。ピークの +30 mV は、ナトリウムの +66.6 mV に遠く及びません。そこへ届く前に、ナトリウムチャネルが不活性化し、カリウムチャネルが開くからです。
伝導速度には、2 つの規則を使います。髄鞘のある線維は、直径 1 マイクロメートルあたり約 5.7 m/s で伝導します。これは Washington University Neuromuscular Disease Center にある経験則です。髄鞘のない軸索は、細い痛覚線維に合わせて、直径 1 µm で 1 m/s とし、直径の平方根に比例して増やします。10 µm では、髄鞘ありが 57 m/s、なしが 3.16 m/s で、18 倍の差になります。軸索 1 メートルを進むのに、前者は 17.5 ms、後者は 316 ms かかります。20 µm の髄鞘のある線維は 114 m/s に達し、スライダーの全範囲で、値は教科書の範囲に収まっています。
同じ資料は、節間の長さを軸索の直径の約 100 倍としており、10 µm の線維なら約 1 mm です。57 m/s では絞輪から絞輪まで 17.5 µs で、資料にある 25 µs と同じ桁です。モデルのしきい値は、入力が 15 mV を加えた時点で達します。+20 mV は 0.42 ms で、+30 mV は 0.23 ms で越えます。これらの数値は、すべて数値計算でも確かめています。
シナプスで電気から化学へ
軸索の端では、信号が次の細胞へ隙間を渡らなければなりません。活動電位が終末ボタン(終末の枝の先端にある膨らみ)に届くと、電位依存性カルシウムチャネルが開いて、カルシウムが流れ込みます。カルシウムによって、膜に係留されているシナプス小胞が膜と融合し、神経伝達物質がシナプス間隙へ放出されます。伝達物質は拡散して間隙を渡り、次のニューロンの受容体タンパク質に結合します。こうした受容体の多くは、それ自体がイオンチャネルで、結合すると開いて正イオンが流れ込み、その細胞をそれ自身のしきい値へ近づけます。その後、伝達物質は分解されるか、拡散して離れるか、ポンプで回収されて、シナプスは次に備えます。
OpenStax によれば、活動電位が到着してから、向こう側のチャネルが開くまで、約 1 ミリ秒です。モデルの拡大図では、カルシウムは緑、伝達物質はピンクで表され、受容体は伝達物質が結合している間、光ります。
5 種類の神経伝達物質
「シナプス」の場面では、1 つのシナプスを、小胞、間隙、受容体が画面いっぱいに見えるまで拡大します。「伝達物質」で、よく知られた 5 種類の神経伝達物質を切り替えられ、それぞれで受容体、応答、間隙からの除去のしかたが変わります。
- グルタミン酸は、脳の速い興奮性の主な伝達物質です。受容体の多くはイオンチャネル(AMPA 受容体と NMDA 受容体)で、1 ミリ秒以内に正イオンを通し、速い興奮性シナプス後電位(EPSP)を生みます。輸送体が間隙から回収し、その多くはアストロサイトにあります。
- GABA は、抑制性の主な伝達物質です。GABA-A 受容体は塩化物イオンのチャネルで、応答は抑制性シナプス後電位(IPSP)となり、細胞をしきい値から遠ざけます。GABA はグルタミン酸から作られ、専用の輸送体が回収します。
- アセチルコリンは、運動ニューロンから骨格筋へ、ニコチン性受容体(イオンチャネル)を通して信号を運びます。そのままの形では回収されません。間隙にあるアセチルコリンエステラーゼが分解し、コリンは再利用されます。1921 年の Otto Loewi による 2 つのカエルの心臓を使った実験が、神経が化学物質を放出することを最初に示し、その物質は後にアセチルコリンだと分かりました。
- ドーパミンは、G タンパク質共役型の受容体(D1 から D5)だけを通して作用します。応答は遅れて始まり、小さく、長く続き、標的の細胞がほかの入力にどう応じるかを変えるのが主な作用です。中脳のニューロンが線条体と大脳皮質へ送り出し、ドーパミン輸送体が回収します。
- セロトニンは、縫線核のニューロンがトリプトファンから作り、その軸索は脳の大部分に届きます。受容体のほとんどは G タンパク質共役型で、例外はイオンチャネルである 5-HT3 受容体です。セロトニン輸送体が回収します。
「再取り込み」を切ると、輸送体の働きが止まります。伝達物質の分子は間隙により長くとどまり、応答が延びます。一部の薬は、輸送体を遅くしてこの段階に作用します。場面が示すのは、その原理だけです。
間隙の幅は約 20 nm で、拡散で渡るのに数マイクロ秒しかかかりません。約 1 ms あるシナプス遅延の大半は、カルシウムの流入と小胞の融合に使われます。Bernard Katz と José del Castillo は 1954 年に、カエルの神経筋接合部で、伝達物質が一定の大きさの小包になって放出されることを示し、その小包は後に単一の小胞に対応づけられました。Katz は 1970 年のノーベル賞を、伝達物質としてノルアドレナリンを特定した Ulf von Euler と、放出後にそれが神経終末へ回収されることを示した Julius Axelrod とともに受賞しました。
膝蓋腱反射の時間を測る
医師が膝のお皿の下を叩くと、太ももの筋肉が一瞬引き伸ばされます。筋肉の中にある伸張受容器の筋紡錘が発火し、信号は太い感覚線維(Ia 線維)を通り、後根から脊髄へ入ります。そこで各線維は、同じ筋肉の運動ニューロンに直接シナプスをつくり、運動ニューロンの軸索が、命令をそのまま筋肉へ送り返します。筋肉が収縮して脚が跳ね上がります。経路の途中にあるシナプスは 1 個だけで、これが反射がとても速い理由です。同時に、感覚線維の枝が抑制性の介在ニューロンを興奮させ、太ももの裏側のハムストリングが緩みます。この仕組みの相反抑制を解き明かし、「シナプス」という言葉を作ったのが Charles Sherrington で、1932 年に Adrian とともにノーベル賞を受賞しました。
「膝の反射」の場面は、この道のりの時間を測ります。モデルは、筋肉から脊髄までの片道を、身長に対する割合とします。膝は身長の 0.29 で、その運動ニューロンは脊髄の L3 と L4 の分節にあります。ふくらはぎは 0.52 で、S1 が受け持ちます。信号は、行きは 65 m/s、帰りは 55 m/s で進み、これらは太い有髄線維の範囲に入る値です。さらに、筋紡錘、中枢のシナプス、神経筋接合部で、それぞれ 1 ms の固定の遅れを加えます。身長 175 cm の人では、片道が 0.51 m、行きが 7.8 ms、帰りが 9.2 ms、合計 20.0 ms です。
実測値もこれと合います。University of Nottingham の Helen Vickery と Paul Smith は、28 人の若い成人の太ももに表面電極を付けて膝蓋腱反射を記録し、女性で 17 ms、男性で 21 ms を得ました。アムステルダムの C. J. Frijns らは、健康な 102 人の膝と足首の反射を測り、潜時が身長とともに長くなること、相関が膝で 0.70、足首で 0.72 であることを示しました。同じ人の潜時は、叩くたびにほとんど変わりませんでした。
「たたく部位」を足首に切り替えます。ふくらはぎからの経路はほぼ倍の長さになり、モデルは身長 175 cm で 33.5 ms を出します。Washington University Neuromuscular Disease Center は、ヒラメ筋の H 反射でおよそ 30 ms としています。H 反射は、アキレス腱反射を電気で起こすもので、信号は筋紡錘ではなく神経から始まります。「身長」を 140 cm から 200 cm まで変えると、膝蓋腱反射は 16.6 ms から 22.5 ms になります。
この反射に、脳は関わっていません。だから膝蓋腱反射は、意識して起こせるどんな反応よりも速いのです。自分で選んで反応するには数百ミリ秒かかり、反応時間の展示で自分の値を測れます。
ニューロンのさまざまな形
Santiago Ramón y Cajal は、Camillo Golgi の銀染色で染めたニューロンを何十年も描き続け、ニューロンが互いに独立した、見分けのつく形の細胞であることを示しました。「細胞の種類」の場面は、そのうち 8 種類を同じ高さに揃えて並べ、枝分かれを比べられるようにしたものです。読み取り欄には、それぞれの実際の大きさが表示されます。
- 錐体細胞は、大脳皮質の主な興奮性ニューロンです。長い頂上樹状突起が表面に向かって伸びて先端が房になり、基底樹状突起が根元のまわりに広がります。グルタミン酸を放出します。
- 小脳のプルキンエ細胞は、平らな扇形に樹状突起を広げます。平行線維が扇を直角に横切り、Richard Napper と Robert Harvey は、ラットの 1 個のプルキンエ細胞に約 175,000 の平行線維シナプスを数えました。この細胞は抑制性で、軸索を小脳の深部核へ送ります。
- 脊髄の運動ニューロンは、大きな細胞体、長い樹状突起、1 メートル先の筋肉にも届く太い有髄軸索を持ちます。
- 網膜の双極細胞は、視細胞の杆体や錐体へ向かう突起と、神経節細胞へ向かう突起を 1 本ずつ持ちます。多くのタイプが、スパイクではなく段階的電位を伝え、網膜には 10 を超えるタイプがあります。
- 小脳の顆粒細胞は、最も小さいニューロンの一つで、4 本の短い爪状の樹状突起と、上へ伸びて 2 本の平行線維に分かれる軸索を持ちます。Frederico Azevedo らは、ヒトの脳に約 860 億のニューロンがあると数え、その約 5 分の 4 が小脳にあり、大半が顆粒細胞でした。
- 後根神経節の感覚ニューロンは偽単極です。細胞体から 1 本の幹が出て二股に分かれ、一方の枝が皮膚や筋肉へ、もう一方が脊髄へ向かいます。信号は細胞体を通らずに分岐点を越えられます。
- シャンデリア細胞は、大脳皮質の抑制性介在ニューロンです。終末ボタンがろうそくのように短い縦の列をなして並び、Péter Somogyi は 1977 年に、それぞれの列が錐体細胞の軸索初節、つまりスパイクが始まる場所で終わることを示しました。
- 中型有棘ニューロンは、線条体の大部分を占めます。抑制性で、表面が棘で密に覆われ、大脳皮質からのグルタミン酸と中脳からのドーパミンの両方を受け取ります。
場面の形は簡略化した絵です。NeuroMorpho.Org は、George Mason University の Giorgio Ascoli の研究グループが始めたアーカイブで、多くの研究室が顕微鏡画像からたどった実際のニューロンの再構築データを集めています。形を詳しく比べたいときは、そこが参考になります。
このモデルが省いているもの
図の中に、縮尺の正しいものはありません。軸索は実際のものよりずっと短くて太く、シナプスは別の拡大図に大きく描いています。時間は引き延ばしてあり、1 ミリ秒が画面の上では半秒になります。画面のスパイクが進む相対的な速さも、実際とは違います。髄鞘のある軸索は、髄鞘のない同じ軸索より 18 倍速いのですが、モデルは、30 秒近くも待たずに済むように、この差を縮めています。ただし、読み取り欄の数値は、いつも実際の値です。
神経細胞の場面での活動電位の形は、教科書の値の −70、−55、+30 mV を通る描いた曲線で、チャネルの動力学のシミュレーションではありません。実際の動力学が動いているのはイカの実験室の場面で、その数値は、イカの軸索がその温度で示す値であり、静止は −65 mV、ピークは +40 mV 付近です。哺乳類のニューロンには、チャネルの種類がもっと多く、スパイクは短くなります。
ほかの場面も簡略化しています。イオンチャネルは、知られている構造に似せていますが、滑らかな塊として描いてあり、ポンプは実物よりずっとゆっくり回ります。競走は、速度の 2 つの経験則を使い、12 個の節間を描いています。シナプスの場面の応答は、モデル上の形です。反射のモデルは、経路の長さを身長の固定の割合とし、筋肉が電気信号を受けてから動き出すまでの時間を含めていません。加算の場面では、各入力が実際よりずっと強くなっています。ニューロンの種類は、すべて同じ大きさで描いています。
この展示は、神経細胞が一般にどのように働くかを説明するものです。医療上の助言ではありません。
誰が解明したか
Luigi Galvani は、1780 年代に金属の弓でカエルの脚をけいれんさせ、動物電気があると主張しました。1850 年に Hermann von Helmholtz は、カエルの神経の伝導を約 27 m/s と測定しました。導線の中の電気に比べればずっと遅く、神経の信号が導線の電気とは違うものだと示すのに十分な遅さです。Julius Bernstein は 1902 年に、静止状態の膜はカリウムを通すと提案しました。
Cajal と Golgi は、神経系の構造の研究で 1906 年のノーベル賞を共同で受賞しました。1932 年の賞は Sherrington と Adrian が受賞し、Sherrington は反射とシナプスで、Adrian は全か無かのスパイクと頻度の符号化で評価されました。Henry Dale と Otto Loewi は、化学伝達の研究で 1936 年の賞を共同で受賞しました。Joseph Erlanger と Herbert Gasser は、太い線維ほど速く伝導することを示して、1944 年に受賞しました。有髄線維では興奮が絞輪から絞輪へ跳ぶことを、1939 年に Ichiji Tasaki が、1949 年に Andrew Huxley と Robert Stämpfli が示しました。
Alan Hodgkin と Andrew Huxley は、イカの巨大軸索のナトリウム電流とカリウム電流を測り、1952 年に方程式で表しました。二人は、中枢神経系のシナプスを研究した John Eccles とともに、1963 年のノーベル生理学・医学賞を共同で受賞しました。授賞の理由は、神経細胞の膜における興奮と抑制のイオン機構でした。
その後の研究で、方程式の背後にある分子が見つかりました。Erwin Neher と Bert Sakmann は、1976 年に細いガラス管を筋細胞に密着させ、単一のチャネルを流れる電流を記録して、1991 年の賞を共同で受賞しました。チャネルの遺伝子、続いて構造が、1980 年代から 1990 年代に明らかになりました。Arvid Carlsson、Paul Greengard、Eric Kandel は、Carlsson のドーパミンの研究を含む、神経細胞間の信号伝達の研究で、2000 年の賞を共同で受賞しました。
よくある質問
活動電位とは何ですか。
ニューロンの膜にかかる電圧が、約 −70 mV から約 +30 mV へ一時的に逆転して元に戻る変化で、約 2 ms 続きます。軸索小丘で始まり、軸索に沿って終末まで伝わります。
静止時に神経細胞の内側が負なのはなぜですか。
静止時の膜は、ナトリウムよりカリウムをはるかに通しやすくなっています。カリウムは濃度差に従って外へ漏れ出し、内側が負に残ります。ナトリウム-カリウムポンプが、濃度差がなくならないように保っています。
スパイクの大きさがいつも同じなら、強い刺激はどう伝えるのですか。
発火の回数を増やして伝えます。強い入力ほど早くしきい値に届き、次のスパイクを早く始めます。そのため、強さは活動電位の頻度で表され、一つ一つの高さは変わりません。
神経の信号はどれくらいの速さで伝わりますか。
髄鞘と太さで変わります。Purves らによると、髄鞘のない軸索は約 0.5 から 10 m/s、髄鞘のある軸索は最大約 150 m/s で伝導します。最も細い痛覚線維は約 1 m/s です。
髄鞘は何をしますか。
軸索を絶縁し、活動電位をランビエ絞輪だけで作り直せばよいようにします。これで伝導がはるかに速くなり、チャネルとポンプが絞輪に集中するためエネルギーも節約できます。多発性硬化症のような脱髄疾患では、電流が漏れて伝導が遅くなります。
信号が逆向きに進まないのはなぜですか。
スパイクの後ろでは、ナトリウムチャネルがしばらく不活性化していて、再び開けません。この不応期のために、活動電位は向きを変えられず、細胞体から終末へ向かって進みます。
シナプスを渡るのにどれくらいかかりますか。
化学シナプスでは約 1 ミリ秒です。この間にカルシウムの流入、小胞の融合、間隙の拡散、受容体の開口が起こります。細胞どうしがチャネルでつながった電気シナプスでは、ほとんど一瞬です。
静止電位はいつも −70 mV ですか。
いいえ。ニューロンの種類や動物の種によって変わり、教科書は −70 mV を代表的な値として使っています。約 −55 mV のしきい値や、+30 から +40 mV のピークも、代表的な値です。
Hodgkin と Huxley は実際に何を発見したのですか。
活動電位が 2 つの別々の電流で運ばれることです。まずナトリウムが流れ込み、次にカリウムが流れ出ます。2 人は、それぞれが電圧と時間に応じてどのように入り切りするかを測り、イカの軸索でのスパイクの形、しきい値、不応期、伝導の速さを再現する方程式を書きました。
電位固定とは何ですか。
必要な電流を注入して、膜電位を選んだ値に保つ増幅器です。注入した電流はチャネルを流れる電流と等しいので、それを測れます。「イオンチャネル」の場面で、電位固定のループを実行します。
イカの軸索がこんなに太いのはなぜですか。
巨大軸索はイカが噴射で逃げる動作を司っていて、太いほど芯の抵抗が小さく、伝導が速くなるからです。直径 0.5 mm の軸索は、髄鞘がなくても約 21 m/s に達します。脊椎動物なら、直径約 4 µm の有髄線維で得られる速さです。
膝蓋腱反射がとても速いのはなぜですか。
感覚線維と運動ニューロンの間にあるシナプスが 1 個だけで、どちらの線維も太い有髄線維だからです。脳は関わりません。全体で、若い成人では約 17 から 21 ms かかり、背が高い人ほど長くなります。
興奮性シナプスと抑制性シナプスはどう違いますか。
興奮性シナプスは、たいてい正イオンを流入させて、次の細胞をしきい値へ近づけます。抑制性シナプスは、たいてい塩化物イオンを流入させて、しきい値から遠ざけます。発火開始部は、すべての入力の合計がしきい値に届いたときだけ発火します。
TTX のような毒素は神経に何をしますか。
テトロドトキシンは電位依存性ナトリウムチャネルを塞ぐので、活動電位を作ることも伝えることもできなくなります。この展示は、チャネルの働きを説明するためにモデルで効果を見せるものです。中毒や治療についての情報ではありません。
用語
- 膜電位:細胞膜にかかる電圧で、内側を外側と比べて測ります。
- 静止電位:信号を出していないニューロンの安定した膜電位で、約 −70 mV です。
- しきい値:約 −55 mV の電位で、電位依存性ナトリウムチャネルが開き、活動電位が始まります。
- 脱分極:内側の負が弱まる変化です。
- 再分極:スパイクの後に静止電位へ戻っていく変化です。
- 過分極:活動電位の後などに、静止電位より下がることです。
- 不応期:スパイクの後、膜が再び発火できない、または、より強い刺激でしか発火できない時間です。
- 軸索小丘と初節:軸索が細胞体から出る部分にある、発火開始部です。
- 髄鞘(ミエリン):軸索を取り巻く、グリア細胞の膜でできた絶縁層です。
- ランビエ絞輪:髄鞘の巻きと巻きの間にある短い隙間で、活動電位が作り直されます。
- 跳躍伝導:有髄軸索で、絞輪から絞輪へ跳ぶように進む伝導です。
- シナプス小胞:神経伝達物質で満たされた、膜でできた小さな袋です。
- ネルンストの式:1 種類のイオンが膜をはさんで釣り合う電圧を表す式です。
- 電位固定:膜を一定の電圧に保って、チャネルを流れる電流を測る方法です。
- ゲート変数(m、h、n):Hodgkin-Huxley モデルでの、ナトリウムチャネルの活性化ゲート、不活性化ゲート、カリウムチャネルのゲートが開いている割合です。
- 空間的加重:別々の場所の入力が、同時に届くことで足し合わさることです。
- 時間的加重:同じ場所の入力が、時間的に近く届くことで足し合わさることです。
- EPSP と IPSP:興奮性・抑制性シナプス後電位で、細胞をしきい値に近づける、または遠ざける小さな変化です。
- イオンチャネル型受容体:受容体そのものがイオンチャネルになっているものです。
- 代謝型受容体:細胞内の G タンパク質を介して働く受容体です。
- 再取り込み:輸送体タンパク質が、神経伝達物質を間隙から取り除くことです。
- 筋紡錘:筋肉の中にある伸張受容器です。
- 反射弓:受容器から脊髄を経て筋肉に至る、反射を起こす経路です。
- 相反抑制:反射のとき、抑制性の介在ニューロンを通して、拮抗する筋肉を緩めることです。
参考資料
- OpenStax, Anatomy and Physiology 2e, 12.4 The Action Potential (静止電位 −70 mV、閾値 −55 mV、ピーク +30 mV、約 2 ms、ナトリウムの不活性化ゲート、不応期、跳躍伝導). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-4-the-action-potential (確認日 2026-10-16)
- OpenStax, Biology 2e, 35.2 How Neurons Communicate (表 35.1 のイオン濃度、−70 mV はニューロンと種によって異なる、ピークは約 +40 mV、絞輪は約 1 µm、ポンプは 3 Na⁺ を外へ、2 K⁺ を内へ運ぶ、シナプス遅延は約 1 ms、多発性硬化症). https://openstax.org/books/biology-2e/pages/35-2-how-neurons-communicate (確認日 2026-10-16)
- OpenStax, Anatomy and Physiology 2e, 12.2 Nervous Tissue (軸索小丘、初節と発火領域、シナプス終末、シュワン細胞とオリゴデンドロサイト). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-2-nervous-tissue (確認日 2026-10-16)
- OpenStax, Anatomy and Physiology 2e, 12.5 Communication Between Neurons (カルシウムと小胞融合、シナプス間隙、軸索小丘での加算). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-5-communication-between-neurons (確認日 2026-10-16)
- Purves D et al., Neuroscience, 2nd edition, Increased Conduction Velocity as a Result of Myelination, NCBI Bookshelf (無髄は 0.5 から 10 m/s、有髄は最大 150 m/s、跳躍伝導). https://www.ncbi.nlm.nih.gov/books/NBK10921/ (確認日 2026-10-16)
- Chudler EH, Neuroscience for Kids, Conduction Velocity, University of Washington (線維の分類、C 線維は時速約 2.2 マイル). https://faculty.washington.edu/chudler/cv.html (確認日 2026-10-16)
- Washington University Neuromuscular Disease Center, Peripheral axons: characteristics (速度は約 5.7 × 直径、g 比は 0.6 から 0.7、絞輪間の長さは約 100 × 直径、絞輪間は約 25 µs). https://neuromuscular.wustl.edu/nother/axon.htm (確認日 2026-10-16)
- Hodgkin AL, Huxley AF. A quantitative description of membrane current and its application to conduction and excitation in nerve. Journal of Physiology 117, 500 (1952). https://pmc.ncbi.nlm.nih.gov/articles/PMC1392413/ (確認日 2026-10-16)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1963, summary (Eccles、Hodgkin、Huxley). https://www.nobelprize.org/prizes/medicine/1963/summary/ (確認日 2026-10-16)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1936, summary (Dale、Loewi、化学伝達). https://www.nobelprize.org/prizes/medicine/1936/summary/ (確認日 2026-10-16)
- Hodgkin AL, Huxley AF. Action potentials recorded from inside a nerve fibre. Nature 144, 710 (1939). doi:10.1038/144710a0 (確認日 2026-10-18)
- Young JZ. Structure of nerve fibres and synapses in some invertebrates. Cold Spring Harbor Symposia on Quantitative Biology 4, 1 (1936). doi:10.1101/SQB.1936.004.01.001 (確認日 2026-10-18)
- Narahashi T, Moore JW, Scott WR. Tetrodotoxin blockage of sodium conductance increase in lobster giant axons. Journal of General Physiology 47, 965 (1964). doi:10.1085/jgp.47.5.965 (確認日 2026-10-18)
- Noda M et al. Primary structure of Electrophorus electricus sodium channel deduced from cDNA sequence. Nature 312, 121 (1984). doi:10.1038/312121a0 (確認日 2026-10-18)
- Doyle DA et al. The structure of the potassium channel: molecular basis of K⁺ conduction and selectivity. Science 280, 69 (1998). doi:10.1126/science.280.5360.69 (確認日 2026-10-18)
- Skou JC. The influence of some cations on an adenosine triphosphatase from peripheral nerves. Biochimica et Biophysica Acta 23, 394 (1957). doi:10.1016/0006-3002(57)90343-8 (確認日 2026-10-18)
- Neher E, Sakmann B. Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature 260, 799 (1976). doi:10.1038/260799a0 (確認日 2026-10-18)
- del Castillo J, Katz B. Quantal components of the end-plate potential. Journal of Physiology 124, 560 (1954). doi:10.1113/jphysiol.1954.sp005129 (確認日 2026-10-18)
- Adrian ED, Zotterman Y. The impulses produced by sensory nerve-endings, part 2. Journal of Physiology 61, 151 (1926). doi:10.1113/jphysiol.1926.sp002281 (確認日 2026-10-18)
- Tasaki I. The electro-saltatory transmission of the nerve impulse and the effect of narcosis upon the nerve fiber. American Journal of Physiology 127, 211 (1939). doi:10.1152/ajplegacy.1939.127.2.211 (確認日 2026-10-18)
- Huxley AF, Stämpfli R. Evidence for saltatory conduction in peripheral myelinated nerve fibres. Journal of Physiology 108, 315 (1949). doi:10.1113/jphysiol.1949.sp004335 (確認日 2026-10-18)
- Hursh JB. Conduction velocity and diameter of nerve fibers. American Journal of Physiology 127, 131 (1939). doi:10.1152/ajplegacy.1939.127.1.131 (確認日 2026-10-18)
- Xu K, Terakawa S. Fenestration nodes and the wide submyelinic space form the basis for the unusually fast impulse conduction of shrimp myelinated axons. Journal of Experimental Biology 202, 1979 (1999). doi:10.1242/jeb.202.15.1979 (確認日 2026-10-18)
- Vickery HSF, Smith PA. Surface electromyography reveals males have a slower patellar reflex than females. Journal of Electromyography and Kinesiology 22, 990 (2012). doi:10.1016/j.jelekin.2012.06.001 (確認日 2026-10-18)
- Frijns CJM, Laman DM, van Duijn MAJ, van Duijn H. Normal values of patellar and ankle tendon reflex latencies. Clinical Neurology and Neurosurgery 99, 31 (1997). doi:10.1016/s0303-8467(96)00593-8 (確認日 2026-10-18)
- Washington University Neuromuscular Disease Center, Tendon reflexes (H 反射の潜時は約 30 ms、身長とともに増加). https://neuromuscular.wustl.edu/mother/reflex.html (確認日 2026-10-18)
- Napper RMA, Harvey RJ. Number of parallel fiber synapses on an individual Purkinje cell in the cerebellum of the rat. Journal of Comparative Neurology 274, 168 (1988). doi:10.1002/cne.902740204 (確認日 2026-10-18)
- Azevedo FAC et al. Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513, 532 (2009). doi:10.1002/cne.21974 (確認日 2026-10-18)
- Spruston N. Pyramidal neurons: dendritic structure and synaptic integration. Nature Reviews Neuroscience 9, 206 (2008). doi:10.1038/nrn2286 (確認日 2026-10-18)
- Euler T et al. Retinal bipolar cells: elementary building blocks of vision. Nature Reviews Neuroscience 15, 507 (2014). doi:10.1038/nrn3783 (確認日 2026-10-18)
- Somogyi P. A specific axo-axonal interneuron in the visual cortex of the rat. Brain Research 136, 345 (1977). doi:10.1016/0006-8993(77)90808-3 (確認日 2026-10-18)
- Gerfen CR, Surmeier DJ. Modulation of striatal projection systems by dopamine. Annual Review of Neuroscience 34, 441 (2011). doi:10.1146/annurev-neuro-061010-113641 (確認日 2026-10-18)
- Ascoli GA, Donohue DE, Halavi M. NeuroMorpho.Org: a central resource for neuronal morphologies. Journal of Neuroscience 27, 9247 (2007). doi:10.1523/JNEUROSCI.2055-07.2007 (確認日 2026-10-18)
- Korn H, Faber DS. The Mauthner cell half a century later. Neuron 47, 13 (2005). doi:10.1016/j.neuron.2005.05.019 (確認日 2026-10-18)
- Piccolino M. Animal electricity and the birth of electrophysiology: the legacy of Luigi Galvani. Brain Research Bulletin 46, 381 (1998). doi:10.1016/S0361-9230(98)00026-4 (確認日 2026-10-18)
- Schmidgen H. Of frogs and men: the origins of psychophysiological time experiments, 1850 to 1865. Endeavour 26, 142 (2002). doi:10.1016/S0160-9327(02)01466-7 (確認日 2026-10-18)
- Seyfarth EA. Julius Bernstein (1839 to 1917): pioneer neurobiologist and biophysicist. Biological Cybernetics 94, 2 (2006). doi:10.1007/s00422-005-0031-y (確認日 2026-10-18)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1906, 1932, 1944, 1970, 1991 and 2000, and in Chemistry 1997 and 2003, summaries. https://www.nobelprize.org/prizes/medicine/1991/summary/ (確認日 2026-10-18)
- National Institute of Neurological Disorders and Stroke (NINDS), Multiple sclerosis; Guillain-Barré syndrome; Myasthenia gravis; Parkinson's disease; Amyotrophic lateral sclerosis. https://www.ninds.nih.gov/health-information/disorders/multiple-sclerosis (確認日 2026-10-18)
解説とシミュレーションは CC BY-NC-SA 4.0(特記のあるものを除く)。
ほかの展示
心臓の拍動を動かして見る:心拍数シミュレーター
心臓は一拍ごとに約 70 mL の血液を送り出し、安静時の速さなら一日に約 108,000 回これを繰り返します。

CRISPR-Cas9ゲノム編集を動かして見るシミュレーター
ガイド RNA が読むのは DNA のわずか 20 文字。それだけで、ヒトゲノムの 30 億塩基対の中からたいてい 1 か所を選び出せます。

ATP合成酵素を動かしてしくみを見る
ミトコンドリアの ATP 合成酵素は毎秒約100回転し、1回転ごとに ATP を3分子放出します。
細胞の構造:動物細胞と植物細胞の中を歩く拡大模型
百万倍に拡大すると、ミトコンドリアはソファほどの大きさになり、大腸菌は丸ごと 2 m、すぐ横で小胞を引いていくキネシンは秒速 0.8 メートルで歩きます。
心肺蘇生(CPR)のやり方:AED、窒息、消火器
毎分 100〜120 回、深さ約 5 cm で押す。居合わせた人がそうした場合、2024 年の韓国の生存率は 2.36 倍でした。
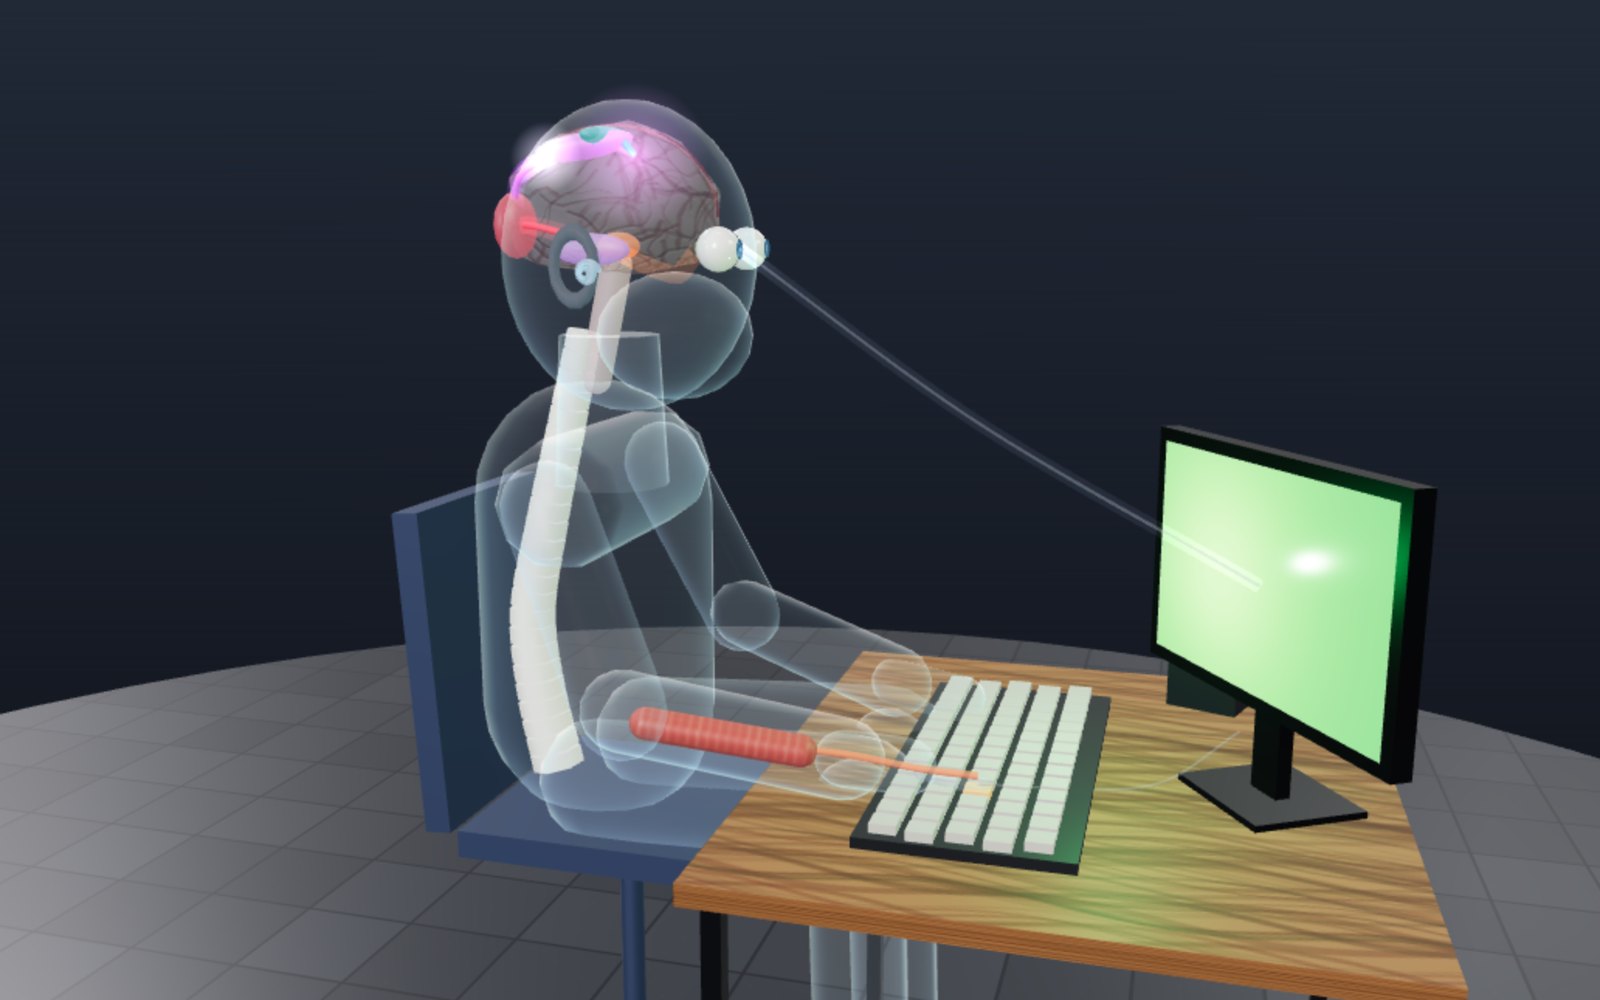
反応速度を測るミリ秒単位の反応時間テスト
画面の光はほぼ瞬時に目へ届きますが、指は約5分の1秒後に動きます。その大半は頭の中で過ぎます。