ABB. 66So funktioniert's
Erregungsleitung am Axon: Nervensignale selbst auslösen
Eine Nervenzelle liegt bei etwa −70 mV. Hebt ein Reiz sie auf etwa −55 mV, erzeugt sie einen stets gleich großen Impuls.
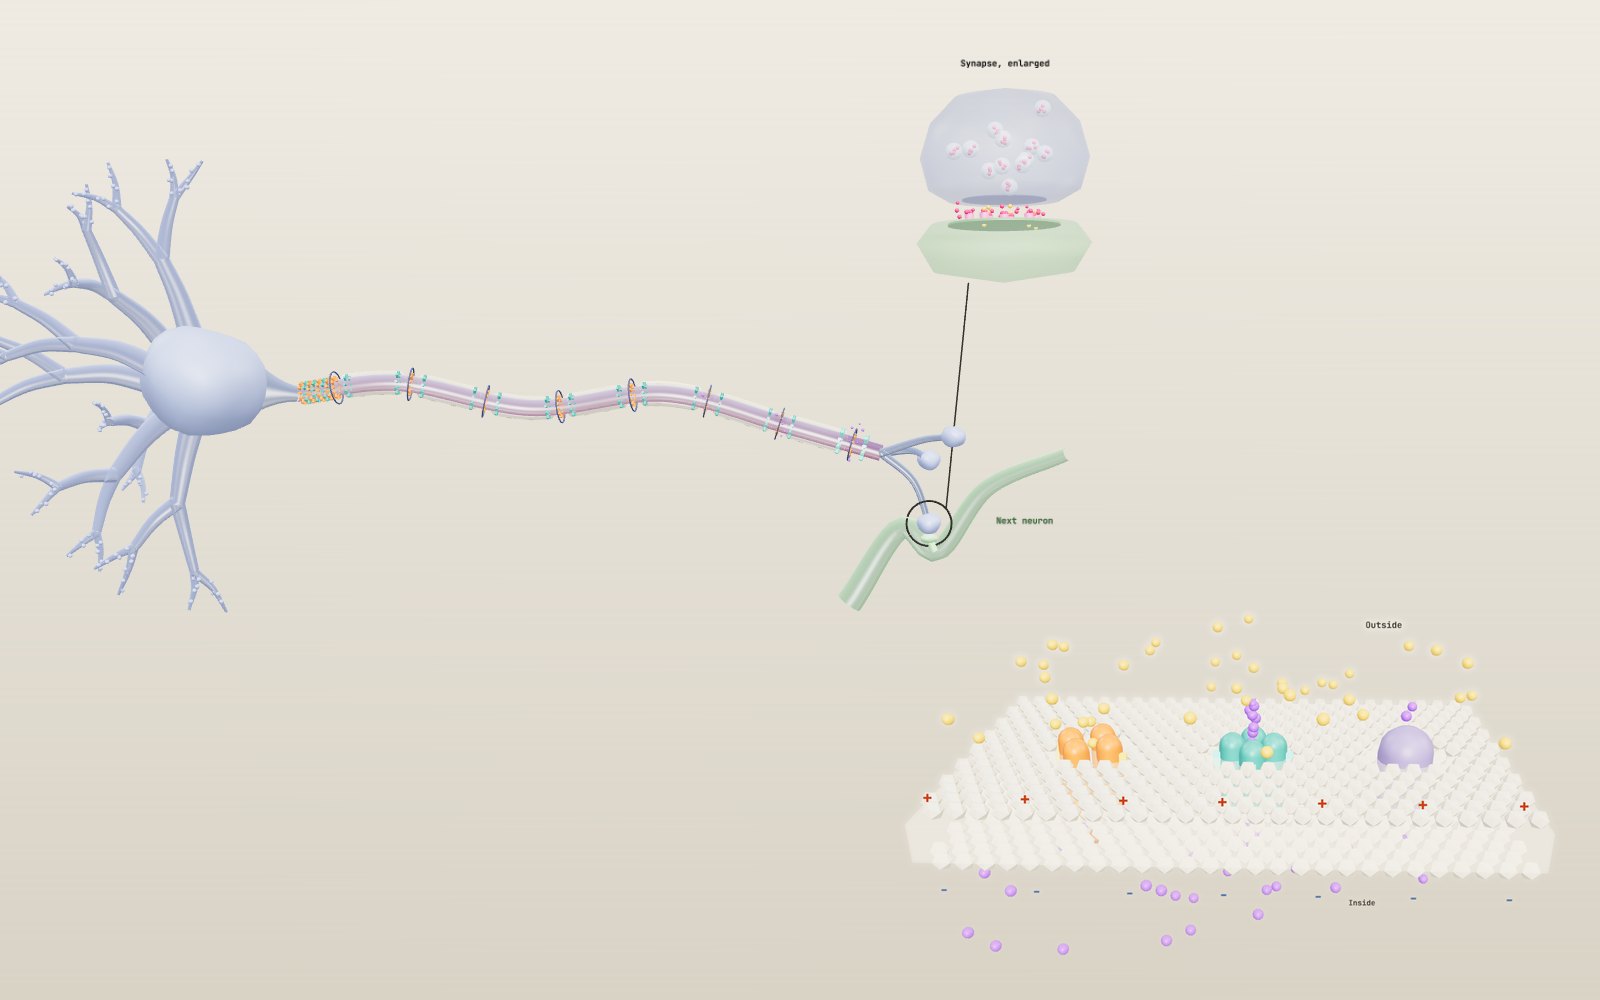
Dieses Gerät kann das 3D-Modell nicht anzeigen. Die Schritte des Rundgangs unten lassen sich als Text lesen.
1 / 28 Ein Neuron von Ende zu EndeSignale kommen links über Dendriten und verlassen rechts die Axonendigungen. Das Axon ist verkürzt und stark verdickt. Das Diagramm zeigt das Potenzial am Axonhügel. Die Leiste darunter öffnet sieben weitere Szenen.
Ziehen zum Drehen. Mausrad oder zwei Finger zum Zoomen.
Was geschieht, wenn man sich den Zeh stößt?
Bei der Erregungsleitung am Axon wird eine kurze Spannungsänderung entlang einer Nervenfaser weitergegeben. Stoßen Sie sich den Zeh, spüren Sie erst den Stoß und etwas später den Schmerz. Beide Nachrichten laufen durch dasselbe Bein über Nervenfasern zu Rückenmark und Gehirn. Sie kommen versetzt an, weil ihre Fasern unterschiedlich gebaut sind. Eric Chudlers „Neuroscience for Kids“ an der University of Washington nennt für langsame Schmerzfasern etwa 2,2 Meilen pro Stunde, weniger als Schritttempo. Dicke Berührungsfasern erreichen dagegen annähernd Flugzeuggeschwindigkeit.
Dahinter steht derselbe Mechanismus, den jede Nervenzelle nutzt. Ein Neuron hält sein Inneres elektrisch negativ. Ein ausreichend starker Eingang kehrt die Ladung für etwa zwei Millisekunden um, und diese Umkehr läuft das Axon entlang. Am Ende wird das elektrische Signal chemisch und gelangt zur nächsten Zelle.
Das Exponat beginnt mit einem einzelnen Neuron in 3D. Reizstärke, Myelin und Axondicke lassen sich ändern; eine Synapse ist vergrößert zu sehen. Die Leiste darunter öffnet sieben weitere Szenen. Eine zeigt Ionenkanäle bei festgehaltener Membranspannung, wie in den Experimenten der 1940er Jahre. Eine lässt eine myelinisierte und eine nackte Faser über einen Meter antreten. Andere zeigen fünf Transmitter, messen den Kniereflex vom Schlag bis zur Antwort, summieren erregende und hemmende Eingänge und vergleichen acht Neuronentypen. Zum Schluss liegt ein Tintenfisch-Riesenaxon in einer Schale. Die Gleichungen von Alan Hodgkin und Andrew Huxley aus dem Jahr 1952 laufen dabei mit veränderlichem Strom, Temperatur und Anteil zweier Gifte. Unter der Bedienung stehen acht Aufgaben und 51 kurze Beispiele aus der Geschichte des Fachgebiets.
Eine Batterie aus Salzwasser
Ein Neuron ist ein Beutel Salzwasser in einem Bad mit anderer Salzverteilung. Innen gibt es viel Kalium und wenig Natrium, außen umgekehrt. OpenStax Biology nennt typische Konzentrationen: Natrium außen 145 mM, innen 12 mM; Kalium außen 4 mM, innen 155 mM. Die Natrium-Kalium-Pumpe erhält diese Unterschiede. Pro verbrauchtem ATP transportiert sie drei Natriumionen hinaus und zwei Kaliumionen hinein.
Die Membran selbst lässt keine Ionen durch. Sie passieren Kanalproteine, und in Ruhe sind vor allem Kaliumkanäle offen. Kalium folgt seinem Konzentrationsgefälle nach außen und nimmt jeweils eine positive Ladung mit. Die zurückbleibende negative Ladung hält schließlich weitere Ionen zurück. Eine Elektrode innen und eine außen messen das Ruhepotenzial von etwa −70 mV. Laut OpenStax hängt der genaue Wert von Neuronentyp und Tierart ab; −70 mV ist der übliche Lehrbuchwert und gilt auch hier.
Blau zeigt eine ruhende Membran. Das Eckdiagramm misst das Potenzial am Axonhügel. Steht der Regler „Reiz“ auf null, bleibt die Kurve flach bei −70.
Im Inneren der Kanäle
Ionen durchqueren die Membran durch Proteine. Die Szene „Ionenkanäle“ vergrößert drei davon in einem Quadrat Lipiddoppelschicht. Weiße Perlen sind die Lipidköpfe in zwei Lagen; dazwischen liegt die ölige Schicht, die Ionen nicht allein passieren können.
Das orange Protein ist ein spannungsabhängiger Natriumkanal. Eine lange Kette faltet sich zu vier ähnlichen Domänen um eine zentrale Pore. Shosaku Numas Gruppe in Kyoto klärte diesen Aufbau 1984 anhand des Gens für den Natriumkanal des Zitteraals. Jede Domäne trägt einen gelb gezeichneten Spannungssensor. Wird das Zellinnere weniger negativ, bewegt er sich nach außen. Innen hängt eine Schleife, hier eine rote Kugel an einer Kette. Etwa eine Millisekunde nach dem Öffnen schwenkt sie in die Pore und verschließt sie. Erst nahe dem Ruhepotenzial schwenkt sie zurück und der Kanal kann erneut öffnen.
Das blaugrüne Protein ist ein spannungsabhängiger Kaliumkanal mit vier getrennten Untereinheiten um eine Pore. Seine Sensoren reagieren langsamer, daher öffnet er später und besitzt keinen schnellen Verschluss. Roderick MacKinnons Gruppe klärte 1998 die Struktur eines bakteriellen Kaliumkanals. Ein enger, mit Sauerstoffatomen besetzter Filter lässt Kalium hindurch, weist aber das kleinere Natrium ab. Diese Arbeit wurde mit dem Chemienobelpreis 2003 ausgezeichnet.
Rechts sitzt die violette Natrium-Kalium-Pumpe. Jens Skou fand sie 1957 als Enzym im Krabbennerv, das ATP nur bei Anwesenheit beider Ionen spaltete. Dafür teilte er den Chemienobelpreis 1997. Pro ATP befördert sie drei Natriumionen hinaus und zwei Kaliumionen hinein. Gegenüber den Kanälen arbeitet sie langsam und erzeugt nicht das Aktionspotenzial. Sie erhält die Konzentrationsunterschiede über Minuten und Stunden.
Die Spannung festhalten
Hier läuft eine Spannungsklemme nach Hodgkin und Huxley. Ein Verstärker misst das Membranpotenzial und injiziert den Strom, der einen gewählten Wert hält. Dieser Strom ist gleich groß und entgegengesetzt zum Kanalstrom. So wird aus einem schnellen, sich selbst verstärkenden Vorgang ein einzeln messbarer Ablauf.
Der Zyklus hält −65 mV für 3 ms, springt für 12 ms auf „Klemmspannung“ und kehrt zurück. Beim Standardsprung auf −10 mV zeigt das Diagramm zwei Ströme. Der orange Natriumstrom zeigt nach unten, weil positive Ladung einströmt. Er erreicht nach 0,7 ms etwa 1430 µA/cm² und klingt trotz gehaltener Spannung ab. Der blaugrüne Kaliumstrom steigt langsamer nach oben und liegt am Sprungende noch bei etwa 1430 µA/cm². Die Prozentwerte geben den offenen Kanalanteil an: m³h für Natrium und n⁴ für Kalium.
Bei +50 mV verschwindet der Natriumstrom: Das ist im Tintenfischmodell das Natrium-Gleichgewichtspotenzial. Die Kanäle öffnen, doch netto fließt kein Natrium. Bei +60 mV kehrt der Strom nach außen um. Mit solchen Umkehrungen bestimmten Hodgkin und Huxley den Träger jedes Stroms. TTX und TEA blockieren je einen Anteil der Kanäle und verändern beide Kurven getrennt.
Eingänge summieren sich am Axonhügel
Dendriten empfangen Signale. Öffnet ein Transmitter dort Kanäle, strömt etwas positive Ladung ein und die Membran wird weniger negativ. Diese abgestuften Potenziale sind klein und klingen beim Ausbreiten ab, können aber gleichzeitig eintreffen und sich addieren. OpenStax nennt dies Summation. Sie betrifft den Axonhügel, den Austrittskegel am Zellkörper, und den anschließenden Axonanfang, das Initialsegment. Dessen hohe Dichte spannungsabhängiger Natriumkanäle macht es zur Auslösezone.
Bei „Reiz“ +10 mV laufen gelbe Perlen die Dendriten entlang. Jeder Eingang hebt das Hügelpotenzial kurz auf −60 mV, dann klingt es ab. Im Axon läuft kein Signal weiter.
Summation in Raum und Zeit
Ein echtes Neuron empfängt nicht nur einen Eingang. Eine Pyramidenzelle der Großhirnrinde trägt Tausende Synapsen an ihren Dendriten; manche erregen, andere hemmen. Die Szene „Summation“ zeigt sechs grüne erregende Synapsen an Dendriten und eine rote hemmende am Zellkörper neben der Auslösezone.
Im Modell trägt jeder erregende Eingang maximal 4 mV bei, steigt in etwa 1 ms und klingt mit 15 ms Zeitkonstante ab. Die Schwelle liegt wie in der Neuronszene 15 mV über −70 mV. Drei gleichzeitige Eingänge erreichen −58 mV und reichen nicht; vier erreichen −54 mV und lösen aus. Diese räumliche Summation addiert Eingänge verschiedener Orte bei gleichem Eintreffen.
„Eingangsabstand“ verteilt sie zeitlich. Bei vier Eingängen mit 2 ms Abstand klingt der erste schon ab, wenn der letzte kommt. Der Spitzenwert −55,7 mV verfehlt die Schwelle knapp. Acht Eingänge dürfen bis zu 4,5 ms auseinanderliegen und lösen noch aus. Das ist zeitliche Summation: Der Zeitpunkt zählt ebenso wie die Anzahl.
Hemmung verändert die Summe. Fünf gleichzeitige Eingänge kämen auf −50 mV, doch mindestens 6 mV gleichzeitige Hemmung halten sie unter der Schwelle. Schnelle Hemmung im Gehirn entsteht meist durch GABA, das Chloridkanäle öffnet. Solche Synapsen liegen häufig am oder nahe dem Zellkörper und können Eingänge des ganzen Dendritenbaums aufheben. John Eccles zeichnete diese Potenziale in spinalen Motoneuronen auf und teilte 1963 den Nobelpreis mit Hodgkin und Huxley.
Die 4 mV sind ein gewählter Modellwert, damit wenige Eingänge genügen. Eine einzelne kortikale Synapse verschiebt das Potenzial am Zellkörper meist um deutlich weniger als 1 mV. Eine echte Zelle braucht deshalb einige zehn zeitlich eng beieinanderliegende Eingänge.
Schwelle und Alles-oder-nichts-Regel
Bei etwa −55 mV öffnen spannungsabhängige Natriumkanäle: die Schwelle. Sobald einige öffnen, strömt Natrium hinein, die Membran wird noch weniger negativ und weitere Kanäle öffnen. Diese Rückkopplung treibt das Potenzial über null auf etwa +30 mV.
Zwei Vorgänge senken es wieder. Ein zweites Tor jedes Natriumkanals schließt selbsttätig innerhalb eines Millisekundenbruchteils. Zugleich öffnen die langsameren Kaliumkanäle und lassen Kalium hinaus. Weil sie auch langsam schließen, unterschreitet das Potenzial kurz −70 mV und kehrt dann zur Ruhe zurück. OpenStax gibt für den ganzen Ablauf etwa 2 ms an.
Unterhalb der Schwelle bleibt er aus; an oder über ihr läuft er stets zur gleichen Höhe. Zwischen +15 und +30 mV beginnt die Spitze früher, wird aber nicht höher. Das ist die Alles-oder-nichts-Regel. Ein stärkerer Reiz macht kein größeres Aktionspotenzial, sondern häufigere. Auch hier steigt die Häufigkeit beim Hochschieben etwas.
Das Tintenfischaxon und die Gleichungen von 1952
Der Zoologe J. Z. Young zeigte 1936, dass vermeintliche Blutgefäße im Tintenfischmantel einzelne Nervenfasern bis etwa einen Millimeter Durchmesser sind. Sie steuern den Fluchtantrieb und sind dick genug für einen Draht. Hodgkin und Huxley schoben 1939 im Labor in Plymouth eine Elektrode hinein und zeichneten erstmals das Potenzial im Axon auf. Die Spitze endete nicht bei null, wie Julius Bernsteins Membrantheorie vorhersagte, sondern überschritt null um einige zehn Millivolt.
Nach dem Krieg hielten sie die Spannung mit einem längs eingeführten Silberdraht fest, sodass die ganze Länge wie ein Membranfeld wirkte. Sie maßen das An- und Abschalten von Natrium- und Kaliumströmen bei jeder Spannung und beschrieben sie 1952 durch Gleichungen. Drei Tore m, h und n öffnen und schließen spannungsabhängig. Die Natriumleitfähigkeit beträgt 120 mS/cm² mal m³h, die Kaliumleitfähigkeit 36 mS/cm² mal n⁴; ein Leck von 0,3 mS/cm² ergänzt den Kreis. Die Raten wurden bei 6,3 °C gemessen und im Aufsatz je 10 °C mit dem Faktor drei skaliert.
Das „Tintenfischaxon-Labor“ berechnet diese Gleichungen laufend. Die graue Kurve zeigt das vom Draht erfasste Potenzial über 40 ms. Das Axon in der Schale wechselt seine Farbe entlang des laufenden Aktionspotenzials, mit der von denselben Gleichungen vorhergesagten Geschwindigkeit.
Was die Gleichungen ergeben
Bei 6,3 °C liegt die Ruhe bei −65 mV und m = 0,053, h = 0,596, n = 0,318. Ein 1-ms-Puls braucht 6,9 µA/cm² zum Auslösen. Darunter steigt das Potenzial nur kurz. Bei 7 µA/cm² kommt die Spitze spät, etwa 5 ms nach Pulsbeginn, und erreicht etwa +35 mV. Bei 20 µA/cm² kommt sie nach 1,3 ms und erreicht etwa +41 mV. Verdoppelter Strom erhöht sie um weniger als 1 mV. Weit über der Schwelle bleibt ihre Höhe fast konstant. Direkt an der Schwelle ist sie etwas kleiner, eine Feinheit, die die Lehrbuchregel glättet. Danach fällt das Potenzial auf etwa −76 mV, nahe dem Kalium-Gleichgewicht bei −77 mV, weil Kaliumtore noch offen sind.
„Zweiter Puls nach“ setzt einen weiteren Puls. Bei zweimal 20 µA/cm² fällt der zweite aus, wenn weniger als 10,6 ms Abstand liegen. Bei verdoppelten 40 µA/cm² reichen 7,8 ms. Das ist die relative Refraktärzeit: Während der Erholung kann ein stärkerer Reiz früher auslösen. In den ersten Millisekunden genügt kein Puls, die absolute Refraktärzeit.
„Dauerstrom“ ersetzt den Puls durch 150 ms Strom. Ab etwa 6,3 µA/cm² entstehen wiederholt Impulse: 69 Hz bei 10 µA/cm², 87 Hz bei 20 µA/cm², 118 Hz bei 50 µA/cm². So wird Stärke zu Frequenz, der Code, den Edgar Adrian 1926 in sensorischen Fasern hörte.
Temperatur beschleunigt alle drei Tore. Bei 18,5 °C laufen sie 3,8-mal schneller, der Impuls wird schmaler und niedriger mit Spitze bei etwa +33 mV. Die 1-ms-Schwelle steigt auf 8,9 µA/cm². Bei 25 °C liegt die Spitze nur bei etwa +19 mV. Ab etwa 28 °C löst ein Puls von 20 µA/cm² gar nicht mehr aus: Natriuminaktivierung und Kaliumaktivierung holen die Natriumaktivierung ein, bevor sich die Spitze aufbaut.
Die Ausbreitungsgeschwindigkeit
Teil fünf des Aufsatzes von 1952 ging weiter. Mit 238 µm gemessenem Faserradius und einem spezifischen Axoplasmawiderstand von 35,4 Ω cm berechneten Hodgkin und Huxley eine wandernde Erregung: 18,8 m/s bei 18,5 °C. Gemessen waren 21,2 m/s. Huxley rechnete auf einer mechanischen Kurbelrechenmaschine.
Dieselbe Rechnung wurde anders wiederholt: Ein 6 cm langes Axon wird in kurze Stücke zerlegt und zeitlich fortgeschrieben. Bei 0,5-mm-Stücken ergeben sich 18,7 m/s, bei 0,25 mm nähert sich das Ergebnis 18,73 m/s, weniger als ein halbes Prozent vom Aufsatz entfernt. Bei 6,3 °C leitet dasselbe Kabel 12,3 m/s. Diese berechnete Geschwindigkeit steuert die Axonfarbe im Labor.
Zwei Gifte
Tetrodotoxin (TTX), das Kugelfischgift, bindet am äußeren Eingang spannungsabhängiger Natriumkanäle und verstopft sie. Toshio Narahashi und Kollegen zeigten 1964 an Hummer-Riesenaxonen, dass es den Natriumstrom entfernt und Kaliumstrom unverändert lässt. Hier löst ein 20-µA/cm²-Puls bei 71 % blockierten Natriumkanälen noch aus, darüber nicht. Bei 100 % hebt der Puls das Potenzial nur kurz; die wandernde Welle verschwindet.
Tetraethylammonium (TEA) blockiert Kaliumkanäle. Bei halber Blockade erzeugt ein Puls drei Impulse, da die Rückführung des Potenzials zu schwach ist. Bei 90 % steigt das Ruhepotenzial, bis die Natriumkanäle inaktiv bleiben und nichts mehr auslöst. Beide dienen hier als Werkzeuge der Physiologie. Sie sind gefährlich; das Exponat enthält keine Aussagen zu medizinischer Anwendung oder Behandlung.
Warum das Signal nur vorwärts läuft
Ein Impuls am Axonhügel schiebt positive Ladung im Axon weiter. Sie hebt den nächsten Abschnitt zur Schwelle, dessen Natriumkanäle öffnen und erzeugen den nächsten Impuls. Dahinter können Kanäle wegen Inaktivierung nicht sofort wieder öffnen. Diese absolute Refraktärzeit sorgt dafür, dass die Erregung zu den Endigungen läuft und nicht zurück zum Zellkörper.
Ohne Myelin muss jeder Abschnitt nacheinander reagieren. Es entsteht eine langsame, kontinuierliche Welle. Schalten Sie „Myelin“ aus: Das bernsteinfarbene Band kriecht am Axon entlang.
Myelin und Ranvier-Schnürringe
Die meisten schnellen Wirbeltieraxone tragen viele Lagen Gliamembran. Außerhalb von Gehirn und Rückenmark stammt jede Wicklung von einer Schwann-Zelle; innen bilden Oligodendrozyten mit mehreren Armen Hüllen an mehreren Axonen. Die Isolierung leitet den Strom innen weiter, statt ihn durch die Membran austreten zu lassen.
Zwischen den Hüllen liegen etwa einen Mikrometer lange Ranvier-Schnürringe mit spannungsabhängigen Natriumkanälen. Ein Knoten treibt Strom so rasch durch das isolierte Stück, dass der nächste die Schwelle erreicht und das Aktionspotenzial erneuert. Daher heißt dies saltatorische, nach dem lateinischen Wort für springende, Erregungsleitung. Im Modell leuchten die Knoten nacheinander, die Zwischenstücke nur schwach.
Der Gewinn ist groß. Purves und Kollegen nennen in „Neuroscience“ etwa 0,5 bis 10 m/s ohne Myelin und bis zu 150 m/s mit Myelin. Dickere Axone haben zudem weniger Innenwiderstand; Ladung breitet sich weiter aus. „Axondurchmesser“ verändert deshalb die Geschwindigkeit: dicker schneller, dünner langsamer.
Zwei Wege zu hoher Geschwindigkeit
Beim „Myelinrennen“ liegen zwei Axone über einen Meter nebeneinander, anfangs beide 10 µm dick. Mit Myelin dauert es 17,5 ms, ohne 316 ms, also 18-mal länger. Oben springt das Leuchten zwischen Knoten. Gezeichnet sind nur zwölf Hüllen; eine 10-µm-Faser hätte etwa tausend je Meter, jede etwa 1 mm lang und in etwa 18 µs durchquert.
Tiere haben zwei Lösungen. Wirbeltiere isolieren schnelle Axone mit Myelin. Tintenfische und viele andere Wirbellose verdicken sie, senken damit den Innenwiderstand und vergrößern die Stromreichweite. Bei „Nackter Axondurchmesser“ 476 µm wie im Originalversuch liefert die Quadratwurzelregel 21,8 m/s, nahe den gemessenen 21,2 m/s. Es ist 50-mal dicker als die myelinisierte Nachbarfaser und trotzdem fast dreimal langsamer. Mit Myelin reichen etwa 4 µm für 21 m/s: mehr als zehntausendmal weniger Querschnitt. So passen Tausende schnelle Fasern in einen menschlichen Nerv.
Die schnellsten bekannten Fasern gehören Wirbellosen mit eigenem Myelin. Ke Xu und Susumu Terakawa fassten die Forschung an Riesenfasern von Penaeus-Garnelen zusammen, die mit über 200 m/s leiten. Zwischen Myelin und Axon liegt ein breiter Raum; statt normaler Knoten gibt es kleine Fenster.
„Geschädigtes Myelin“ entfernt einen mittleren Hüllenabschnitt. Das Modell behandelt ihn als nacktes Axon; das Signal wird langsamer und kommt später an. Real kann Strom durch die freigelegte, natriumkanalarme Membran verloren gehen und die Leitung ganz ausfallen. So wirken immunbedingte Myelinschäden bei Multipler Sklerose in Gehirn und Rückenmark oder beim Guillain-Barré-Syndrom in peripheren Nerven. Hier ist nur das Prinzip dargestellt. NINDS, Teil der US National Institutes of Health, bietet Patienteninformationen zu beiden.
Die Zahlen nachrechnen
Das Ruhepotenzial liegt nahe am Kalium-Gleichgewicht. Die Nernst-Gleichung berechnet es aus Innen- und Außenkonzentration:
E = (RT / zF) × ln(außen / innen)
Bei Körpertemperatur, 37 °C, beträgt RT/F 26,73 mV, entsprechend 61,54 mV je zehnfachem Konzentrationsunterschied. Für Kalium ergeben 61,54 × log₁₀(4/155) −97,7 mV, für Natrium 61,54 × log₁₀(145/12) +66,6 mV. Chlorid mit negativer Ladung ergibt bei denselben Zahlen −90,9 mV.
Die Ruhe von −70 mV liegt dazwischen, weil etwas Natrium eindringt. Die Goldman-Gleichung gewichtet Ionen nach Durchlässigkeit. Bei Natrium mit einem Zwanzigstel der Kaliumdurchlässigkeit, ohne Chlorid, entstehen −70,2 mV. Ein Hundertstel senkt den Wert auf −89,5 mV; ein Zehntel hebt ihn auf −57,0 mV. Die Spitze +30 mV bleibt unter Natriums +66,6 mV, weil Natriumkanäle vorher inaktivieren und Kaliumkanäle öffnen.
Für Leitung nutzt das Modell zwei Regeln. Myelinisierte Fasern leiten etwa 5,7 m/s je Mikrometer Durchmesser nach einer Faustregel des Washington University Neuromuscular Disease Center. Nackte Axone beginnen wie dünne Schmerzfasern mit 1 m/s bei 1 µm und steigen mit der Quadratwurzel. Bei 10 µm ergeben sich 57 m/s mit und 3,16 m/s ohne Myelin, Faktor 18. Ein Meter dauert 17,5 beziehungsweise 316 ms. Bei 20 µm werden 114 m/s erreicht; über den gesamten Reglerbereich bleiben die Werte in den Lehrbuchspannen.
Dieselbe Quelle nennt Internodien von etwa 100 Faserdurchmessern, also 1 mm bei 10 µm. Bei 57 m/s sind das 17,5 µs je Sprung, dieselbe Größenordnung wie die dortigen 25 µs. Die Modellschwelle braucht 15 mV Eingang: +20 mV erreicht sie nach 0,42 ms, +30 mV nach 0,23 ms. Alle Werte wurden auch numerisch nachgerechnet.
An der Synapse wird Elektrizität zu Chemie
Am Axonende muss das Signal einen Spalt zur nächsten Zelle überwinden. Am Endknöpfchen öffnen bei Ankunft spannungsabhängige Calciumkanäle. Einstrom von Calcium lässt angedockte Vesikel mit der Membran verschmelzen und Transmitter in den synaptischen Spalt entleeren. Er diffundiert zur nächsten Zelle und bindet Rezeptoren. Viele sind selbst Ionenkanäle: Sie öffnen, positive Ionen strömen ein und bringen die Zelle ihrer Schwelle näher. Danach wird Transmitter abgebaut, diffundiert weg oder wird zurücktransportiert; die Synapse ist wieder bereit.
OpenStax nennt etwa eine Millisekunde zwischen Ankunft und Öffnung auf der Gegenseite. Die Nahansicht zeigt Calcium grün, Transmitter rosa und leuchtende gebundene Rezeptoren.
Fünf Transmitter
Die Szene „Synapse“ vergrößert Vesikel, Spalt und Rezeptoren. „Transmitter“ wählt fünf bekannte Botenstoffe und verändert jeweils Rezeptoren, Antwort und Entfernung aus dem Spalt.
- Glutamat ist der wichtigste schnelle erregende Hirntransmitter. Die meisten Rezeptoren sind AMPA- oder NMDA-Ionenkanäle. Innerhalb einer Millisekunde lassen sie positive Ionen ein und erzeugen ein schnelles erregendes postsynaptisches Potenzial (EPSP). Transporter, oft auf Astrozyten, entfernen Glutamat.
- GABA ist der wichtigste hemmende Transmitter. GABA-A-Rezeptoren sind Chloridkanäle; das hemmende postsynaptische Potenzial (IPSP) hält die Zelle von der Schwelle fern. GABA entsteht aus Glutamat und hat eigene Transporter.
- Acetylcholin überträgt Motoneuronensignale über nikotinerge Ionenkanäle auf Skelettmuskeln. Es wird nicht als intaktes Molekül wiederaufgenommen. Acetylcholinesterase im Spalt spaltet es; Cholin wird recycelt. Otto Loewis Versuch mit zwei Froschherzen zeigte 1921 erstmals chemische Nervenübertragung, später als Acetylcholin identifiziert.
- Dopamin wirkt ausschließlich über G-Protein-gekoppelte Rezeptoren D1 bis D5. Die kleinere Antwort beginnt später und hält länger; sie verändert vor allem die Reaktion auf andere Eingänge. Mittelhirnneuronen versorgen Striatum und Kortex; der Dopamintransporter entfernt den Stoff.
- Serotonin entsteht aus Tryptophan in Raphekernneuronen, die weite Teile des Gehirns erreichen. Fast alle Rezeptoren sind G-Protein-gekoppelt; 5-HT3 ist als Ionenkanal die Ausnahme. Der Serotonintransporter entfernt es.
„Wiederaufnahme“ schaltet Transporter aus. Moleküle bleiben dann länger im Spalt und die Antwort verlängert sich. Einige Medikamente verlangsamen diesen Transport. Hier wird nur das Prinzip gezeigt.
Der Spalt ist etwa 20 nm breit; die Diffusion dauert Mikrosekunden. Von rund 1 ms Verzögerung entfallen die meisten auf Calciumeinstrom und Vesikelfusion. Bernard Katz und José del Castillo zeigten 1954 an der Frosch-Endplatte Transmitterpakete fester Größe, später einzelnen Vesikeln zugeordnet. Katz teilte 1970 den Nobelpreis mit Ulf von Euler, der Noradrenalin als Transmitter identifizierte, und Julius Axelrod, der dessen Wiederaufnahme zeigte.
Die Zeit des Kniereflexes
Der ärztliche Schlag unter die Kniescheibe dehnt kurz den Oberschenkelmuskel. Muskelspindeln senden über dicke sensorische Ia-Fasern durch die Hinterwurzel zum Rückenmark. Dort erregt jede Faser direkt Motoneuronen desselben Muskels, deren Axone den Befehl zurückführen. Der Muskel kontrahiert, das Bein streckt sich. Nur eine Synapse liegt dazwischen, daher die kurze Zeit. Ein sensorischer Seitenast erregt zugleich ein hemmendes Interneuron und entspannt die rückseitigen Oberschenkelmuskeln. Charles Sherrington beschrieb diese reziproke Hemmung, prägte „Synapse“ und teilte 1932 den Nobelpreis mit Adrian.
„Kniereflex“ berechnet die Reise. Der einfache Weg zum Rückenmark beträgt 0,29 der Körpergröße fürs Knie, dessen Motoneuronen in L3 und L4 liegen, und 0,52 für die von S1 versorgte Wade. Hin geht es mit 65 m/s, zurück mit 55 m/s, Werten im Bereich großer myelinisierter Fasern. Je 1 ms kommen für Spindel, zentrale Synapse und Endplatte hinzu. Bei 175 cm sind es je 0,51 m, 7,8 ms hin und 9,2 ms zurück, insgesamt 20,0 ms.
Messungen passen dazu. Helen Vickery und Paul Smith an der University of Nottingham maßen bei 28 jungen Erwachsenen mit Oberflächenelektroden am Oberschenkel 17 ms bei Frauen, 21 ms bei Männern. C. J. Frijns und Kollegen in Amsterdam untersuchten 102 Gesunde: Latenz und Körpergröße korrelierten mit 0,70 beim Knie und 0,72 beim Sprunggelenk. Innerhalb derselben Person änderten sich Zeiten von Schlag zu Schlag kaum.
Bei „Schlagstelle“ Sprunggelenk ist der Weg von der Wade fast doppelt so lang: 33,5 ms bei 175 cm. Das Washington University Neuromuscular Disease Center nennt etwa 30 ms für den Soleus-H-Reflex, die elektrische Form mit Start im Nerv statt in der Spindel. Zwischen 140 cm und 200 cm steigt die Modellzeit fürs Knie von 16,6 ms auf 22,5 ms.
Das Gehirn wird nicht gebraucht. Deshalb ist der Kniereflex schneller als jede bewusste Reaktion, die einige hundert Millisekunden dauert. „Reaktionszeit testen: Wie schnell reagieren Sie wirklich?“ misst Ihre Zeit.
Die Formen der Neuronen
Santiago Ramón y Cajal zeichnete jahrzehntelang mit Camillo Golgis Silbermethode gefärbte Neuronen und zeigte eigenständige Zellen mit erkennbaren Formen. „Neuronentypen“ stellt acht davon gleich hoch nebeneinander, um die Verzweigung zu vergleichen. Die Anzeige nennt ihre echten Größen.
- Pyramidenzellen sind die wichtigsten erregenden Kortexneuronen. Ein apikaler Dendrit steigt zur Oberfläche und endet in einem Büschel, basale Dendriten umgeben die Basis. Sie setzen Glutamat frei.
- Purkinje-Zellen bilden im Kleinhirn einen flachen Dendritenfächer, den Parallelfasern rechtwinklig kreuzen. Richard Napper und Robert Harvey zählten bei der Ratte etwa 175.000 Parallelfasersynapsen je Zelle. Sie hemmen und senden zu tiefen Kleinhirnkernen.
- Motoneuronen im Rückenmark haben große Zellkörper, lange Dendriten und ein dickes myelinisiertes Axon zu einem Muskel, der bis zu einen Meter entfernt sein kann.
- Bipolarzellen der Netzhaut führen einen Fortsatz zu Stäbchen oder Zapfen, den anderen zu Ganglienzellen. Die meisten leiten abgestufte Potenziale statt Aktionspotenziale. Es gibt mehr als zehn Typen.
- Körnerzellen des Kleinhirns sind sehr kleine Neuronen mit vier kurzen Dendritenklauen. Ihr Axon steigt und teilt sich in zwei Parallelfasern. Frederico Azevedo und Kollegen zählten etwa 86 Milliarden menschliche Hirnneuronen, davon rund vier Fünftel im Kleinhirn, meist Körnerzellen.
- Sensorische Neuronen der Spinalganglien sind pseudounipolar: Ein Stamm teilt sich in einen Ast zu Haut oder Muskel und einen ins Rückenmark. Das Signal passiert die Teilung ohne Umweg durch den Zellkörper.
- Kandelaberzellen sind hemmende Kortexinterneuronen. Endknöpfchen stehen wie Kerzen in kurzen senkrechten Reihen. Péter Somogyi zeigte 1977, dass jede am Axoninitialsegment einer Pyramidenzelle endet, dem Ort der Impulsentstehung.
- Mittelgroße dornentragende Neuronen bilden die meisten Striatumzellen. Sie hemmen, tragen viele Dornen und empfangen kortikales Glutamat sowie Dopamin aus dem Mittelhirn.
Die Formen sind vereinfacht. NeuroMorpho.Org, begonnen von Giorgio Ascolis Gruppe an der George Mason University, sammelt Rekonstruktionen vieler Labore aus Mikroskopbildern. Dort lassen sich echte Verzweigungen im Detail vergleichen.
Was das Modell auslässt
Nichts ist maßstabsgetreu. Das Axon ist zu kurz und dick, die Synapse separat vergrößert. Eine Millisekunde dauert auf dem Bildschirm eine halbe Sekunde. Auch die relativen Geschwindigkeiten sind angepasst: Mit Myelin wäre das Axon 18-mal schneller. Das Modell verkleinert den Abstand, damit keine halbe Minute Wartezeit entsteht; die Anzeige nennt stets die echten Zahlen.
In der Neuronszene ist die Kurve durch die Lehrbuchwerte −70, −55 und +30 mV vorgegeben, keine Simulation der Kanalraten. Diese laufen im Tintenfischlabor mit eigenen Temperaturwerten, Ruhe −65 mV und Spitze nahe +40 mV. Säugetierneuronen haben mehr Kanaltypen und kürzere Impulse.
Auch andere Szenen vereinfachen. Kanalformen folgen bekannten Strukturen, sind aber glatte Blöcke; die Pumpe dreht viel zu langsam. Das Rennen nutzt zwei Faustregeln und zwölf Internodien. Synapsenantworten sind vorgegebene Verläufe. Der Reflexweg ist ein fester Körpergrößenanteil, ohne zusätzliche Zeit vom elektrischen Muskelsignal bis zum Bewegungsbeginn. Bei der Summation sind einzelne Eingänge viel zu stark. Alle Neuronentypen sind gleich groß gezeichnet.
Das Exponat erklärt Nervenzellen allgemein und ist kein medizinischer Rat.
Wer die Zusammenhänge aufklärte
Luigi Galvani brachte in den 1780er Jahren Froschschenkel mit Metallbügeln zum Zucken und vertrat die tierische Elektrizität. Hermann von Helmholtz maß 1850 etwa 27 m/s am Froschnerv, langsam genug, um Nervensignale von Drahtstrom zu unterscheiden. Julius Bernstein erklärte 1902 die ruhende Membran als kaliumdurchlässig.
Cajal und Golgi teilten 1906 den Nobelpreis für den Aufbau des Nervensystems. Sherrington und Adrian erhielten ihn 1932: Sherrington für Reflexe und Synapsen, Adrian für Alles-oder-nichts-Impulse und Frequenzcodierung. Henry Dale und Otto Loewi folgten 1936 für chemische Übertragung. Joseph Erlanger und Herbert Gasser erhielten ihn 1944 für schnellere Leitung dicker Fasern. Ichiji Tasaki zeigte 1939, Andrew Huxley und Robert Stämpfli 1949 die sprunghafte Leitung an Schnürringen.
Alan Hodgkin und Andrew Huxley maßen Natrium- und Kaliumströme am Tintenfisch-Riesenaxon und beschrieben sie 1952 mathematisch. 1963 teilten sie den Nobelpreis für Physiologie oder Medizin mit John Eccles, der Synapsen im Zentralnervensystem erforschte. Ausgezeichnet wurden die Ionenmechanismen der Erregung und Hemmung an Nervenzellmembranen.
Später wurden die Moleküle hinter den Gleichungen sichtbar. Erwin Neher und Bert Sakmann dichteten 1976 eine feine Glaspipette auf einer Muskelzelle ab und maßen Einzelkanalstrom. Sie teilten den Preis 1991. Gene und Strukturen folgten in den 1980er und 1990er Jahren. Arvid Carlsson, Paul Greengard und Eric Kandel wurden 2000 für die Signalübertragung zwischen Nervenzellen ausgezeichnet, darunter Carlssons Dopaminforschung.
Fragen
Was ist ein Aktionspotenzial?
Eine etwa 2 ms lange Umkehr der Membranspannung von ungefähr −70 mV auf +30 mV und zurück. Sie beginnt am Axonhügel und läuft zu den Endigungen.
Warum ist ein Neuron innen in Ruhe negativ?
Die Membran lässt Kalium viel leichter als Natrium durch. Kalium entweicht seinem Konzentrationsgefälle folgend, innen bleibt negative Ladung. Die Natrium-Kalium-Pumpe erhält die Konzentrationen.
Wie zeigt ein gleich großer Impuls einen stärkeren Reiz an?
Durch häufigeres Auslösen. Stärkere Eingänge erreichen früher die Schwelle. Die Frequenz trägt die Reizstärke, die Einzelimpulse bleiben gleich hoch.
Wie schnell laufen Nervensignale?
Je nach Myelin und Dicke. Purves und Kollegen nennen 0,5 bis 10 m/s ohne Myelin und bis etwa 150 m/s mit Myelin. Dünnste Schmerzfasern erreichen etwa 1 m/s.
Was bewirkt Myelin?
Es isoliert das Axon; nur an Ranvier-Schnürringen wird das Aktionspotenzial erneuert. Das spart Energie und beschleunigt, weil sich Kanäle und Pumpen dort konzentrieren. Bei demyelinisierenden Krankheiten wie Multipler Sklerose entweicht Strom und die Leitung wird langsamer.
Warum läuft das Signal nicht rückwärts?
Hinter der Spitze bleiben Natriumkanäle kurz inaktiv. Die Refraktärzeit verhindert eine Umkehr, sodass das Signal vom Zellkörper zu den Endigungen läuft.
Wie lange dauert der Weg über eine Synapse?
Etwa eine Millisekunde für Calciumeinstrom, Vesikelfusion, Diffusion und Rezeptoröffnung an chemischen Synapsen. Elektrische Synapsen verbinden Zellen über Kanäle und sind nahezu verzögerungsfrei.
Beträgt das Ruhepotenzial immer −70 mV?
Nein, es hängt von Neuronentyp und Art ab. −70 mV ist der Lehrbuchrichtwert. Auch −55 mV Schwelle und +30 bis +40 mV Spitze sind typische Werte.
Was entdeckten Hodgkin und Huxley genau?
Zwei getrennte Ströme tragen das Aktionspotenzial: erst Natrium hinein, dann Kalium hinaus. Ihre Spannungs- und Zeitabhängigkeit wurde gemessen und mit Gleichungen beschrieben, die Form, Schwelle, Refraktärzeit und Geschwindigkeit im Tintenfischaxon reproduzierten.
Was ist eine Spannungsklemme?
Ein Verstärker injiziert den nötigen Strom, um das Potenzial auf einem gewählten Wert zu halten. Der Strom entspricht dem Kanalstrom und lässt sich messen. Die Szene „Ionenkanäle“ führt einen solchen Zyklus aus.
Warum hat der Tintenfisch ein so dickes Axon?
Riesenaxone steuern den Fluchtantrieb. Größerer Durchmesser senkt den Innenwiderstand und beschleunigt die Leitung. Bei 0,5 mm werden ohne Myelin etwa 21 m/s erreicht, wofür Wirbeltiere nur etwa 4 µm mit Myelin brauchen.
Warum ist der Kniereflex so schnell?
Zwischen sensorischer Faser und Motoneuron liegt nur eine Synapse; beide Fasern sind dick und myelinisiert. Das Gehirn ist nicht beteiligt. Junge Erwachsene brauchen insgesamt etwa 17 bis 21 ms, größere Menschen länger.
Was unterscheidet erregende und hemmende Synapsen?
Erregende bringen die Folgezelle meist durch positive Ionen der Schwelle näher. Hemmende halten sie meist durch Chlorideinstrom fern. Nur wenn die Summe die Schwelle erreicht, löst die Auslösezone aus.
Was machen Gifte wie TTX mit Nerven?
Tetrodotoxin blockiert spannungsabhängige Natriumkanäle und verhindert Erzeugung und Leitung von Aktionspotenzialen. Hier erklärt die Modellwirkung die Kanalfunktion. Es handelt sich nicht um Informationen zu Vergiftung oder Behandlung.
Begriffe
- Membranpotenzial: Spannung der Zellinnenseite gegenüber der Außenseite.
- Ruhepotenzial: Gleichmäßiges Potenzial einer nicht signalisierenden Nervenzelle, etwa −70 mV.
- Schwelle: Etwa −55 mV; Natriumkanäle öffnen und das Aktionspotenzial beginnt.
- Depolarisation: Das Zellinnere wird weniger negativ.
- Repolarisation: Rückkehr zur Ruhe nach einem Impuls.
- Hyperpolarisation: Kurzzeitiges Unterschreiten der Ruhe, etwa nach einem Impuls.
- Refraktärzeit: Nach einem Impuls keine erneute Auslösung oder nur mit stärkerem Reiz.
- Axonhügel und Initialsegment: Auslösezone am Austritt des Axons aus dem Zellkörper.
- Myelin: Isolierende Gliamembranwicklungen um ein Axon.
- Ranvier-Schnürring: Kurze Lücke im Myelin, an der das Aktionspotenzial erneuert wird.
- Saltatorische Erregungsleitung: Sprungweise Leitung von Knoten zu Knoten bei Myelin.
- Synaptisches Vesikel: Kleines Membranbläschen voller Transmitter.
- Nernst-Gleichung: Spannung beim Gleichgewicht einer Ionensorte über die Membran.
- Spannungsklemme: Hält die Membranspannung fest und misst Kanalströme.
- Torvariablen (m, h, n): Offene Anteile für Natriumaktivierung, Natriuminaktivierung und Kalium im Hodgkin-Huxley-Modell.
- Räumliche Summation: Verschiedene Orte liefern gleichzeitig Eingänge, die sich addieren.
- Zeitliche Summation: Zeitlich dicht folgende Eingänge an einem Ort addieren sich.
- EPSP und IPSP: Erregende und hemmende postsynaptische Potenziale; kleine Änderungen zur Schwelle hin oder davon weg.
- Ionotroper Rezeptor: Rezeptor, der selbst ein Ionenkanal ist.
- Metabotroper Rezeptor: Rezeptor, der über ein inneres G-Protein wirkt.
- Wiederaufnahme: Transporter entfernen Transmitter aus dem Spalt.
- Muskelspindel: Dehnungsrezeptor im Muskel.
- Reflexbogen: Weg vom Rezeptor über Rückenmark zum Muskel, der den Reflex erzeugt.
- Reziproke Hemmung: Entspannung des Gegenspielers über ein hemmendes Interneuron.
Quellen
- OpenStax, Anatomy and Physiology 2e, 12.4 The Action Potential (−70 mV Ruhepotenzial, −55 mV Schwelle, +30 mV Spitze, etwa 2 ms, Natrium-Inaktivierungstor, Refraktärzeit, saltatorische Erregungsleitung). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-4-the-action-potential (geprüft am 16. Oktober 2026)
- OpenStax, Biology 2e, 35.2 How Neurons Communicate (Ionenkonzentrationen in Tabelle 35.1, −70 mV variiert je nach Neuron und Tierart, Spitze etwa +40 mV, Schnürringe etwa 1 µm, Pumpe transportiert 3 Na⁺ hinaus und 2 K⁺ hinein, synaptische Verzögerung etwa 1 ms, Multiple Sklerose). https://openstax.org/books/biology-2e/pages/35-2-how-neurons-communicate (geprüft am 16. Oktober 2026)
- OpenStax, Anatomy and Physiology 2e, 12.2 Nervous Tissue (Axonhügel, Initialsegment und Auslösezone, synaptische Endknöpfchen, Schwann-Zellen und Oligodendrozyten). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-2-nervous-tissue (geprüft am 16. Oktober 2026)
- OpenStax, Anatomy and Physiology 2e, 12.5 Communication Between Neurons (Kalzium und Vesikelfusion, synaptischer Spalt, Summation am Axonhügel). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-5-communication-between-neurons (geprüft am 16. Oktober 2026)
- Purves D et al., Neuroscience, 2nd edition, Increased Conduction Velocity as a Result of Myelination, NCBI Bookshelf (ohne Myelin 0,5 bis 10 m/s, mit Myelin bis zu 150 m/s, saltatorische Erregungsleitung). https://www.ncbi.nlm.nih.gov/books/NBK10921/ (geprüft am 16. Oktober 2026)
- Chudler EH, Neuroscience for Kids, Conduction Velocity, University of Washington (Fasergruppen, C-Fasern etwa 2,2 Meilen pro Stunde). https://faculty.washington.edu/chudler/cv.html (geprüft am 16. Oktober 2026)
- Washington University Neuromuscular Disease Center, Peripheral axons: characteristics (Geschwindigkeit etwa 5,7 × Durchmesser, g-Verhältnis 0,6 bis 0,7, Internodium etwa 100 × Durchmesser, etwa 25 µs zwischen Schnürringen). https://neuromuscular.wustl.edu/nother/axon.htm (geprüft am 16. Oktober 2026)
- Hodgkin AL, Huxley AF. A quantitative description of membrane current and its application to conduction and excitation in nerve. Journal of Physiology 117, 500 (1952). https://pmc.ncbi.nlm.nih.gov/articles/PMC1392413/ (geprüft am 16. Oktober 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1963, summary (Eccles, Hodgkin, Huxley). https://www.nobelprize.org/prizes/medicine/1963/summary/ (geprüft am 16. Oktober 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1936, summary (Dale, Loewi, chemische Übertragung). https://www.nobelprize.org/prizes/medicine/1936/summary/ (geprüft am 16. Oktober 2026)
- Hodgkin AL, Huxley AF. Action potentials recorded from inside a nerve fibre. Nature 144, 710 (1939). doi:10.1038/144710a0 (geprüft am 18. Oktober 2026)
- Young JZ. Structure of nerve fibres and synapses in some invertebrates. Cold Spring Harbor Symposia on Quantitative Biology 4, 1 (1936). doi:10.1101/SQB.1936.004.01.001 (geprüft am 18. Oktober 2026)
- Narahashi T, Moore JW, Scott WR. Tetrodotoxin blockage of sodium conductance increase in lobster giant axons. Journal of General Physiology 47, 965 (1964). doi:10.1085/jgp.47.5.965 (geprüft am 18. Oktober 2026)
- Noda M et al. Primary structure of Electrophorus electricus sodium channel deduced from cDNA sequence. Nature 312, 121 (1984). doi:10.1038/312121a0 (geprüft am 18. Oktober 2026)
- Doyle DA et al. The structure of the potassium channel: molecular basis of K⁺ conduction and selectivity. Science 280, 69 (1998). doi:10.1126/science.280.5360.69 (geprüft am 18. Oktober 2026)
- Skou JC. The influence of some cations on an adenosine triphosphatase from peripheral nerves. Biochimica et Biophysica Acta 23, 394 (1957). doi:10.1016/0006-3002(57)90343-8 (geprüft am 18. Oktober 2026)
- Neher E, Sakmann B. Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature 260, 799 (1976). doi:10.1038/260799a0 (geprüft am 18. Oktober 2026)
- del Castillo J, Katz B. Quantal components of the end-plate potential. Journal of Physiology 124, 560 (1954). doi:10.1113/jphysiol.1954.sp005129 (geprüft am 18. Oktober 2026)
- Adrian ED, Zotterman Y. The impulses produced by sensory nerve-endings, part 2. Journal of Physiology 61, 151 (1926). doi:10.1113/jphysiol.1926.sp002281 (geprüft am 18. Oktober 2026)
- Tasaki I. The electro-saltatory transmission of the nerve impulse and the effect of narcosis upon the nerve fiber. American Journal of Physiology 127, 211 (1939). doi:10.1152/ajplegacy.1939.127.2.211 (geprüft am 18. Oktober 2026)
- Huxley AF, Stämpfli R. Evidence for saltatory conduction in peripheral myelinated nerve fibres. Journal of Physiology 108, 315 (1949). doi:10.1113/jphysiol.1949.sp004335 (geprüft am 18. Oktober 2026)
- Hursh JB. Conduction velocity and diameter of nerve fibers. American Journal of Physiology 127, 131 (1939). doi:10.1152/ajplegacy.1939.127.1.131 (geprüft am 18. Oktober 2026)
- Xu K, Terakawa S. Fenestration nodes and the wide submyelinic space form the basis for the unusually fast impulse conduction of shrimp myelinated axons. Journal of Experimental Biology 202, 1979 (1999). doi:10.1242/jeb.202.15.1979 (geprüft am 18. Oktober 2026)
- Vickery HSF, Smith PA. Surface electromyography reveals males have a slower patellar reflex than females. Journal of Electromyography and Kinesiology 22, 990 (2012). doi:10.1016/j.jelekin.2012.06.001 (geprüft am 18. Oktober 2026)
- Frijns CJM, Laman DM, van Duijn MAJ, van Duijn H. Normal values of patellar and ankle tendon reflex latencies. Clinical Neurology and Neurosurgery 99, 31 (1997). doi:10.1016/s0303-8467(96)00593-8 (geprüft am 18. Oktober 2026)
- Washington University Neuromuscular Disease Center, Tendon reflexes (H-Reflex-Latenz etwa 30 ms, nimmt mit der Körpergröße zu). https://neuromuscular.wustl.edu/mother/reflex.html (geprüft am 18. Oktober 2026)
- Napper RMA, Harvey RJ. Number of parallel fiber synapses on an individual Purkinje cell in the cerebellum of the rat. Journal of Comparative Neurology 274, 168 (1988). doi:10.1002/cne.902740204 (geprüft am 18. Oktober 2026)
- Azevedo FAC et al. Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513, 532 (2009). doi:10.1002/cne.21974 (geprüft am 18. Oktober 2026)
- Spruston N. Pyramidal neurons: dendritic structure and synaptic integration. Nature Reviews Neuroscience 9, 206 (2008). doi:10.1038/nrn2286 (geprüft am 18. Oktober 2026)
- Euler T et al. Retinal bipolar cells: elementary building blocks of vision. Nature Reviews Neuroscience 15, 507 (2014). doi:10.1038/nrn3783 (geprüft am 18. Oktober 2026)
- Somogyi P. A specific axo-axonal interneuron in the visual cortex of the rat. Brain Research 136, 345 (1977). doi:10.1016/0006-8993(77)90808-3 (geprüft am 18. Oktober 2026)
- Gerfen CR, Surmeier DJ. Modulation of striatal projection systems by dopamine. Annual Review of Neuroscience 34, 441 (2011). doi:10.1146/annurev-neuro-061010-113641 (geprüft am 18. Oktober 2026)
- Ascoli GA, Donohue DE, Halavi M. NeuroMorpho.Org: a central resource for neuronal morphologies. Journal of Neuroscience 27, 9247 (2007). doi:10.1523/JNEUROSCI.2055-07.2007 (geprüft am 18. Oktober 2026)
- Korn H, Faber DS. The Mauthner cell half a century later. Neuron 47, 13 (2005). doi:10.1016/j.neuron.2005.05.019 (geprüft am 18. Oktober 2026)
- Piccolino M. Animal electricity and the birth of electrophysiology: the legacy of Luigi Galvani. Brain Research Bulletin 46, 381 (1998). doi:10.1016/S0361-9230(98)00026-4 (geprüft am 18. Oktober 2026)
- Schmidgen H. Of frogs and men: the origins of psychophysiological time experiments, 1850 to 1865. Endeavour 26, 142 (2002). doi:10.1016/S0160-9327(02)01466-7 (geprüft am 18. Oktober 2026)
- Seyfarth EA. Julius Bernstein (1839 to 1917): pioneer neurobiologist and biophysicist. Biological Cybernetics 94, 2 (2006). doi:10.1007/s00422-005-0031-y (geprüft am 18. Oktober 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1906, 1932, 1944, 1970, 1991 and 2000, and in Chemistry 1997 and 2003, summaries. https://www.nobelprize.org/prizes/medicine/1991/summary/ (geprüft am 18. Oktober 2026)
- National Institute of Neurological Disorders and Stroke (NINDS), Multiple sclerosis; Guillain-Barré syndrome; Myasthenia gravis; Parkinson's disease; Amyotrophic lateral sclerosis. https://www.ninds.nih.gov/health-information/disorders/multiple-sclerosis (geprüft am 18. Oktober 2026)
Text und Simulation: CC BY-NC-SA 4.0, soweit nicht anders angegeben.
Weitere Exponate
Herzschlag: interaktives Herzmodell Schritt für Schritt
Ihr Herz wirft mit jedem Schlag etwa 70 mL Blut aus und tut das im Ruhetempo etwa 108.000-mal am Tag.

So funktioniert Genom-Editierung mit CRISPR-Cas9
Eine Guide-RNA liest nur 20 Buchstaben der DNA, und das genügt meist, um eine einzige Stelle unter den 3 Milliarden Basenpaaren eines menschlichen Genoms zu finden.

ATP-Synthase: Funktion und Rotation selbst untersuchen
In Mitochondrien dreht sich der Rotor der ATP-Synthase etwa 100-mal pro Sekunde. Jede volle Umdrehung setzt drei ATP-Moleküle frei.
Spaziergang durch eine Zelle: Tier, Pflanze und Bakterium
Millionenfach vergrößert ist ein Mitochondrium etwa so groß wie ein Sofa, ein ganzes E. coli ist 2 m lang, und das Kinesin, das neben Ihnen ein Vesikel schleppt, läuft mit 0,8 Metern pro Sekunde.
Wiederbelebung, AED, Verschlucken, Feuerlöscher üben
100 bis 120 Kompressionen pro Minute, etwa 5 cm tief: Mit einem Ersthelfer, der das tat, war das Überleben in Korea 2024 2,36-mal höher.
Reaktionszeit testen: Wie schnell reagieren Sie wirklich?
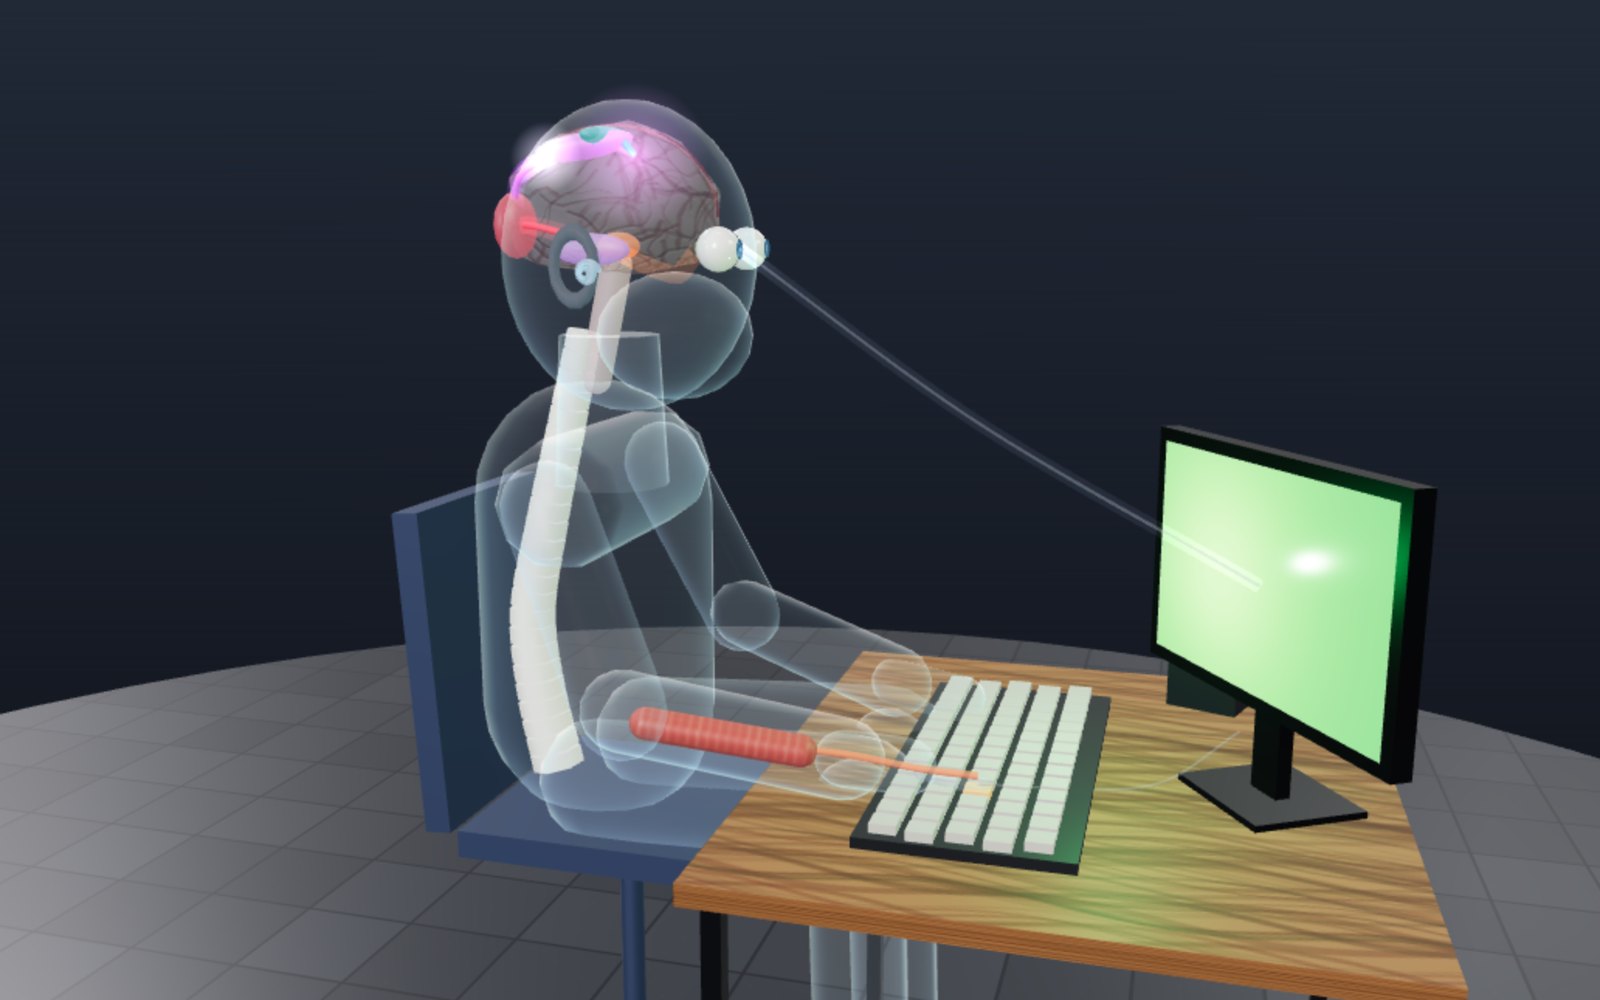
Bildschirmlicht erreicht Ihr Auge fast sofort. Der Finger bewegt sich erst etwa eine Fünftelsekunde später. Die meiste Zeit vergeht im Kopf.