FIG. 66Cómo funciona
Impulso nervioso y sinapsis: prueba cómo viaja una señal
Una neurona está cerca de −70 mV. Si un estímulo la eleva a unos −55 mV, dispara una descarga siempre de la misma amplitud.
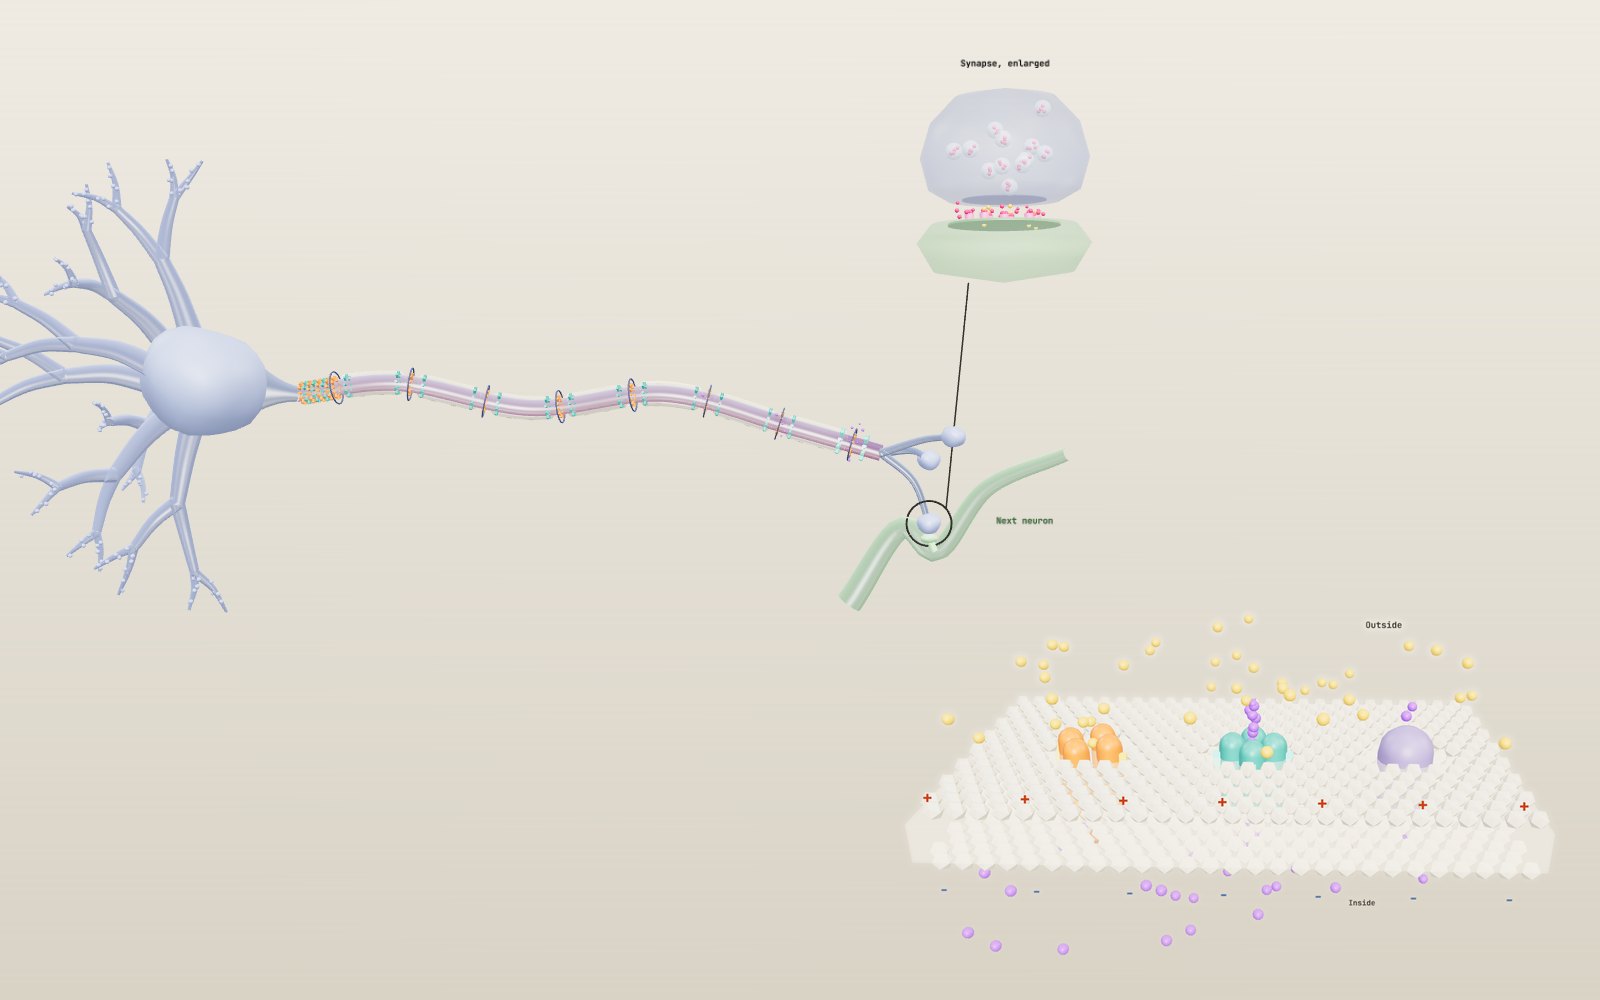
Este dispositivo no puede mostrar el modelo 3D. Abajo puedes leer los pasos de la guía como texto.
1 / 28 Una neurona de extremo a extremoLas señales entran por dendritas a la izquierda y salen por terminaciones a la derecha. El axón está acortado y engrosado. El gráfico muestra el potencial del cono axónico. La barra abre otras siete escenas.
Arrastra para girar. Usa la rueda o pellizca para ampliar.
¿Qué ocurre cuando te golpeas un dedo del pie?
Si te golpeas un dedo del pie, primero notas el golpe y un instante después el dolor. Los dos mensajes suben por la misma pierna, a lo largo de fibras nerviosas, hasta la médula espinal y el cerebro. Llegan en momentos distintos porque las fibras que los llevan están construidas de manera diferente. Las páginas Neuroscience for Kids de Eric Chudler, en la University of Washington, sitúan las fibras lentas del dolor en unas 2,2 millas por hora, menos de lo que tú caminas, mientras que las gruesas del tacto se acercan a la velocidad de un avión.
Bajo esa diferencia hay un mecanismo que usan todas las células nerviosas. Una neurona mantiene su interior eléctricamente negativo y, cuando recibe una entrada lo bastante fuerte, invierte esa carga durante unos dos milisegundos y transmite la inversión a lo largo de su axón. En el extremo, la señal eléctrica se convierte en una señal química que cruza hasta la célula siguiente.
La exposición empieza con una sola neurona en 3D. Puedes cambiar la intensidad de la entrada, quitarle la mielina al axón, variar su grosor y observar de cerca una sinapsis. La barra situada bajo el modelo abre siete escenas más. Una acerca los canales iónicos y mantiene la membrana a un voltaje fijo, como hacían los experimentos de la década de 1940. Otra enfrenta a lo largo de un metro una fibra con mielina y otra sin ella. Otras muestran en acción cinco neurotransmisores, miden un reflejo rotuliano desde el golpe hasta la patada, suman entradas excitadoras e inhibidoras y alinean ocho clases de neuronas. La última es un axón gigante de calamar en una cubeta, donde las ecuaciones que Alan Hodgkin y Andrew Huxley publicaron en 1952 se ejecutan en directo mientras cambias la corriente, la temperatura y la dosis de dos toxinas. Bajo los controles hay ocho tareas para probar y 51 ejemplos breves de la historia de este tema.
Una batería de agua salada
Una neurona es una bolsa de agua salada dentro de un baño de otra agua salada distinta. Dentro hay mucho potasio y poco sodio; fuera ocurre lo contrario. OpenStax Biology da valores típicos de 145 mM de sodio fuera y 12 mM dentro, y de 4 mM de potasio fuera frente a 155 mM dentro. La bomba sodio-potasio mantiene esa distribución: por cada molécula de ATP que gasta, expulsa tres iones de sodio e introduce dos de potasio.
La membrana en sí no deja pasar los iones. Estos cruzan solo a través de proteínas canal, y en reposo los canales abiertos son sobre todo de potasio. El potasio sale siguiendo su gradiente de concentración, y cada ion se lleva consigo una carga positiva, hasta que la carga negativa que queda atrás retiene a los demás. El resultado, medido con un electrodo dentro de la célula y otro fuera, es el potencial de membrana en reposo: unos −70 mV. OpenStax señala que la cifra exacta varía entre clases de neuronas y entre especies, pero −70 mV es el número que usan la mayoría de los libros de texto y este modelo.
En la exposición, una membrana azul es una membrana en reposo. El gráfico de la esquina muestra el potencial en el cono axónico y, con el control «Estímulo» en cero, permanece plano sobre la línea de −70.
Dentro de los canales
Los iones cruzan la membrana a través de proteínas, y la escena «Canales iónicos» acerca tres de ellas, situadas en un cuadrado de bicapa lipídica. Las cuentas blancas son las cabezas de los lípidos: dos láminas con una capa aceitosa entre ellas que ningún ion puede atravesar por sí solo.
La proteína naranja es un canal de sodio dependiente del voltaje. Es una cadena larga plegada en cuatro dominios parecidos alrededor de un poro central, una disposición que el grupo de Shosaku Numa, en Kioto, dedujo en 1984 al leer el gen del canal de sodio de la anguila eléctrica. Cada dominio lleva un sensor de voltaje, dibujado como una clavija amarilla, que se desplaza hacia fuera cuando el interior de la célula se vuelve menos negativo. En la cara interna cuelga un lazo, dibujado como una bola roja en una cadena. Alrededor de un milisegundo después de que el canal se abre, ese lazo se balancea hacia el poro y lo tapa. El canal no puede volver a abrirse hasta que la membrana ha regresado cerca del reposo y el lazo se ha vuelto a apartar.
La proteína verde azulada es un canal de potasio dependiente del voltaje, formado por cuatro subunidades separadas alrededor de un poro. Sus sensores se mueven más despacio, así que se abre más tarde que el de sodio, y no tiene un tapón rápido. En 1998, el grupo de Roderick MacKinnon resolvió la estructura de un canal de potasio bacteriano y mostró cómo un filtro estrecho, revestido de átomos de oxígeno, deja pasar el potasio y rechaza el sodio, que es más pequeño. Ese trabajo compartió el Premio Nobel de Química de 2003.
La proteína morada de la derecha es la bomba sodio-potasio. Jens Skou la descubrió en 1957 como una enzima del nervio de cangrejo que dividía el ATP solo cuando estaban presentes el sodio y el potasio, y por ello compartió el Premio Nobel de Química de 1997. Por cada ATP, saca tres iones de sodio y mete dos de potasio. La bomba es lenta comparada con los canales y no produce el potencial de acción. Su función es mantener las diferencias de concentración a lo largo de minutos y horas.
Mantener fijo el voltaje
La escena ejecuta una fijación de voltaje, el método que usaron Hodgkin y Huxley. Un amplificador mide el potencial de membrana e inyecta la corriente que haga falta para mantenerlo en un valor elegido. La corriente que tiene que aportar es igual y opuesta a la que fluye por los canales, de modo que la fijación convierte un suceso rápido y que se alimenta a sí mismo en algo que se puede medir pieza a pieza.
El ciclo mantiene la membrana a −65 mV durante 3 ms, la lleva durante 12 ms al valor de «Voltaje fijado» y la devuelve. Con el salto predeterminado a −10 mV, el gráfico muestra dos corrientes. La corriente de sodio (naranja, dibujada hacia abajo porque entra carga positiva) alcanza su máximo de unos 1430 µA/cm² a los 0,7 ms y después se extingue, aunque el voltaje se mantiene donde estaba. La corriente de potasio (verde azulada, hacia arriba) sube más despacio y sigue fluyendo a unos 1430 µA/cm² cuando termina el salto. Los porcentajes del panel indican la fracción abierta de cada clase de canal en el modelo, m³h para el sodio y n⁴ para el potasio.
Si saltas a +50 mV, la corriente de sodio desaparece, porque +50 mV es el potencial de equilibrio del sodio en el modelo del calamar: los canales se abren, pero no se mueve sodio en neto. Si saltas a +60 mV, la corriente se invierte y sale. Hodgkin y Huxley usaron justamente este tipo de inversión para demostrar qué ion llevaba cada corriente. Los controles TTX y TEA bloquean una fracción de cada clase de canal y modifican las dos curvas por separado.
Las entradas se suman en el cono axónico
Las dendritas son el extremo receptor. Cuando el transmisor de otra neurona abre canales en una dendrita, entra un poco de carga positiva y la membrana en ese punto se vuelve menos negativa. Estos potenciales graduados son pequeños y se debilitan al extenderse, pero muchos de ellos pueden llegar a la vez y sumarse. OpenStax lo llama sumación, y ocurre en el cono axónico, el cono por donde el axón sale del cuerpo celular, junto con el primer tramo del axón, llamado segmento inicial. Ese tramo está densamente poblado de canales de sodio dependientes del voltaje, y por eso se llama zona de disparo.
Pon el control «Estímulo» en +10 mV y observa las cuentas amarillas correr por las dendritas. Cada ráfaga de entrada eleva el cono a −60 mV y después vuelve a hundirse. Nada recorre el axón.
Sumar en el espacio y en el tiempo
Una neurona real no recibe una entrada cada vez. Una célula piramidal de la corteza lleva miles de sinapsis en sus dendritas, y unas excitan mientras que otras inhiben. La escena «Sumación» tiene seis sinapsis excitadoras (verdes) en las dendritas y una inhibidora (roja) en el cuerpo celular, junto a la zona de disparo, el primer tramo del axón donde nace la descarga.
En el modelo, cada entrada excitadora suma 4 mV en su pico, sube en cerca de 1 ms y se desvanece con una constante de tiempo de 15 ms. El umbral queda 15 mV por encima del reposo de −70 mV, igual que en la escena de la neurona. Tres entradas juntas llegan a −58 mV y no bastan. Cuatro juntas llegan a −54 mV y la zona de disparo se activa. Eso es sumación espacial: entradas de lugares distintos que se suman porque llegan a la vez.
Ahora sepáralas. El control «Intervalo de entradas» fija el retraso entre una entrada y la siguiente. Con cuatro entradas separadas 2 ms, la primera ya ha empezado a decaer cuando llega la última, y el pico se queda en −55,7 mV, por muy poco. Ocho entradas pueden separarse hasta 4,5 ms y aun así hacer disparar la célula. Eso es sumación temporal, y es la razón por la que el momento de las entradas importa tanto como su número.
La inhibición cambia la suma. Cinco entradas simultáneas llegarían a −50 mV, pero una entrada inhibidora de 6 mV o más en ese mismo momento mantiene la célula por debajo del umbral. En el cerebro, la mayor parte de la inhibición rápida procede del GABA al abrir canales de cloruro, y las sinapsis inhibidoras tienden a situarse sobre el cuerpo celular o cerca de él, donde anulan la entrada de todo el árbol dendrítico. John Eccles registró estos potenciales inhibidores en motoneuronas de la médula espinal y compartió el Premio Nobel de 1963 con Hodgkin y Huxley.
Los 4 mV por entrada son un valor del modelo, elegido para que baste un puñado de entradas. Una sola sinapsis de una neurona cortical suele modificar el cuerpo celular en bastante menos de 1 mV, así que una célula real necesita decenas de entradas que lleguen muy próximas en el tiempo.
Umbral y regla del todo o nada
Los canales de sodio dependientes del voltaje se abren cuando la membrana llega a unos −55 mV. Ese es el umbral. Cuando se abren unos pocos, el sodio entra de golpe, la membrana se vuelve aún menos negativa y se abren más canales. El bucle se desboca y el potencial se dispara más allá de cero, hasta unos +30 mV.
Dos cosas lo hacen volver. Cada canal de sodio tiene una segunda compuerta que se cierra sola en una fracción de milisegundo, de modo que la entrada de sodio se detiene. Al mismo tiempo se abren los canales de potasio dependientes del voltaje, que responden más despacio, y dejan salir potasio. La membrana cae de nuevo, se pasa un momento por debajo de −70 mV porque los canales de potasio tardan en cerrarse, y luego se estabiliza. OpenStax sitúa todo el suceso en unos 2 ms.
Por debajo del umbral nada de esto ocurre; en el umbral o por encima ocurre todo, y siempre hasta la misma altura. Mueve el control entre +15 y +30 mV y el pico del gráfico empieza antes, pero su cima nunca se mueve. Esta es la regla del todo o nada. Un estímulo más fuerte no produce un potencial de acción mayor. En las neuronas reales produce más potenciales por unidad de tiempo, y el modelo también dispara algo más a menudo cuando subes el control.
El axón de calamar y las ecuaciones de 1952
En 1936, el zoólogo J. Z. Young mostró que unos tubos que atraviesan el manto del calamar, tomados hasta entonces por vasos sanguíneos, eran fibras nerviosas únicas de hasta cerca de un milímetro de ancho. Activan el chorro con el que el calamar escapa, y son lo bastante anchos como para introducir un alambre en su interior. En 1939, Hodgkin y Huxley hicieron justo eso en el laboratorio de Plymouth y registraron por primera vez el potencial desde dentro de un axón. El pico no se detuvo en cero, como predecía la teoría de la membrana de Julius Bernstein, sino que superó el cero en decenas de milivoltios.
Después de la guerra usaron una fijación de voltaje con un alambre de plata enhebrado a lo largo del axón, de modo que toda su longitud se comportara como un único trozo de membrana. Midieron cómo se activaban y desactivaban las corrientes de sodio y de potasio a cada voltaje y, en 1952, las describieron con un conjunto de ecuaciones. Tres compuertas, llamadas m, h y n, se abren y se cierran con tasas que dependen del voltaje. La conductancia del sodio es 120 mS/cm² por m³h, la del potasio 36 mS/cm² por n⁴, y una pequeña fuga de 0,3 mS/cm² completa el circuito. Las tasas se midieron a 6,3 °C, y el artículo las multiplica por un factor de tres por cada 10 °C.
La escena «Axón de calamar» ejecuta esas ecuaciones mientras la miras. La curva gris del panel es el potencial registrado por el alambre durante 40 ms. El axón de la cubeta cambia de color a medida que el potencial de acción avanza por él, a la velocidad que predicen esas mismas ecuaciones.
Qué producen las ecuaciones
A 6,3 °C, el modelo reposa en −65 mV con las compuertas en m = 0,053, h = 0,596 y n = 0,318. Un pulso de 1 ms necesita 6,9 µA/cm² para disparar. Por debajo de eso, el potencial sube un poco y vuelve a hundirse. Con 7 µA/cm², la descarga llega tarde, unos 5 ms después de que empiece el pulso, y alcanza un máximo cercano a +35 mV. Con 20 µA/cm², llega a los 1,3 ms y alcanza un máximo cercano a +41 mV, y duplicar de nuevo la corriente añade menos de 1 mV. Muy por encima del umbral, la altura apenas cambia. Justo en el umbral, las ecuaciones dan una descarga algo menor, un detalle que la regla del todo o nada de los libros de texto deja de lado. Después de la descarga, la membrana desciende hasta unos −76 mV, más cerca del potencial de equilibrio del potasio de −77 mV, porque las compuertas del potasio siguen abiertas.
El control «Segundo pulso tras» añade un segundo pulso. Con dos pulsos de 20 µA/cm², el segundo falla si llega menos de 10,6 ms después del primero. Si duplicas la corriente a 40 µA/cm², basta una separación de 7,8 ms. Es el período refractario relativo: durante la recuperación, un estímulo más fuerte puede disparar la membrana antes. En los primeros milisegundos ningún pulso es lo bastante fuerte, y ese es el período refractario absoluto.
El control «Corriente constante» sustituye el pulso por un escalón de 150 ms. A partir de unos 6,3 µA/cm², el axón dispara una y otra vez. Con 10 µA/cm² lo hace a 69 Hz, con 20 µA/cm² a 87 Hz y con 50 µA/cm² a 118 Hz. Así convierte una célula nerviosa la intensidad en frecuencia, el código que Edgar Adrian oyó en fibras sensitivas en 1926.
La temperatura acelera las tres compuertas a la vez. A 18,5 °C se mueven 3,8 veces más rápido, el pico es más estrecho y más bajo, con un máximo cercano a +33 mV, y el umbral para un pulso de 1 ms sube a 8,9 µA/cm². A 25 °C el máximo es de solo unos +19 mV, y a partir de unos 28 °C un pulso de 20 µA/cm² ya no dispara en absoluto. La inactivación del sodio y la activación del potasio alcanzan entonces a la activación del sodio antes de que la descarga pueda formarse.
A qué velocidad avanza
La quinta parte del artículo de 1952 hizo algo más ambicioso. Con el radio medido de la fibra, 238 µm, y la resistividad del axoplasma, 35,4 Ω cm, Hodgkin y Huxley resolvieron un potencial de acción que viaja por el axón y obtuvieron una velocidad de 18,8 m/s a 18,5 °C. En ese mismo axón se habían medido 21,2 m/s. Huxley hizo la aritmética con una calculadora mecánica de manivela.
El mismo cálculo se repitió de otra manera, dividiendo un axón de 6 cm en tramos cortos y haciendo avanzar en el tiempo todo el cable. Con tramos de 0,5 mm da 18,7 m/s, y con tramos de 0,25 mm la respuesta se estabiliza en 18,73 m/s, a menos de medio por ciento del artículo. A 6,3 °C, el mismo cable conduce a 12,3 m/s. El laboratorio usa esa velocidad calculada para colorear el axón.
Dos toxinas
La tetrodotoxina (TTX), el veneno del pez globo, se encaja en la boca externa de los canales de sodio dependientes del voltaje y los tapona. Toshio Narahashi y sus colegas mostraron en 1964, en axones gigantes de langosta, que elimina la corriente de sodio y deja intacta la de potasio. En el modelo, un pulso de 20 µA/cm² aún dispara con el 71 % de los canales de sodio bloqueados, y falla por encima de eso. Con el 100 %, el pulso empuja la membrana hacia arriba y la deja caer de nuevo, y la onda a lo largo del axón desaparece.
El tetraetilamonio (TEA) bloquea los canales de potasio. En el modelo, si bloqueas la mitad, un solo pulso desencadena una breve ráfaga de tres descargas, porque nada tira de la membrana hacia abajo con firmeza. Si bloqueas el 90 %, el potencial de reposo se desplaza hacia arriba hasta que los canales de sodio quedan inactivados y nada dispara. Aquí las dos toxinas se muestran como herramientas que usan los fisiólogos. Son sustancias peligrosas, y la exposición no dice nada sobre ellas como medicamentos ni tratamientos.
Por qué la señal avanza solo en un sentido
Una descarga en el cono empuja carga positiva por el interior del axón. Esa carga lleva el siguiente trozo de membrana hasta el umbral, sus canales de sodio se abren y ese trozo, a su vez, dispara. El trozo de detrás no puede volver a disparar de inmediato porque sus canales de sodio siguen inactivados. Es el período refractario absoluto, y por eso el potencial de acción avanza hacia las terminaciones y nunca de vuelta hacia el cuerpo celular.
En un axón desnudo, cada trozo tiene que hacer esto por turnos. El resultado es una onda continua, y es lenta. Desactiva «Mielina» en los controles y observa cómo la banda ámbar se arrastra por el axón.
Mielina y nodos de Ranvier
La mayoría de los axones rápidos de los vertebrados están envueltos en mielina, capa tras capa de membrana de células gliales. En los nervios situados fuera del cerebro y de la médula espinal, cada envoltura procede de una célula de Schwann; dentro del cerebro y de la médula la fabrican los oligodendrocitos, y una sola célula extiende brazos hacia varios axones. La vaina aísla el axón, de modo que la corriente se extiende por el interior en lugar de escaparse a través de la membrana.
La vaina no es continua. Entre las envolturas hay huecos de cerca de un micrómetro de largo, los nodos de Ranvier, y ahí es donde se encuentran los canales de sodio dependientes del voltaje. Una descarga en un nodo impulsa corriente por el tramo aislado con la rapidez suficiente para llevar al nodo siguiente hasta el umbral, y allí se reconstruye el potencial de acción. Parece saltar de nodo en nodo, de donde le viene el nombre de conducción saltatoria, del latín para saltar. En el modelo, los nodos se iluminan uno tras otro mientras los tramos intermedios apenas brillan.
La ganancia es grande. En el libro Neuroscience de Purves y colegas, los axones sin mielina conducen a unos 0,5 a 10 m/s, mientras que los mielinizados pueden llegar a 150 m/s. El grosor también importa. Un axón más ancho tiene menos resistencia interna, así que la propagación de la carga llega más lejos. Cambia el «Diámetro del axón» y la velocidad que aparece en la esquina cambia con él: más rápida en las fibras gruesas y más lenta en las finas.
Dos formas de ir deprisa
La escena «Carrera de axones» pone dos axones lado a lado a lo largo de un metro. Ambos empiezan con 10 µm. El mielinizado termina en 17,5 ms y el desnudo en 316 ms, 18 veces más. El brillo de la fibra superior salta de nodo en nodo; solo hay doce vainas dibujadas, aunque una fibra de 10 µm tendría unas mil en un metro, cada una de cerca de 1 mm y cruzada en unos 18 µs.
Los animales han encontrado dos respuestas al problema de la velocidad. Los vertebrados envuelven sus axones rápidos en mielina. Los calamares, y muchos otros invertebrados, ensanchan en cambio el axón, porque un núcleo más ancho tiene menos resistencia y la propagación de la corriente llega más lejos. Pon el «Grosor del axón desnudo» en 476 µm, el tamaño del axón de Hodgkin y Huxley, y la fibra desnuda alcanza 21,8 m/s según la regla de la raíz cuadrada del modelo, cerca de los 21,2 m/s que ellos midieron. Es 50 veces más ancha que la fibra mielinizada que tiene al lado y aun así casi tres veces más lenta. Una fibra mielinizada necesita solo unos 4 µm para alcanzar 21 m/s, con una sección más de diez mil veces menor, una de las razones por las que un nervio humano puede llevar miles de fibras rápidas.
Las fibras más rápidas registradas son de invertebrados y tienen una mielina propia. Ke Xu y Susumu Terakawa revisaron las fibras gigantes de los camarones Penaeus, que conducen a más de 200 m/s. Su mielina deja un amplio espacio entre ella misma y el axón, y en lugar de nodos ordinarios tiene pequeñas ventanas.
El control «Mielina dañada» quita la vaina de un tramo situado en medio de la fibra. El modelo trata ese tramo como un axón desnudo, así que la señal se ralentiza allí y termina más tarde. En los nervios reales, la corriente puede escaparse a través de la membrana expuesta, que tiene pocos canales de sodio, y la señal puede fallar por completo. Las enfermedades en las que el sistema inmunitario ataca la mielina, como la esclerosis múltiple en el cerebro y la médula espinal o el síndrome de Guillain-Barré en los nervios periféricos, ralentizan o bloquean la conducción de este modo. La escena ilustra solo la idea. NINDS, parte de los US National Institutes of Health, ofrece información para pacientes sobre ambas.
Comprobar las cifras
El potencial de reposo está cerca del potencial de equilibrio del potasio, y la ecuación de Nernst da ese valor a partir de las dos concentraciones:
E = (RT / zF) × ln(fuera / dentro)
A la temperatura corporal, 37 °C, RT/F vale 26,73 mV, lo que equivale a 61,54 mV por cada diferencia de diez veces en la concentración. Para el potasio, 61,54 × log₁₀(4/155) da −97,7 mV. Para el sodio, 61,54 × log₁₀(145/12) da +66,6 mV. Para el cloruro, con su carga negativa, las mismas cifras dan −90,9 mV.
El valor de reposo de −70 mV queda entre ellos porque la membrana en reposo deja entrar también un poco de sodio. La ecuación de Goldman pondera cada ion según la facilidad con que cruza. Si el sodio cruza a una vigésima parte de la velocidad del potasio (sin contar el cloruro), la fórmula da −70,2 mV. Con una proporción de una centésima baja a −89,5 mV; si la subes a una décima, sube a −57,0 mV. El pico de +30 mV queda muy por debajo de los +66,6 mV del sodio, porque los canales de sodio se inactivan y los de potasio se abren antes de que pueda llegar allí.
Para la velocidad de conducción, el modelo usa dos reglas. Una fibra mielinizada conduce a unos 5,7 m/s por cada micrómetro de diámetro, una regla práctica del Washington University Neuromuscular Disease Center. A un axón desnudo se le asigna 1 m/s con 1 µm, como las fibras finas del dolor, y crece con la raíz cuadrada del diámetro. Con 10 µm eso da 57 m/s con mielina y 3,16 m/s sin ella, un factor de 18. En un metro de axón, la señal tarda 17,5 ms en el primer caso y 316 ms en el segundo. Con 20 µm, la fibra mielinizada alcanza 114 m/s, y en todo el recorrido del control los valores quedan dentro de los intervalos de los libros de texto.
La misma fuente da una longitud de internodo de unas 100 veces el diámetro del axón, es decir, unos 1 mm para una fibra de 10 µm. A 57 m/s, eso son 17,5 µs de nodo a nodo, del mismo orden que los 25 µs que cita. En el modelo, el umbral se alcanza cuando la entrada suma 15 mV: +20 mV lo cruza a los 0,42 ms y +30 mV a los 0,23 ms. Todas estas cifras se calcularon además de forma numérica.
De electricidad a química en la sinapsis
Al final del axón, la señal tiene que cruzar un hueco hasta la célula siguiente. Cuando el potencial de acción llega a un botón, la dilatación en la punta de cada rama terminal, se abren canales de calcio dependientes del voltaje y entra calcio. El calcio hace que las vesículas sinápticas ancladas en la membrana se fusionen con ella y viertan su neurotransmisor en la hendidura sináptica. El transmisor difunde hasta el otro lado y se une a proteínas receptoras de la neurona siguiente. Muchos de esos receptores son a su vez canales iónicos, de modo que la unión los abre y entran iones positivos, que acercan esa célula a su propio umbral. Después el transmisor se degrada, se dispersa o se bombea de vuelta, y la sinapsis queda lista otra vez.
OpenStax da cerca de un milisegundo entre la llegada del potencial de acción y la apertura de los canales del otro lado. En el primer plano del modelo, el calcio es verde, el transmisor rosa y los receptores brillan mientras el transmisor está unido a ellos.
Cinco transmisores
La escena «Sinapsis» amplía una sinapsis hasta que las vesículas, la hendidura y los receptores llenan el escenario. El control «Transmisor» alterna entre cinco de los neurotransmisores más conocidos, y cada uno cambia los receptores, la respuesta y la forma de limpiar la hendidura.
- Glutamato es el principal transmisor excitador rápido del cerebro. La mayoría de sus receptores son canales iónicos (los receptores AMPA y NMDA) que dejan entrar iones positivos en menos de un milisegundo y producen un potencial postsináptico excitador (EPSP) rápido. Unos transportadores, muchos de ellos en los astrocitos, lo retiran de la hendidura.
- GABA es el principal transmisor inhibidor. Los receptores GABA-A son canales de cloruro, y la respuesta es un potencial postsináptico inhibidor (IPSP) que mantiene la célula alejada del umbral. El GABA se fabrica a partir del glutamato y lo retiran sus propios transportadores.
- Acetilcolina lleva la señal de las motoneuronas al músculo esquelético mediante receptores nicotínicos, que son canales iónicos. No se recapta entera. La enzima acetilcolinesterasa la divide en la hendidura, y la colina se recicla. El experimento de Otto Loewi con dos corazones de rana, en 1921, mostró por primera vez que un nervio liberaba una sustancia química, que resultó ser la acetilcolina.
- Dopamina actúa solo mediante receptores acoplados a proteínas G (D1 a D5). La respuesta empieza más tarde, es menor y dura más, y su efecto principal es cambiar cómo responde la célula diana a sus demás entradas. Neuronas del mesencéfalo la envían al estriado y a la corteza, y el transportador de dopamina la retira.
- Serotonina la fabrican a partir del triptófano las neuronas de los núcleos del rafe, que llegan a la mayor parte del cerebro. Casi todos sus receptores están acoplados a proteínas G; el receptor 5-HT3 es la excepción, un canal iónico. El transportador de serotonina la retira.
El control «Recaptación» desactiva los transportadores. Entonces las moléculas permanecen más tiempo en la hendidura y la respuesta se alarga. Algunos medicamentos actúan en este paso ralentizando un transportador. La escena muestra solo el principio.
La hendidura mide unos 20 nm de ancho, así que la difusión a través de ella tarda microsegundos. La mayor parte del retraso sináptico de aproximadamente 1 ms se va en la entrada de calcio y la fusión de las vesículas. Bernard Katz y José del Castillo mostraron en 1954, en la unión neuromuscular de la rana, que el transmisor sale en paquetes de tamaño fijo, que más tarde se asociaron a vesículas individuales. Katz compartió el Premio Nobel de 1970 con Ulf von Euler, que identificó la noradrenalina como transmisor, y con Julius Axelrod, que mostró que se recapta en la terminación nerviosa después de liberarse.
Cronometrar el reflejo rotuliano
El golpecito de un médico bajo la rótula estira un instante el músculo del muslo. Los receptores de estiramiento del interior del músculo, los husos musculares, se activan, y la señal sube por gruesas fibras sensitivas (llamadas fibras Ia) a través de la raíz dorsal hasta la médula espinal. Allí cada fibra hace sinapsis directamente con las motoneuronas del mismo músculo, y sus axones llevan la orden de vuelta hacia abajo. El músculo se contrae y la pierna da la patada. En el camino hay solo una sinapsis, y por eso el reflejo es tan rápido. Al mismo tiempo, una rama de la fibra sensitiva excita una interneurona inhibidora que relaja los isquiotibiales de la parte posterior del muslo. Charles Sherrington dedujo esta disposición, la inhibición recíproca, y acuñó la palabra sinapsis; compartió el Premio Nobel de 1932 con Adrian.
La escena «Reflejo rotuliano» cronometra el viaje. El modelo toma el trayecto de ida desde el músculo hasta la médula espinal como una fracción de la estatura: 0,29 de la estatura para la rodilla, cuyas motoneuronas están en los segmentos L3 y L4 de la médula, y 0,52 para la pantorrilla, atendida por S1. Envía la señal de entrada a 65 m/s y la de salida a 55 m/s, valores dentro del intervalo de las fibras mielinizadas gruesas, y añade tres retrasos fijos de 1 ms para el huso, la sinapsis central y la unión neuromuscular. Para una persona de 175 cm, eso son 0,51 m en cada sentido, 7,8 ms de entrada y 9,2 ms de salida, 20,0 ms en total.
Las mediciones concuerdan. Helen Vickery y Paul Smith, de la University of Nottingham, registraron el reflejo rotuliano con electrodos de superficie en el muslo de 28 adultos jóvenes y obtuvieron 17 ms en las mujeres y 21 ms en los hombres. C. J. Frijns y sus colegas, en Ámsterdam, midieron los reflejos de rodilla y tobillo en 102 personas sanas y hallaron que la latencia crece con la estatura, con una correlación de 0,70 para la rodilla y de 0,72 para el tobillo. La latencia de cada persona apenas cambiaba de un golpe al siguiente.
Elige «Tobillo» en «Golpear en». El camino desde la pantorrilla es casi el doble de largo, y el modelo da 33,5 ms con 175 cm. El Washington University Neuromuscular Disease Center da unos 30 ms para el reflejo H del sóleo, una versión eléctrica del reflejo del tobillo que inicia la señal en el nervio y no en el huso. Si cambias la «Estatura» de 140 cm a 200 cm, el reflejo rotuliano pasa de 16,6 ms a 22,5 ms.
Nada de esto involucra al cerebro, y por eso un reflejo rotuliano es más rápido que cualquier reacción que puedas hacer a propósito. Una reacción que eliges hacer tarda unos cientos de milisegundos, y la exposición «Tiempo de reacción: prueba tus reflejos en milisegundos» mide la tuya.
Muchas formas de neurona
Santiago Ramón y Cajal pasó décadas dibujando neuronas teñidas con el método de plata de Camillo Golgi y mostró que son células separadas con formas reconocibles. La escena «Tipos neuronales» alinea ocho de ellas, todas dibujadas a la misma altura para poder comparar su ramificación. El panel indica el tamaño real de cada una.
- Células piramidales: son las principales neuronas excitadoras de la corteza cerebral. Una larga dendrita apical sube hacia la superficie y termina en un penacho, mientras que las dendritas basales se extienden alrededor de la base. Liberan glutamato.
- Células de Purkinje: las del cerebelo extienden sus dendritas en un abanico plano. Las fibras paralelas cruzan el abanico en ángulo recto; Richard Napper y Robert Harvey contaron unas 175 000 sinapsis de fibras paralelas en una sola célula de Purkinje de rata. Son células inhibidoras y envían sus axones a los núcleos cerebelosos profundos.
- Motoneuronas: las de la médula espinal tienen cuerpos celulares grandes, dendritas largas y un axón grueso mielinizado que puede llegar a un músculo situado a un metro.
- Células bipolares de la retina: tienen un proceso hacia los bastones o conos y otro hacia las células ganglionares. La mayoría de los tipos transmiten potenciales graduados en lugar de descargas, y la retina tiene más de diez tipos.
- Células granulares del cerebelo: están entre las neuronas más pequeñas, con cuatro dendritas cortas en forma de garra y un axón que sube y se divide en dos fibras paralelas. Frederico Azevedo y sus colegas contaron unos 86 mil millones de neuronas en el cerebro humano, y unas cuatro de cada cinco están en el cerebelo, sobre todo células granulares.
- Neuronas sensitivas: las de los ganglios de la raíz dorsal son seudounipolares: un tallo sale del cuerpo celular y se divide, con una rama hacia la piel o el músculo y la otra hacia la médula espinal. La señal puede pasar por la bifurcación sin atravesar el cuerpo celular.
- Células en candelabro: son interneuronas inhibidoras de la corteza. Sus botones se disponen en cortas filas verticales como velas, y Péter Somogyi mostró en 1977 que cada fila termina en el segmento inicial del axón de una célula piramidal, el lugar donde empiezan las descargas.
- Neuronas espinosas medianas: forman la mayor parte del estriado. Son inhibidoras, están densamente cubiertas de espinas y reciben tanto glutamato de la corteza como dopamina del mesencéfalo.
Las formas de la escena son dibujos simplificados. NeuroMorpho.Org, un archivo iniciado por el grupo de Giorgio Ascoli en la George Mason University, reúne reconstrucciones de neuronas reales trazadas a partir de imágenes de microscopio por muchos laboratorios, y es el lugar para comparar sus formas en detalle.
Qué omite el modelo
Nada del dibujo está a escala. El axón es mucho más corto y grueso que cualquiera real, y la sinapsis se amplía en un primer plano aparte. El tiempo se ralentiza para que un milisegundo dure medio segundo en pantalla. Tampoco la descarga de la pantalla avanza a las velocidades relativas reales. Un axón mielinizado es 18 veces más rápido que el mismo axón desnudo, y el modelo reduce esa diferencia para que no esperes medio minuto, pero el panel siempre da las cifras reales.
En la escena de la neurona, la forma del potencial de acción es una curva dibujada a través de los valores de los libros de texto, −70, −55 y +30 mV, y no una simulación de la cinética de los canales. El laboratorio del calamar es el lugar donde se ejecuta la cinética real, y sus números corresponden al axón del calamar a su propia temperatura, con un reposo de −65 mV y un pico cercano a +40 mV. Las neuronas de los mamíferos tienen más clases de canales, y sus descargas son más cortas.
Las demás escenas también simplifican. Los canales iónicos tienen la forma de su estructura conocida, pero están dibujados como bloques lisos, y la bomba gira mucho más despacio que una real. La carrera usa dos reglas prácticas para la velocidad y dibuja doce internodos. Las respuestas sinápticas de la escena de la sinapsis son formas del modelo. El modelo del reflejo toma la longitud del camino como una fracción fija de la estatura y deja fuera el tiempo que necesita un músculo para empezar a moverse después de su señal eléctrica. En la escena de la sumación, cada entrada es mucho más fuerte que una real. Los tipos de neurona se dibujan a un solo tamaño.
Esta exposición explica cómo funcionan las células nerviosas en general. No es un consejo médico.
Quién lo descubrió
Luigi Galvani hizo que unas ancas de rana se contrajeran con arcos metálicos en la década de 1780 y defendió la existencia de una electricidad animal. En 1850, Hermann von Helmholtz midió en un nervio de rana unos 27 m/s, una velocidad lo bastante lenta para demostrar que las señales nerviosas no son electricidad en un alambre. Julius Bernstein propuso en 1902 que la membrana en reposo es permeable al potasio.
Cajal y Golgi compartieron el Premio Nobel de 1906 por la estructura del sistema nervioso. Sherrington y Adrian compartieron el de 1932: Sherrington por los reflejos y las sinapsis, y Adrian por la descarga de todo o nada y el código de frecuencia. Henry Dale y Otto Loewi compartieron el de 1936 por la transmisión química. Joseph Erlanger y Herbert Gasser lo ganaron en 1944 por mostrar que las fibras más gruesas conducen más rápido. Ichiji Tasaki en 1939, y Andrew Huxley junto con Robert Stämpfli en 1949, mostraron que en las fibras mielinizadas la excitación salta de un nodo a otro.
Alan Hodgkin y Andrew Huxley midieron las corrientes de sodio y de potasio en el axón gigante del calamar y las describieron con ecuaciones en 1952. Compartieron el Premio Nobel de Fisiología o Medicina de 1963 con John Eccles, que estudió las sinapsis del sistema nervioso central. El premio se concedió por los mecanismos iónicos de la excitación y la inhibición en la membrana de la célula nerviosa.
Más tarde, otros trabajos encontraron las moléculas que hay detrás de las ecuaciones. Erwin Neher y Bert Sakmann sellaron una fina pipeta de vidrio sobre una célula muscular en 1976 y registraron la corriente a través de canales individuales, y compartieron el premio de 1991. Los genes y luego las estructuras de los canales llegaron en las décadas de 1980 y 1990. Arvid Carlsson, Paul Greengard y Eric Kandel compartieron el premio de 2000 por la señalización entre células nerviosas, incluido el trabajo de Carlsson sobre la dopamina.
Preguntas
¿Qué es un potencial de acción?
Una breve inversión del voltaje a través de la membrana de una neurona, de unos −70 mV a unos +30 mV y de vuelta, que dura unos 2 ms. Empieza en el cono axónico y viaja por el axón hasta las terminaciones.
¿Por qué el interior de una neurona es negativo en reposo?
En reposo, la membrana deja pasar el potasio con mucha más facilidad que el sodio. El potasio sale siguiendo su gradiente de concentración y deja el interior negativo, y la bomba sodio-potasio evita que las concentraciones se agoten.
Si todas las descargas son del mismo tamaño, ¿cómo señala una neurona un estímulo intenso?
Disparando con más frecuencia. Una entrada más fuerte alcanza el umbral antes y empieza la descarga siguiente más pronto, de modo que la frecuencia de los potenciales de acción transmite la intensidad mientras cada uno conserva la misma altura.
¿A qué velocidad viajan las señales nerviosas?
Depende de la mielina y del grosor. Según Purves y colegas, los axones sin mielina conducen a unos 0,5 a 10 m/s y los mielinizados a hasta unos 150 m/s. Las fibras de dolor más finas llegan a unos 1 m/s.
¿Para qué sirve la mielina?
Aísla el axón de modo que el potencial de acción solo tiene que reconstruirse en los nodos de Ranvier. Eso hace la conducción mucho más rápida y ahorra energía, ya que los canales y las bombas se concentran en los nodos. En las enfermedades desmielinizantes, como la esclerosis múltiple, la corriente se escapa y la conducción se ralentiza.
¿Por qué la señal no viaja hacia atrás?
Detrás de la descarga, los canales de sodio quedan inactivados durante un breve tiempo y no pueden volver a abrirse. Este período refractario impide que el potencial de acción dé la vuelta, de modo que avanza del cuerpo celular hacia las terminaciones.
¿Cuánto tarda en cruzar una sinapsis?
Alrededor de un milisegundo en una sinapsis química, para la entrada de calcio, la fusión de las vesículas, la difusión a través de la hendidura y la apertura de los receptores. Las sinapsis eléctricas, en las que las células están unidas por canales, son casi instantáneas.
¿El potencial de reposo es siempre −70 mV?
No. Varía con el tipo de neurona y la especie, y los libros de texto usan −70 mV como valor típico. El umbral de unos −55 mV y el pico de +30 a +40 mV también son valores típicos.
¿Qué descubrieron en realidad Hodgkin y Huxley?
Que el potencial de acción lo llevan dos corrientes separadas: primero entra sodio y luego sale potasio. Midieron cómo se activaba y desactivaba cada una con el voltaje y el tiempo, y escribieron ecuaciones que reproducían la forma de la descarga, el umbral, el período refractario y la velocidad de conducción en el axón de calamar.
¿Qué es una fijación de voltaje?
Un amplificador que mantiene el potencial de membrana en un valor elegido inyectando la corriente que haga falta. La corriente inyectada es igual a la que pasa por los canales, de modo que se puede medir. La escena «Canales iónicos» ejecuta un ciclo de fijación.
¿Por qué un calamar tiene un axón tan grueso?
Los axones gigantes activan el chorro con el que el calamar escapa, y un axón más ancho conduce más rápido porque su núcleo tiene menos resistencia. Un axón de 0,5 mm alcanza unos 21 m/s sin mielina, lo que un vertebrado consigue con una fibra mielinizada de unos 4 µm de ancho.
¿Por qué es tan rápido el reflejo rotuliano?
Entre la fibra sensitiva y la motoneurona hay una sola sinapsis, y ambas fibras son gruesas y mielinizadas. El cerebro no interviene. Todo el recorrido tarda unos 17 a 21 ms en adultos jóvenes, y más en las personas más altas.
¿Qué diferencia hay entre las sinapsis excitadoras y las inhibidoras?
Una sinapsis excitadora empuja a la célula siguiente hacia el umbral, normalmente dejando entrar iones positivos. Una sinapsis inhibidora la mantiene alejada, normalmente dejando entrar cloruro. La zona de disparo solo dispara si la suma de todas las entradas llega al umbral.
¿Qué hacen toxinas como la TTX en los nervios?
La tetrodotoxina bloquea los canales de sodio dependientes del voltaje, de modo que no se pueden generar ni conducir potenciales de acción. Esta exposición muestra el efecto en un modelo para explicar cómo funcionan los canales. No es información sobre envenenamientos ni tratamientos.
Términos
- Potencial de membrana: el voltaje a través de la membrana celular, con el interior medido respecto al exterior.
- Potencial de reposo: el potencial de membrana estable de una neurona que no está emitiendo señales, de unos −70 mV.
- Umbral: el potencial, de unos −55 mV, en el que se abren los canales de sodio dependientes del voltaje y empieza un potencial de acción.
- Despolarización: un cambio que hace el interior menos negativo.
- Repolarización: el regreso hacia el potencial de reposo después de una descarga.
- Hiperpolarización: una caída por debajo del potencial de reposo, como después de un potencial de acción.
- Período refractario: el tiempo posterior a una descarga en el que la membrana no puede volver a disparar, o solo con un estímulo más fuerte.
- Cono axónico y segmento inicial: la zona de disparo donde el axón sale del cuerpo celular.
- Mielina: envolturas aislantes de membrana glial alrededor de un axón.
- Nodo de Ranvier: un hueco corto entre las envolturas de mielina donde se reconstruye el potencial de acción.
- Conducción saltatoria: conducción que salta de nodo en nodo a lo largo de un axón mielinizado.
- Vesícula sináptica: un pequeño saco de membrana lleno de neurotransmisor.
- Ecuación de Nernst: la fórmula del voltaje al que una clase de ion está en equilibrio a ambos lados de una membrana.
- Fijación de voltaje: un método que mantiene la membrana a un voltaje fijado y mide la corriente a través de sus canales.
- Variables de compuerta (m, h, n): las fracciones abiertas de las compuertas de activación del sodio, de inactivación del sodio y del potasio en el modelo de Hodgkin y Huxley.
- Sumación espacial: entradas en lugares distintos que se suman porque llegan a la vez.
- Sumación temporal: entradas en un mismo lugar que se suman porque llegan próximas en el tiempo.
- EPSP e IPSP: potenciales postsinápticos excitadores e inhibidores, pequeños cambios que empujan a una célula hacia el umbral o lejos de él.
- Receptor ionotrópico: un receptor que es en sí mismo un canal iónico.
- Receptor metabotrópico: un receptor que actúa mediante una proteína G dentro de la célula.
- Recaptación: la retirada del transmisor de la hendidura por proteínas transportadoras.
- Huso muscular: un receptor de estiramiento dentro de un músculo.
- Arco reflejo: el trayecto del receptor a la médula espinal y al músculo que produce un reflejo.
- Inhibición recíproca: la relajación del músculo opuesto durante un reflejo, mediante una interneurona inhibidora.
Fuentes
- OpenStax, Anatomy and Physiology 2e, 12.4 The Action Potential (−70 mV en reposo, −55 mV de umbral, +30 mV de pico, unos 2 ms, compuerta de inactivación del sodio, período refractario, conducción saltatoria). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-4-the-action-potential (consultado el 16 de octubre de 2026)
- OpenStax, Biology 2e, 35.2 How Neurons Communicate (concentraciones iónicas en la tabla 35.1, −70 mV varía según la neurona y la especie, pico de unos +40 mV, nodos de alrededor de 1 µm, la bomba expulsa 3 Na⁺ e introduce 2 K⁺, retraso sináptico de alrededor de 1 ms, esclerosis múltiple). https://openstax.org/books/biology-2e/pages/35-2-how-neurons-communicate (consultado el 16 de octubre de 2026)
- OpenStax, Anatomy and Physiology 2e, 12.2 Nervous Tissue (cono axónico, segmento inicial y zona de disparo, botones sinápticos, células de Schwann y oligodendrocitos). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-2-nervous-tissue (consultado el 16 de octubre de 2026)
- OpenStax, Anatomy and Physiology 2e, 12.5 Communication Between Neurons (calcio y fusión de vesículas, hendidura sináptica, sumación en el cono axónico). https://openstax.org/books/anatomy-and-physiology-2e/pages/12-5-communication-between-neurons (consultado el 16 de octubre de 2026)
- Purves D et al., Neuroscience, 2nd edition, Increased Conduction Velocity as a Result of Myelination, NCBI Bookshelf (sin mielina de 0,5 a 10 m/s, con mielina hasta 150 m/s, conducción saltatoria). https://www.ncbi.nlm.nih.gov/books/NBK10921/ (consultado el 16 de octubre de 2026)
- Chudler EH, Neuroscience for Kids, Conduction Velocity, University of Washington (grupos de fibras, fibras C a unas 2,2 millas por hora). https://faculty.washington.edu/chudler/cv.html (consultado el 16 de octubre de 2026)
- Washington University Neuromuscular Disease Center, Peripheral axons: characteristics (velocidad de aproximadamente 5,7 × diámetro, relación g de 0,6 a 0,7, internodo de aproximadamente 100 × diámetro, unos 25 µs entre nodos). https://neuromuscular.wustl.edu/nother/axon.htm (consultado el 16 de octubre de 2026)
- Hodgkin AL, Huxley AF. A quantitative description of membrane current and its application to conduction and excitation in nerve. Journal of Physiology 117, 500 (1952). https://pmc.ncbi.nlm.nih.gov/articles/PMC1392413/ (consultado el 16 de octubre de 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1963, summary (Eccles, Hodgkin, Huxley). https://www.nobelprize.org/prizes/medicine/1963/summary/ (consultado el 16 de octubre de 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1936, summary (Dale, Loewi, transmisión química). https://www.nobelprize.org/prizes/medicine/1936/summary/ (consultado el 16 de octubre de 2026)
- Hodgkin AL, Huxley AF. Action potentials recorded from inside a nerve fibre. Nature 144, 710 (1939). doi:10.1038/144710a0 (consultado el 18 de octubre de 2026)
- Young JZ. Structure of nerve fibres and synapses in some invertebrates. Cold Spring Harbor Symposia on Quantitative Biology 4, 1 (1936). doi:10.1101/SQB.1936.004.01.001 (consultado el 18 de octubre de 2026)
- Narahashi T, Moore JW, Scott WR. Tetrodotoxin blockage of sodium conductance increase in lobster giant axons. Journal of General Physiology 47, 965 (1964). doi:10.1085/jgp.47.5.965 (consultado el 18 de octubre de 2026)
- Noda M et al. Primary structure of Electrophorus electricus sodium channel deduced from cDNA sequence. Nature 312, 121 (1984). doi:10.1038/312121a0 (consultado el 18 de octubre de 2026)
- Doyle DA et al. The structure of the potassium channel: molecular basis of K⁺ conduction and selectivity. Science 280, 69 (1998). doi:10.1126/science.280.5360.69 (consultado el 18 de octubre de 2026)
- Skou JC. The influence of some cations on an adenosine triphosphatase from peripheral nerves. Biochimica et Biophysica Acta 23, 394 (1957). doi:10.1016/0006-3002(57)90343-8 (consultado el 18 de octubre de 2026)
- Neher E, Sakmann B. Single-channel currents recorded from membrane of denervated frog muscle fibres. Nature 260, 799 (1976). doi:10.1038/260799a0 (consultado el 18 de octubre de 2026)
- del Castillo J, Katz B. Quantal components of the end-plate potential. Journal of Physiology 124, 560 (1954). doi:10.1113/jphysiol.1954.sp005129 (consultado el 18 de octubre de 2026)
- Adrian ED, Zotterman Y. The impulses produced by sensory nerve-endings, part 2. Journal of Physiology 61, 151 (1926). doi:10.1113/jphysiol.1926.sp002281 (consultado el 18 de octubre de 2026)
- Tasaki I. The electro-saltatory transmission of the nerve impulse and the effect of narcosis upon the nerve fiber. American Journal of Physiology 127, 211 (1939). doi:10.1152/ajplegacy.1939.127.2.211 (consultado el 18 de octubre de 2026)
- Huxley AF, Stämpfli R. Evidence for saltatory conduction in peripheral myelinated nerve fibres. Journal of Physiology 108, 315 (1949). doi:10.1113/jphysiol.1949.sp004335 (consultado el 18 de octubre de 2026)
- Hursh JB. Conduction velocity and diameter of nerve fibers. American Journal of Physiology 127, 131 (1939). doi:10.1152/ajplegacy.1939.127.1.131 (consultado el 18 de octubre de 2026)
- Xu K, Terakawa S. Fenestration nodes and the wide submyelinic space form the basis for the unusually fast impulse conduction of shrimp myelinated axons. Journal of Experimental Biology 202, 1979 (1999). doi:10.1242/jeb.202.15.1979 (consultado el 18 de octubre de 2026)
- Vickery HSF, Smith PA. Surface electromyography reveals males have a slower patellar reflex than females. Journal of Electromyography and Kinesiology 22, 990 (2012). doi:10.1016/j.jelekin.2012.06.001 (consultado el 18 de octubre de 2026)
- Frijns CJM, Laman DM, van Duijn MAJ, van Duijn H. Normal values of patellar and ankle tendon reflex latencies. Clinical Neurology and Neurosurgery 99, 31 (1997). doi:10.1016/s0303-8467(96)00593-8 (consultado el 18 de octubre de 2026)
- Washington University Neuromuscular Disease Center, Tendon reflexes (latencia del reflejo H de unos 30 ms, aumenta con la estatura). https://neuromuscular.wustl.edu/mother/reflex.html (consultado el 18 de octubre de 2026)
- Napper RMA, Harvey RJ. Number of parallel fiber synapses on an individual Purkinje cell in the cerebellum of the rat. Journal of Comparative Neurology 274, 168 (1988). doi:10.1002/cne.902740204 (consultado el 18 de octubre de 2026)
- Azevedo FAC et al. Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513, 532 (2009). doi:10.1002/cne.21974 (consultado el 18 de octubre de 2026)
- Spruston N. Pyramidal neurons: dendritic structure and synaptic integration. Nature Reviews Neuroscience 9, 206 (2008). doi:10.1038/nrn2286 (consultado el 18 de octubre de 2026)
- Euler T et al. Retinal bipolar cells: elementary building blocks of vision. Nature Reviews Neuroscience 15, 507 (2014). doi:10.1038/nrn3783 (consultado el 18 de octubre de 2026)
- Somogyi P. A specific axo-axonal interneuron in the visual cortex of the rat. Brain Research 136, 345 (1977). doi:10.1016/0006-8993(77)90808-3 (consultado el 18 de octubre de 2026)
- Gerfen CR, Surmeier DJ. Modulation of striatal projection systems by dopamine. Annual Review of Neuroscience 34, 441 (2011). doi:10.1146/annurev-neuro-061010-113641 (consultado el 18 de octubre de 2026)
- Ascoli GA, Donohue DE, Halavi M. NeuroMorpho.Org: a central resource for neuronal morphologies. Journal of Neuroscience 27, 9247 (2007). doi:10.1523/JNEUROSCI.2055-07.2007 (consultado el 18 de octubre de 2026)
- Korn H, Faber DS. The Mauthner cell half a century later. Neuron 47, 13 (2005). doi:10.1016/j.neuron.2005.05.019 (consultado el 18 de octubre de 2026)
- Piccolino M. Animal electricity and the birth of electrophysiology: the legacy of Luigi Galvani. Brain Research Bulletin 46, 381 (1998). doi:10.1016/S0361-9230(98)00026-4 (consultado el 18 de octubre de 2026)
- Schmidgen H. Of frogs and men: the origins of psychophysiological time experiments, 1850 to 1865. Endeavour 26, 142 (2002). doi:10.1016/S0160-9327(02)01466-7 (consultado el 18 de octubre de 2026)
- Seyfarth EA. Julius Bernstein (1839 to 1917): pioneer neurobiologist and biophysicist. Biological Cybernetics 94, 2 (2006). doi:10.1007/s00422-005-0031-y (consultado el 18 de octubre de 2026)
- NobelPrize.org, The Nobel Prize in Physiology or Medicine 1906, 1932, 1944, 1970, 1991 and 2000, and in Chemistry 1997 and 2003, summaries. https://www.nobelprize.org/prizes/medicine/1991/summary/ (consultado el 18 de octubre de 2026)
- National Institute of Neurological Disorders and Stroke (NINDS), Multiple sclerosis; Guillain-Barré syndrome; Myasthenia gravis; Parkinson's disease; Amyotrophic lateral sclerosis. https://www.ninds.nih.gov/health-information/disorders/multiple-sclerosis (consultado el 18 de octubre de 2026)
Texto y simulación: CC BY-NC-SA 4.0, salvo que se indique lo contrario.
Más exposiciones
Latido del corazón: modelo interactivo paso a paso
Tu corazón expulsa unos 70 mL de sangre en cada latido y, al ritmo de reposo, lo hace unas 108 000 veces al día.

CRISPR-Cas9 interactivo: simulador de edición genética
Un ARN guía lee solo 20 letras de ADN, y eso suele bastar para elegir un único punto entre los 3000 millones de pares de bases de un genoma humano.

ATP sintasa: explora cómo funciona su rotor molecular
En las mitocondrias, el rotor de la ATP sintasa gira unas 100 veces por segundo. Cada vuelta completa libera tres moléculas de ATP.
Paseo por dentro de una célula: animal, vegetal y bacteria
Agrandada un millón de veces, una mitocondria tiene más o menos el tamaño de un sofá, una E. coli entera mide 2 m y la cinesina que remolca una vesícula a tu lado camina a 0,8 metros por segundo.
RCP, DEA, atragantamiento y extintor: practica paso a paso
Empuja de 100 a 120 veces por minuto, a unos 5 cm de profundidad: con un testigo que lo hizo, la supervivencia en Corea en 2024 fue 2,36 veces mayor.
Tiempo de reacción: prueba tus reflejos en milisegundos
La luz de la pantalla llega casi al instante al ojo, pero el dedo se mueve una quinta parte de segundo después. Casi todo transcurre en la cabeza.