図 59しくみ館
DNA 複製のしくみ:3D で見る岡崎フラグメント
DNA ポリメラーゼは鎖の一端にしか付加できないため、各複製フォークでは一方の新しい鎖がひと続きに、もう一方が短い断片として伸びます。
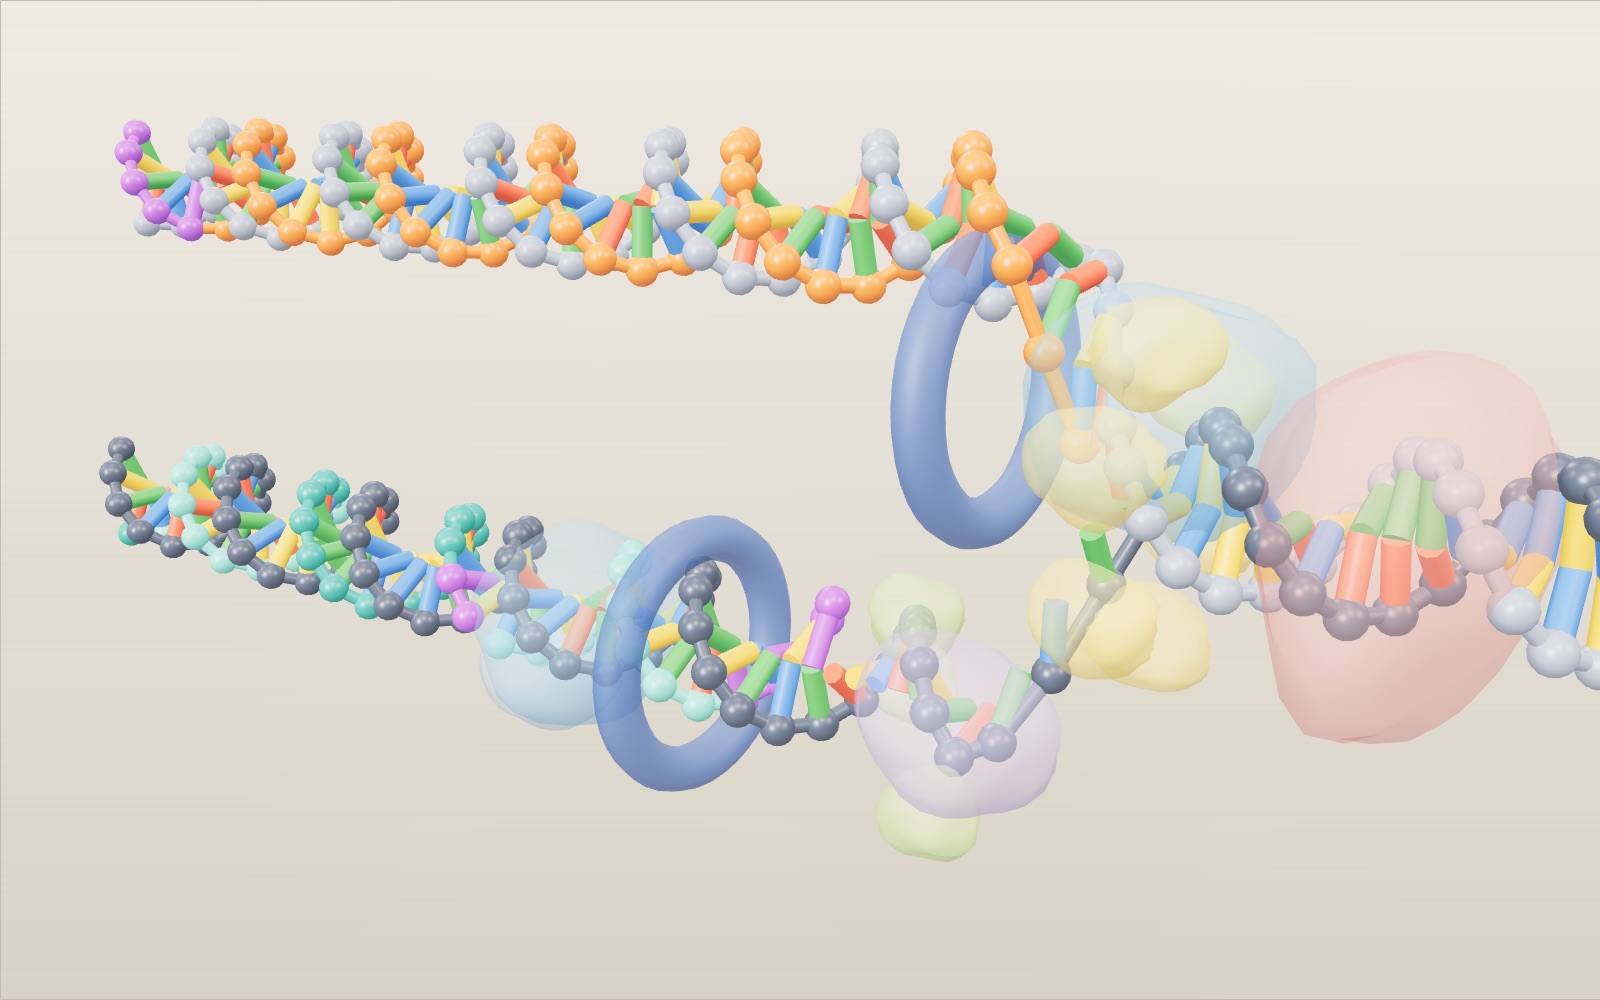
この端末では 3D を表示できません。下の解説のステップを文章で読むことができます。
1 / 11 縮尺どおりの 84 塩基対この部分は長さ約 29 nm です。下の棒が縮尺を示します。溶液中では一回転が 10.5 塩基対(3.57 nm)で、教科書では丸めて 10 塩基対、3.4 nm とします。配列は模型用に作ったものです。
ドラッグで回転、ホイールか二本指で拡大します。
細胞は分裂前に DNA をどう複製するのでしょうか
DNA 複製のしくみは、移動する Y 字形のフォークで進むいくつかの段階から成ります。ヘリカーゼが二重らせんをほどき、プライマーゼが短い RNA プライマーを作ります。DNA ポリメラーゼは 3′ 末端にしかヌクレオチドを付加できないため、リーディング鎖はひと続きに伸びる一方、ラギング鎖は岡崎フラグメントとして後ろ向きに作られ、その後 DNA ポリメラーゼ I とリガーゼがプライマーを DNA に置き換えて切れ目をつなぎます。ヒトのフォークは毎秒 50〜100 ヌクレオチドを複製し、ヒトの細胞は約 8〜10 時間の S 期に 64 億塩基対を複製します。
手の切り傷が治るのは皮膚の細胞が分裂するためで、新しい細胞はそれぞれ完全な DNA 一式を必要とします。ヒトの細胞では、二つに分かれる前に約 60 億塩基対を複製することになります。複製を担うのは、複製フォークと呼ばれる、移動する Y 字形の接合部で働くタンパク質の集まりです。らせんをほどき、新しい鎖を作り始め、塩基を一つずつ付け、自分の間違いを見つけ、残された断片をつなぐ必要があります。
この展示は一つのフォークを分子のスケールで再現します。舞台には 84 塩基対の DNA が横たわっています。ヘリカーゼがそれを開き、プライマーゼが短い RNA の出発点を作り、二つの DNA ポリメラーゼが新しい鎖を合成し、DNA ポリメラーゼ I と DNA リガーゼがラギング鎖を仕上げ、最後には二つの二重らせんが離れます。最初の視点は、らせんをほどくヘリカーゼのすぐそばです。黄色いヘリカーゼの環をドラッグすると自分でフォークを引けます。「次の塩基を対合」を押すとポリメラーゼのように塩基を入れられ、酵素をタップするとその仕事を読めます。スライダーで過程の位置を動かし、「速度」で進む速さとそれに伴う岡崎フラグメントの長さを変え、「校正」でポリメラーゼが確認をやめた場合に何が起こるかを見られます。事実の出典は OpenStax の生物学教科書、Nature Education、米国国立ヒトゲノム研究所(NHGRI)、Meselson と Stahl による 1958 年の原著論文です。参考資料は末尾に示します。
模型のスケールで見る二重らせん
DNA は二本の鎖が互いに巻き付いたものです。各鎖は糖とリン酸の連なりで、各糖には A、C、G、T の四つの塩基のいずれかが付いています。一方の鎖の A は他方の T と対になり、C は G と対になります。この規則が複製を可能にします。鎖を離せば、それぞれに相手を再構築するための情報がすべて含まれているからです。模型では A は緑、T は赤、G は黄、C は青です。RNA は T の代わりに U を使い、U は紫です。
隣り合う塩基対の間隔は 0.34 nm、らせんの幅は 2 nm です。教科書ではよく、らせんは 10 塩基対ごと、つまり 3.4 nm ごとに一回転すると説明します。この数値は DNA 繊維の X 線像に由来します。細胞内と同様の溶液中で測ると、DNA の巻き方は少し緩く、James Wang は 1979 年に一回転当たり 10.4 塩基対と求め、最もよく使われる値は 10.5 です。模型は 10.5 を使うので、一回転は 10.5 × 0.34 = 3.57 nm です。模型の下の二本の棒は、模型の一回転と、比較用の教科書の 3.4 nm の両方を示します。模型全体の長さは 84 × 0.34 = 28.6 nm です。
二本の鎖は逆向きに走っています。化学では各糖の炭素原子に番号を付け、それにちなんで鎖の末端を 5′ と 3′ と呼びます。左から右へ 5′ から 3′ に走る鎖は、右から左へ 5′ から 3′ に走る鎖と対になります。この逆平行という性質が、フォークで起こることの大半を決めます。
らせんを開き、開いたままにするもの
DNA を開く酵素はヘリカーゼです。ATP のエネルギーを使って、対になった塩基間の水素結合を切ります。その働く場所で二重らせんが二本の一本鎖に分かれ、複製フォークという形ができます。模型のヘリカーゼは鎖の分かれ目にある黄色い環で、フォークが進むにつれて移動します。
ねじれた二本の鎖を引き離すと副作用があります。ねじれたロープの一端で繊維を引き離すとロープがよじれるように、フォーク前方の DNA はさらに強く巻かれます。OpenStax は、トポイソメラーゼがフォーク前方のらせんに一時的な切れ目を入れて再びつなぎ、過剰な巻き付きを防ぐと説明しています。模型では、ヘリカーゼより数回転先の、まだ開いていない DNA にあるピンク色の塊です。
開いた一本鎖は放置すると再び対合します。一本鎖 DNA 結合タンパク質がそれを覆い、ポリメラーゼが来るまで離しておきます。模型では小さな緑色の塊です。集まる場所を見ると、ほぼすべてが下側の鋳型にあります。この鎖は複製されるまで最も長く待つためです。その理由は次に説明します。
ポリメラーゼにプライマーが必要な理由
DNA ポリメラーゼは、鋳型の向かい側の塩基に合うヌクレオチドを一つずつ付加します。新しい結合を作るエネルギーは、三リン酸として入ってくるヌクレオチド自体が供給します。しかし、この酵素には厳しい制限が二つあります。鎖の 3′ 末端にしか付加できず、すでに鎖が存在している必要があります。何もないところから始めることはできません。
プライマーゼが開始の問題を解決します。これは RNA ポリメラーゼであり、RNA ポリメラーゼは相手の鎖なしに新しい鎖を作り始められます。プライマーゼは鋳型に相補的な短い RNA を作り、OpenStax によると長さは約 5〜10 ヌクレオチドです。このプライマーが DNA ポリメラーゼに伸長可能な遊離の 3′ 末端を与えます。模型ではプライマーは 5 ヌクレオチドで、紫色の玉として描かれます。左端の一つのプライマーが上側の新しい鎖を開始します。下側の新しい鎖には新たなプライマーが繰り返し必要です。
一方向という制約が二本の鎖に与える影響
ポリメラーゼは 3′ 末端にしか付加できないため、新しい鎖はすべて 5′ から 3′ へ伸びます。二本の鋳型を見てください。上側の鋳型では、新しい鎖の 5′ から 3′ の向きがフォークを向いています。ポリメラーゼはヘリカーゼを追い、鋳型がさらに露出するにつれて同じ鎖への付加を続けられます。この連続した鎖がリーディング鎖で、模型ではオレンジ色をしており、一つのプライマーから作られます。
下側の鋳型では、新しい鎖はフォークから離れる逆向きに走る必要があります。フォークが開くと、新たな鋳型はポリメラーゼの前ではなく後ろに現れます。これを複製するには、フォークの近くで新しい断片を作り始め、先に作った断片に出会うまで後ろ向きに伸ばすしかありません。各断片が岡崎フラグメントで、それらからできる鎖がラギング鎖です。模型では青緑色で、断片を交互に二つの濃さで示しています。
「操作」タブの「塩基対の色」をオフにすると、これがよく分かります。古い鎖は灰色になり、二種類の新しい鎖はそれぞれの色を保ちます。リーディング鎖は長い一本のオレンジ色の線です。ラギング鎖は短い青緑色の断片の列で、各断片の右端に紫色のプライマーがあります。
ラギング鎖の岡崎フラグメント
ラギング鎖では同じ周期が繰り返されます。プライマーゼがフォークの近くにプライマーを作ります。ラギング鎖のポリメラーゼは環状のスライディングクランプで DNA 上に保持され、そのプライマーをフォークから離れる方向に、前の断片にぶつかるまで伸ばします。その後離れて次のプライマーへ移ります。模型では、二つ目のポリメラーゼと濃い青色のクランプが各断片を仕上げた後、フォーク側へ跳び戻る様子を見られます。
実際の断片は模型の 14 ヌクレオチドよりはるかに長いものです。Balakrishnan と Bambara の総説では、岡崎フラグメントは細菌では約 1,200 ヌクレオチド、真核細胞では約 200 にすぎず、真核細胞での長さはヌクレオソームの間隔に従うとしています。模型では複数を一度に画面に収めるため短くしています。数値表示の「岡崎」の行は、作り始めた断片数と隣の断片につないだ数の二つを数えます。
プライマーを DNA に置き換えて切れ目をつなぐ
完成した断片にも一端には RNA が残っていますが、新しい DNA 鎖に RNA が含まれてはいけません。細菌では DNA ポリメラーゼ I がエキソヌクレアーゼ活性で各プライマーを除去し、その後ろの断片の DNA を出発点として隙間を DNA で埋めます。真核細胞では別の方法を取り、ポリメラーゼ δ がプライマーを押し出してフラップを作り、フラップエンドヌクレアーゼ 1(FEN1)が切り取ります。RNase H もプライマー除去に寄与することがありますが、RNase H と FEN1 は異なる酵素です。模型は細菌の場合を示し、淡い青色の酵素が紫色の玉を青緑色に変えます。
置換後、二つの DNA 断片は端同士が並んでいますが、まだつながっていません。ホスホジエステル結合が一つ欠けており、この切れ目をニックと呼びます。DNA リガーゼが一方の断片の 3′ 末端と次の断片の 5′ 末端の間にその結合を作ります。模型ではオレンジ色のリガーゼが一瞬ニック上に止まり、環が光り、骨格のつながりが現れます。このとき連結済みの数が増えます。
ポリメラーゼが誤った塩基を取り除くしくみ
ポリメラーゼはときどき誤った塩基を入れます。Nature Education によると、その割合は約 10 万ヌクレオチドに一つです。誤った塩基はらせんになじまず、その 3′ 末端は次の付加に適さない位置になります。ポリメラーゼはそれに気付き、後戻りし、3′ から 5′ のエキソヌクレアーゼ活性で誤ったヌクレオチドを切り取り、正しいものを入れます。これが校正で、OpenStax は、ポリメラーゼが次の塩基を加える前に、直前に加えた塩基を確認する働きだと説明しています。
模型のリーディング鎖には二つの誤りが仕込まれ、G の向かいに T、T の向かいに G が入ります。どちらも Nature Education が説明する誤対合の一種、ゆらぎ塩基対です。「校正」がオンだとポリメラーゼはそれぞれで停止し、誤った塩基が赤紫色になって外へ振れ、消えてから置き換わります。停止中はヘリカーゼも待つため、フォークの進行が遅れます。「校正」をオフにして同じ部分を再生してください。フォークは各地点に早く到達し、「岡崎」の数も先行しますが、二つの誤った塩基は赤紫色の環で囲まれて新しい鎖に残り、数値表示に残存数が示されます。
数値を確かめる
模型の初期速度は毎秒 5 塩基対です。OpenStax によるとヒトの複製フォークは毎秒 50〜100 ヌクレオチドで進み、Nature Education は約 40 としています。したがって模型は実際のヒトのフォークより約 10〜20 倍遅く動きます。細菌のフォークははるかに速く、大腸菌は二つのフォークで 460 万塩基対の染色体を約 42 分で複製するため、各フォークで毎秒およそ 1,000 ヌクレオチドとなります。
ヒトのフォーク一つでゲノム全体を複製できるでしょうか。毎秒 50 ヌクレオチドでは、60 億塩基対に 60 億 ÷ 50 = 1 億 2000 万秒、ほぼ四年かかります。細胞は多くのフォークを同時に開始してこれを避けます。OpenStax は、ヒトには最大 10 万の複製起点があるとしています。NHGRI は、ヒトの一細胞の複製時間を数時間としています。
誤りも同じように積み重なります。60 億塩基対の複製では、各鋳型塩基の向かいに一つずつ、約 120 億の新しいヌクレオチドを置きます。10 万に一つの誤りなら、確認前には一分裂当たり約 12 万の誤った塩基になります。校正が約 99 パーセントを直し、およそ 1,200 が残ります。複製後のミスマッチ修復がさらに数を減らします。模型の 84 塩基対に仕込んだ 2 つの誤りは現実より極端に多く、修正が起こる様子を見せるためにあります。
模型で省略しているもの
模型は一つのフォークを示します。実際の複製は起点で始まり、二つのフォークが離れて進む複製バブルを開きます。大腸菌の二つのフォークは環状染色体を逆方向に進んで出会い、それぞれ円のおよそ半分を複製します。模型の断片とプライマーは短くしてあり、誤りは固定した場所に二つだけ仕込んであります。
タンパク質は実測の形ではなく柔らかい塊で、DNA を追えるよう半透明にしています。配置は教科書の図に従い、トポイソメラーゼはフォーク前方、一本鎖 DNA 結合タンパク質は裸の鋳型上、クランプの環は各ポリメラーゼの隣で新しい二重らせんを囲みます。二つのポリメラーゼは各新生鎖を追いやすいよう別々の塊として描いています。左端のリーディング鎖プライマーも残しています。これを除くはずのフォークが左の画面外にあるためです。
タンパク質名は細菌に従います。DNA ポリメラーゼ III が主な複製を行い、DNA ポリメラーゼ I がプライマーを置換します。真核細胞は同じ段階に別の酵素を使い、リーディング鎖には pol ε、ラギング鎖には pol δ、クランプには PCNA、プライマー処理には FEN1 と、それに寄与する RNase H を使います。またフォークが通過するときヒストンを取り除いて再配置する必要があり、OpenStax はこれが真核細胞のフォークが遅い理由の一部だと示唆しています。
舞台の数値のいくつかは模型の値です。断片長は「速度」に画面時間のプライミング間隔 2.8 秒を掛け、7〜36 ヌクレオチドに制限したもので、5 bp/s では 14 nt になります。手で塩基を対合させるとフォークは一塩基対進み、プログラムされた二つの誤りを飛ばすため、誤りになるのは自分の選択だけです。舞台下の計算機は、等間隔の起点がすべて同時に開始し、フォークが一度も止まらないと仮定し、70 kg の成人の細胞交代数を体重に比例させます。
新しいらせんに古い鎖が一本残ると分かった経緯
James Watson と Francis Crick は 1953 年に二重らせんを発表したとき、対合規則が複製機構を示唆すると述べました。その働き方には三つの案がありました。半保存的複製では、新しい各らせんが古い鎖一本を保ち、新しい鎖一本を得ます。保存的複製では古いらせんが丸ごと残り、その隣に完全に新しいものが作られます。分散的複製では両方の鎖に沿って古い DNA と新しい DNA が断片状に混ざります。
カリフォルニア工科大学の Matthew Meselson と Franklin Stahl が 1958 年にこれらを検証しました。窒素が重い同位体の窒素-15 だけである培地で大腸菌を何世代も育て、その後通常の窒素-14 に移して、分裂に合わせて試料を取りました。塩化セシウム密度勾配中で遠心すると DNA は密度が溶液と一致する場所に落ち着くため、重い DNA と軽い DNA は別々の帯になります。切り替え前には重い帯が一本ありました。一世代後には重い位置と軽い位置の中間に一本だけ帯が現れ、保存的複製は否定されました。二世代後には混成と軽いものの二本の帯が現れ、分散的モデルが否定されました。新しいらせんはそれぞれ古い鎖一本を保っていました。「操作」タブの「Meselson と Stahl」をオンにすると、数値表示にこの三本の試験管が現れます。
ラギング鎖の断片は岡崎令治と共同研究者が発見し、1968 年に、新たな DNA はまず短い断片として現れ、後に長い鎖につながると報告しました。酵素そのものはそれ以前に試験管内で研究されていました。Arthur Kornberg と Severo Ochoa は、ノーベル委員会の言葉で「リボ核酸およびデオキシリボ核酸の生物学的合成の機構の発見」により、1959 年のノーベル生理学・医学賞を共同受賞しました。
いくつのフォークならヒトゲノムを数時間で複製できるでしょうか
フォークの速度は単位時間当たりに鋳型上を進む距離であり、細胞内の全ポリメラーゼの出力を合計したものではありません。一定の 1,000 nt/s と仮定すると、細菌の二つのフォークは一秒当たり親染色体の 2,000 塩基対を進みます。したがって 460 万bp の染色体には 460 万÷ 2,000 = 2,300 秒、約 38 分が必要です。教科書の約 42 分は、この丸めた入力値と矛盾しません。この計算は細菌の細胞分裂間の時間を予測するものではありません。良好な増殖条件では、細菌は前の複製が終わる前に次の複製を始められます。
ヒトの例として、丸めた一倍体ゲノム 32 億 bp を使い、等間隔の 1 万の起点がすべて同時に開始すると仮定します。各起点から 50 nt/s のフォークが二つ出るので、20,000 のフォーク、全体では 100 万bp/s の進行速度となります。ゲノム長をこの速度で割ると 3,200 秒、約 53 分です。起点間は平均 32 万bp で、各フォークは隣のフォークと出会うまでその半分を進みます。16 万÷ 50 からも同じ答えが出ます。
意図的に理想化したこの計算は、実際のヒト細胞に必要な数時間より短くなります。起点はすべて同時には開始せず、染色体の領域ごとに複製時刻が異なり、フォークはクロマチンなどの障害に出会います。同じ仮定で同時に活動する起点が 2,000 だけなら、16,000 秒、約 4.4 時間となります。これらの起点数は仮定の例であり、特定組織の測定値ではありません。この比較は、潜在的な起点を数えるだけでは S 期の長さを決められない理由を説明します。
ヒトの体細胞の大半は染色体を二組持ちます。同じ丸め方では、一倍体の 32 億 bp ではなく 64 億 bp を複製することになります。DNA 量と活動中の起点数を両方二倍にすれば、理想的な完了時間は変わりません。先の 60 億という値は、より粗く近似した二倍体の値であり、塩基対を数える規則が違うわけではありません。
誤ったヌクレオチドから持続する変異まで
誤挿入、校正を逃れたミスマッチ、修復後に残った変異は、それぞれ別の数です。Fijalkowska らの総説は有用な細菌の例を示し、初期の挿入誤りが約 10⁻⁵、校正後の通過率が約 10⁻²、ミスマッチ修復後が約 10⁻³ としています。掛け合わせると、一回の複製で複製塩基当たり 10⁻¹⁰ の誤りになります。これはミスマッチや配列による近似的な寄与であり、すべてのポリメラーゼに共通する普遍定数ではありません。
計算練習では、先の丸めた二倍体 60 億 bp のゲノムを引き続き使います。両方の親鎖を複製すると約 120 億の新しいヌクレオチドが取り込まれます。10⁻⁵ では初期の誤りが 12 万、校正後の 10⁻⁷ では 1,200 になります。最終的な割合が 10⁻⁹ なら複製産物全体に残る誤りの期待値は 12、10⁻¹⁰ なら 1.2 です。小数の期待値は多数の分裂での平均を表します。細胞が変更された塩基を小数個持てるわけではありません。校正だけで 10⁻⁵ から 10⁻⁹ や 10⁻¹⁰ への減少全体を説明することはできません。
これらの説明用の合計を、ヒトの分裂のたびに必ずその数の変異が生じるという主張に変えてはいけません。ミスマッチの二本の鎖には、まだ矛盾する指示が含まれています。修復で除去されることも、後の複製によって変わった配列が子孫に定着することもあります。産物は娘細胞にも分かれます。DNA 損傷、細胞の種類、各酵素の正確さが観測される変異数に影響します。画面の固定した二つの誤りは修正の順序を試すもので、変異率の分布を試すものではありません。再生しても別の細胞を抽出するわけではありません。
仕上げるべき断片はいくつあるのでしょうか
断片長は必要な DNA 複製量を変えずに作業量を変えます。総説の細菌断片長の近似値 1,200 nt を使うと、460 万bp の環状染色体のラギング鎖分は、およそ 460 万÷ 1,200、約 3,800 断片です。なぜ染色体長の二倍を割らないのでしょうか。各フォークでは、新しく作る二本のうち一本がラギング鎖です。両フォークを合計すると、不連続に作る長さは染色体の約一本分であって、新しい二本の鎖の合計ではありません。
丸めた二倍体ヒトゲノムを 64 億 bp、断片の平均を 200 nt とすると、対応する推定値は 3200 万断片です。末端の影響や領域間の違いのため、これらの割り算は正確な個数にはなりません。それでも、プライマー除去と連結がまれな仕上げ作業ではあり得ない理由を示します。細胞は一回の S 期に何百万もの接合部を処理する必要があります。真核細胞の短い断片はヌクレオソーム構造に関連するのであって、ヒトのポリメラーゼが 200 ヌクレオチドしか合成できず、その後すべての活性を失うという意味ではありません。
展示では各断片を 14 nt、各プライマーを 5 nt に縮めています。そのため、断片中でプライマーの占める割合が生物の例よりはるかに大きくなります。画面の紫色の玉の割合から染色体の RNA 量を推定してはいけません。代わりに、プライマーが出発点を与え、DNA がプライマーを置き換え、リガーゼが残った骨格のニックを閉じるという順序を見てください。リガーゼは自分で鋳型を読んで、長く欠けた DNA を埋めるわけではありません。
染色体末端と PCR は異なる問題を解決します
通常のラギング鎖の周期では、プライマーを除くときに隣の断片が伸長可能な 3′ 末端を提供することに依存します。直鎖状染色体の端では、この配置がなくなります。テロメアは染色体末端の反復 DNA と、それに付随する保護タンパク質です。テロメラーゼが活動する細胞では、その酵素が自分の RNA を鋳型として DNA 末端を伸ばし、その後ほかの複製装置が相補的な DNA を複製できます。テロメラーゼはゲノム全体を複製せず、染色体の両端を単に接着するものでもありません。この展示のフォークは内部の一部分なので、最後に分離する場面はテロメア短縮のシミュレーションではありません。
テロメアの減少も、分裂回数から人の年齢を教える正確な時計ではありません。NHGRI は、ある種の分裂細胞での短縮と反復配列の補充を説明しています。これらの過程は細胞ごとに異なります。末端複製問題の説明は、テロメラーゼを増やせば安全な抗老化治療になるという証拠ではありません。
PCR は細胞外で選んだ DNA 領域を複製します。NHGRI の説明では、加熱で鋳型鎖を離し、温度サイクルを繰り返す間に耐熱性ポリメラーゼが新しい DNA を合成します。標準的な PCR 反応では、加えた DNA プライマーが標的の境界を決めます。移動するフォークでプライマーゼが RNA プライマーを作り続けるわけではありません。加熱はヘリカーゼの鎖を開く役割に代わりますが、細胞の複製装置のすべての仕事を代行するわけではありません。
理想的に倍増すると仮定すると、20 サイクルで出発点の二本鎖鋳型一つから 2²⁰ = 1,048,576 コピーができます。これは理論上の掛け算であり、実験室での収量の保証ではありません。試薬が不足し始め、増幅効率も完全ではないためです。また PCR が増幅するのは選んだ標的で、細胞の全染色体を自動的に複製するわけではありません。展示の「速度」は PCR の温度サイクルを表していません。
フォークを引き、自分で塩基を対合させる
ヘリカーゼの環は装置全体の取っ手です。らせんに沿ってドラッグすると、引いた分だけフォークが開き、親鎖が離れ、露出した鋳型に結合タンパク質が付き、ポリメラーゼが続きます。「速度」は手の動きに従うため、素早く引くと上限の 20 bp/s に設定できます。逆に引いても何も起きません。実際のヘリカーゼは ATP のエネルギーを使って一本の鎖を一方向に進み、反対方向は同じ起点から出る二つ目のフォークが担当します。
「次の塩基を対合」では、自分がリーディング鎖のポリメラーゼになります。フォークが止まり、白い玉が新しい鎖の次の空所を、赤い環がその向かいの鋳型塩基を示します。四つのボタンで A、T、G、C を選べます。正解は A と T、G と C の対合規則に従い、鎖が一塩基対伸びます。誤った選択は一瞬残った後、「校正」がオンならポリメラーゼが一つ戻り、3′ から 5′ のエキソヌクレアーゼと同様に切り取って正しい塩基を入れます。「校正」がオフなら誤った塩基は環で囲まれて残り、複製物にミスマッチが含まれます。
実際のポリメラーゼは文字を読んで選びません。入ってくるヌクレオチドは活性部位で正しい対の形に合う必要があり、誤った対は合わず、付加がはるかに遅くなります。それでも校正前には約 10 万回に一回の付加が誤るため、20 回連続正解しても信頼できる複製装置の証明にはなりません。対合ゲームを使うと自動再生は止まり、選択中は時計が止まります。位置 24 と 54 のプログラムされた誤りは飛ばされます。
舞台のタンパク質かその名札をタップすると、仕事の説明を読めます。カードは部品一覧を短く繰り返すので、舞台を離れずにフォーク前方のトポイソメラーゼ、ラギング鎖鋳型上のプライマーゼ、クランプ付きの二つのポリメラーゼ、DNA ポリメラーゼ I、リガーゼを確認できます。
フォークが速いほど断片が長くなる理由
プライマーゼは DNA の固定した場所でプライマーを開始するわけではありません。大腸菌では溶液から来てヘリカーゼに出会い、プライマーを作って離れます。Tougu と Marians は 1996 年、この出会いが約 1〜2 秒ごとに起こり、断片長を決めると示しました。その間、フォークは毎秒約 1,000 ヌクレオチド進みます。毎秒 1,000 ヌクレオチドで 1〜2 秒に一断片なら、断片は 1,000〜2,000 ヌクレオチドとなり、細菌で測定された約 1,200 と合います。
模型は遅い時計で同じ考えを保ちます。画面時間の 2.8 秒ごとに新しいプライマーを開始するため、断片長は「速度」に 2.8 を掛けたものです。初期値の 5 bp/s では 14 nt となり、84 塩基対に 6 断片ができます。13 bp/s 以上では断片は 36 nt で 2 個だけ入り、3 bp/s では 8 nt で 12 個です。3 bp/s 未満では 5 nt のプライマーの後に DNA の余地を残すため、最短断片を 7 nt に保ちます。途中で「速度」を変えると、最初からその速度で進んだかのようにラギング鎖全体が描き直されます。
もう一つの規則はどの速度でも変わりません。各断片は RNA で始まり、前の断片に接して終わり、接合のたびに DNA ポリメラーゼ I とリガーゼが必要です。したがって、多数の短い断片を作る遅いフォークほど、除くべきプライマーと閉じるべきニックを多く残します。真核細胞ではヌクレオソームの間隔に従うため断片が短く、約 200 ヌクレオチドです。ヒトの細胞は S 期ごとに何千万もの断片を仕上げます。
ヒトの細胞が DNA を複製する時間はどれくらいでしょうか
ヒトの体細胞は約 64 億塩基対、32 億を二組持ちます。毎秒 50 ヌクレオチドのフォーク一つでは、64 億 ÷ 50 = 1 億 2800 万秒、約 4 年が必要です。一つの起点から二つのフォークを出すと半分の約 2 年になります。舞台下の計算機は一つの起点から始まり、同時に開始する起点数を、OpenStax がヒトゲノムの最大値とする 10 万まで増やせます。
毎秒 50 ヌクレオチドなら 2,223 起点(4,446 フォーク)で 8 時間以内に終わり、毎秒 100 ヌクレオチドならその半分の 1,112 起点で足ります。1 万起点では、50 nt/s で理想時間は 107 分に下がります。Cooper の細胞生物学教科書は 24 時間ごとに分裂するヒト細胞の S 期を約 8 時間、OpenStax は約 10 時間としています。実際の細胞は計算上必要な数より多くの起点を使います。S 期を通じて起点が順番に開始し、フォークが損傷した DNA や密に詰まった DNA で止まるためです。
細菌は染色体が短くフォークが速いため、一つの起点で済みます。毎秒 1,000 ヌクレオチドの二つのフォークは、大腸菌の 460 万塩基対を 460 万÷ 2,000 = 2,300 秒、約 38 分で複製し、教科書の 42 分に近くなります。初期のショウジョウバエ胚は逆の方法を取り、細胞周期全体が約 8 分なので、密に並んだ起点から DNA を複製する必要があります。
体は一日にどれほどの DNA を複製するのでしょうか
Sender と Milo は 2021 年、成人では約 30 兆のヒト細胞のうち一日に約 3300 億が入れ替わり、その 90 パーセント近くが血球だと推定しました。新しい細胞はそれぞれ完全な DNA のコピーを持つため、毎日少なくとも同じ数のゲノムコピーが作られます。一コピーは 64 億塩基対で、一塩基対 0.34 nm なら約 2.2 m の DNA です。
70 kg の成人で掛け合わせると、2.2 m のコピー 3300 億個は一日に約 7 億 1800 万km の DNA となり、地球から太陽までの 1 億 4960 万km の 4.8 倍、毎秒約 8,300 km です。舞台下の計算機は入力体重に合わせて細胞数を換算し、60 kg では一日の複製量が約 6 億 1600 万km になります。これは模型の概算値です。細胞の交代は人や年齢によって変わり、赤血球は成熟すると核を失い、新しい細胞の中には、最終的に使われる場所とは別の場所で DNA を複製する幹細胞に由来するものもあります。
この総量は複製に求められる正確さを思い起こさせます。最終的な誤り率が約 10 億に一つでも、各ゲノムコピーにはなお少数の変化が入り、その大半はタンパク質を変えない DNA に生じます。修復、細胞死、免疫系が、異常を起こした細胞の多くを取り除きます。
Watson と Crick からフォークの時計まで:短い歴史
Watson と Crick は二重らせんに関する 1953 年の論文を、塩基対合が複製機構を示唆するとの指摘で結びました。1956 年、Arthur Kornberg のグループは大腸菌の酵素 DNA ポリメラーゼ I で試験管内に DNA を作り、この研究は 1959 年のノーベル生理学・医学賞の共同受賞につながりました。1958 年、Meselson と Stahl は重い窒素を使って、新しい各二重らせんが古い鎖一本を保つことを示しました。1963 年、John Cairns は複製中の大腸菌染色体全体を撮影しました。それは長さ約 1 mm の一つの環で、フォークが動いていました。
次にラギング鎖の断片が登場します。1967 年に複数の研究室が DNA リガーゼを発見し、Martin Gellert は大腸菌抽出物がラムダ DNA の両端を閉じて環にすると示しました。1968 年、岡崎令治、岡崎恒子と共同研究者は新しい DNA を数秒間標識し、短い断片として存在し、後につながることを見いだしました。1969 年、Paula De Lucia と John Cairns はポリメラーゼ I がごく少なくても DNA を複製できる変異株を発見し、主酵素が別のポリメラーゼ III であることを示唆しました。
後の研究は舞台上の装置の残りを説明しました。Watson は 1972 年に直鎖状 DNA の末端問題を述べ、Gellert のグループは 1976 年に DNA ジャイレースを、Greider と Blackburn は 1985 年にテロメラーゼを発見しました。1992 年、Kuriyan のグループは DNA を囲む環、スライディングクランプの構造を解きました。Kary Mullis は PCR により 1993 年の化学賞を共同受賞し、1996 年には Tougu と Marians の岡崎フラグメントの時計が続き、2015 年には Lindahl、Modrich、Sancar が DNA 修復で化学賞を共同受賞しました。舞台下の図録にはそれぞれのカードと原著論文があります。
舞台で確かめること
まず複製の途中で一時停止し、「操作」の「塩基対の色」をオフにします。連続するオレンジ色のリーディング鎖を探し、次に青緑色のラギング鎖断片上の紫色のプライマーを見つけます。向きの表示を使って、新しい鎖を 5′ から 3′ にたどってください。一方のポリメラーゼはフォークへ進み、他方はそこから離れて働きますが、伸長方向は化学的には一致するはずです。「ラギング」は、この鎖が 3′ から 5′ に合成されるという意味ではありません。
次に「速度」を変えずに、「校正」をオンとオフにして同じ領域を再生します。ポリメラーゼが止まるとき、赤紫色の誤りマーカーと「複製済み」「岡崎」の表示を比べます。これでプログラムされた校正の遅延だけを取り出せます。再生の間に「速度」を変えるとアニメーションの時計も変わるため、公平な比較になりません。校正をオフにした再生が速くても、実際の細胞が修復を無効にすると得をするという証拠ではありません。
最後に「Meselson と Stahl」をオンにし、世代ごとの試験管を比べます。一世代後の中間の帯は保存的モデルを否定しますが、それだけでは分散的複製を否定しません。二世代目が区別を与えます。徐々に軽い側へずれる一本の帯ではなく、混成と軽いものの別々の帯が現れます。窒素-15 は密度標識に使う安定同位体であり、放射性トレーサーではありません。試験管が示すのは DNA の密度で、新たに合成された塩基の色ではありません。アニメーションと試験管実験は別の問いに答え、一方はフォークの作業を図解し、他方は親の物質が娘分子にどう分配されるかを検証します。
続いてヘリカーゼを速く、そしてゆっくり引き、その都度フォークを最後まで進めて「岡崎」の表示でラギング鎖断片を数えます。先に「断片数を予測」で予想してください。最後に「校正」をオンとオフにして手で塩基を対合させ、「校正」の表示を比べます。前者では誤った選択が取り除かれ、後者では残存として数えられます。
よくある質問
DNA ポリメラーゼが両方の鎖を連続して作れないのはなぜですか
3′ 末端にしかヌクレオチドを付加できないため、新しい鎖はすべて 5′ から 3′ へ伸びます。二本の鋳型は逆向きなので、開いていくフォークへ伸びられる新生鎖は一本だけです。もう一方はフォークから離れて伸びる断片として作る必要があります。
リーディング鎖とラギング鎖はどう違いますか
リーディング鎖は一つのプライマーからひと続きに作られ、ヘリカーゼを追います。ラギング鎖はそれぞれプライマーを持つ短い岡崎フラグメントとして作られ、後で DNA リガーゼによってつながれます。
プライマーが RNA でできているのはなぜですか
DNA ポリメラーゼは新しい鎖を開始できませんが、RNA ポリメラーゼであるプライマーゼならできます。短い RNA が DNA ポリメラーゼに伸長用の 3′ 末端を与えます。RNA は後で除かれ、DNA に置き換わります。
DNA ポリメラーゼはどれくらい間違えますか
Nature Education は、合成時に約 10 万ヌクレオチドに一つを誤るとしています。校正がその約 99 パーセントを修正し、複製後のミスマッチ修復がさらに見つけます。
DNA はどれくらい速く複製されますか
OpenStax によると、大腸菌では各フォークで毎秒約 1,000 ヌクレオチドです。ヒト細胞では OpenStax は毎秒 50〜100 ヌクレオチド、Nature Education は約 40 としています。多くのフォークが同時に働きます。
半保存的とはどういう意味ですか
二つの新しい二重らせんのそれぞれが、元の分子の鎖一本と新しく作られた鎖一本を含みます。Meselson と Stahl は 1958 年、重い窒素と軽い窒素でこれを示しました。
染色体の端では何が起こりますか
直鎖状染色体ではラギング鎖の最後のプライマーを DNA に置き換えられず、そのままでは分裂ごとに末端が少し短くなります。自分の RNA 鋳型を持つ酵素テロメラーゼは、それが活動する細胞で末端に TTAGGG の反復を加えます。
ラギング鎖は化学的にも逆方向へ伸びますか
いいえ。新しい鎖は両方とも 5′ から 3′ へ伸びます。不連続な鎖は独立した断片としてフォークから離れて伸びるのであり、合成方向が逆転したわけではありません。
校正だけで最終的な誤り率を説明できますか
いいえ。塩基選択、校正、ミスマッチ修復が別々に誤りを減らします。細菌の約 10⁻⁵ から 10⁻¹⁰ という例はそれらすべてを含み、ヒト細胞の普遍的な変異数ではありません。
窒素-15 は放射性ですか
いいえ。窒素の安定同位体です。Meselson と Stahl は放射性崩壊の検出ではなく DNA の密度差を追いました。
PCR は画面上のフォークと同じですか
どちらも鋳型とポリメラーゼを使いますが、標準的な PCR は加熱で鎖を離し、加えた DNA プライマーで標的を選びます。一方、模型は RNA プライマーとラギング鎖処理を伴う、ヘリカーゼで動く細胞のフォークを示します。
岡崎フラグメントの長さが違うのはなぜですか
長さはフォークの速度に対し、プライマーゼがどの頻度で新しいプライマーを開始するかで決まります。大腸菌ではフォークが毎秒約 1,000 ヌクレオチド進む間、プライマーゼは約 1〜2 秒ごとにヘリカーゼに出会うため、断片は 1,000〜2,000 ヌクレオチドとなり、真核細胞の断片は約 200 です。舞台では「速度」を上げるほど断片は少なく、長くなります。
私の体は毎日どれくらいの DNA を複製しますか
成人では一日におよそ 3300 億の細胞が入れ替わり、新しい細胞ごとに約 64 億塩基対、約 2.2 m の DNA コピーが必要です。合わせると一日に数億キロメートル、地球から太陽までの距離の数倍になります。舞台下の計算機が体重に合わせて概算します。
用語
- 複製フォーク:二重らせんが開かれて複製される Y 字形の領域です。
- ヘリカーゼ:塩基対間の水素結合を切って二本の鎖を離す酵素です。
- トポイソメラーゼ:DNA を切ってつなぎ直し、フォーク前方の過剰な巻き付きを緩める酵素です。
- 一本鎖 DNA 結合タンパク質(SSB):一本鎖 DNA を覆い、らせんの再形成を防ぐタンパク質です。
- プライマーゼ:プライマーを作る RNA ポリメラーゼです。
- プライマー:DNA ポリメラーゼに出発点の 3′ 末端を与える短い RNA 鎖です。
- リーディング鎖:フォークに向かって連続的に作られる新しい鎖です。
- ラギング鎖:フォークから離れる方向へ断片として作られる新しい鎖です。
- 岡崎フラグメント:ラギング鎖の短い断片の一つです。
- スライディングクランプ:DNA ポリメラーゼを DNA 上に保持する環状タンパク質で、真核細胞では PCNA です。
- DNA リガーゼ:ホスホジエステル結合を作り、ニックを閉じる酵素です。
- 校正:ポリメラーゼの 3′ から 5′ のエキソヌクレアーゼによって、誤って加えたヌクレオチドを除くことです。
- 半保存的複製:新しい各らせんに古い鎖一本が残る複製です。
参考資料
OpenStax, Biology 2e, 14.2 DNA Structure and Sequencing (一塩基対当たり 0.34 nm、幅 2 nm、一回転当たり 3.4 nm と 10 塩基対). https://openstax.org/books/biology-2e/pages/14-2-dna-structure-and-sequencing (確認日 2026-10-16)
OpenStax, Biology 2e, 14.3 Basics of DNA Replication (Meselson と Stahl、半保存的複製). https://openstax.org/books/biology-2e/pages/14-3-basics-of-dna-replication (確認日 2026-10-16)
OpenStax, Biology 2e, 14.4 DNA Replication in Prokaryotes (ヘリカーゼ、SSB、トポイソメラーゼ、5〜10 ヌクレオチドのプライマー、スライディングクランプ、DNA pol I とリガーゼ、大腸菌の 460 万塩基対を約 42 分で複製、毎秒 1,000 ヌクレオチド). https://openstax.org/books/biology-2e/pages/14-4-dna-replication-in-prokaryotes (確認日 2026-10-16)
OpenStax, Biology 2e, 14.5 DNA Replication in Eukaryotes (60 億塩基対、最大 10 万の起点、毎秒 50〜100 ヌクレオチド、pol ε と pol δ、PCNA、RNase H、テロメラーゼ). https://openstax.org/books/biology-2e/pages/14-5-dna-replication-in-eukaryotes (確認日 2026-10-16)
OpenStax, Biology 2e, 14.6 DNA Repair (3′ エキソヌクレアーゼによる校正、ミスマッチ修復). https://openstax.org/books/biology-2e/pages/14-6-dna-repair (確認日 2026-10-16)
Nature Education, Scitable: Major Molecular Events of DNA Replication (真核細胞では毎秒約 40 ヌクレオチド、Okazaki ら 1968). https://www.nature.com/scitable/topicpage/major-molecular-events-of-dna-replication-413/ (確認日 2026-10-16)
Balakrishnan, L. と Bambara, R. A., Okazaki fragment metabolism, Cold Spring Harbor Perspectives in Biology 5, a010173 (2013) (岡崎フラグメントは細菌で約 1,200 ヌクレオチド、真核細胞で約 200). https://pmc.ncbi.nlm.nih.gov/articles/PMC3552508/ (確認日 2026-10-16)
Nature Education, Scitable: DNA Replication and Causes of Mutation (約 10 万ヌクレオチドに一つの誤り、校正は約 99 パーセントを修正、ゆらぎ塩基対). https://www.nature.com/scitable/topicpage/dna-replication-and-causes-of-mutation-409/ (確認日 2026-10-16)
Nature Education, Scitable: Semi-Conservative DNA Replication: Meselson and Stahl (三つのモデルと 1958 年の実験). https://www.nature.com/scitable/topicpage/semi-conservative-dna-replication-meselson-and-stahl-421/ (確認日 2026-10-16)
Meselson, M. と Stahl, F. W., The replication of DNA in Escherichia coli, Proceedings of the National Academy of Sciences 44, 671 〜 682 (1958). https://pmc.ncbi.nlm.nih.gov/articles/PMC528642/ (確認日 2026-10-16)
Wang, J. C., Helical repeat of DNA in solution, Proceedings of the National Academy of Sciences 76, 200 〜 203 (1979) (一回転当たり 10.4 ± 0.1 塩基対). https://pmc.ncbi.nlm.nih.gov/articles/PMC382905/ (確認日 2026-10-16)
National Human Genome Research Institute, Talking Glossary: DNA Replication (ヒト一細胞の複製時間は数時間). https://www.genome.gov/genetics-glossary/DNA-Replication (確認日 2026-10-16)
NobelPrize.org, The Nobel Prize in Physiology or Medicine 1959 (Severo Ochoa と Arthur Kornberg). https://www.nobelprize.org/prizes/medicine/1959/summary/ (確認日 2026-10-16)
Fijalkowska, I. J., Schaaper, R. M. と Jonczyk, P., DNA replication fidelity in Escherichia coli: a multi-DNA polymerase affair, FEMS Microbiology Reviews 36, 1105 〜 1121 (2012) (挿入、校正、ミスマッチ修復による段階的な寄与). https://pmc.ncbi.nlm.nih.gov/articles/PMC3391330/ (確認日 2026-10-22)
National Human Genome Research Institute, Telomere (染色体末端の保護、短縮、一部の細胞でのテロメラーゼ). https://www.genome.gov/genetics-glossary/Telomere (確認日 2026-10-22)
National Human Genome Research Institute, Polymerase Chain Reaction Fact Sheet (加熱による分離、Taq ポリメラーゼ、繰り返す複製サイクル). https://www.genome.gov/about-genomics/fact-sheets/Polymerase-Chain-Reaction-Fact-Sheet (確認日 2026-10-22)
Tougu, K. と Marians, K. J., The interaction between helicase and primase sets the replication fork clock, Journal of Biological Chemistry 271, 21398 〜 21405 (1996) (大腸菌で 1〜2 秒ごとに一つの岡崎フラグメント). https://doi.org/10.1074/jbc.271.35.21398 (確認日 2026-10-27)
Sender, R. と Milo, R., The distribution of cellular turnover in the human body, Nature Medicine 27, 45 〜 48 (2021) (一日に約 3300 億細胞が交代、90 パーセント近くが血球). https://doi.org/10.1038/s41591-020-01182-9 (確認日 2026-10-27)
Sender, R., Fuchs, S. と Milo, R., Revised estimates for the number of human and bacteria cells in the body, PLoS Biology 14, e1002533 (2016) (70 kg の基準男性に約 30 兆のヒト細胞). https://doi.org/10.1371/journal.pbio.1002533 (確認日 2026-10-27)
Cooper, G. M., The Cell: A Molecular Approach, 第2版, The Eukaryotic Cell Cycle (ヒトの 24 時間の細胞周期のうち S 期は約 8 時間). https://www.ncbi.nlm.nih.gov/books/NBK9876/ (確認日 2026-10-27)
OpenStax, Biology 2e, 10.3 Control of the Cell Cycle (速く分裂するヒト細胞の S 期は約 10 時間、ショウジョウバエ胚の細胞周期は約 8 分). https://openstax.org/books/biology-2e/pages/10-3-control-of-the-cell-cycle (確認日 2026-10-27)
Watson, J. D. と Crick, F. H. C., Molecular structure of nucleic acids, Nature 171, 737 〜 738 (1953). https://www.nature.com/articles/171737a0 (確認日 2026-10-27)
Cairns, J., The bacterial chromosome and its manner of replication as seen by autoradiography, Journal of Molecular Biology 6, 208 〜 213 (1963). https://doi.org/10.1016/S0022-2836(63)80070-4 (確認日 2026-10-27)
Gellert, M., Formation of covalent circles of lambda DNA by E. coli extracts, Proceedings of the National Academy of Sciences 57, 148 〜 155 (1967). https://doi.org/10.1073/pnas.57.1.148 (確認日 2026-10-27)
Okazaki, R. と 共同研究者, Mechanism of DNA chain growth, I, Proceedings of the National Academy of Sciences 59, 598 〜 605 (1968). https://doi.org/10.1073/pnas.59.2.598 (確認日 2026-10-27)
De Lucia, P. と Cairns, J., Isolation of an E. coli strain with a mutation affecting DNA polymerase, Nature 224, 1164 〜 1166 (1969). https://doi.org/10.1038/2241164a0 (確認日 2026-10-27)
Watson, J. D., Origin of concatemeric T7 DNA, Nature New Biology 239, 197 〜 201 (1972). https://doi.org/10.1038/newbio239197a0 (確認日 2026-10-27)
Gellert, M., Mizuuchi, K., O'Dea, M. H. と Nash, H. A., DNA gyrase: an enzyme that introduces superhelical turns into DNA, Proceedings of the National Academy of Sciences 73, 3872 〜 3876 (1976). https://doi.org/10.1073/pnas.73.11.3872 (確認日 2026-10-27)
Greider, C. W. と Blackburn, E. H., Identification of a specific telomere terminal transferase activity in Tetrahymena extracts, Cell 43, 405 〜 413 (1985). https://doi.org/10.1016/0092-8674(85)90170-9 (確認日 2026-10-27)
Kong, X.-P., Onrust, R., O'Donnell, M. と Kuriyan, J., Three-dimensional structure of the beta subunit of E. coli DNA polymerase III holoenzyme: a sliding DNA clamp, Cell 69, 425 〜 437 (1992). https://doi.org/10.1016/0092-8674(92)90445-I (確認日 2026-10-27)
NobelPrize.org, The Nobel Prize in Chemistry 1993 (Kary B. Mullis、PCR)と 2015 (Lindahl、Modrich と Sancar、DNA 修復). https://www.nobelprize.org/prizes/chemistry/2015/summary/ (確認日 2026-10-27)
解説とシミュレーションは CC BY-NC-SA 4.0(特記のあるものを除く)。
ほかの展示

CRISPR-Cas9ゲノム編集を動かして見るシミュレーター
ガイド RNA が読むのは DNA のわずか 20 文字。それだけで、ヒトゲノムの 30 億塩基対の中からたいてい 1 か所を選び出せます。

ATP合成酵素を動かしてしくみを見る
ミトコンドリアの ATP 合成酵素は毎秒約100回転し、1回転ごとに ATP を3分子放出します。
細胞の構造:動物細胞と植物細胞の中を歩く拡大模型
百万倍に拡大すると、ミトコンドリアはソファほどの大きさになり、大腸菌は丸ごと 2 m、すぐ横で小胞を引いていくキネシンは秒速 0.8 メートルで歩きます。
神経伝達の仕組み:ニューロンを刺激して電気信号を追う
神経細胞は約 −70 mV で静止していて、刺激で約 −55 mV に達すると、いつも同じ大きさの活動電位を出します。

セコイアはなぜ大きい?巨木の森で高さと成長のしくみを知る
高さ 83.8 m、推定樹齢約 2,200 年の General Sherman Tree の根元に立ち、幹に登って高い場所の水が引かれる強さを調べます。

恐竜の大きさ比較:実物大の古生物172種と歩く
幅 600 m の園内に、最初の恐竜からティラノサウルスまで、172 種の古生物が実物大で時代順に並んでいます。